שתי גישות של תרבית משותפת ללא מגע מתוארות לצורך הערכה איכותנית וכמותית של תגובות מורפולוגיות פטרייתיות במהלך אינטראקציות בין-מיניות. הפרוטוקול מדגים כיצד גורמים פנימיים משפיעים על צמיחת ההיפים, תוך שימוש במערך בדיקה בין-מיני של Candida כדוגמה. ניתן להתאים שיטות אלו בקלות לחקר תקשורת בין-מינית מיקרוביאלית במגוון אורגניזמים.
מאמר שיטה
בדיקות שיתוף-תרבית ללא מגע למחקרים מורפומטריים במהלך אינטראקציות בין-מיניות בפטריות
במאמר זה
סיכום
תקציר
התנהגות תאית ומורפולוגיה מושפעות בדרך כלל מגורמים תוך-ותחומי-חוץ תאיים שונים בקהילה מיקרוביאלית. גישות שונות הזמינות לחקר תקשורת מיקרוביאלית עשויות להיות מייגעות ו/או לדרוש מתקנים ומומחיות מיוחדת. כאן מתוארות שתי גישות משלימות של תרבית משותפת ללא מגע, בדיגת תרבית משותפת באמצעות פלטת בארות עם סרט מקריב (membrane insert well plate) ובדיקה מבוססת על עליון נטול תאים (CFS), המתבססות על מעבר מורפולוגי כתגובה מדידה לבחינת תפקידם של גורמים שונים באינטראקציה בין-מינית נתונה. מערכת פלטת הבארים עם הסרט המקריב, תוך שהיא מאפשרת דיפוזיה של מולקולות חוץ-תאיות, מאפשרת אינטראקציה בזמן אמת בין מינים המופרדים פיזית. להשוואה, הבדיקה המבוססת על CFS מספקת גישה מפושטת וניתנת להרחבה להערכת תגובות למצעים מותנים (conditioned media). הפרוטוקול המוצג כאן כולל נהלים סטנדרטיים להכנת תרביות, הפקת עליונים מותנים, הקמת הבדיקה, מיקרוסקופיה, רכישת תמונות, ניתוח מורפומטרי כמותי באמצעות Fiji והערכה סטטיסטית. הדבר הודגם באמצעות דוגמה של תגובה מורפולוגית פטרייתית לגורמים פנימיים וחיצוניים. השיטות המוצגות כאן מציעות כלים חלופיים נגישים וניתנים להתאמה לחקר אינטראקציות מיקרוביאליות חדשות בקהילה, ויכולות להיות מורחבות בקלות לבחינת המנגנונים העומדים בבסיס קיום משותף של מינים מרובים בקהילה.
מבוא
במערכות אקולוגיות טבעיות וקליניות, מיקרואורגניזמים שוכנים בדרך כלל בתוך קהילות פולימיקרוביאליות מובנות, הנשלטות על ידי רשתות מורכבות של תקשורת תוך-בينية ובין-ביינית 1. קונסורציומים אלו משתמשים באותות כימיים מגוונים, כולל מולקולות של חיש-מספר (quorum-sensing), תרכובות אורגניות נדיפות, ופפטידים וחלבונים הפרשתיים, כדי לתאם התנהגויות ברמת האוכלוסייה2. מיפוי דינמיקות תקשורת אלו הוא קריטי, שכן אינטראקציות נישה שיתופיות, תחרותיות או טריפטוריות משנות באופן משמעותי את המטבוליזם המיקרוביאלי, את הארכיטקטורה המרחבית ואת ההסתגלות למצבי עקה3. מבחינה קלינית, רשתות פולימיקרוביאליות אלו (כגון קונסורציומים של שני מינים של חיידקים ופטריות או קונסורציומים של מיני פטריות שונים) מציגות לעיתים קרובות וירולנציה סינרגית, התנחלות מואצת ברקמות ועמידות מוגברת לאנטיביוטיקה, בהשוואה לתרביות טהורות (monocultures)4,5. לכן, פענוח הדטרמיננטים המולקולריים של תקשורת מיקרוביאלית הוא חיוני כדי להתעלות מעל המודלים המסורתיים ולפתח אסטרטגיות אנטי-זיהומיות חדשניות להפרת היציבות של הקהילה6.
כדי לנתח מצבי תקשורת מיקרובית שונים, חוקרים משתמשים בתצורות ניסיוניות מגוונות, הנמצאות בשימוש בעיקר בביולוגיה של תאי יונקים, אימונולוגיה ואונקולוגיה7,8,9. לדוגמה, מודלים של תרבית משותפת (co-culture) במגע ישיר משמשים כסטנדרט לחקר סיגנלינג juxtacrine ואינטראקציות פיזיות בין תאים10. מערכים דומים עם התאמות משמשים גם לחקר אינטראקציות פיזיות בין מיקרובים, להבנת עיכוב בין-מיקרובי או תגובה לתרופות9,11,12. עם זאת, קשה להבחין במנגנונים העומדים בבסיס התהליך, מכיוון שגם אותות תלויי-מגע וגם אותות דיפוזיביים תורמים לתגובה הנצפית. בעוד שבדיקות מסורתיות מבוססות-מגע יכולות לספק תובנות מרחביות, הן מורכבות ו/או דורשות סימון של זנים שונים, דבר שעלול להיות סיזיפי עבור אורגניזמים שאינם אורגניזמי-מודל. לעומת זאת, בדיקות Transwell (פלטת בארות עם מקרימי ממברנה) משמשות, בעיקר במחקרי יונקים, כדי להבחין בין התרומה של אותות תלויי-מגע לאותות דיפוזיביים13,14,15,16. שיטה זו שימושית במיוחד כאשר התקשורת התאית מתווכת על ידי מולקולות מופרשות, מה שמאפשר ניתוח בזמן אמת של דינמיקת הסיגנלינג בין אוכלוסיות תאים17. יתרה מכך, בדיקות ללא מגע מציעות את היתרון של הפרדה באמצעות ממברנה, שיכולה לשלב גם ניסויים עם מודלים חישוביים כדי לעקוב באופן דינמי אחר מיקרובים ששיטות מסורתיות מחמיצות18. גישה זו משמשת לעיתים כדי לחקור בו-זמנית את קינטיקת הפיתוח של מיני חיידקים שונים19.
חלופה זולה ובעלת תפוקה גבוהה לבדיקת פלטת בארות עם מקרין ממברנה היא בדיקה המבוססת על עליון נטול תאים (Cell-Free Supernatant - CFS) או על מצע מותנה (conditioned medium). שיטה זו ידועה בשימוש ברפואה רגנרטיבית ובביולוגיה של כלי דם לצורך בידוד סקרטומים הנדרשים להבנת תיקון רקמות המתווך על ידי תאי גזע ו/או אנגיוגנזה מושרית גידול20. באופן דומה, במחקרים מיקרוביאליים, מסגרות CFS היו שימושיות בפענוח תחרות פולימיקרוביאלית. לדוגמה, תסנני בקטריות (כגון Pseudomonas aeruginosa acyl-homoserine lactones או Lactobacillus metabolites) שימשו לוויסות הבשלת ביופילם פטרייתי21,22. לאחרונה, פלטפורמות מיקרופלואידיות אפשרו ביומימיקרי פיזיולוגי ברמת דיוק גבוהה באמצעות טכנולוגיות של אי-על-שבב (organ-on-a-chip)23,24. בעוד שמערכות מיקרופלואידיות הוטמעו לצורך זיהוי סימולטני של תגובת הקהילה המיקרוביאלית לסקרטומים שלה, הן דורשות ציוד מומחה וידע מקצועי ועשויות שלא להיות ניתנות להטמעה קלה בכל הסביבות25,26,27. לכן, בדיקות פלטת בארות עם מקרין ממברנה ובדיקות מבוססות CFS מבטיחות להיות שיטות הבחירה ברוב המקרים. הבחירה בין שתי בדיקות אלו תלויה באופי המולקולה המופרשת. אם המולקולה המופרשת אינה יציבה, כלומר בעלת זמן מחצית חיים קצר, ונדרש למדוד פעילות בזמן אמת, בדיקת פלטת בארות עם מקרין ממברנה תהיה מתאימה יותר. מאידך, אם המולקולה המופרשת יציבה והניסוי מבוצע בקנה מידה גדול, בדיקה מבוססת CFS תהיה חסכונית יותר.
המטרה העיקרית של פרוטוקול זה היא להציג מתודולוגיית מעקב איכותית וכמותית שלב-אחר-שלב להערכת מאפיינים מורפולוגיים, תוך שימוש בפלטפורמות של פלטת בארי עם מקטעי ממברנה (membrane insert well plate) ו-CFS (איור 1). כאן, הדבר הודגם באמצעות תקשורת מונעת מגורמים מופרשים בין Candida albicans לבין Candida glabrata כדוגמה. בנוסף, כלים אלו יכולים לכמת את ההשפעות של משתנים גנטיים פנימיים (פלואידיות ומצב לוקוס ההזדווגות) בשינוי הפיתוח הגיאומטרי המוחלט (אורך, נפח וקוטר) של סיבי C. albicans , כאשר הם נחשפים למולקולות איתות הפרשתיות. פרוטוקול מבוסס זה מספק פלטפורמה פשוטה ובמחיר נגיש ללא מגע, המתאימה לחקר דינמיקה של איתות בין-מינית.
פרוטוקול
שניהם .C. albicans ו- *C. glabrata* מסווגים כפתוגנים אופורטוניסטיים אנושיים ברמת בטיחות ביולוגית 2 (BSL-2). יש לבצע את כל השלבים הניסיוניים בתוך קבִינטים לבטיחות ביולוגית מאושרים, תוך הקפדה קפדנית על פרקטיקות מיקרוביולוגיות טובות (GMP) ונהלי הכלה מוסדיים. יש ללבוש ציוד מיגון אישי (PPE), כולל חלוקי מעבדה, כפפות כפולות ומסכי הגנה לעיניים, לאורך כל התהליך. כל כלי הפלסטיק, המתכלים המזוהמים ותרביות הנוזל חייבים לעבור עיקור בלחץ (autoclaving) מאושר (121 °C, 15 psi, למשך 20 דקות) או חיטוי כימי באמצעות תמיסת נתרבן היפוכלוריט (sodium hypochlorite) בריכוז 10% שהוכנה טרי, לפני הסלקה סופית (המלצה: מדריך להסלקת פסולת של המכוניים הלאומיים לבריאות (NIH) 2022). כל הריאגנטים הסטנדרטיים, הכימיקלים בדרגת ניתוח (analytical-grade) והציוד שנעשה בהם שימוש לאורך מתודולוגיה זו מתוארים ב- טבלת חומריםתכונות זני הפטריות והגנוטיפים הרקעים מפורטים ב- טבלה 1רשימת המצעים ששימשו במחקר זה, יחד עם הרכבים שלהם, מופיעה ב קובץ נלווה 1.
1. הכנת ת上-נחה נטולת תאים (CFS)
- התנעת תרבית ודגירה
- בעזרת לולאת פלסטיק סטרילית, בחר מושבה בודדת ומבודדת של C. glabrata CBS138 שגדלה לאחרונה על צלחת אגר של Glucose Minimal Medium (GMM)28. זרע את המושבה לתוך מבחנה זכוכית סטרילית המכילה 10 mL של ציר Yeast Peptone Dextrose (YPD) סטנדרטי (1% w/v תמצית שמרים, 2% w/v פפטון, 2% w/v D-glucose)29.
- אבטח את המבחנה בתוך אינקובטור עם ניעור אורביטלי. דגור את התרבית בטמפרטורה קבועה של 37 °C עם ערבוב רציף ב-200 rpm למשך 18 h.
- וודא שהתרבית נכנסה באופן אחיד לשלב הגדילה הסטציונרי המאוחר על ידי בדיקה שהצפיפות האופטית (OD600) נשמרת בטווח יציב של 12.0 עד 14.0. בדוק את התאים תחת מיקרוסקופ כדי לוודא שהתאים הם בצורת שמרים ונקיים מזיהומים. חלון התפתחותי זה נדרש כדי להבטיח הצטברות אופטימלית של רכיבי סקרטום חוץ-תאיים יציבים.
- הפרדת תאים וסינון
- העבר באופן אספטי את תרבית הנוזל של C. glabrata בת גיל 18 h לתוך מבחנת צנטריפוגה קונוית סטרילית מפוליפרופילן של 15 mL.
- אזן את המבחנות וצנטריפוג את התרבית ב-5,000 x g למשך 5 min בדיוק בטמפרטורת חדר נשלטת של 25 °C כדי לדחוס את הביומסה לכדור תאים (pellet) הדוק.
- שפוך את הנוזל העלון (supernatant) הגולמי לתוך מזרק פלסטיק נקי וסטרילי של 20 mL. חבר בזהירות את המזרק למסנן ממברנה סטרילי של 0.22 µm מסוג Polyethersulfone (PES) בעל קישור נמוך לחלבונים.
- הפעל לחץ מכני קבוע כדי להעביר את הנוזל דרך מסנן ה-PES לתוך מבחנת איסוף סטרילית של 15 mL, ובכך צור את הנוזל העלון נטול התאים (CFS) לשימוש. אם מורגשת התנגדות במהלך הסינון, אין להפעיל לחץ מוגבר, שכן הדבר עלול להוביל לקרע בממברנה. במקרים כאלה, השתמש במסנן ממברנה חדש.
הערה: אין להעביד את ה-CFS שנסף כעת מחזורי הקפאה-הפשרה מהירים או טמפרטורות אחסון נמוכות מ-4 °C לפני ביצוע הבדיקה, שכן שיקוע מקורר עלול לערער את יציבותם של גורמי חלבון בריכוז נמוך. - שמור את כדור התאים הדחוס במבחנת האיסוף הראשונית אם ממשיכים ישירות לניסוי תרבית משותפת בלוח בארות עם מקרין ממברנה נלווה (שלב 4).
2. הכנת אינוקולום של Candida albicans לבדיקות השראה של היפים
- הכנה ותחזוקה של האינוקולום
- שלפו זני C. albicans המיועדים (ראו Table 1 עבור הגנוטיפים) ישירות ממלאי גליצרין ראשיים לאחסון ארוך טווח ב-80 °C-. זרעו את התאים על מצעי GMM מוצקים (0.67% w/v yeast nitrogen base ללא חומצות אמינו, 2% w/v D-glucose, 2% w/v agar) כדי להקים מושבות עבודה.
- עבור זנים דיפלואידיים (SC5314, RBY1132, RBY1133): זרעו מושבה בודדת לתוך 5 mL של GMM נוזלי. דגרו את המבחנה למשך 12 h ב-37 °C תחת ערבוב קבוע של 200 rpm.
הערה: שימוש במצע מינימלי (GMM) להכנה למשך לילה של תאים דיפלואידיים הוא קריטי לדיכוי אוטו-פילמנטציה ספונטנית המתרחשת לעיתים קרובות במצעים עשירים בחומרים מזינים. - עבור זנים הפלואידיים (GZY896, GZY803): זרעו מושבה מבודדת לתוך 5 mL של ציר YPD נוזלי בתוספת 0.1 mg/mL uridine (YPDU). דגרו את המבחנה למשך 12 h ב-37 °C עם ערבוב רציף של 200 rpm.
- כדי לשמור על יציבות מורפולוגית ולהבטיח עקביות, הגבילו תרביות משנה נוזליות רצופות למקסימום של שלושה מעברים. אם רמת האוטו-פילמנטציה או התקבצות פסאודה-הייפית עולה על 2% במאגר הבקרה ההתחלתי, השליכו את הזן והקימו תאים טריים ממלאי ההקפאה הראשיים.
- נורמליזציה
- העבירו מנה של 1 mL מהתרביות הנוזליות שגדלו למשך לילה לקיווטות סטריליות. מדדו את הבליעה המדויקת ב-600 nm (OD600) באמצעות ספקטרופוטומטר UV-Visible מכויל, תוך שימוש ב-GMM או ציר YPDU טריים כביקורת לכיול (blanking control).
הערה: ה-OD600 (צפיפות התאים) של התרביות הנוזליות שגדלו למשך לילה, ובמיוחד אלו שגדלו ב-YPDU, עשויה לחרוג מטווח הרגישות של הספקטרופוטומטר. במקרים אלו, דללו את התרביות באופן מתאים (פי 10–20) לפני ביצוע המדידות. - חשבו את נפח התרבית הרכה הדרוש ליצירת סספנסיות מטרה סטנדרטית. דללו את התאים עם GMM נוזלי שחומם מראש (37 °C) במבחנה סטרילית כדי להכין אינוקולום עבודה של 1 mL המותאם ל-OD600 סופי מוחלט של 0.1.
- העבירו מנה של 1 mL מהתרביות הנוזליות שגדלו למשך לילה לקיווטות סטריליות. מדדו את הבליעה המדויקת ב-600 nm (OD600) באמצעות ספקטרופוטומטר UV-Visible מכויל, תוך שימוש ב-GMM או ציר YPDU טריים כביקורת לכיול (blanking control).
3. בדיקת השראה של היפנים מבוססת CFS (בפורמט של פלטת 96 בארות)
- הגדרת הבדיקה
- השתמש בפלטת מיקרוטיטר מפוליסטירן בת 96 בארות, סטרילית, שקופה אופטית ובעלת תחתית שטוחה.
- תצורת בארות הבדיקה: העבר 45 µL של CFS של C. glabrata מסונן טרי (משלב 1.2.4) ישירות לבארות הבדיקה הייעודיות. הוסף 45 µL של מצע GMM סטרילי (או מצע YPDU אם מוערכים זני מטרה הפלואידיים).
- ביקורות מדיה שליליות: הוסף 90 µL של מצע GMM לבארות הביקורת. בנוסף, בבאר נפרדת, ערבב 45 µL של מצע GMM סטרילי עם 45 µL של מצע YPD נקי שאינו מוארב, כדי לנטר את רכיבי הרקע הבסיסיים של המדיה.
- ביקורות השראה חיוביות: הוסף 80 µL של מצע GMM בשילוב עם 10 µL של סרום עגל עוברי (FBS; ריכוז סופי של 10% v/v).
- האבה: העבר בדיוק 10 µL של אינוקולום עבודה של C. albicans מנורמל ל-OD600 = 0.1 (משלב 2.2.2) לתוך 90 µL של המדיה המתאימה בכל בארות הניסוי והביקורת.
- דגירה ואיסוף נתונים
- כסה את פלטת ה-96 בארות במכסה הפלסטיק המתאים כדי למזער אידוי. הנח את הפלטה באינקובטור סטטי המתוחזק ב-37 °C למשך 3 h בדיוק. הימנע מהזזת הפלטה או טלטולה במהלך פרק זמן זה כדי לאפשר פילמנטציה יציבה.
- לאחר הדגירה, הנח את פלטת הבארות במצב זקוף על הבמה של מיקרוסקופ אור הפוך המצויד באופטיקת שדה בהיר ובמודול מצלמה דיגיטלית מסוג CCD.
- דגום באופן שיטתי תמונות אוטומטיות או ידניות בחמישה שדות ראייה נפרדים לפחות לכל באר.
- בצע תצורת בדיקה זו עם כפילויות טכניות ברורות לכל תנאי, על פני לפחות שלוש חזרות ביולוגיות עצמאיות לחלוטין שהוכנו בימים נפרדים.
4. מבחן תרבית משותפת בלוחית בארות עם מקרין ממברנה
- הגדרת תא אבלומינלי (תחתון)
- קחו פלטה סטרילית של נשאי תרבית רקמה עם 24 בארות.
- העבירו בדיוק 1.0 mL של תרחיף תאי C. albicans מנורמל בעל OD600 = 0.1 (משלב 2.2.2) לתוך התאים האבלומינליים התחתונים.
- הגדרת תא לומינלי (עליון)
- שלוף את משקע תאי ה-C. glabrata שהופרש במהלך שלב 1.2.5. השביו את המשקע ב-1 mL של מצע GMM סטרילי, צנטריפוגו ב-5000 x g למשך 3 דקות, ושפכו את הנוזל. חזרו על שלב שטיפה זה פעמיים כדי להסיר רכיבי תזונה שאיריים או מרכיבים ישנים של המצע.
- השביו את המשקע השטוף הסופי במצע GMM טרי וכוון את הצפיפות האופטית הסופית לערך ריכוז גבוה של OD600 = 5.0.
- באמצעות פינצטה סטרילית, קחו תאית ממברנה סטרילית בעלת ממברנת פוליקרבונט עם נקבים בגודל 0.4 µm שנוצרו בתהליך חריטה (track-etched). הורידו את גוף התאית בעדינות לתוך בארת הפלטה התפוסה, והנחו את השוליים העליונים שלה על מיקומי החריצים המרכזיים.
- העבירו בדיוק 750 µL של תרבית C. glabrata מרוכזת עם OD600 = 5.0 לתוך תא התאית הלומינלי העליון.
הערה: שמירה על יחס תאים ראשוני של בערך 1:50 (C. albicans מול C. glabrata) על פני מחסום הממברנה מספקת הצטברות מספקת של ליגנדים של אותות תוך מניעת ארטיפקטים של משוב מקומי.
- אינקובציה ודימוג
- כסו את מכלול פלטת בארות תאי הממברנה והדגרירו באופן סטטי או עם ניעור אורביטלי עדין (30 rpm) ב-37 °C למשך בדיוק 3 שעות.
- לאחר האינקובציה, השתמשו בפינצטה סטרילית כדי להרים בזהירות ולשלוף את התאית הלומינלית העליונה מכל בארה. השליכו את התאיות לפסולת ביולוגית מסוכנת.
הערה: הסרה מלאה של ממברנת התאית העליונה לפני הדימוג נחוצה כדי למנוע צללים שבירים, תבניות של פיזור אור וארטיפקטים של רשת רקע במהלך סריקה מיקרוסקופית ברזולוציה גבוהה. - מקמו את פלטת 24 הבארות על שולחן המיקרוסקופ ההפוך לצורך הערכה מורפולוגית. במחקר זה, נעשה שימוש במיקרוסקופ הפוך עם עדשה אובייקטיבית של 10x/0.30NA, 20x/0.50NA, או עדשה בעלת מרחק עבודה ארוך במיוחד של 40x/0.60NA, עם סט פילטרים של DIC.
5. מיקרוסקופיה ברזולוציה גבוהה וניתוח תמונות דיגיטלי
- רכישת תמונות דיגיטליות
- סרקו את קרקיות הבארות באמצעות עדשת אובייקטיב 10x בעוצמה נמוכה כדי לוודא פיזור תאים אחיד ולסמן שגיאות מעקב מקומיות או התקבצויות תאים חריגות.
- צלמו לפחות 10 שדות ראייה נפרדים באמצעות עדשת אובייקטיב 20x מכוילת. תמונות אלו מהוות את מאגר הנתונים המרכזי למעקב אחר ספירות פילמנטים סטנדרטיות והתפלגויות אוכלוסייה.
- לניתוח פנוטיפי עדין ומדידות מפורטות של גבולות התאים, צלמו מיקרוגרפים תחת הגדרה של עדשת אובייקטיב 40x בעלת מרחק עבודה ארוך במיוחד. שמרו את כל קבצי התמונה הגולמיים.
- תהליך פנוטיפי כמותי (Fiji)
- הפעילו את תוכנת העיבוד Fiji (גרסה 1.54p או גבוהה יותר). פתחו את המיקרוגרף המבוקש על ידי ניווט אל File > Open או גרירת הקובץ ישירות אל לוח הבקרה של Fiji.
- מעקב אחר אורך ההיפה (L): לחצו קליק ימני על סמל בחירת הקו בסרגל הכלים הראשי של Fiji ובחרו ב-Segmented Line Tool מהתפריט הנפתח. מקמו את הסמן בנקודת החיבור המדויקת שבה הפילמנט הנע בוקע מגבול דופן תא השמר האם.
- לחצו קליק שמאלי באופן רציף כדי לשרטט לאורך הציר האורכי המרכזי של ההיפה, תוך הצבת נקודות עיגון להתאמה לקימורים או עיקולים, וסיימו את הקו בקצה האפיקלי המוחלט שלו. לחצו על Measure כדי לתעד את האורך במיקרומטרים (µm). לחצו על Ctrl+M (ב-Windows) או Cmd+M (ב-Mac OS) כדי לתעד את האורך הכולל (L) במיקרומטרים (µm) בחלון התוצאות (Results).
- כדי למנוע מדידות כפולות של אותו פילמנט, השתמשו בכלי ה-‘Brush Tool’ המובנה כדי לסמן כל תא שהושלם.
- פרופיל תא שמר אם: אתרו את גוף תא השמר האם המחובר המתאים לפילמנט ההיפה שנמעקב קודם לכן. השתמשו ב-Segmented Line Tool כדי לצייר קו ישר לאורך הציר הארוך המקסימלי של גוף התא כדי למדוד את צירו הארוך המקסימלי (ציר ראשי, המוגדר כמשתנה ‘a’) ובצעו את פקודת ה-Measure.
- ציירו קו משני בניצב מוחלט לציר הראשי לרוחב המפתח הרוחבי הרחב ביותר של גוף התא כדי למדוד את ציר החתך הניצב המתאים לו (ציר משני, המוגדר כמשתנה ‘b’) ובצעו את פקודת ה-Measure.
- חשבו את הנפח הכולל של תא השמר האם (CV, מבוטא במיקרומטרים מעוקבים, µm3) על ידי יישום המודל הגיאומטרי הסטנדרטי לספרואיד מוארך תוך שימוש במשתנים המתועדים עבור ‘a’ ו-‘b’: CV = 4/3 π ab2.
- עובי מבני של ההיפה (d): בחרו ב-Segmented Line Tool. מדדו את המרחק החיצוני מדופן לדופן כלומר, קו המסומן בניצב לציר האורך. בצעו מדידות אלו בשלוש נקודות נפרדות במרווחים שווים לאורך הפילמנט כדי להביא בחשבון וריאציות מבניות טבעיות, ותעדו כל מדידה באמצעות פקודת ה-Measure.
- חשבו את הממוצע האריתמטי של שלוש נקודות נתונים נבדלות אלו כדי לקבוע ערך עובי ממוצע מדויק (d). חלקו את ערך הקוטר הממוצע שחושב בשתיים כדי לקבוע את הרדיוס המבני המשתנה (r = d/2).
- חשבו את הנפח הכולל של פילמנט ההיפה (HV, מבוטא ב-µm3) על ידי התייחסות לפילמנט כגליל גיאומטרי רגיל ללא הסתעפויות. יישמו את אורך הפילמנט שנמעקב (L) ואת הרדיוס המבני הנגזר (r) במודל החישוב הבא: HV = π r2 L.
6. תכנון סטטיסטי
- שכפולים ביולוגיים
- בצע את כל פריסות הבדיקה האינדיבידואליות לאורך לפחות שלושה הרצות ביולוגיות בלתי תלויות, תוך שימוש בתרביות התנעה טריות שהוכנו בנפרד.
- בכל הרצה ביולוגית, הקצו לפחות שתי בארות טכניות זהות לכל תנאי, כדי להוות מענה להשפעות מקומיות של שולי הבאר או להבדלים בדיקור (pipetting).
- הגדרת היחידה הניסוית: כדי להבטיח תקפות סטטיסטית ולמנוע ארטיפקטים, יש לכלול מינימום של שלוש חזרות טכניות עבור כל ניסוי. תאים בודדים שנמדדו בתוך באר אחת מהווים תתי-דגימות טכניות; באופן דומה, שלוש בארות כאלה יתאימו לשלוש חזרות טכניות. כמו כן, מומלץ לבצע שלוש חזרות ביולוגיות (ניסויים עצמאיים) עבור כל דגימה (N = 3).
- עבור כל תנאי נפרד במסגרת ריצה ביולוגית, מדוד באופן אקראי בין 50 ל-100 תאים בודדים על פני מספר שדות ראייה. עבור כל שכפול ביולוגי, חשב את ערך הממוצע או החציון של מדידות תאים אלו. השתמש בערכי ממוצע או חציון אלו מהשכפולים הביולוגיים עבור כל המבחנים הסטטיסטיים ההשוואתיים בהמשך התהליך.
- פרופיל התפלגות ובדיקת השערות
- יש להעביר את מערכי הנתונים של החזרים הביולוגיים להערכת נורמליות באמצעות מבחני Shapiro-Wilk או D’Agostino-Pearson לנורמליות, לפני יישום שיטות פרמטריות (למשל, השוואת ממוצעים).
- השוואות בין שתי קבוצות: כאשר משווים קבוצת ניסוי אחת ישירות מול רקע של קבוצת ביקורת אחת (למשל, סוג בר - wild-type .C. albicans צמיחה במצע טהור לעומת צמיחה בבידוד C. glabrata (CFS), השתמשו במבחן t של Student לשני זנבות, למדגמים בלתי זוגיים מבחן t, בתנאי שמערך הנתונים עוקב אחר התפלגות נורמלית.
- אם הנתונים סוטים באופן משמעותי מהתפלגות נורמלית, יש לעבור לחלופה לא-פרמטרית, כגון מבחן Mann-Whitney U (מבחן Wilcoxon rank-sum), המשווה ערכי חציונים של נתונים מדורגים ואינו תלוי בערכים המוחלטים של הנתונים. מבחנים לא-פרמטריים ידועים גם ככאלה שאינם מושפעים מערכים חריגים.
- הערכות של קבוצות מרובות: בעת הערכה של שלושה או יותר של קווים גנטיים או שילובי טיפולים בו-זמנית (למשל, מעקב אחר וריאציות מורפולוגיות לאורך בדיקת תאיות (MTT)a/a, בדיקת MATα/α, ו- MATא/α (זנים), בצעו ניתוח שונות חד-כיווני (One-Way ANOVA) סטנדרטי, ולאחריו מבחן פוסט-הוק של Tukey להשוואות זוגיות מרובות. אם מבחן הנורמליות אינו מתקיים, החליפו את המסגרת הפרמטרית במבחן קרוסקל-וואליס (Kruskal-Wallis) לא-פרמטרי, ולאחריו ניתוח השוואות מרובות פוסט-הוק של Dunn.
- ייצוג גרפי והדמיית נתונים: בצע את כל הניתוחים הסטטיסטיים והייצוגים הגרפיים באמצעות תוכנה סטטיסטית ותוכנה לשרטוט גרפים.
הערה: ניתן להשתמש בתוכנה שוות-ערך לביצוע ניתוחים סטטיסטיים ולהכנת ייצוגים גרפיים. ניתן להציג נתונים מפלטת בארות עם מקטעי ממברנה ומבדיקות CFS באמצעות תרשימי פיזור עם עמודות (column-scatter plots), תרשימי כינור עם פיזור (jitter-violin plots), או תרשימי קופסה עם פיזור (jitter box plots), המייצגים את החציון (הקו המרכזי) ואת רווח הסמך של 95% (בשימוש במחקר זה), או את החציון (הקו המרכזי) ואת הרבעונים הראשון והשלישי (הקו העליון והתחתון, בהתאמה). - הגדירו את סף המובהקות הסטטיסטית הפורמלית ברמת אלפא של p < 0.05. שמרו על תצורות סימון קונבנציונליות בכל דמויות הנתונים והטבלאות שנוצרו. לדוגמה: ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
תוצאות
בדיקות תרביות משותפות ללא מגע לבחינת אינטראקציות בין-מיניות
מולקולות איתות חוץ-תאיות מסיסות בריכוזים נמוכים מתווכות לעיתים קרובות אירועי תקשורת מרכזיים במהלך מגורים משותפים של מיקרואורגניזמים מעורבים. דינמיקות אלו נבחנו באמצעות שתי מערכות מבוססות תאים ללא מגע, שתוכננו לנתח דפוסי אינטראקציה בין C. albicans לבין C. glabrata, תוך מניעת מגע פיזי ישיר בין תא לתא. בתצורה הראשונה נעשה שימוש במערכת תרבית בלוחות בארות עם תבניות ממברנה משולבות, שבה שתי האוכלוסיות הופרדו פיזית על ידי ממברנת פוליקרבונט נקבובית אינרטית בגודל 0.4 µm, המאפשרת דיפוזיה דו-כיוונית ללא הפרעה של מולקולות מופרשות דרך המחסום. המערכת השנייה ניתרה את הצמיחה של תאי שמר C. albicans שגודלו ישירות בלוחות מיקרוטיטר המכילים עלי-צוף נטולי תאים שהופקו מתרביות C. glabrata בשלב סטציונרי (CgCFS).
בעקביות עם הסריקות הקודמות30, תאי C. albicans דיפלואידיים הטרוזיגוטים מסוג בר (SC5314) פיתחו בקלות היפים (true hyphae) בתגובה לתאי C. glabrata המופרדים על ידי מחסום של רכיב הממברנה (membrane insert), או לתמיפת CgCFS מסוננת. לעומת זאת, תאים שנשמרו במצע בקרה שלילי טהור (GMM או YPD) נותרו בעיקר בצורת שמרים מנבטים ובצורת פסאודו-היפים (איור 2A). האנליזות ההשוואתיות הדגימו עקביות בין שתי הגדרות הבדיקה. שתי הבדיקות הניבו ערכים דומים בכל המדדים המבניים, כולל אורך הפילמנט, נפחו ועוביו (איור 2). ההבדל בפרמטרים מורפולוגיים נחשב למשמעותי אם ערך ה-p מהבדיקות הסטטיסטיות המתאימות, ולאחריהן בדיקות post-hoc להשוואות מרובות, עמד בקריטריון של 0.05. תצפיות אלו הראו כי בתאי C. albicans לא היה הבדל משמעותי באורך ההיפים, שהודו על ידי תאי C. glabrata במערך פלטת הבארים עם רכיב הממברנה (39.66 µm ± 6.81 µm), או בעת חשיפה ל-CgCFS מסוננת (37.13 µm ± 6.50 µm; איור 2B). באופן דומה, נפחיהם של פילמנטים מושרים אלו במערכת פלטת הבארים עם רכיב הממברנה (112.10 µm3± 22.59 µm3) לא היה שונה באופן משמעותי מאלו שבמצע המותנה של CgCFS (109.78 µm3± 34.69 µm3; איור 2C). יתרה מכך, מדידות של קוטר הפילמנט אישרו כי עובי ההיפים הממוצע נשאר עקבי בין שתי ההגדרות, עם ערכים של 1.89 ± 0.10 µm עבור תצורת פלטת הבארים עם רכיב הממברנה ו-1.92 µm ± 0.23 µm עבור הטיפול ב-CgCFS (איור 2D).
מצבי פלואידיות ותצורות של טיפוסי הזיווג משנים ממדים מורפולוגיים in vitro
תפקידם של רמות הפלואידיות ומבני לוקוס ההזדווגות בהכוונת מעברים דימורפיים הוכחו במערכות מודל פטרייות שונות. כאן, נעשה שימוש בקו תהליך של מעקב אנליטי כדי לכמת מדדי פילמנטציה, ובמיוחד אורך היפה, נפח מבני, עובי, ונפח תא השמר האם התואם, על פני פאנל של זני C. albicans הפלואידיים (MATa או MATα) והדיפלואידיים (MATa/a, MATα/α, או MATa/α).
פרופיל מבני גילה כי בעקבות חשיפה לסקרטום של CgCFS המעודד או לבקרת סרום חיובית, זן אלפא הדיפלואי ההומוזיגוטי (MATα/α) יצר פילמנטים בעלי צירים ארוכים משמעותית (45.56 µm ± 9.24 µm ו-46.62 µm ± 9.07 µm) ונפח גדול יותר (125.24 µm3 ± 39.94 µm3 ו-119.45 µm3 ± 37.32 µm3), בהשוואה לזן הדיפלואי ההומוזיגוטי MATa/a (Figure 3A,C). בעוד שבידודים קליניים סטנדרטיים של C. albicans קיימים בעיקר כדיפלואידים הטרוזיגוטיים, זן הייחוס MATa/α הפגין פילמנטים ארוכים יותר ונפחים גדולים יותר ביחס לזן MATa/a, לאחר השראה (במיוחד עם סרום). עם זאת, אלו היו קטנים משמעותית מאלו של זן ה-MATα/α ההומוזיגוטי (Figure 3B,D).
במקביל, הזנים ההפלואידיים הראו דפוס הפוך, שבו זן ה-MATa ההפלואידי הראה עלייה משמעותית באורך ההיפה בהשוואה לזן ה-MATα ההפלואידי תחת שני תנאי ההשראה (CgCFS: 22.06 µm ± 5.41 µm לעומת 17.58 µm ± 4.12 µm; Serum: 23.71 µm ± 6.59 µm לעומת 21.00 µm ± 5.29 µm; איור 4A). באופן מעניין, עלייה זו באורך ברקע ההפלואידי תורגמה לעלייה בנפח ההיפה (38.84 µm3 ± 19.58 µm3 לעומת 34.25 µm3 ± 19.62 µm3) רק בתגובה ל-CgCFS (איור 4B). מדידות in vitro ראשוניות אלו מצביעות על אינטראקציה מורכבת בין מצבי פלואידיות לבין קונפיגורציות של לוקוס טיפוס ההזיווג, מה שמרמז כי הלוקוסים MATa ו-MATα תורמים ככל הנראה באופן שונה לדינמיקת הפילמנטציה.
כדי לחקור את הקשרים הסטטיסטיים בין מדדים מבניים אלו במאגרי הנתונים המשולבים, בוצעו ניתוחים של מתאם דרג של Spearman (ρ) ורגרסיה ליניארית של Pearson (R2), הכוללים את כל וריאנטים הפלואידיות וסוגי ההזיווג שנבדקו. נצפו מתאמים חיוביים בכל הזוגות שנבחנו: אורך ההיפה לעומת נפח ההיפה, אורך ההיפה לעומת עובי ההיפה, אורך ההיפה לעומת נפח תא האם, ונפח היפה כולל לעומת נפח תא השמר של האם (איור 5, טבלה נלווית 1 וטבלה נלווית 2).
הקשר החזק ביותר נצפה בין אורך ההיפה לנפח ההיפה המחושב (ρ = 0.91; איור 5A). לעומת זאת, המתאם החלש ביותר היה בין הנפח ההתחלתי של תא השמר האם לבין נפח ההיפה הצומחת (ρ = 0.63; איור 5C). בנוסף, עובי ההיפה לא נמצא במתאם חזק עם אורך ההיפה כפי שהיה עם נפח ההיפה (איור 5A,D). לא נמצאו הבדלים מובהקים סטטיסטית במתאמים של נפח תא האם, אורך ההיפה ועובי ההיפה (איור 5B,D). התפלגויות גיאומטריות אלו מרמזות שנפח התחלתי גדול יותר של תא השמר האם אינו בהכרח מוביל להיפות ארוכות יותר או לנפח גבוה יותר.
לסיכום, תוצאות אלה מדגימות את התועלת הן של פלטת הבארים עם המערכת המקמנת ממברנה (membrane insert well plate) והן של הבדיקות המבוססות על CFS לצורך ויזואליזציה וכימות של וריאציות מורפוגנטיות ב- C. albicans ללא כל מגע פיזי. הנתונים שהופקו באמצעות פרוטוקול זה חושפים מאפיינים מורפולוגיים שונים על רקע רמות פלואידיות ותצורות זיווג שונות. מערכי בדיקה אלו ללא מגע מציעים מתודולוגיה גמישה וניתנת להרחבה, שניתן להתאימה לחקר דינמיקה של איתות בין-מינית על פני שילובים מיקרוביאליים מגוונים.
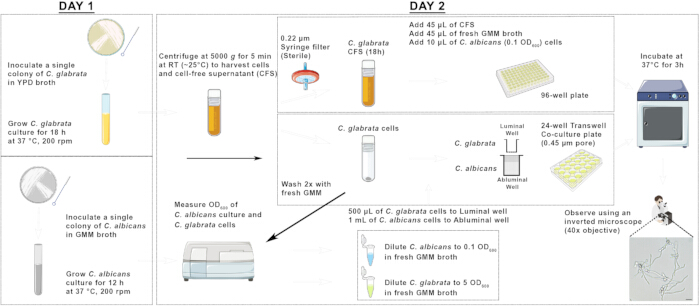
איור 1: ייצוג סכמטי של תרבית משותפת בלוחית בארות עם תא שרטוף (membrane insert) ובדיקות השראת היפות המבוססות על CFS עם מיני Candida. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
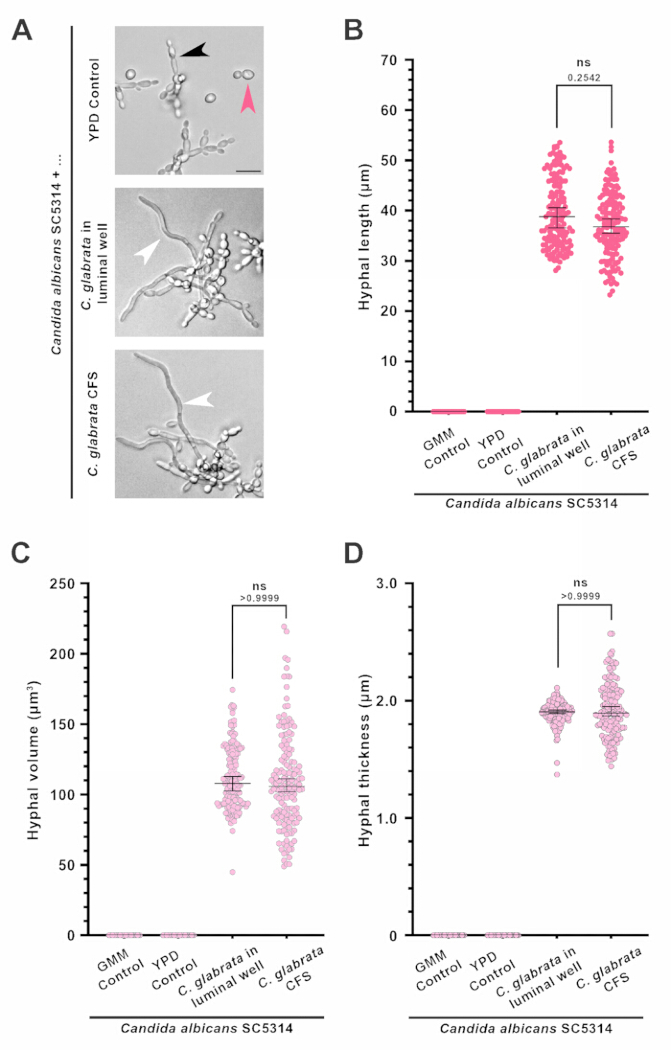
איור 2: השוואה של מורפולוגיות היפנליות שנצפו בין פלטת בארות עם רכיב ממברנה לבין בדיקות ללא מגע המבוססות על CFS. (A) מיקרוגרפיות מייצגות בשדה בהיר המתארות את התגובה המורפולוגית של C. albicans ל-YPD (ביקורת), ל-C. glabrata במערך פלטת בארות עם רכיב ממברנה, או למדיום המותנה עם תסנני תאי C. glabrata (CFS). חצי חצים ורודים, שחורים ולבנים מציינים שמרים, פסאודה-היפות והיפות אמיתיות, בהתאמה. סרגל קנה מידה, 10 µm. אורכי היפות (B), נפחי היפות (C) ועובי היפות (D) של זן C. albicans דיפלואיד הטרוזיגוטי (SC5314) שנצפו בתגובה לתאי C. glabrata במערך פלטת בארות עם רכיב ממברנה או ל-CFS של C. glabrata. הנתונים מייצגים חציון ± 95% רווחי סמך, משלושה ניסויים ביולוגיים עצמאיים, עם n = 50 תאים. ns, לא מובהק: p > 0.05. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
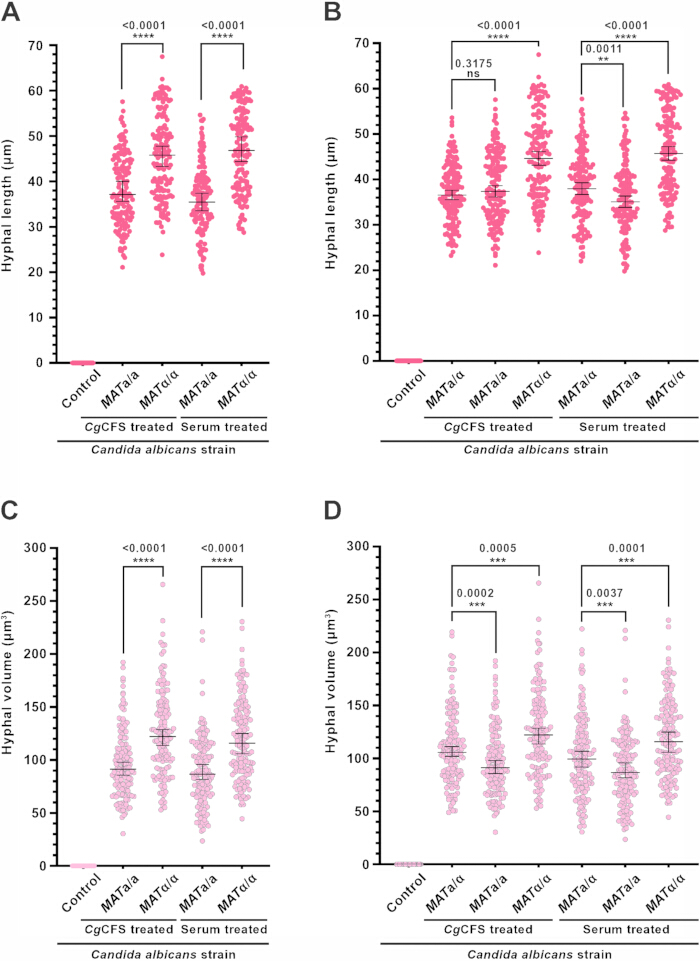
איור 3: לסוג ההזדווגות ולזיגוסיות יש השפעות משמעותיות על מורפולוגיית ההיפות ב-C. albicans דיפלואידי. תרשימים המציגים אורכי היפות השוואתיים, בתגובה למולקולת ההשראה המצוינת, בין דיפלואידים הומוזיגוטים (A) ובין דיפלואידים הטרוזיגוטים והומוזיגוטים (B) של C. albicans. באופן דומה, נפחי ההיפות ההשוואתיים, בתגובה למולקולות ההשראה שהוזכרו, מוצגים בין דיפלואידים הומוזיגוטים (C) ובין דיפלואידים הטרוזיגוטים והומוזיגוטים (D). ביקורת: YPD, ביקורת מצע שאינו מעודד יצירת היפות. הנתונים מייצגים חציון ± 95% confidence intervals, משלושה ניסויים ביולוגיים עצמאיים, עם n = 50 תאים. המספרים המצוינים בחלק העליון של התרשים הם ערכי p, שנקבעו על ידי השוואות של מבחן Wilcoxon rank sum. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001, מובהק סטטיסטית; ns, לא מובהק: p > 0.05. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
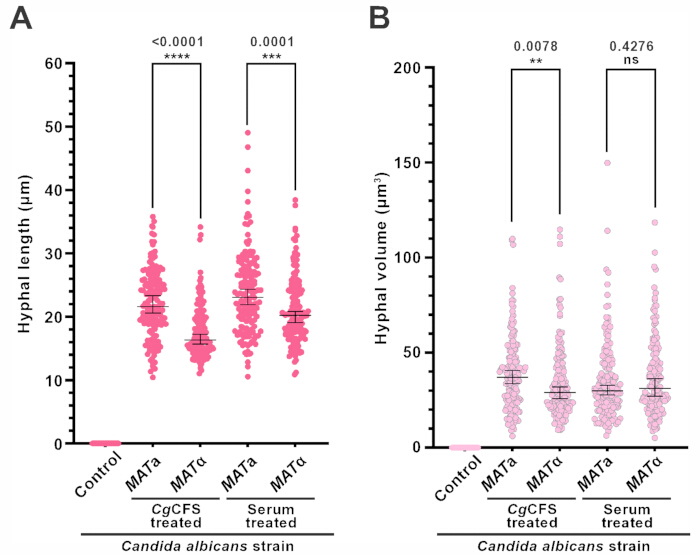
איור 4: מאפייני היפים ב- C. albicans הפלואידי בתגובה למשרה מולקולריים שונים. התרשימים מציגים את אורכי ההיפים (A) ואת נפחי ההיפים (B) בזני C. albicans הפלואידיים, בתגובה למשרה המצוין. ביקורת: YPD, ביקורת של מצע שאינו משרה היווצרות היפים. הנתונים מייצגים חציון ± 95% רווחי סמך, משלושה ניסויים ביולוגיים בלתי תלויים, עם n = 50 תאים. המספרים המצוינים הם ערכי p, שנקבעו באמצעות מבחן סכום הדרגות של וילקוקסון (Wilcoxon rank sum test). **: p < 0.01, ***: p < 0.001, ****: p < 0.0001, מובהק סטטיסטית; ns, לא מובהק: p > 0.05. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
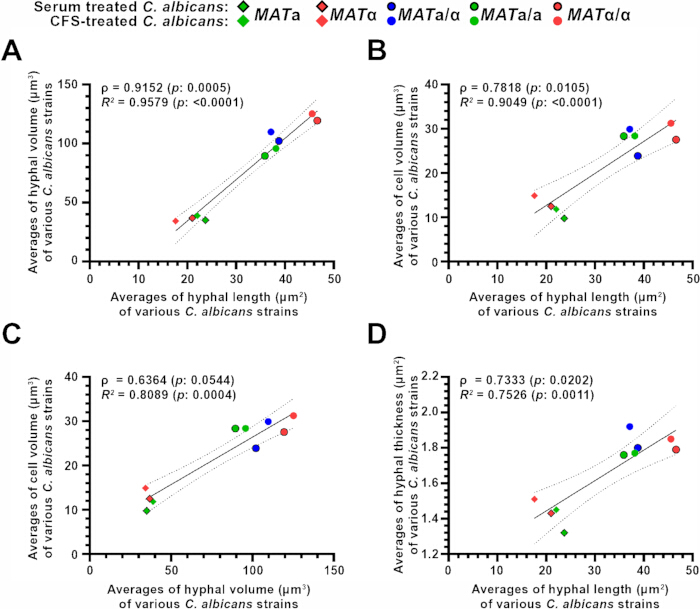
איור 5: מתאם בין פרמטרים מורפולוגיים התואמים לפלואידיות של C. albicans. הגרפים מראים את מתאם Spearman ורגרסיה ליניארית בין הפרמטרים המורפולוגיים ששימשו במחקר זה, כלומר, נפח היפות ואורך היפות (A), נפח תא ואורך היפות (B), נפח תא ונפח היפות (C), ועובי היפות ואורך היפות (D). ρ: מקדם מתאם Spearman; R2: מקדם הדטרמינציה מניתוח רגרסיה ליניארית; p: ערך p. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| זן | מינים | פלואידיות | גנוטיפ | אנא ספק את הטקסט למקור לצורך תרגום. |
| CBS138 | Candida glabrata | הפלואידי (1n) | בדיקת MAT (Antibody Titration Test)α | ATCC 2001 |
| SC5314 | Candida albicans | דיפלואידי (2n) | הטרוזיגוט (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | דיפלואידי (2n) | הומוזיגוט (MATא/א); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. פעילות מחסום ב-Candida albicans מתווכת פירוק פרומונים ומקדמת הזדווגות. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | דיפלואידי (2n) | הומוזיגוטי (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | הפלואידי (1n) | הומוזיגוט (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. ה-'obligate diploid' Candida albicans יוצר תאי haploids בעלי יכולת הזיווג. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | הפלואידי (1n) | הומוזיגוטי (MATα); his4 ura3Δ::HIS4 |
טבלה 1: זני Candida albicans ו-Candida glabrata ששימשו במחקר זה. הטבלה מפרטת את השמות, הגנוטיפים המפורשים, מצבי הפלואידיות והזיגוסיות של סוגי ההזיווג עבור זני הפטריות שנבדקו בקו-קלטורה בלוחית בארי עם רכיב ממברנה ללא מגע ובבדיקות המבוססות על תסנני תאים (CFS).
טבלה נלווית 1: נתונים של ניתוחים סטטיסטיים שבוצעו על פרמטרים מורפולוגיים שונים של C. albicans. אנא לחצו כאן להורדת קובץ זה.
טבלה נלווית 2: ערכים גולמיים של כל החזרות הביולוגיות של פרמטרים מורפולוגיים שונים של C. albicans שנבדקו במחקר זה.אנא לחצו כאן כדי להוריד קובץ זה.
קובץ משלים 1: רשימת המצעים ששימשו במחקר זה והרכבם.אנא לחצו כאן להורדת הקובץ.
דיון
דיווח קודם, שהשתמש בלוחית בארות עם תא inserts של ממברנה ובבדיקה מבוססת CFS, הראה כי C. albicans מפתח היפים בתגובה לתאי C. glabrata או ל-CFS שלהם. עם זאת, תגובה זו לא הושרתה על ידי שמרים אחרים, כגון Saccharomyces cerevisiae ו-Candida dubliniensis30. יתרה מכך, תגובת היפים זו לא הייתה מוגבלת לזן הפסולת המעבדתי C. albicans SC5314 בלבד, אלא התרחשה גם ברקעים גנומיים אחרים, כולל הבידוד הקליני WUM5A30. בפרוטוקול זה, נבנה זרימת עבודה סטנדרטית המבוססת על ממצאים אלו כדי לכמת שלושה מדדים מורפולוגיים: אורך היפים, נפח היפים ועובי היפים. בנוסף, גורמים מורפולוגיים אלו שימשו כדי להעריך כיצד שינויים בפלואידיות ובמצב לוקוס סוג ההזדווגות משפיעים על המאפיינים המורפולוגיים של C. albicans בתגובה למולקולת השראה מופרשת.
המתודולוגיות ללא מגע המתוארות כאן מספקות מסגרת ניסיונית פשוטה להדמיה ולניתוח של התוצאות המורפומטריות של רמזי איתות מסיסים בין-מיניים. בעוד שפלטת בארות עם תאיי ממברנה מאפשרת דיפוזיה דו-כיוונית בין תרביות פעילות, הבדיקה המבוססת על CFS מספקת פורמט שניתן להרחבה כיוון שהמרכיבים המהגבים הדרושים נאספים באופן בלתי תלוי בתרבית המטרה שבשלב הבא. שמירה על יחס של בערך 1:50 (C. albicans ל-C. glabrata) במערך פלטת הבארים עם תאיי הממברנה נדרשת על מנת להבטיח עקביות של הבדיקה. מפל ריכוז זה מבטיח שטף מספיק של המולקולות המהגבות המסיסות דרך מחסום הממברנה, תוך שהריכוז נשאר מתחת לספי rozwג המצטבר של מעכבי חישוש (quorum-sensing) אנדוגניים, כגון פניסול, העשויים לדכא את קינטיקת ההילתנות של C. albicans31,32. באופן דומה, שלב קריטי בבדיקה המבוססת על CFS הוא תקופת הדגירה של 18 שעות הדרושה לתרבית המקור של C. glabrata כדי להגיע באופן אחיד לשלב צמיחה סטציונרי מאוחר. אם תקופת ההדגירה של תרבית ה-C. glabrata קצרה מ-12 שעות או ארוכה מ-24 שעות, הסיכוי ש-CFS הנאסף יכיל ריכוז אופטימלי של מולקולת ההגבה הספציפית הנחקרת כאן נמוך יותר, מה שמוביל להשראת היפים תת-אופטימלית. יש לתקנן את שלב הצמיחה המתאים לאספוף ה-CFS או את יחס התרביות עבור כל מטרה ניסיונית חדשה ו/או שילובים חדשים של מיני מיקרואורגניזמים.
כדי למקסם את הדירות של הבדיקה בתנאי מעבדה שונים, מומלץ להחיל את השכלולים הפרוצדורליים המרכזיים הבאים. מומלץ להשתמש במצע גלוקוז מינימלי (GMM) לצמיחה לילה במעבדה של כל קווי ה-C. albicans הדיפלואידיים. שימוש ב-GMM מדכא את האוטו-פילמנטציה (auto-filamentation) ברקע הנצפית לעיתים קרובות במצע YPD עשיר בחומרים מזינים. אוטו-פילמנטציה כזו נצפתה גם במחקרים אחרים, אם כי המנגנון הבסיסי לכך עדיין אינו ברור33. כמו כן, מומלץ להסיר לחלוטין את רכיב ממבננת הפוליקרבונט לפני רכישת התמונה, כדי למנוע פיזור אור והשגות אופטיות שעלולות להפריע במהלך מיקרוסקופיה בשדה בהיר בהגדלה גבוהה.
בעוד שתצורות חסרות-מגע אלו מסייעות בהפרדה בין התפקידים של רכיבי איתות מסיסים, הן כרוכות באתגרים ניסיוניים ספציפיים. לדוגמה, בדיקות חסרות-מגע חשופות לסיכונים מינוריים כגון קרע בממברנה עקב טיפול לא נכון, ומכאן, מעבר של מיקרואורגניזמים. לפיכך, יש להקפיד בעת מיקום קצות הפפטים, ולהוודא שקצות הפפטים נוגעים בדפנות התא של המאסרטים (inserts) ולא בממברנה במהלך הדגימה. יתרה מכך, זיהום צולב פיזי עלול להתרחש בין המדורים עקב גודל נקבים שגוי (גדול מדי), דבר שניתן לפתור בקלות על ידי שימוש במאסרטים בעלי גודל נקבי ממברנה מתאים. צמיחת יתר של פטריות או שקיעה נרחבת של ביופילם עלולות לכסות את הממברנה נקבובית. בעיה זו נפתרת על ידי הגבלת האינוקולציות הראשוניות ל-OD600 = 0.1 ואי-דגירה מעבר ל-12 h. בנוסף, מיקרואורגניזמים עשויים שלא להתפזר באופן הומוגני בתוך בארי המכשיר, ולעתים קרובות להצטבר או להיצמד ליד הממברנה, מה שעלול להוביל להטיות בלתי צפויות במדידות צפיפות אופטית. יתרה מכך, מכיוון שמערכות אלו מפרידות פיזית בין שתי האוכלוסיות, הן אינן יכולות לשחזר או להעריך אינטראקציות התלויות במגע פיזי ישיר בין תאים. לדוגמה, הבשלה של ביופילם רב-מיני, קו-אגרגציה מכנית, או איתות המונע על ידי אדהזינים של דופן התא המעוגנים לפני השטח. בעוד שבדיקות מבוססות-פלטה אלו מספקות תמונת מצב יעילה של נקודת סיום עבור קינטיקה מוקדמת של פילמנטציה (ב-3 h), הן אינן לוכדות דינמיקת צמיחה ארוכת טווח או התנהגות מרחבית. עבור חוקרים הזקוקים למעקב רציף בזמן אמת לאורך תקופות ממושכות, ערוצי פרפוזיה מיקרופלואידיים ייעודיים או תאי דימות תאים חיים אוטומטיים עשויים להוות חלופה מתאימה יותר.
הגיאומטריה התאית קשורה באופן בסיסי ליעילות המטבולית, כאשר יחס שטח הפנים לנפח (SA/V) משמש כמניע מרכזי לרכישת רכיבי תזונה ולטרנספורט תוך-תאי. בפטריות דימורפיות ופילימנטוזיות, מעבר למורפוטייפ היפלי מוארך פועל כהסתגלות מבנית לשמירה על יחס SA/V אופטימלי. דבר זה מאפשר ספיגה מפוזרת של רכיבי תזונה לאורך דופן הפילימנט המורחבת, תוך שימור תהליכים מטבוליים המכוונים לקצה ההיפה34,35,36,37. עם זאת, מחקרנו מראה כי סקלינג מורפומטרי אינו פרופורציונלי באופן אחיד בין מצבי פלואידיות שונים ותצורות שונות של לוקוס טיפוס ההזדווגות.
מערכי הנתונים המורפומטריים שהופקו via פרוטוקול מעקב זה חושפים מגמות סקאלינג מבניות ברורות המתואמות עם הפלואידיות, כאשר שבטים הפלואידיים מראים באופן עקבי ערכים מוחלטים קטנים יותר בכל המדדים הגיאומטריים מאשר שבטים דיפלואידיים מקבילים (איור 5). בתוך הרקע הדיפלואידי, תצורת MATα/α ההומוזיגוטית הפגינה קינטיקת פילמנטציה מוגברת (אורך ונפח) ביחס לשבטי MATa/a או MATa/α בתנאי in vitro אלו. בהתחשב בכך שפילמנטציה מוגברת קשורה לעיתים קרובות ליכולת חדירה מוגברת, לא ברור מדוע בידודים קליניים של C. albicans מבודדים בעיקר כדיפלואידים הטרוזיגוטים (MATa/α). ייתכן כי בתוך מאחס בעל מערכת חיסון תקינה, המצב ההטרוזיגוטי מספק יתרון כשירות רחב יותר לקולוניזציה קומנסאלית לטווח ארוך. במילים אחרות, המאפיינים המבניים של המורפוטייפ MATa/α מותאמים לאופטימום להישרדות מול מעקב חיסוני של המאחס. לכן, מחקרים עתידיים צריכים לנצל מערכות קו-קלטורה סטנדרטיות אלו כדי להעריך באופן שיטתי את הכשירות היחסית של הומוזיגוטים מסוגי הזיווג השונים תחת לחצים סלקטיביים משתנים.
מחקרים קודמים תיעדו כי מורפולוגיית הוואקואולות, דינמיקת ביקוע-מיזוג והתרחבות מבנית ממלאים תפקידים חשובים בניהול הנפח הפנימי ולחץ התurgor של חוטים פטרייתיים המתארכים. לדוגמה, בפתוגן של מחלת הצריבה של האורז Magnaporthe oryzae, מעברים מובחנים בין היפים וגטטיביים דקים למבנים פולשניים בצורת פקעת מתואמים באופן הדוק עם שינויים בארגון הוואקואולרי38,39,40. עם זאת, הפרוטוקול הנוכחי לא ניטרה באופן ישיר את הדינמיקה הוואקואולרית במהלך הפילמנטציה של C. albicans; מעקב אחר שינויים אלו באבניקים הפנימיים ביחס לנפח המבני הכולל מהווה נתיב מרחיב דעת למחקרי המשך. בנוסף, נדרש מחקר נוסף כדי לקבוע מדוע רכיבים ספציפיים של הסקרטום שמקורם בפטרייה מניעים קינטיקה שונה של קנה מידה מורפולוגי מאשר מנחים כימיים שמקורם במארח, כגון סרום.
ניתן להתאים את שיטות השיתוף-תרבית ללא מגע המפורטות בפרוטוקול זה כדי לחקור אינטראקציות בין-מיניות ובין-ממלכתיות, כגון דינמיקת האיתות בין אוכלוסיות חיידקים אופורטוניסטיים לפטריות דימורפיות. יתרה מכך, מכיוון שפורמטים אלו של 96 ובארי ו-24 בארי הם ניתנים להרחבה (scalable), ניתן להשתמש בפלטפורמה כמותית זו לסריקות כימיות. דוגמאות לכך כוללות זיהוי של מעכבים של מולקולות קטנות או תרכובים אנטי-פטרייתיים חדשים כדי לשבש באופן סלקטיבי מסלולי פילמנטציה המעוררים על ידי הסקרטום, מבלי להשפיע ישירות על חיוניות התאים הבסיסית.
גילויים
המחברים מצהירים כי אין ניגודי אינטרסים.
תודות
עבודה זו נתמכה על ידי ה-DBT-Wellcome Trust India Alliance Intermediate Fellowship (IA/I/19/1/504294) שהוענק ל-RNP. KBSS נתמך על ידי ה-Ahmedabad University Special Research Grant (AU/SRG/SAS/20-21/07_KS_03.25) וה-SERB-Core Research Grant (URBSASE23A6/SERB/23-24/KS_02.27). האייקונים שנעשה בהם שימוש ב-איור 1 מותאמים מ-Servier Medical Art (https://smart.servier.com/), ברישיון CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), ומ-BioArt Source, NIAID, NIH.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.22 μm מסנן מזרקה PES | Millipore (Merck) | SLGPR33RS | |
| אגר-אגר | HiMedia | GRM666 | |
| גלוקוז | HiMedia | GRM016 | |
| פלטת נשיאה של Nunc עם 24 בארות הכוללת תבתי השתלה לתרבית תאים (0.4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite 96 Well Multidish, מטופל לתרבית תאים, תחתית שטוחה | Thermo Scientific | 130188 | |
| פרוטאוז פפטון | HiMedia | RM005 | |
| אורידין | סיגמא | U6381 | |
| תמצית שמרים | HiMedia | RM027 | |
| בסיס חנקן לשמרים, עם אמון סולפט, ללא חומצות אמינו | HiMedia | M878 |
מקורות
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב