פרוטוקול זה מספק שיטה הניתנת לשחזור להפקת תאי iPSCs אנושיים אנאופלואידיים נטולי אינטגרציה מתאי נוזל מי שפיר ראשוניים באמצעות אלקטרופורציה של פלסמידים אפיסומליים. הפרוטוקול מייעל את תנאי ההחדרה והתרבית להייצוב חריגות כרומוזומליות, ובכך מציע פלטפורמה מעשית ליצירת מודלים ספציפיים למחלות עבור מחקרים המשכיים ויישומים קליניים.
מאמר שיטה
יצירת תאי גזע פלוריפוטנטיים אנושיים מושריים אנאופלואידיים מתאי מי שפיר ראשוניים באמצעות אלקטורופורציה של פלסמיד אפיזומלי
במאמר זה
סיכום
תקציר
יצירת תאי גזע פלוריפוטנטיים מושריים (iPSCs) ספציפיים למטופל מתאי נוזל מי שפיר (AFCs) הנושאים אנאופלואידיות כרומוזומלית מוגדרת מספקת פלטפורמה רבת עוצמה למידול הפרעות גנטיות. עם זאת, ביסוסו של תהליך תכנות מחדש (reprogramming) אמין וניתן לשחזור עבור AFCs אנאופלואידיים נותר מאתגר מבחינה טכנית בשל חוסר היציבות הגנומית המולד ויכולת ההתרבויות המשתנה של תאים אלו. כאן, אנו מציגים שיטה מקיפה ולא-אינטגרטיבית ליצירת iPSCs אנושיים אנאופלואידיים מ-AFCs ראשוניים באמצעות אלקטרופורציה של פלסמידים אפיזומליים. פרוטוקול זה מפרט את זרימת העבודה המלאה, הכוללת הפשרה והרחבה של תאים עם אסטרטגיית הסתגלות הדרגתית של מצע הגידול, העברה אופטימלית של פלסמידים באמצעות מערכת אלקטרופורציה, תרביות עוקבות לאחר אלקטרופורציה עם שינויי מצעים המכוונים למעבר ממזנכימלי לאפיתלי (MET), ובחירה מכנית של מושבות על בסיס קריטריונים מורפולוגיים מוגדרים. אנו מתארים בנוסף הליכי תיקוף, הכוללים צביעה אימונופלואורסצנטית לסמני פלוריפוטנטיות מרכזיים, ניתוח קריוטיפ בשיטת G-banding לאישור שימור הקריוטיפ האנאופלואידי, ואימות נתיקה של הווקטור האפיזומלי באמצעות PCR. פרוטוקול זה, שאינו דורש תאי מאכיל (feeder-free) ואינו כולל אינטגרציה, מניב שורות iPSC אנאופלואידיות המתאימות למידול מחלות, סריקת תרופות ומחקרים בביולוגיה של כרומוזומים.
מבוא
הופעתה של טכנולוגיית תאי גזע פלוריפוטנטיים מושריים (iPSC) שינתה את פני הרפואה הרגנרטיבית, מידול מחלות וגילוי תרופות, בכך שאפשרה יצירה של תאים פלוריפוטנטיים ספציפיים למטופל ללא החששות האתיים הקשורים לתאי גזע עובריים אנושיים (hESCs). הבסיס המושגי של תכנות תאי מחדש מקורו בהדגמתו של Gurdon להעברת גרעין של תא סומטי1, ואחריה ביסוסם של תאי גזע עובריים2,3,4 ובסופו של דבר פיתוח הפלוריפוטנטיות המושרית5 באמצעות ביטוי אקטופי של OCT4, SOX2, KLF4, ו-c-MYC. מאז, טכנולוגיית iPSC הפכה לפלטפורמה חיונית לחקר התפתחות אנושית, הפרעות גנטיות ורפואה מותאמת אישית. שיטות תכנות מוקדמות השתמשו בווקטורים רטרו-ויראליים או לנטו-ויראליים, אך הסיכונים הקשורים לשילובם בגנום הגבילו את היישום הקליני. כתוצאה מכך, פיתוח של שיטות תכנות נטולות שילוב הפך לעדפות עבור יישום קליני. אלו כוללות שימוש בנגיף Sendai6, mRNA סינתטי7, ווקטורים אפיסומליים המבוססים על מנגנון oriP/EBNA1 (Epstein-Barr nuclear antigen-1)8 ותכנות כימי9,10,11,12 באמצעות תרכובות של מולקולות קטנות בלבד.
אנאuplואידיה (Aneuploidy) היא הגורם המוביל להפלות ולמומים מולדים בבני אדם. הבנת המנגנונים התאיים והמולקולריים העומדים בבסיס הפרעות התפתחותיות הקשורות לאנאuplואידיה מחייבת שימוש במודלים תאיים מתאימים המשחזרים נאמנה את הרקע הגנטי של מצבים אלו. תאי נוזל מי שפיר (AFCs) מהווים חומר מוצא אטרקטיבי ויעיל ליצירת iPSC ספציפיים למטופל13,14,15, במיוחד בהקשר של הפרעות גנטיות שנסמנו באופן פרינטלי16,17. שאריות של נוזל מי שפיר שהושגו במהלך בדיקת מי שפיר שגרתית מאפשרות גישה לתאים ממקור עוברי ללא צורך בביופסיית רקמה פולשנית נוספת לאחר הלידה. בהשוואה לתאים סומטיים של מבוגרים, AFCs מראים בדרך כלל יכולת רבייה גבוהה יותר, טלומרים ארוכים יותר, נטל מצטבר נמוך יותר של מוטציות סביבתיות ופלסטיות התפתחותית רבה יותר, שכל אלו מקלים על תכנות תאי מחדש (cellular reprogramming)18,19. חשוב לציין כי AFCs משמרים נאמנה את ההרכב הכרומוזומלי של העובר המתפתח, מה שהופך אותם למקור אידיאלי להקמת מודלי iPSC ספציפיים למחלה של הפרעות כרומוזומליות, כולל טריזומיה 2120, טריזומיה 1821, תסמונת טרנר ותסמונת קליינפלטר22.
פרוטוקול זה מספק מדריך מקיף ליצירת iPSCs נטולי אינטגרציה מתאי נוזל מי שפיר אנויפלואידיים באמצעות וקטורים אפיזומליים. השיטה כוללת הליכים מפורטים לבידוד תאים, תכנות מחדש (reprogramming), בחירת קלונים ואפיון. בהשוואה לשיטות תכנות מחדש אחרות נטולות אינטגרציה, מערכת הפלסמידים האפיזומלית מספקת איזון מעשי בין בטיחות גנומית, פשטות טכנית ועלות-תועלת, מה שהופך אותה למתאימה במיוחד לשימוש שגרתי במעבדה ו ליישומים של ביו-בנקים רחבי היקף. הפרוטוקול ישים הן עבור AFCs קפואים מביו-בנקים קיימים והן עבור דגימות טריות של שאריות נוזל מי שפיר שהושגו במהלך אבחנה פרינטלית שגרתית. למרות שנצפיות של יעילות תכנות מחדש אפיזומלי עבור AFCs הן נמוכות יחסית, וייתכן שיהיה הצלה כרומוזומלית ספונטנית במהלך התכנות מחדש או במהלך תרבית ממושכת, במיוחד באנויפלואידיות מסוימות, זרימת העבודה ישימה בקלות להקמת ביו-בנקים של iPSC ספציפיים למחלה, למחקרים של ביולוגיה כרומוזומלית והתפתחות אנושית מוקדמת, ולגזירה (differentiation) של תאים לסוגי תאים ספציפיים לשושלות. גישה זו מתאימה במיוחד ליצירת קווי iPSC נטולי אינטגרציה בעלי רלוונטיות קלינית מדגימות פרינטליות לצורך מידול מחלות ומחקרים מכניסטיים של הפרעות כרומוזומליות.
פרוטוקול
כל ההליכים שכללו דגימות של נוזל מי שפיר אנושי בוצעו בהתאם להצהרת הלסינקי ואושרו על ידי הוועדה לניסויים בבני אדם (IRB)/ועדת האתיקה למחקר בבני אדם של בית החולים השלישי של אוניברסיטת בקינג (פרוטוקול מס׳ M2023406). הדגימות עם האנויפלואידיות נלקחו מהביובנק של המרכז לרפואה רבייתית בבית החולים השלישי של אוניברסיטת בקינג, מאגר קליני מאושר מטעם המדינה המתמחה במשאבים התפתחותיים ורבייתיים אנושיים. דגימות אלו מורכבות מנוזל מי שפיר שנותר לאחר בדיקת מי שפיר שגרתית לאבחון פרינטלי קליני, ושהיו נזרקות ללא כן. הסכמה מדעת בכתב התקבלה מכל התורמים לפני האיסוף, ואישרה במפורש את אחסון הדגימות הנותרות בביובנק ואת השימוש בהן למחקר בהמשך. כל הדגימות עוברו באופן אנונימי קפדני כדי להגן על פרטיות המטופלים. לצורך השראת iPSCs נבחרו דגימות עם קריוטיפים אנויפלואידיים מאושרים שזוהו באמצעות אנליזת G-banding קלינית, כולל Trisomy 21 (תסמונת דאון, N = 2), Trisomy 18 (תסמונת אדוארדס, N = 1), Monosomy X (תסמונת טרנר, N = 1), ותסמונת קליינפלטר (N = 2). מידע מפורט על שורות התאים האנויפלואידיות ששימשו בתהליך התכנות מחדש מסוכם בטבלה 1.
1. הפשרה ותרבית ראשונית של תאי נוזל מי שפיר ממאגר ביולוגי
הערה: סעיף זה מפרט את הפרוצדורה הסטנדרטית לשליפה והשבה של AFCs אנויפלואידיים מהביובנק. התאים המטופחים מורחבים כדי להשיג אוכלוסיות מספיקות לצורך תכנות מחדש (reprogramming) אפיזומלי בהמשך.
- נוהל הפשרה סטנדרטי
- השוואת מצע: חממו מצע AmnioType-1 מלא ל- 37 °C לפני השימוש.
- שליפת דגימה: שלפו מהאחסון בחנקן נוזלי מבחנה קריוגנית (cryovial) המכילה כ-300,000 תאי AFC שהוקפאו בתווך הקפאת תאים. העבירו את המבחנה באופן מיידי למעבדה על קרח יבש כדי למנוע הפשרה מוקדמת.
- הפשרה מהירה: טבול את החצי התחתון של מבחנת הקריו (cryovial) ב- 37 °C בתוך מקלח מים וערבבו בעדינות. הפסיקו את תהליך ההפשרה כאשר נותר רק גביש קרח קטן ונראה לעין.
הערה: יש להימנע מהפשרה מלאה. פעולה זו מונעת מחשיפת התאים להשפעות הרעילות של DMSO חם. - דילול: תחת מנדף זרימה למינרית, העבירו את תרחיף התאים בטיפות למבחנה קונית של 15 מ"ל המכילה 4 מ"ל של מצע AmnioType-1 שחומם מראש.
- סבוב במרכזפוגה: סבב את התוחלת במהירות של 300 × ג' במשך 5 דקות בטמפרטורת החדר.
- זריעה: שאבו את הנוזל העליון והשעיו בעדינות את משקע התאים ב-2 מ"ל של מצע AmnioType-1 טרי. העבירו את התאים לפלטת 6 בארות או לבקבוק T25 מצופים מראש ב-0.1% ג'לטין, בצפיפות של 30,000–50,000 תאים/סמ"ר.².
- דגירה ראשונית: יש להניח את התאים באינקובטור לח במדרגה של 37 °C ו-5% CO22יש לבחון את הבקבוקים תחת מיקרוסקופ פאזה הפוך ביום השלישי לאחר הזריעה כדי לאשש היצמדות ראשונית של התאים.
- הרחבה ומעבר מצע גידול של תאי AFC ראשוניים
- הכנת מצע לתרבית פיברובלסטים (FC): להכנת 100 מ"ל של מצע ביתי לתרבית פיברובלסטים, ערבבו 82 מ"ל של DMEM עם תכולת גלוקוז גבוהה עם 15 מ"ל של סרום עגל עוברי (FBS). הוסיפו 1 מ"ל של 100× GlutaMAX, 1 מ"ל של 100× חומצות אמינו שאינן חיוניות (NEAA), ו-1 מ"ל של פניצילין-סטרפטומייצין (P/S). סננו את המצע דרך 0.22 µm מערכת סינון בוואקום בסביבה סטרילית.
- במהלך ההתרחבות, יש להחליף בהדרגה את המצע של ה-AFC כל 3 ימים, ממצע קליני ייעודי (AmnioType-1) למערכת סטנדרטית לתרבית פיברובלסטים (מצע FC, הכנה עצמית), וזאת כדי להבטיח יציבות מטבולית לפני האלקטרופורציה.
- בצעו מעבר הדרגתי של מצע הגידול:
- יום 3 (75% AmnioType-1: 25% FC): שאבו את מצע ה-AmnioType-1 הקיים. הוסיפו מצע מעורב המורכב מ-75% AmnioType-1 ו-25% מצע FC.
- יום 6 (50% AmnioType-1: 50% FC): יש לשאוב את המצע ולהחליפו ביחס של 1:1 של AmnioType-1 ומצע FC.
- יום 9 (25% AmnioType-1: 75% FC): יש לשאוב ולהחליף בתערובת של 25% AmnioType-1 ו-75% מצע FC.
- יום 12 (100% FC): שאיפה והחלפה למצע 100% FC.
הערה: הסתגלות הדרגתית זו מפחיתה את ההלם התאי ומונעת את ניתוקם של שיבוטים (clones) אנאופלואידיים רגישים.
- בצעו מעבר הדרגתי של מצע הגידול:
- יש לעקוב מדי יום אחר מורפולוגיית המושבות. נוזל מי שפיר מכיל אוכלוסייה הטרוגנית של תאים. תחת מיקרוסקופ ניגודיות פאזה (phase-contrast), זהו את שני הסוגים העיקריים: סוג F (דמוי פיברובלסט, בעל צורה כישפית) וסוג E (דמוי אפיתל, עגול). תת-האוכלוסייה המזנכימלית הדמוית פיברובלסט היא האופטימלית לתכנות מחדש.
הערה: יש לעקוב מקרוב אחר התאים כדי לזהות סימנים של הזדקנות (senescence).
- העברה (Passaging) של תאי AFC ראשוניים
- ברגע שהתאים מגיעים ל-80%–90% התלכדות (בדרך כלל ביומיים 10–14), יש לשאוב את המצע מהבקבוק ולשטוף פעם אחת בעדינות עם 2 מ"ל של Dulbecco's phosphate-buffered saline (DPBS) ללא Ca²⁺/מגניום²⁺.
- הוסף 1 מ"ל של תמיסת Trypsin-EDTA בריכוז 0.25% עבור באער אחת של פלטה בעלת 6 באערים, לכיסוי השכבה התאית החד-שכבתית (monolayer).
- דגירה ב- 37 °C במשך 4–5 דקות עד שהתאים ניתקים לחלוטין.
- נטרלו את ריאגנט הדיסוציאציה על ידי הוספת 3 מ"ל של מצע FC. העבירו את התו suspension למבחנה קונית של 15 מ"ל.
- סבב במ centri-fuge במהירות של 300 × ג במשך 5 דקות בטמפרטורת החדר.
- שאבו את הנוזל העליון (supernatant) ותלו את משקע התאים ב-1 מ"ל מצע FC טרי. ספרו את התאים החיים באמצעות המוציטומטר או סופר תאים אוטומטי עם בדיקת החרגת טריפאן כחול (trypan blue exclusion).
- זריעת תאים לבקבוק T25 חדש בצפיפות של 30,000–50,000 תאים/סמ"ר² במדיום מלא (בדרך כלל ביחס של 1:2 או 1:3).
- הרחב את התאים עד למעבר (passage) 3–5 לפני השימוש בהם לתכנות מחדש. אין להשתמש בתאים מעבר למעבר 6.
הערה: איכות התאים בזמן האלקטרופורציה היא הגורם המשמעותי ביותר להצלחת התכנות מחדש. השתמשו אך ורק בתאי AFC מסוג F בריאים הגדלים בשלב לוגריתמי, ללא סימני הזדקנות תאית (senescence) או מורפולוגיה לא תקינה.
2. אלקטרופורציה של פלסמידים אפיזומליים לתוך AFCs באמצעות מערכת אלקטרופורציה של תאים
- ציפוי כלי תרבית במטריצת קרומי בסיס
- הפשיר את מטריצת קרומי הבסיס (Matrigel) במהלך הלילה ב- 4 °C על קרח.
- קררו DPBS סטרילי או DMEM/F-12 על קרח. קררו מראש טיפים של פיפטות ומבחנות על קרח למשך 30 דקות.
- דללו את המטריקס של קרומי הבסיס (basement membrane matrix) ביחס של 1:200 ב-DMEM/F-12 קר מאוד, תוך שימוש בטיפים ובמבחנות קרים (למשל, 30 µL מטריצה + 6 מ"ל DMEM/F-12 עבור פלטה של 6 בארות).
- ערבבו ביסודיות אך בעדינות על ידי שאיבה ושחרור עם פיפטה 5–6 פעמים. הימנעו מהכנסת בועות אוויר.
- הוסיפו את תמיסת הציפוי המדוללת לכלי התרבית בנפח של 1 מ"ל לבאר עבור פלטה של 6 בארות.
- דגרו את הכליים המצופים ב- 37 °C למשך שעה אחת לפחות, או בטמפרטורת החדר למשך שעתיים.
- שאבו את תמיסת הציפוי מיד לפני זריעת התאים. הוסיפו 2 מ"ל מתווך FC נטול אנטיביוטיקה בתוספת 10 μM Y-27632 (מעכב ROCK) והחזר את הפלטה ל- 37 °C אינקובטור. אין לאפשר למשטח המצופה להתייבש.
הערה: ניתן לאחסן פלטות מצופות ב- 4 °C יש לאטום ב-Parafilm למשך עד 7 ימים. יש להביא לטמפרטורת החדר לפני השימוש.
- הפשרה והכנה של פלסמידי תכנות מחדש אפיזומליים
- בחירת פלסמידים: השתמש בפלסמידים האפיזומליים הבאים לצורך תכנות מחדש: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL, ו-pCXLE-EBNA1.
הערה: (אופציונלי) לצורך אופטימיזציה של תנאי האלקטרופורציה, ניתן לבצע אלקטרופורציה של pCE-GFP במקביל תחת הגדרות זהות. ביטוי GFP במהלך 48–72 השעות הראשונות מהווה אינדיקטור נוח ליעילות הטרנספקציה, בעוד שדעיכה הדרגתית של אות ה-GFP במהלך מעברים (passaging) עוקבים יכולה לשמש למעקב אחר דילול זמני של הפלסמיד. - בקרת איכות (QC): אימות ריכוז ה-DNA והטוהר שלו באמצעות ספקטרופוטומטר. יש לוודא שיחס A260/280 הוא בין 1.8 ל-1.9. יש לוודא שהריכוז של כל פלסמיד גבוה מ- 1 µg/µL וסטרילי.
הערה: חיוני להבטיח כי כל הפלסמידים הוכנו בשיטות נטולות אנדוטוקסינים. שאריות של אנדוטוקסינים עלולות להוביל לרעילות תאית גבוהה ולהפחתה משמעותית ביעילות התכנות מחדש. יש לאחסן את הפלסמידים באליקוטים קטנים בטמפרטורה של -20 °C כדי למנוע מחזורי הקפאה והפשרה חוזרים. - עבור א_ 100 µL תגובה, הכנה 5 µg מתוך תערובת הפלסמידים (יחס משקלי שווה של pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL, ו-pCXLE-EBNA1).
- בחירת פלסמידים: השתמש בפלסמידים האפיזומליים הבאים לצורך תכנות מחדש: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL, ו-pCXLE-EBNA1.
- הגדירו את פרמטרי האלקטרופורציה.
- יש להפעיל את מכשיר האלקטרופורציה. הגדירו את פרמטרי הפולס לפי התצורה האופטימלית עבור תאים ראשוניים נצמדים: מתח הפולס: 1,200 V; רוחב הפולס: 20 ms; מספר הפולסים: 2.
- מלאו את תחנת הפיפטה ב-2 מ"ל של Buffer E, תוך הבטחה שהאלקטרודה טבולה לחלוטין.
הערה: אם ניסויים ראשוניים מניבים חיות תאים הנמוכה מ-50%, שקלו לבחון סטים חלופיים של פרמטרים: 950 V / 20 ms / 2 פולסים (עדין יותר). חלופות אלו מקריבות חלק מהיעילות לטובת שיפור בשיעורי ההישרדות.
- הכנת AFCs לאלקטרופורציה
- ביום 0, ודאו כי התאים מראים מורפולוגיה בריאה ובעלת צורה של כישורים (spindle-shaped) תחת המיקרוסקופ, ללא סימנים לצפיפות יתר, להזדקנות (senescence) או לזיהום. ודאו כי התאים הגיעו ל-90% קונפלואנס (confluence) ונמצאים בשלב הצמיחה הלוגריתמי האקטיבי.
- ממש לפני הליך האלקטרופורציה, שאבו את ציפוי ה-Matrigel והחליפו אותו ב-2 מ"ל של תמיסה מחוממת מראש ללא אנטיביוטיקה מדיום FC פלוס 10 μM Y-27632 (מעכב ROCK). חמם מראש את מצע ה-FC נטול האנטיביוטיקה הזה ל- 37 °C באינקובטור למשך 20 דקות לפחות לפני קצירת התאים עבור מערכת האלקטרופורציה.
הערה: אין להוסיף פניצילין-סטרפטומייסין (P/S) או אנטיביוטיקה אחרת למנה ספציפית זו של המצע. לאחר electroporation, ממברנת התא נותרת חדירה ופגיעה באופן זמני. נוכחות של אנטיביוטיקה עלולה להוביל לעלייה באפופטוזיס. - שאבו את המצע של תאי ה-AFCs לצורך אלקטרופורציה ושטפו את השכבה החד-שכבתית (monolayer) פעם אחת בעזרת DPBS ללא Ca²⁺/מגניסיום²⁺.
- הוסף 2 מ"ל (עבור בקבוק T25) של TrypLE Select Enzyme והדגר ב- 37 °C במשך 4–5 דקות.
- יש לנטרל באמצעות 6 מ"ל של מצע גידול FC complete ולהעביר למבחנה קונית של 15 מ"ל. ספרו את התאים באמצעות סופר תאים אוטומטי.
- סבב במערך צנטריפוגה במהירות של 300 × ג' במשך 5 דקות בטמפרטורת החדר.
- הסר לחלוטין את הנוזל העליון באמצעות 200 μL קצה פיפטה, תוך הקפדה לא להפריע למשקע התאים הקטן.
- שחזר את משקע התאים בבופר R לצפיפות סופית של 1.0 × 10⁷ עד 1.4 × 10⁷ תאים/מ"ל.
הערה: יש לשאוב את העליון (supernatant) באופן מלא ככל האפשר כדי להבטיח שמשקע התאים יבש. שאריות של מצע גידול עלולות לדלל את בופר התלייה מחדש (resuspension buffer), דבר שעלול להפחית את יעילות האלקטרופורציה. עבור AFCs, השתמש ב-Buffer R (לתאים נצמדים). ודא את בחירת הבופר בהתאם להמלצות היצרן.
- בצעו אלקטרופורציה.
- מנה (Aliquot) 110 μL של תרחיף התאים (המכיל 1.0–1.4 × 10⁶ תאים) לתוך מבחנה סטרילית של מיקרוצנטריפוגה בנפח 1.5 מ"ל.
הערה: הוסף נוסף 10 μL של Buffer R עד לנפח הסופי כדי להבטיח תהיה תרחיף תאים מספיק, דבר המסייע במניעת חדירת בועות אוויר במהלך השאיבה. - הוסף 5 μg תערובת פלסמיד ל- 110 μL מנה של תאים. ערבבו באמצעות פיפוט עדין 3 פעמים.
- חבר רכיב סטרילי 100 μL הרכיבו את טיפ electroporation על הפ pipette. ודאו שהטיפ ננעל במקומו בנקישה.
- טעינה 100 μL מת сусפנזיית התאים/ה-DNA, תוך הבטחה כי אין בתוכה בועות אוויר נראות לעין.
הערה: בועות אוויר גורמות לקשת חשמלית במהלך הפולס החשמלי, דבר שמוביל למות תאים ולנזק לקצה. אם נראות בועות, החזירו את התערובת לשפופרת וחזרו על פעולת השאיבה באיטיות. - הכנס את הפפטה הטעונה בצורה אנכית לשפופרת הבאפר (Buffer) בתחנה עד להישמעו נקישה המעידה על נעילתה במקומה. ודא כי כל הפרמטרים נכונים במסך המגע, ולאחר מכן לחץ על כפתור ההפעלה (Start) כדי לבצע את רצף הדחפים.
- המתינו להופעת התצוגה על המסך "השלמה" (בדרך כלל תוך 1–2 שניות). הוצא מיד את הפ pipette מהתחנה והעבר את תרחיף התאים שעברו אלקטרופורציה ישירות לתוך 2–3 בארים של פלטה מצופה בעלת 6 בארים המכילה מצע FC ללא אנטיביוטיקה שחומם מראש + 10 μM Y-27632.
- השליכו את הטיפ המשומש באופן בטוח. חזרו על השלבים עבור בארות נוספות או חזרות לפי הצורך. הניחו את הפלטה בעלת 6 הבארות ב- 37 °C, 5% CO2₂ אינקובטור עם לחות למשך לילה.
- מנה (Aliquot) 110 μL של תרחיף התאים (המכיל 1.0–1.4 × 10⁶ תאים) לתוך מבחנה סטרילית של מיקרוצנטריפוגה בנפח 1.5 מ"ל.
3. תרבית תכנות מחדש לאחר אלקטרופורציה
הערה: סעיף זה מתאר את החלפות המצעים הרצופות והשגת תכנות מחדש מלא של AFCs ל-iPSCs. לוח הזמנים משתרע על פני כ-25 ימים מרגע האלקטרופורציה ועד לבחירת המושבות.
- כ-16–18 שעות לאחר האלקטרופורציה, שאבו בזהירות את המדיום מבלי להסיר תאי דבקים ששרדו. הוסיפו בעדינות 2 mL של מדיום FC מחומם מראש (המכיל P/S) לכל באר כדי לאפשר לתאים להתייצב ב-24 השעות הראשונות. החזירו את הפלטה לאינקובטור.
- מימים 2 עד 6, החליפו מחצית מהמדיום מדי יום שני: שאבו בזהירות 1 mL של מדיום משומש והוסיפו 1 mL של מדיום TeSR-E8 (E8) טרי.
הערה: החלפה חלקית של המדיום משמרת גורמים אוטוקריניים מופרשים התומכים באירועי תכנות מחדש מוקדמים. שאבו באיטיות מקצה הבאר כדי למזער את ההפרעה לתאים במעבר שדבקים באופן רופף. - ביום 7, בצעו החלפה מלאה של המדיום ב-2 mL של E8 מדי יום שני.
- עקבו אחר שינויים מורפולוגיים תחת המיקרוסקופ מדי יום. צפויות צבירים דמויי-cobblestone שעברו תכנות מחדש חלקי להופיע סביב יום 10–14.
הערה: (אופציונלי) ניתן להוסיף לתרביות 25–100 μM sodium butyrate בין ימים 9–15 אם היווצרות המושבות דלה23. - החליפו את מדיום ה-E8 מדי יום החל מיום 15 ואילך.
- החל מיום 18 בקירוב, בדקו את הבארים מדי יום כדי לזהות הופעה של מושבות iPSC אמיתיות. ציר זמן מלא של תהליך התכנות מחדש, מיום 0 של האלקטרופורציה ועד לבחירת המושבות, מופיע ב-Table 2.
4. בליטה מכנית של מושבות iPSC והרחבה של שורות iPSC מבוססות
הערה: הבדילה בין מושבות iPSC אמיתיות לבין תאים שעברו תכנות מחדש או תאים שלא עברו תכנות מחדש על סמך הקריטריונים המורפולוגיים להלן. זהה מושבות "אידיאליות" על סמך סימני ההיכר המורפולוגיים הבאים: (1) הגדרת הגבול: חפש קצה חד, חלק ומעגלי המפריד בבירור בין המושבה לתאי נוזל השליה המקיפים אותה; (2) צפיפות תאית: ודא שהתאים בתוך המושבה קטנים, דחוסים מאוד, ובעלי יחס גרעין-ציטופלזמה גבוה עם גרעינונים בולטים; (3) רפרקטיביות: מושבות באיכות גבוהה נראות בהירות ובעלות רפרקטיביות גבוהה תחת מיקרוסקופ ניגודיות פאזה; (4) שטוחיות: המושבה צריכה לגדול כגיליון דו-ממדי שטוח ולא כ"גוש" תלת-ממדי. מושבות שעברו תכנות מחדש חלקי מופיעות לעיתים קרובות מוקדם יותר ממושבות iPSC אמיתיות ונוטות להיות גדולות, עבות ותלת-ממדיות יותר. הן יעברו דיפרנציאציה ספונטנית בעת הבחירה והמעבר (passaging). אין לבחור מושבות המראות "ואקואולות," קצוות משוננים או סימנים לדיפרנציאציה מרכזית.
- בחירה והעברה מכנית של מושבות iPSC
- הכינו פלטת 24 בארות מצופה ב-Matrigel עם 0.5 mL לכל באר של מצע E8 מועשר ב-10 μM Y-27632. שמרו בטמפרטורה של 37 °C עד לשימוש.
- הניחו את פלטת התרבית תחת מיקרוסקופ סטריאו בתוך תא בטיחות ביולוגית Class II. סטריליזרו את העדשה והבמה של המיקרוסקופ ב-70% אתנול לפני קירוב הפלטה לשדה הראייה.
- זהו מושבות המציגות מורפולוגיה תקינה (שטוחות, דחוסות, עם גבולות ברורים).
- בעזרת טיפ של פיפט סטרילי בנפח 10 μL המוחזק בזווית נמוכה (כ-30° מהמישור האופקי), חרצו בעדינות מסביב להיקף המושבה הנבחרת כדי להגדיר את גבולה. חתכו את המושבה לכ-3 פרגמנטים על ידי ביצוע חתכים מקבילים לאורך הקוטר שלה. השתמשו באותו טיפ של הפיפט כדי לגרד בעדינות ולהרים את פרגמנטי המושבה מהמצע, והעבירו את הפרגמנטים לבאר אחת בפלטת 24 הבארות שהוכנה.
- חזרו על השלבים עבור כל מושבה, והניחו את הפרגמנטים בבארות נפרדות.
- הניחו את פלטת 24 הבארות באינקובטור. השאירו ללא הפרעה למשך 24 h כדי לאפשר היצמדות של הפרגמנטים.
- החל מהיום השני לאחר הבחירה, החליפו את המצע מדי יום במצע E8 ללא Y-27632.
- כאשר המושבות שנבחרו מתרחבות ל-70–80% התמזגות (confluence), בדרך כלל לאחר 3–6 ימים, בצעו מעבר (passage) באמצעות Accutase.
- מעבר והרחבה של שורות iPSC מבוססות
- שאבו את המצע מהבאר המכילה את ה-iPSC. הוסיפו Accutase כך שיכסה את השכבה החד-שכבתית (monolayer). דגרו בטמפרטורת החדר למשך 2–6 min. עקבו אחר קצוות המושבה תחת המיקרוסקופ; התאים צריכים להתחיל להיפרד, ומרווחים צריכים להופיע ביניהם.
- שאבו את תמיסת ה-Accutase לחלוטין. הוסיפו 1 mL של מצע E8 + 10 μM Y-27632. העבירו בעדינות את המצע בפיפט על פני שטח המושבה 5–8 פעמים באמצעות פיפט P1000 כדי לפרק את המושבות לצבירים קטנים של 2–8 תאים.
הערה: הימנעו מפירוק יתר של ה-iPSCs, דבר המפחית משמעותית את סיכויי ההישרדות. המטרה היא לקבל צבירים קטנים אחידים, ולא תרחיף של תאים בודדים. - העבירו את הצבירים עם 1 mL של מצע E8 + 10 μM Y-27632 באופן שווה לפלטת 12 בארות מצופה ב-matrigel טרי. הניחו את הפלטה באינקובטור.
- החליפו את המצע מדי יום במצע E8 (ללא Y-27632 לאחר היום הראשון).
- המשיכו בביצוע מעברים בכל 3–4 ימים ביחס פיצול של 1:2 עד 1:5, בהתאם לרמת ההתמזגות.
- תרבתו את שורות ה-iPSC למשך מינימום של 10 מעברים לפני יישומים המשכיים כדי להבטיח פינוי אפיזומלי יציב.
5. אפיון של קווי iPSC אנאופלואידיים
הערה: בצע את בדיקות התיקוף הבאות על קווי iPSC מבוססים (מעבר 10 ומעלה) כדי לאשר פלוריפוטנטיות, שלמות הקריוטיפ ופינוי של הווקטור האפיזומלי.
- אשש את ביטוי סמני הפלוריפוטנציות.
- יש לאמת את הביטוי של סמני פלוריפוטנציה מרכזיים באמצעות צביעה אימונופלואורסצנטית, ציטומטריית זרימה, או שניהם. פרופילי הסמנים הצפויים מסוכמים ב- טבלה 3.
הערה: למרות שצביעה אימונופלואורסצנטית מספקת אישור ראשוני לפלוריפוטנטיות, מומלץ לבצע RT-qPCR ו-RNA-seq להערכה רחבה יותר של ביטוי גנים הקשורים לפלוריפוטנטיות, כולל LIN28A, DPPA4 ו-KLF4.
- יש לאמת את הביטוי של סמני פלוריפוטנציה מרכזיים באמצעות צביעה אימונופלואורסצנטית, ציטומטריית זרימה, או שניהם. פרופילי הסמנים הצפויים מסוכמים ב- טבלה 3.
- ניתוח קריוטיפ באמצעות גבנדיינג (G-banding)
קריטי: תכנות מחדש (Reprogramming) עלול להוביל להצלה של טריסומיה (trisomy rescue) בתת-קבוצה של שיבוטים. יש לסרוק מספר שיבוטים (5–10 לכל שורה הורית) כדי לזהות נגזרות שבהן נשמרה האנויפלואידיה ונגזרות שהוצלו לאאופלואידיה (euploid-rescued).- יש לקצור iPSCs במעברים 10–15 כאשר רמת ההצפיפות (confluence) היא 70%–80%.
- הוסף 0.1 μg/mL קולסמיד (colcemid) למצע התרבית. הדגרו ב- 37 °C במשך 2–4 שעות כדי לעצור את התאים בשלב המטאפאזה.
הערה: Colcemid הוא רעל מיטוטי. יש לטפל בחומר באמצעות כפפות בתוך קבינה לבטיחות ביולוגית. יש להשליך פסולת המכילה Colcemid כחומר מסוכן. - הפרידו את התאים לתליה של תאים בודדים (single-cell suspension) באמצעות Accutase או חומר שווה ערך. סובבו בצנטריפוגה במהירות של 300 × ג' למשך 5 דקות.
- שחזר את המשקע ב-5 מ"ל של תמיסה היפוטונית שחוממה מראש (0.075 M אשלגן כלוריד). הדגר ב- 37 °C למשך 15–20 דקות.
- הוסיפו למבחנה 1 מ"ל של מקבע שהוכן טרי (מתנול: חומצה אצטית, ביחס נפחי של 3: 1) תוך כדי ערבוב עדין. סבבו בצנטריפוגה במהירות של 300 × ג למשך 10 דקות.
- שאבו את הנוזל העליון (supernatant). הוסיפו 5 מ"ל של מקבע (fixative) טרי. ערבבו בעדינות והדגירו למשך 10 דקות. סובבו שוב בצנטריפוגה.
- חזור על שלב הקיבוע (שלב 6) פעם נוספת, לסך הכל 3 קיבועים.
- לאחר הסבב האחרון של סרכזגציה, השביו מחדש את המשקע ב-0.5–1 מ"ל של מקבע טרי כדי להגיע לצפיפות תאים מתאימה.
- טפטפו 2–3 טיפות של תרחיף התאים על slides זכוכית נקיים ורטובים מגובה של כ-30 ס"מ. ייבשו באוויר.
- חמם את השקופיות בטמפרטורה של 80 °C למשך שעתיים או 65 °C המתנה למשך לילה לצורך יישון הכרומוזומים.
- בצעו צביעת פסי G (G-banding): טפלו בلامשטחים בתמיסת טריפסין 0.025% למשך 30–60 שניות, שטפו, וצבעו בתמיסת גימזה (Giemsa) 5% למשך 1–5 דקות.
- נתחו לפחות 20 מטאפזות מפוזרות היטב לכל שיבט באמצעות מיקרוסקופ שדה בהיר עם עדשת שמן (100× מטרה).
- תעד את הקריוטייפ באמצעות נומנקלטורת ISCN (לדוגמה, 47,XX,+21 עבור טריזומיה 21 בנקבה; 45,X עבור תסמונת טרנר).
הערה: קריוטיפ בשיטת G-banding מזהה חריגות כרומוזומליות משמעותיות אך רזולוציית שלו מוגבלת. מומלץ להשתמש בבדיקות משלימות, כגון ניתוח וריאציית מספר עותקים (CNV), ריצוף אקסום מלא (WES) או ריצוף גנום מלא (WGS), כדי לזהות שינויים גנטיים תת-מיקרוסקופיים ולאשר את השלמות הגנומית של ה-iPSC.
- אימות סילוק וקטור אפיסומלי באמצעות PCR.
הערה: שלב זה מאשר כי כל הפלסמידים האפיזומליים אבדו מקו ה-iPSC, באמצעות הגברה של רצפים ספציפיים לווקטור בשיטת PCR.- הפיקו DNA גנומי מתאי iPSCs (מעבר ≥ 10) וממבקר AFCs לא שעברו טרנספקציה, באמצעות ערכה סטנדרטית להפקה מבוססת עמודה.
- הקם/י 25 μL תגובת PCR. בצע PCR באמצעות זוגות הפריימרים Orip/GAPDH תחת תנאי המחזור (94 °C במשך 2 דקות; ולאחריהם 35 מחזורים של 94 °C למשך 30 שניות, 55 °C במשך 30 שניות, ו- 72 °C למשך 30 שניות; הארכה סופית ב- 72 °C (במשך 5 דקות). יש לכלול ביקורת חיובית (תבנית פלסמיד) וביקורת שלילית (DNA גנומי מתאים שאינם שעברו טרנספקציה) בכל הרצת PCR.
- יש להפריד את תוצרי ה-PCR על ג'ל אגרוז בריכוז של 2% עם סולם DNA מתאים.
- פירוש התוצאות: שורות iPSC שבהן הפיסומים הוסרו אינן מראות פסי הגברה בגודל 544 bp. הבקרה החיובית חייבת להראות פסים בגודל הצפוי. הבקרה השלילית חייבת להיות ללא פסים.
- גילוי מייקופלסמה באמצעות PCR
- אספו 0.5–1 מ"ל של עלי-נוזל התרבית (culture supernatant) מתרביות iPSC לאחר דגירה של 24 שעות לפחות, לפני החלפת המצע, וסובבו בצנטריפוגה במהירות של 12,000 × ג במשך 5 דקות כדי להסיר שיירי תאים.
- השתמש בנוזל העל המזולל כתבנית ל-PCR באמצעות ערכת PCR Mycoplasma Detection Kit, בהתאם להוראות היצרן.
- הפרידו את תוצרי ה-PCR באמצעות אלקטרופורזה על ג'ל אגרוז בריכוז של 2%. המשיכו בניסויים הבאים רק אם אושר כי תרביות ה-iPSC נקיות ממייקופלסמה.
הערה: אם תאי AFC הוריים אינם מתקבלים מביובנק מאושר עם תיעוד של סטריליות ובדיקות למייקופלסמה, מומלץ מאוד לבצע סריקת מייקופלסמה שגרתית לפני התכנות מחדש (reprogramming) כשלב ראשוני של בקרת איכות.
- בדיקת פוטנציאל גמישות להבחנה לשלושה שוכות (אופציונלי)
- אשר in vitro יכולת גמישות (differentiation capacity) באמצעות גביעה מופנית לשלושה שוכות (directed trilineage differentiation) או יצירת גופי עובר (EB), ולאחריהם ניתוח של סמנים ספציפיים לשכבות העובר. לחלופין, בצע/י in vivo היווצרות טרטומה בעכברים עם חסר חיסוני לצורך תיקוף של pluripotency בתור הgold-standard.
הערה: לפרוטוקולים מפורטים של בדיקת טרטומה או בידול מכוון, עיינו בנהלי העבודה הסטנדרטיים (SOP) שפורסמו24בדיקות אלו מומלצות, אך ניתן להשמיטן אם קיים תיעוד מקיף in vitro ניתונים של אנליזת סמנים ובידול תפקודי סופקו.
- אשר in vitro יכולת גמישות (differentiation capacity) באמצעות גביעה מופנית לשלושה שוכות (directed trilineage differentiation) או יצירת גופי עובר (EB), ולאחריהם ניתוח של סמנים ספציפיים לשכבות העובר. לחלופין, בצע/י in vivo היווצרות טרטומה בעכברים עם חסר חיסוני לצורך תיקוף של pluripotency בתור הgold-standard.
6. הפקה ואימות של שיבוטים מתא בודד
הערה: כדי להבטיח שכל קו iPSC מקורו בתא בודד, מומלץ לבצע תהליך אימות קלונאלי דו-שלבי. לאחר בידוד מכני והרחבה, מומלץ לבצע זריעה שנייה של קלון תא בודד לאחר אישור הקריוטיפ. אימות העובדה שכל קו iPSC מקורו בתא בודד הוא דרישה קריטית ליצירת iPSC. הדבר מבטיח את הסרת הפסיפס הסומטי ההורי ומאשר שחתימת האנויפלואידיות האבחנתית היא אחידה בכל האוכלוסייה.
- זריעת תא בודד
- פרקו ותלו את מושבות ה-iPSC שעברו אישור קריוטייפ לתליה של תאים בודדים באמצעות Accutase למשך 2–6 min ב-37 °C.
- השתמשו במדיום E8 המועשר ב-10 µM Y-27632 כדי למקסם את הישרדות התאים הבודדים המבודדים. בצעו הפקדה של תאים בודדים באמצעות אחת מהשיטות הבאות:
- דילול מגביל (Limiting dilution): דללו את התליה לריכוז של 0.5–1 תא ל-100 µL. זרעו 100 µL לכל באער של פלטת 96 באערים מצופה ב-Matrigel.
- מיון תאים מופעל פלואורסצנציה (FACS): מיינו תאים בודדים חיוניים ישירות לבאערים של פלטת 96 באערים מצופה ב-Matrigel.
- אימות מונוקלונליות והתרחבות
- בדיקה ראשונית: 24–48 שעות לאחר הזריעה, השתמשו במיקרוסקופ ניגודיות פאזה (phase-contrast) ברזולוציה גבוהה כדי לבחון כל באער. סמנו רק את אותם באערים המכילים אירוע היצמדות בודד ומוגדר בבירור. הסירו באערים עם מקבצים מרובים או ללא תאים.
- צמיחת מושבות: תחזקו את התאים הבודדים שזוהו במדיום E8 ללא מעכב ROCK לאחר 24 השעות הראשונות.
- התרחבות רצפית: ברגע שמושבה שנוצרה מתא בודד מגיעה ל-70% התמזגות (confluence), הרחיבו את התאים באופן רצפי מפלטת 96 באערים לפלטות של 24 באערים, 12 באערים, ולבסוף 6 באערים.
הערה: עבור מחקרים בתרפיה תאית, נדרשת לעיתים קרובות ראיה צילומית של שלב התא הבודד (יום 0 או יום 1) כחלק מתעודת האנליזה (Certificate of Analysis) כדי להוכיח את הסטטוס של טוהר השושלת של קווי ה-iPSC.
סיבות פוטנציאליות לתכנות מחדש (reprogramming) לא מוצלח, היווצרות מושבות סובאופטימלית ואתגרים במהלך ביסוס קלוני iPSC מסוכמים יחד עם פתרונות מעשיים ב-טבלה 4.
תוצאות
התקדמות מורפולוגית במהלך תכנות מחדש
תאי נוזל שעור ראשוניים הראו מורפולוגיות הטרוגניות, כולל תאי E-type ותאי F-type (איור 1A). יש להרבות תאי F-type ולהשתמש בהם לתכנות מחדש. בעקבות אלקטרופורציה של תאי AFC עם פלסמידים אפיזומליים של Epi5, נצפית רצף אופייני של שינויים מורפולוגיים. ביום 0, תאי AFC מציגים מורפולוגיה טיפוסית דמוית פיברובלסט בצורת כישוף. ביומים 3–5, מופיעה העדות המורפולוגית הראשונה לתכנות מחדש: מקבצים קטנים של תאים דמויי אפיתל מופיעים בתוך אוכלוסיית התאים המזנכימליים, מה שמסמן את תחילת ה-MET. תאים מעבריים אלו קטנים ודחוסים יותר מהתאים המזנכימליים שסביבם. בין ימים 7–10, מקבצי התאים מראים דחיסות מוגברת, המשקפת מעבר למורפולוגיה אפיתלית אופיינית. מושבות iPSC שעברו תכנות מחדש מלא מתחילות להופיע בין ימים 14–16. ביומים 21–25, מושבות iPSC בוגרות מוכנות לברירה (איור 1B). הפלסמיד pCE-GFP הועבר באלקטרופורציה במקביל לפלסמידי התכנות מחדש כדי להעריך את יעילות העברת ה-DNA (איור 1C). ניתן להשתמש בביטוי GFP כאינדיקטור ויזואלי לאלקטרופורציה מוצלחת ולהתמדת הפלסמיד במהלך התרבית המוקדמת.
הבחנה בין מושבות iPSC שעברו תכנות מחדש מלא לבין תכנות מחדש חלקי
מיומנות קריטית בפרוטוקול זה היא היכולת להבחין בין מושבות iPSC שעברו תכנות מחדש מלא לבין מושבות שעברו תכנות מחדש חלקי, שכן בחירה באחרונות תוביל לכישלון בהקמה של שורות iPSC יציבות. טבלה 5 מסכמת את ההבדלים המורפולוגיים והמולקולריים העיקריים בין שני סוגי המושבות הללו.
איור 2 מציג השוואה זה לצד זה. תאים שעברו תכנות מחדש חלקי יוצרים לעיתים קרובות אגרגטים רופפים שחסרים גבולות ברורים. צבירים אלו עשויים להראות מידה מסוימת של דחיסות, אך בדרך כלל שומרים על מאפיינים מזנכימליים או מראים שוליים לא סדירים ו"מטושטשים", המעידים על איפסול אפיגנטי לא מלא (איור 2, שמאל). במהלך תכנות מחדש ראשוני, מושבות בעלות מורפולוגיה טיפוסית דמוית-iPSC עשויות להכיל אזורים של דיפרנציאציה ספונטנית (איור 2, מרכז). ניתן לבחור באופן ידני אזורים לא מובחנים המוגדרים מורפולוגית ולבודד אותם להתרחבות נוספת. קווי iPSC שהוקמו בהצלחה צריכים להפגין מורפולוגיה פלוריפוטנטית דחוסה קלאסית, המאופיינת ביחס גרעין-ציטופלזמה גבוה, גרעינונים בולטים וחיבורים תאיים הדוקים ביותר (איור 2, ימין).
בדרך כלל, נצפו עשרות עד מאות מושבות לאחר תכנות מחדש באמצעות אלקטרופורציה של 1–2 × 10⁶ AFCs. מכל קו AFC נבחרו ידנית 24 מושבות בודדות, מה שהביא ל-1-9 שיבוטי iPSC הניתנים להתרחבות (טבלה 1).
תיקוף של סממני פלוריפוטנטיות
קווי iPSC מבוססים צריכים להביע את מלוא המשלים של סמני פלוריפוטנטיות. איור 3 מציג תוצאות מייצגות של אימונופלואורסצנציה ו-FACS עבור קו iPSC אנאuploid עם תסמונת קליינפלטר (47,XXY) במעבר 15. סמנים גרעיניים OCT4, NANOG ו-SOX2 מראים ביטוי אחיד ברחבי המושבה, בעוד שסמן פני השטח של התא TRA-1-60 מציג צביעת ממברנה אופיינית דמוית טבעת (איור 3A). ניתוח FACS כימת עוד יותר רמות ביטוי גבוהות של SSEA-4 ו-TRA-1-81 (איור 3B). דפוסי ביטוי אלו עקביים עם הקריטריונים המבוססים לתאי גזע פלוריפוטנטיים אמיתיים, ומאשרים כי aneuploidy אינו פוגע ברכישת הפלוריפוטנטיות ברמת הסמנים.
אישור קריוטייפ של iPSCs עם אנאויפלואידיה
ניתוח קריוטייפ בשיטת G-banding הוא חיוני עבור כל שיבוט של iPSC המופק מתאי מי שפיר עם אנויפלואידיות. איור 4 מציג תוצאות קריוטייפ מייצגות.
תוצאת קריוטיפ חיובית היא זיהוי של שיבוטי iPSC בעלי הקריוטיפ האנופלואידי הצפוי, אשר אושר בלפחות 20 פריסות מטאפאזה. תוצאה שלילית היא מציאת שיבוטים אופלואידיים בלבד (46,XX או 46,XY) ממקור אנופלואידי, מה שמאשר את הצלחת הפרוטוקול ביצירת iPSCs, אך מעיד על הצלה מלאה של הטריזומיה ומחייב חזרה על הגזירה הקלונאלית של תא בודד או על התכנות מחדש כדי לקבל שורות שבהן נשמר מצב האנופלואידיות.
אימות פינוי של וקטור אפיזומלי
וקטורים אפיזומליים מדללים בהדרגה במהלך מעברים, והופכים לבלתי ניתנים לגילוי לאחר תרבית ממושכת ברוב קווי ה-iPSC המבוססים8,25,26,27סילוק וקטורים חיצוניים הוא סימן היכר של גישת התכנות מחדש הבלתי-משתלבת. תוצאה חיובית (סילוק אפיזומלי מאושר) היא היעדר פסי הגברה של oriP (בגודל 544 bp) במעבר 10 או מאוחר יותר. תוצאה שלילית (סילוק חלקי) מראה פסים עמידים במעבר 10, אשר בדרך כלל נפתרים עד מעבר 15–20 עם המשך תהליך המעברים. הגברת GAPDH שימשה כביקורת פנימית לאישור שלמות ה-DNA הגנומי והצלחת ההגברה ב-PCR (איור 5A). מקרים נדירים של וקטורים אפיזומליים עמידים מעבר למעבר 20 עשויים להעיד על אירועי אינטגרציה גנומית, מה שמעיד כי יש להשליך את השיבט. כדי להבטיח את הבטיחות הביולוגית ואת התקינות הניסויית של קווי ה-iPSC האנויפלואידיים שנוצרו, מומלץ מאוד לבצע סריקה מבוססת PCR לזיהוי זיהום במיקופלסמה. יש לאסוף ולנתח על-נוזלי תרבית תאים מכל קווי המונוקלונאל המתוחזקים. באמצעות PCR באמצעות פריימרים ספציפיים למיקופלסמה. יש להשליך באופן מיידי כל זן מונוקלונלי שנבדק והניב תוצאה חיובית (למשל, קלון #7 ו-#9) (איור 5B).
In vitro פוטנציאל диффереנציאציה לשלושה שוכות
אישור של פוטנציאל גמישות להבחנה לשלושת השכבות (trilineage differentiation) הוא קריטריון נדרש לתיקוף של קווי iPSC. איור 6 מציג תוצאות מייצגות של הבחנה של גופי עובר (embryoid body) in vitro מקו iPSC עם טריסומיה 18. ביטוי של PAX6 (אקטודרמה), T-Brachyury ו-TBX6 (מזודרמה), GATA6 ו-SOX17 (אנדודרמה) מאשר את יכולתם של iPSCs אנאuploid להבחין לשלוש שכבות העובר (איור 6).
השגה ואימות של שושלות תאים מקורם בתא בודד (Single-cell clonal derivation)
כדי לבסס מודלים של iPSC אנאuploidים בעלי נאמנות גבוהה, יושם תהליך עבודה של גזירה ואימות של תא בודד בשני סבבים כדי למזער את ההטרוגניות התאית ולשלול כימריזם פוטנציאלי. לאחר הרחבה ראשונית, קלונים בעלי קריוטיפ תקין הופרדו ונזרעו מחדש בצפיפות של תא בודד. בדיקה מיקרוסקופית לאחר 24–48 h אישרה את קיומם של אירועי היצמדות שנגזרו מתא בודד, אשר הורחבו לאחר מכן כדי לבסס שורות מונוקלונליות מאומתות (איור 7A).
תוצאה חיובית היא הרחבה מוצלחת של מושבה בודדת מתא בודד בלוחית של 96 בארות, אשר אושרה באמצעות ניטור מיקרוסקופי יומי שהראה מושבה אחת בלבד לבאר (איור 7B). לאחר ההרחבה, אישור חוזר של הקריוטיפ ומסמני פלוריפוטנטיות צריך להתאים לכלון המקורי. תוצאה שלילית היא תצפית של מספר מושבות לבאר או כישלון של תאים בודדים לשרוד ולהתרחב.
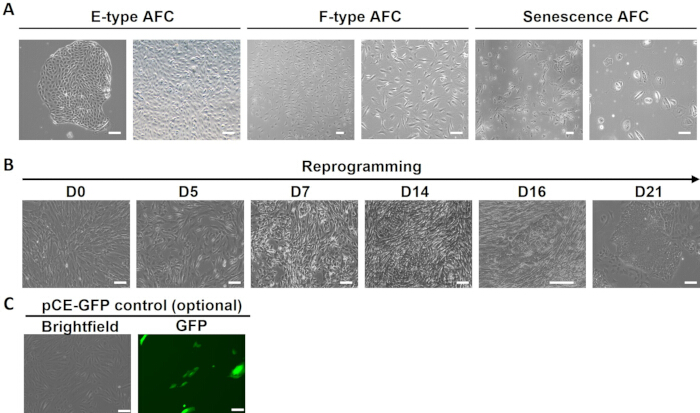
איור 1: התקדמות מורפולוגית של תכנות מחדש של תאי נוזל מי שפיר באמצעות פלסמידים אפיזומליים Epi5. תמונות מייצגות המראות את המורפולוגיה של סוגים שונים של AFC ראשוניים ואת הליך התכנות מחדש בנקודות זמן מרכזיות. (A) תמונות בניגודיות פאזה המראות את שלוש המורפולוגיות הראשוניות של חומר המוצא: דמויי אפיתל (E-type), דמויי פיברובלסט (F-type), ותאי AFC מזדקנים (senescent). (B) תמונות מייצגות של מהלך הזמן של תהליך התכנות מחדש מיום 0 עד יום 21, המראות את המעבר מ-AFC ראשוניים להופעת מושבות דמויות iPSC דחוסות. יום 0: AF-MSCs לפני אלקטרופורציה, המציגים מורפולוגיה מזנכימלית טיפוסית בצורת כישוף. ימים 3–5: שלב MET מוקדם; תאים דמויי אפיתל מופיעים בצבירים בתוך תאים מזנכימליים שנותרו. ימים 7–10: תאי תכנות מחדש ראשוניים מופיעים. ימים 14–16: מושבות תכנות מחדש ראשוניות (מושבות MET) עם מורפולוגיה דמוית ריצוף אך גבולות לא מוגדרים היטב. ימים 21–25: מושבות iPSC שעברו תכנות מחדש מלא מופיעות עם תאים שטוחים ודחוסים, גבולות ברורים, יחס גרעין-ציטופלזמה גבוה וגרעינונים בולטים. (C) תמונות פלואורסצנציה מייצגות המראות ביטוי GFP לאחר אלקטרופורציה של AFC עם pCE-GFP. סרגל קנה מידה מייצג 100 µm. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
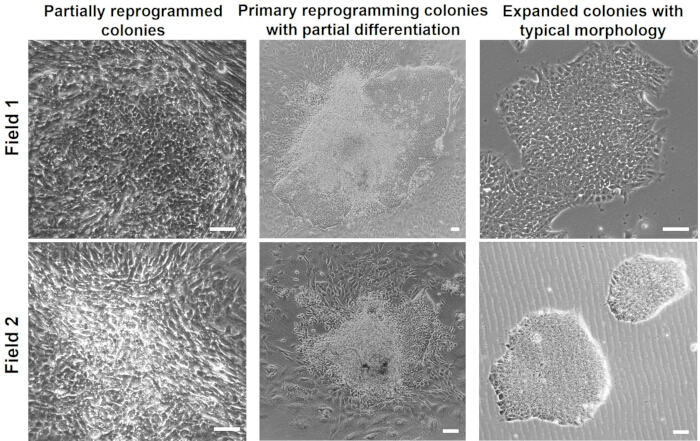
איור 2: השוואה בין מושבות שעברו תכנות מחדש מלא לבין מושבות שעברו תכנות מחדש חלקי. שמאל: מושבות שעברו תכנות מחדש חלקי המציגות אגרגטים רפויים וגבולות לא סדירים. מרכז: מושבות תכנות מחדש ראשוניות עם אזורים טיפוסיים דמויי iPSC הנלווים לאזורים של דיפרנציאציה ספונטנית. ימין: מושבות שהתרחבו עם מורפולוגיה טיפוסית של iPSC. פסי קנה מידה, 100 µm. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
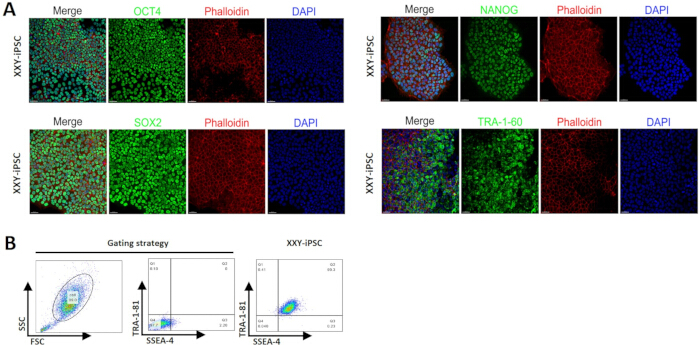
איור 3: ניתוח אימונופלואורסצנציה של סמני פלוריפוטנציה ב-iPSCs אנאuploid. (A>) צביעת אימונופלואורסצנציה של XXY-iPSCs לסמני פלוריפוטנציה מרכזיים, הכוללים OCT4, SOX2, NANOG ו-TRA-1-60 (בירוק). מבנה השלד התאי מוצג באמצעות Phalloidin (באדום) וגרעיני התאים באמצעות DAPI (בכחול). סרגל קנה מידה מייצג 50 µm. (B>) ניתוח ציטומטריה של זרימה (FACS) המראה את אסטרטגיית ה-gating ואת הביטוי הכמותי של SSEA-4 ו-TRA-1-81 בשורת ה-XXY-iPSC. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
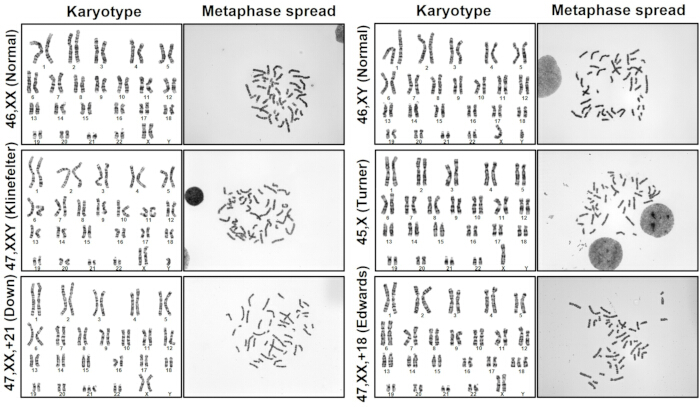
איור 4: ניתוח קריוטיפ בשיטת G-banding של שורות iPSC אנאuploid. ניתוח קריוטיפ בשיטת G-banding ופריסות מטאפאזה תואמות המאשרות את התחזוקה היציבה של הפרעות כרומוזומליות בשורות שנוצרו, הכוללות 46,XX (נקבה תקינה), 46,XY (זכר תקין), 47,XXY (תסמונת קליינפלטר), 45,X (תסמונת טרנר), 47,XX,+21 (תסמונת דאון), ו-47,XX,+18 (תסמונת אדוארדס). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
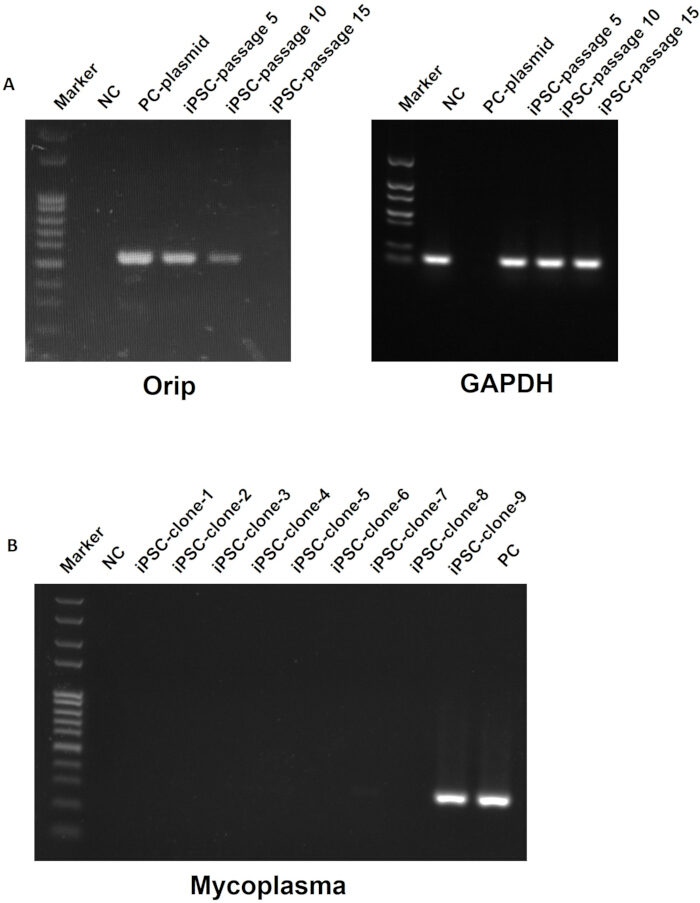
איור 5: זיהוי מבוסס PCR של פינוי וקטור אפיסומלי ובדיקת מייקופלסמה בקווי iPSC אנאופלואידיים. אלקטרופורזה של ג'ל אגרוז (2%) של תוצרי PCR שהוגברו באמצעות סט פריימרים של oriP/GAPDH או מייקופלסמה. (A) פינוי וקטור מלא בשיבוט iPSC במעברים שונים. (B) זיהוי מבוסס PCR של זיהום מייקופלסמה ב-9 שיבוטים עצמאיים. שיבוט מס' 7 (חלש) ומס' 9 (חזק) מראים זיהום מייקופלסמה ויש להשליכם. PC, ביקורת חיובית; NC, ביקורת שלילית. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
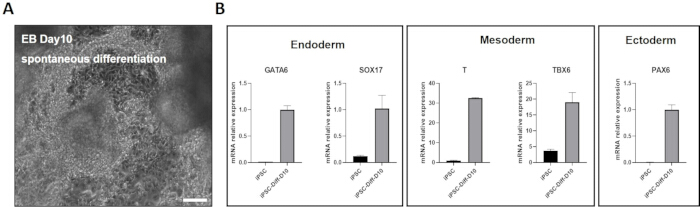
איור 6: התמיינות תלת-שורה In vitro של iPSCs אנאuplואידיים. (A) מיקרוגרף בניגודיות פאזה המדגים את המורפולוגיה של גופי Embryoid (EB) ביום 10 במהלך תהליך ההתמיינות הספונטנית לאחר היצמדות למשטח מצופה בג'לטין. סרגל קנה מידה מייצג 100 µm. (B) ניתוח RT-qPCR המכמת את היציאה ממצב הפלוריפוטנציות ואת מחויבות השורה העוקבת. התוצאות מראות עלייה משמעותית בביטוי היחסי של mRNA של סממנים אופייניים לשלוש שכבות הנבט העוברי ביום 10 בהשוואה ל-iPSCs לא מומיינים: אנדודרם (GATA6, SOX17), מזודרם (T, TBX6), ואקטודרם (PAX6). הנתונים מוצגים כממוצע ± SD. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
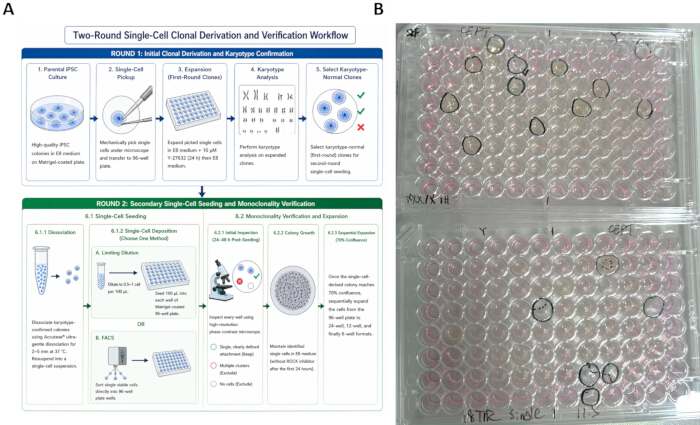
איור 7תהליך עבודה להשגת שבטים מתא בודד עבור שורות iPSC אנאויפלואידיות. (A) תרשים זרימה הממחיש את סבב 1 (גזירה ראשונית ואישור קריוטיפ) ואת סבב 2 (זריעה משנית של תא בודד) דרך תהליך אימות קלונאלי (דילול מגביל או FACS להבטחת מונוקלונליות). שלב 1: בידוד מכני של מושבות iPSC בודדות, הרחבה לפלטות של 6 בארות ואימות קריוטיפ. שלב 2: עבור קלונים עם קריוטיפ מאושר שאינו אנאופלואידי, זריעה של תא בודד באמצעות דילול מגביל או FACS לפלטות של 96 בארות כדי להבטיח מקור קלונאלי מתא בודד. רק בארות עם צמיחה של מושבה בודדת מורחבות. (B) תמונה מייצגת של פלטות בעלות 96 בארות במהלך שלב ההתרחבות הקלונאלית, כאשר מושבות שזוהו בהצלחה כנגזרות מתא בודד מסומנות במעגל לצורך התרחבות רצפית. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
| רקע גנטי | קריוטיפ | מספר קווי AFC שנבחנו | מספר מושבות בודדות שנבחרו לאחר תכנות מחדש | מספר שיבוטי iPSC שהוקמו בהצלחה |
| טריסומיה 21 | 47,XX,+21 | 2 | 48 | 9 |
| טריסומיה 18 | 47,XX,+18 | 1 | 24 | 8 |
| תסמונת קליינפלטר | 47,XXY | 2 | 48 | 6 |
| מונוסומיה X | 45,X | 1 | 24 | 1 |
| נקבה תקינה | 46,XX | 1 | 24 | 2 |
| זכר תקין | 46,XY | 2 | 48 | 6 |
| מושבות בודדות נבחרו ידנית על סמך מורפולוגיית המושבה לאחר תכנות מחדש והורחבו לצורך אפיון נוסף. מספר שיבוטי ה-iPSC שהוקמו בהצלחה מציין מושבות שניתן היה להרחיב ולשמר לאחר הבחירה. | ||||
טבלה 1: פרטי קווי AFC ששימשו בתכנות מחדש של תאים סומטיים.
| יום | הרכב המצע | תצפית מרכזית |
| 0 | מצע FC ללא אנטיביוטיקה + Y27632 | אלקטרופורציה |
| 1 | מצע FC | תאי השורדים מתחילים להתאושש |
| 2 – 6 | מעבר מ-FC ל-E8 (החלפה חלקית) | תחילת MET; התאים הופכים לדחוסים; תאים קטנים ועגולים יותר מופיעים בצבירים |
| 7 – 8 | E8 (החלפה מלאה מדי יומיים) | היווצרות מושבות מוקדמת |
| 9 – 14 (אופציונלי) | E8 (+ 25 μM NaB) | צבירים דמויי ריצוף עם גבולות לא ברורים; גדלים משתנים |
| 15-18 | E8 (יומי) | הופעת מושבות iPSC אמיתיות (יום 18–25) מושבות שטוחות ודחוסות עם גבולות חדים, יחס גרעין-ציטופלזמה גבוה |
| 19 – 25 | E8 (יומי) | מושבות העולות על 400 μm בקוטר; מורפולוגיה שטוחה ואחידה; מוכנות לבחירה (picking) |
טבלה 2: סיכום לוחות הזמנים המלאים של התכנות מחדש מיום 0 ועד לבחירת המושבות.
| סמן | לוקליזציה תאית | שיטת גילוי |
| OCT4 | גרעיני | אימונופלואורסצנציה / ציטומטריית זרימה |
| NANOG | גרעיני | אימונופלואורסצנציה / ציטומטריה של זרימה |
| SOX2 | גרעיני | אימונופלואורסצנציה / ציטומטריית זרימה |
| SSEA-4 | פני השטח של התא | אימונופלואורסצנציה / ציטומטריה עם זרימה |
| TRA-1-60 | פני השטח של התא | ציטומטריה עם זרימה / צביעה חיה |
| TRA-1-81 | פני השטח של התא | ציטומטריית זרימה / צביעה חיה |
טבלה 3: פרופילי ביטוי צפויים של סמני פלוריפוטנטיות בשיבוטי iPSC מבוססים.
| בעיה | סיבה אפשרית | פתרון |
| חיוניות תאים נמוכה (< 40%) לאחר אלקטרופורציה | 1. פרמטרי הפולס חריפים מדי עבור שורת תאים זו | 1. בדוק פרמטרים עדינים יותר |
| 2. התאים היו במצב של צפיפות יתרה (> 90%) | 2. ודא צפיפות של 75–90% ביום 0 | |
| 3. בועות אוויר גרמו לקשת חשמלית (arcing) | 3. שאב לאט; בדוק את התוצר עבור בועות לפני הפולס | |
| 4. באפר השהיה (resuspension buffer) התפרק או אינו נכון | 4. השתמש ב-Buffer R טרי מהקיט | |
| 5. איכות התאים הייתה נמוכה לפני האלקטרופורציה | 5. השתמש רק בתאי P3–P5 בעלי מורפולוגיה בריאה | |
| לא נצפו מושבות iPSC עד יום 25 | 1. המצע (medium) לא היה פעיל | 1. השתמש ב-E8 שהוכן טרי; הוסף NaB בריכוז של 25–100 μM מיום 9 עד יום 14 |
| 2. ה-plasmid DNA התפרק או הופשר באופן שגוי | 2. ודא את שלמות הפלסמיד על ג'ל אגרוז | |
| 3. תאים מובדלים מזוהמים גדלים באופן מופרז | 3. הסר ידנית אזורים מובדלים לפני שהם יתפשטו; בצע מעבר (passage) לתאים כדי להפחית את הצפיפות | |
| 4. ציפוי המטריקס נכשל או התדרדר | 4. הכן ציפוי טרי; שמור על קרח | |
| מושבות iPSC עוברות דיפרנציאציה ספונטנית לאחר בידוד (picking) | 1. המושבות בודדו מוקדם מדי (לפני יום 18) | 1. המתן למושבות > 400 μm עם מורפולוגיה שטוחה ובוגרת |
| 2. ציפוי המטריקס אינו מספיק או התפרק | 2. ודא שהציפוי טרי; אל תיתן לו להתייבש לפני השימוש | |
| 3. התאים הועברו כתאים בודדים ללא מעכב ROCK | 3. השתמש תמיד ב-Y-27632 ב-24 השעות הראשונות לאחר המעבר | |
| הקריוטיפ מראה אובדן של אנויפלואידיות צפויה (trisomy rescue) | 1. השמטה ספונטנית של כרומוזומים המובנית בתהליך התכנות מחדש | 1. סרוק מספר רב של שיבוטים (≥ 5–10) לכל שורה; שיבוטים שהצילו (rescued) ישמשו כביקורות אאופלואידיות איזוגניות |
| 2. תאי מוצא במעברים מאוחרים נוטים יותר להצלה (rescue) | 2. השתמש רק בתאי P3–P5 בעלי מורפולוגיה בריאה | |
| PCR מזהה רצפים אפיזומליים במעבר מאוחר (P10+) | 1. מעברים לא מספיקים מאז התכנות מחדש | 1. המשך במעברים עד P15–P20; בדוק שוב ב-PCR |
| 2. ביטוי של EBNA-1 שמשמר את הפלסמידים באופן מתמיד | 2. תרבית ממושכת פותרת זאת בדרך כלל; עקוב בכל 5 מעברים | |
| 3. תוצאה חיובית שגויה עקב זיהום פלסמיד שיורי בהכנה | 3. כלול ביקורות שליליות מתאימות; השתמש בניקוי DNA מבוסס עמודה | |
| קשת חשמלית/ניצוץ במהלך פולס האלקטרופורציה | 1. בועות אוויר כלואות בטיפ | 1. שאב את התערובת לאט; הקש על המבחנה לשחרור בועות לפני הטעינה |
| 2. ריכוז מלח גבוה בדגימת ה-DNA | 2. השתמש בהכנת פלסמיד נקייה מאנדוטוקסינים | |
| 3. פסולת תאית שחוסמת את פתח הטיפ | 3. סנן את תרחיף התאים דרך מסננת תאים של 40 μm | |
| 4. הטיפ פגום או שימש מעבר למגבלה | 4. השתמש בכל טיפ מקסימום פעמיים; בדוק אם יש נזק |
טבלה 4: מדריך לפתרון בעיות נפוצות במהלך תכנות AFC והקמת שיבוטי iPSC.
| מאפיין | מושבות שעברו תכנות מחדש חלקי | מושבות iPSC שעברו תכנות מחדש מלא |
| זמן הופעה | מופיעות מוקדם (Day 7–10) | משתנה, מופיעות בדרך כלל מאוחר יותר (Day 14–18) |
| גבול המושבה | קצוות לא סדירים | קצוות חדים ומוגדרים היטב |
| מורפולוגיה של התאים | תאים גדולים יותר, הטרוגניים | תאים קטנים, אחידים, עם יחס גרעין-ציטופלזמה גבוה |
| דחיסות התאים | דחיסות רפויה | דחיסות צפופה, במבנה של cobblestone |
| גרעינונים | לא בולטים | גרעינונים בולטים |
| סממני פלוריפוטנציות | שליליים או חלשים/מוקדיים | חזקים, אחידים |
| יציבות המושבה | ניוון או התמיינות בעת מעבר (passage) | יציבות, ניתנות להתרחבה |
טבלה 5: מאפיינים מבדילים של תאים שעברו תכנות מחדש מלא נגדמושבות שעברו תכנות מחדש חלקי.
דיון
פרוטוקול זה מתאר שיטה שאינה אינטגרטיבית וללא תאי מאכילה (feeder-free) ליצירת תאי גזע פלוריפוטנטיים מושריים (iPSCs) אנושיים אנויפלואידיים מתאי נוזל מי שפיר, באמצעות העברת פלסמידים אפיזומליים באמצעות אלקטרופורציה. מספר שלבים קריטיים קובעים את הצלחתו של התכנות מחדש. ראשית, איכותה של אוכלוסיית ה-AFC ההתחלתית היא בעלת חשיבות עליונה. במעבדות ציטוגנטיקה קליניות, AFCs מורחבים בדרך כלל במצעים השואפים כדי להאיץ את שגשוג התאים לצורך ניתוח קריוטיפ פרינטלי במקום תרבית לטווח ארוך. ההשפעה על יעילות יצירת iPSC עוקבת נותרה לא מובנת במלואה. לפיכך, יש לשקול את הרכב מצע התרבית במהלך הכנת הדגימה, ויש להעשיר אוכלוסיות AFC בעלות מעבר נמוך (low-passage) ושגשוג גבוה לאחר הפשרה, כדי להבטיח איכות תאים אופטימלית לפני אלקטרופורציה. שנית, יש לבצע אופטימיזציה של תנאי האלקטרופורציה כדי למקסם את הובלת ה-DNA תוך שימור חיות התאים. בפרוטוקול הנוכחי, אלקטרופורציה במתח של 1200 V, זמן של 20 ms ושני פולסים הניבה בעקביות יעילות טרנספקציה משביעה רצון ויצירת מושבות הניתנת לשחזור. לעיתים עשויה להידרש אופטימיזציה קלה עבור דגימות של תורמים בודדים. מוות תאי מסיבי במהלך 24–48 השעות הראשונות לאחר האלקטרופורציה קשור לעיתים קרובות לאיכות תאים ראשונית נמוכה, להסרה לא מלאה של שאריות מצע התרבית לפני הריסספנציה בבופר אלקטרופורציה, או לטיפול ממושך מדי במהלך האלקטרופורציה. שלישית, עיתוי בליטת המושבות (colony picking) הוא קריטי: מושבות המופיעות לפני היום ה-14 הן בדרך כלל תאים שעברו תכנות מחדש חלקי, בעוד שמושבות iPSC אמיתיות מופיעות בין הימים 15 ל-25 ומציגות את המורפולוגיה האופיינית – שטוחה ודחוסה עם קצוות מוגדרים בבירור. דיפרנציאציה ספונטנית בעקבות הופעת המושבות נגרמת בדרך כלל מבליטה מוקדמת מדי של המושבות, מהחלפת מצע מאוחרת או מצפיפות מושבות מוגברת, ובליטה בזמן של המושבות מסייעת בשמירה על איכותן. בנוסף, ניתן להוסיף סודיום בוטיראט (sodium butyrate) כאופטימיזציה רשות בין הימים 9 ל-15 עבור שושלות AFC המפגינות ביצועי תכנות מחדש נמוכים יחסית.23ולבסוף, שיבוט של תא בודד דרך דילול מגביל או מיון תאים באמצעות FACS לתוך פלטות של 96 בארות נחוצים לאחר אימות קריוטייפ ראשוני כדי להבטיח מקור קלונאלי.
תפקידו של p53 בתהליך התכנות מחדש תלוי במתודולוגיה. בתכנות מחדש אפיסומלי מבוסס OSKM, דיכוי זמני של p53 משפר את הישרדות התאים במהלך תגובת העקה הראשונית ומסייע ל-MET27, בעוד ש-p53 משמש כמנגנון הגנה גנומי בתכנות מחדש כימי28. בהתחשב ביעילות של תכנות מחדש של OSKM מבוסס אלקטרופורציה עבור דגימות קליניות נדירות, גישה זו נותרת בעלת ערך. כדי למזער סיכונים גנומיים פוטנציאליים, קווי iPSC מבוססים צריכים לעבור קריוטיפינג שגרתי, ובמידת הצורך, אנליזת CNV ו-WES/WGS לפני יישומים המשכיים.
מגבלה חשובה במיוחד ליצירת iPSC עם אנויפלואידיה היא תופעת ה-"trisomy rescue" (הצלה מטריסומיה) במהלך התכנות מחדש. Akutsu et al.29 הדגימו כי תדירות ההצלה משתנה באופן דרמטי בהתאם לסוג הכרומוזום. שונות זו פירושה שעבור אנויפלואידיות מסוימות, יש לסנן מספר רב של קלונים באמצעות קריוטיפ כדי לזהות את אלה ששמרו על ההפרעה הכרומוזומלית המקורית. לעומת זאת, ניתן לנצל את אותה תופעה כדי ליצור שורות ביקורת אאופלואידיות איזוגניות מאותו ניסוי תכנות מחדש, ובכך לספק ביקורת פנימית חזקה למחקר של פנוטיפים ספציפיים לאנויפלואידיה.
הפרוטוקול המתואר כאן מספק פלטפורמה חסונה וניתנת לשחזור להקמת קווי iPSC אנויפלואידיים ספציפיים למטופל מדגימות אבחנתיות פרינטליות שנותרו. ניתן ליישם קווי תאים אלה במחקרים של ביולוגיה של כרומוזומים, מנגנוני התפתחות, מידול מחלות, גנומיקה פונקציונלית, עריכה גנומית וסריקת תרופות בסריקה רב-מסלולית (high-throughput) לאחר בידול מכוון לסוגי תאים הרלוונטיים למחלה. ברפואה רגנרטיבית, תאי ה-iPSCs נטולי הטרנסגן עומדים בדרישות הבטיחות עבור תרגום קליני פוטנציאלי בעתיד. פרוטוקול זה, באמצעות אספקת זרימת עבודה סטנדרטית וניתנת לשחזור, מקל על אימוץ רחב יותר של טכנולוגיית iPSC אנויפלואידיים במגוון היישומים הללו.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים פיננסיים. האיור הסכמטי ב-איור 7A הופק באמצעות כלים מבוססי בינה מלאכותית (AI) ולאחר מכן נבחן ועודכן על ידי המחברים.
תודות
עבודה זו נתמכה על ידי התוכנית הלאומית למחקר ופיתוח מרכזי של סין (מענק מס׳ 2022YFA0913300) ועל ידי הפרויקט הקליני המרכזי של בית החולים השלישי של אוניברסיטת בקינג (מענק מס׳ BYSY2022054) עבור Jianying Guo.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Thermo Fisher (Gibco) | 25200056 | דיסוציאציה של תאים למעבר (passaging) של AFC |
| סולם DNA מסוג 100bp Plus II | TransGen Biotech | BM321-01 | סולם DNA |
| מקפיא 80°C- | Thermo Fisher | FDE60086fv | אחסון ארוך טווח של דגימות ושל DNA פלסמי |
| תמיסה לניתוק תאים Accutase | StemCell Technologies | 07920 | פירוק עדין של iPSC לגושים קטנים |
| חומצה אצטית (קרחונית) | Sigma-Aldrich | 338826 | רכיב קיבוע לקריוטיפינג (MeOH:AcOH 3:1) |
| אגרוז | Sigma-Aldrich | A9539 | אלקטרופורזה של ג'ל עבור תוצרי PCR (2%) |
| מצע AmnioType-1 | VivaCell BIOSCIENCES | C3620-0100 | תווך תרבית ראשוני לתאי AFC |
| מונה תאים אוטומטי / המוציטומטר | Countstar | TC20 | ספירת תאים חיוניים באמצעות דחיית טריפאן כחול |
| מיקרוסקופ בשדה בהיר (100x שמן) | Zeiss | Axiovert5 | ניתוח פריסת מטאפאזה לצורך קריוטיפינג |
| צנטריפוגה (רוטור עם דליים נערכים) | Eppendorf | 5810R | שקיעת תאים בצנטריפוגה ב-300 x g |
| מטריצת בטיחות ביולוגית מסוג II | ESCO | AC2-4S8-CN | סביבת עבודה סטרילית לכל פעולות תרביות התאים |
| אינקובטור CO2 (מולחח) | מדעיים | 3131 | שמור על סביבה של 37°C ו-5% CO2 |
| Colcemid (10 ug/mL) | גדי מדעי | COL-H | עצירת מטפאזה לצורך קריוטיפינג (0.1 מק"ג/מ"ל, 2-4 שעות) |
| תווך הקפאת תאים CryoStor CS10 | STEMCELL Technologies | 07959 | תוכנית להקפאת תאים |
| DAPI | Merck Millipore | 10236276001 | צביעה גרעינית |
| DMEM (גלוקוז גבוה) | Thermo Fisher (Gibco) | 11965092 | בסיס למצע גידול פיברובלסטים (FC) |
| DMEM/F-12 | Thermo Fisher (Gibco) | 11330032 | בופר לדילול Matrigel (1:200) |
| DPBS ללא Ca2+/Mg2+ | Thermo Fisher (Gibco) | 14190250 | בופר שטיפה |
| פלסמיד אפיזומלי (pCE-GFP) | Addgene | #41858 | וקטור תכנות מחדש שאינו משתלב (בקרת GFP) |
| פלסמיד אפיסומלי (pCXLE-hOCT3/4-shp53-F) | Addgene | #27077 | וקטור תכנות מחדש שאינו משתלב (OCT4 + shp53) |
| פלסמיד אפיזומלי (pCXLE-hSK) | Addgene | #27078 | וקטור תכנות מחדש שאינו משתלב (SOX2 + KLF4) |
| פלסמיד אפיזומלי (pCXLE-hUL) | Addgene | #27080 | וקטור תכנות מחדש שאינו משתלב (L-MYC + LIN28) |
| סרום עוברי בקר | HyClone | SH30071.03 | תוסף סרום להרחבת AFC (מדיום FC, 15%) |
| מיקרוסקופ פלואורסצנציה | Leica | Sp8 | צביעה חיה של TRA-1-60/81 וויזואליזציה ב-IF |
| מערכת אלקטרופורזה של ג'ל | Bio-Rad | 164-5056 | ניתוח של תוצרי PCR באמצעות ג'ל אגרוז |
| ג'לטין (0.1%) | Sigma-Aldrich | G1393 | ציפוי כלי תרבית להיצמדות AFC |
| ערכה למיצוי DNA גנומי | TIANGEN | 4992199 | בידוד DNA באיכות PCR מתאי iPSCs |
| תמיסת צבע גימזה | Sigma-Aldrich | GS500 | צביעת פסי G של כרומוזומים (5%) |
| GlutaMAX (100x) | Thermo Fisher (Gibco) | 35050061 | תוסף למצע FC |
| מיקרוסקופ ניגודיות פאזה הפוך | Zeiss | Axiovert5 | ניטור יומי של התרבית ושל מורפולוגיית המושבות |
| מכל אחסון לחנקן נוזלי | Thermo Scientific | CY50985 | שימור בהקפאה של תאים |
| מטריצת קרום הבסיס Matrigel | Corning | 354230 | ציפוי כלי תרבית להיצמדות של iPSC |
| מתנול (אנहाइडרי) | Sigma-Aldrich | 34860 | רכיב מקבע לקריוטיפינג (MeOH:AcOH 3:1) |
| נוגדן NANOG (ארנבת) | Abcam | ab109250 | אימונופלואורסצנציה; סמן פלוריפוטנציות גרעיני |
| ערכת אלקטרופורציה Neon NxT (100 uL) | Thermo Fisher (Invitrogen) | N10025 | אלקטרופורציה; מכיל את באפרים R, T, E וטיפים של 100 uL |
| מערכת אלקטרופורציה Neon NxT | Thermo Fisher (Invitrogen) | NEON18S | החדרה של פלסמידים אפיזומליים באמצעות אלקטרופורציה |
| חומצות אמינו שאינן חיוניות (NEAA, ריכוז 100x) | Thermo Fisher (Gibco) | 11140050 | תוסף למצע FC |
| נוגדן OCT4 (ארנב) | Abclonal | A7920 | אימונופלואורסצנציה; סמן גרעיני לפלוריפוטנטיות |
| תערובת PCR מאסטר (דיוק גבוה) | TIANGEN | 4992920 | אימות סילוק אפיזומלית באמצעות PCR |
| pCXWB-EBNA1 | Addgene | #37624 | ביטוי אפיזומלי שאינו משתכפל של EBNA1 |
| נוגדן PE anti-human TRA-1-81 | BioLegend | 330708 | צביעת פלוריפוטנטיות |
| פניצילין-סטרפטומייצין (100x) | Thermo Fisher (Gibco) | 15140122 | תוסף אנטיביוטי (שאינו בשימוש לאחר אלקטרופורציה) |
| ריאגנט Phalloidin-iFluor 647 | Abcam | ab176759 | סימון F-actin (סיבי אקטין) |
| אשלגן כלוריד (KCl) | Sigma-Aldrich | P5405 | תמיסה היפוטונית לקריוטיפינג (0.075 M) |
| מערכת PCR בזמן אמת | Thermo Fisher Scientific | QuantStudio3 | qPCR לאימות גן מסמן |
| סודיום ביוטיראט (NaB) | Sigma-Aldrich | B5887 | מעכב HDAC; ריכוז של 25-100 uM לשיפור התכנות מחדש |
| נוגדן SOX2 (עכבר) | R&מערכות D | MAB2018 | אימונופלואורסצנציה; סמן פלוריפוטנציות גרעיני |
| נוגדן SSEA-4 | BioLegend | 330408 | אימונופלואורסצנציה; סמן פלוריפוטנטיות על פני השטח של התא |
| מיקרוסקופ סטריאו | Nikon | SMZ745 | בחירת מושבות מכנית תחת הגדלה |
| TeSR-E8 | STEMCELL Technologies | 05990 | תווך תחזוקה של iPSC ללא תאי מאכילה |
| נוגדן TRA-1-60 | Merck Millipore | MAB4360 | צביעת פלוריפוטנטיות |
| סממן DNA מסוג Trans DNA Marker II | TransGen Biotech | BM411-01 | סולם DNA |
| ערכה לזיהוי מיקופלסמה באמצעות TransDetect PCR | TransGen Biotech | FM311-01 | בדיקת מיקופלסמה |
| אנזים TrypLE Select (בריכוז 1x) | Thermo Fisher (Gibco) | 12563011 | פירוק עדין של תאים עבור AFCs נצמדים |
| טריפסין (0.025%) | Sigma-Aldrich | T4799 | טיפול מקדים של שקופיות לצביעת פסי G (30-60 שניות) |
| מעגל תרמי (Thermal Cycler) בעל 96 בארות מדגם VeritiPro | Thermo Fisher Scientific | A48141 | PCR לאימות סילוק אפיזומלי |
| אמבט מים (37 °C) | Shanghai Zhixin Experimental Instrument Technology Co., Ltd. | ZX-S22 | הפשרת מצעים וריאגנטים |
| Y-27632 Dihydrochloride (מעכב ROCK) | Tocris | 1254 | משפר את הישרדות תאי iPSC לאחר פירוק (10 uM) |
מקורות
- Gurdon JB. The developmental capacity of nuclei taken from intestinal epithelium cells of feeding tadpoles. Development. 1962;10(4):622-640.
- Evans MJ, Kaufman MH. Establishment in culture of pluripotential cells from mouse embryos. Nature. 1981;292(5819):154-156.
- Martin GR. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 1981;78(12):7634-7638.
- Thomson JA, Itskovitz-Eldor J, Shapiro SS, Waknitz MA, Swiergiel J, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145-1147.
- Takahashi K, Tanabe K, Ohnuki M, Narita M, Ichisaka T, et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 2007;131(5):861-872.
- Fusaki N, Ban H, Nishiyama A, Saeki K, Hasegawa M. Efficient induction of transgene-free human pluripotent stem cells using a vector based on Sendai virus, an RNA virus that does not integrate into the host genome. Proc Jpn Acad Ser B Phys Biol Sci. 2009;85(8):348-362.
- Warren L, Manos PD, Ahfeldt T, Loh YH, Li H, et al. Highly efficient reprogramming to pluripotency and directed differentiation of human cells with synthetic modified mRNA. Cell Stem Cell. 2010;7(5):618-630.
- Yu J, Hu K, Smuga-Otto K, Tian S, Stewart R, et al. Human induced pluripotent stem cells free of vector and transgene sequences. Science. 2009;324(5928):797-801.
- Hou P, Li Y, Zhang X, Liu C, Guan J, et al. Pluripotent stem cells induced from mouse somatic cells by small-molecule compounds. Science. 2013;341(6146):651-654.
- Guan J, Wang G, Wang J, Zhang Z, Fu Y, et al. Chemical reprogramming of human somatic cells to pluripotent stem cells. Nature. 2022;605(7909):325-331.
- Liuyang S, Wang G, Wang Y, He H, Lyu Y, et al. Highly efficient and rapid generation of human pluripotent stem cells by chemical reprogramming. Cell Stem Cell. 2023;30(4):450-459.e9.
- Wang Y, Peng F, Yang Z, Cheng L, Cao J, et al. A rapid chemical reprogramming system to generate human pluripotent stem cells. Nat Chem Biol. 2025;21(7):1030-1038.
- Li C, Zhou J, Shi G, Ma Y, Yang Y, et al. Pluripotency can be rapidly and efficiently induced in human amniotic fluid-derived cells. Hum Mol Genet. 2009;18(22):4340-4349.
- Slamecka J, Salimova L, McClellan S, van Kelle M, Kehl D, et al. Non-integrating episomal plasmid-based reprogramming of human amniotic fluid stem cells into induced pluripotent stem cells in chemically defined conditions. Cell Cycle. 2016;15(2):234-249.
- Li Q, Fan Y, Sun X, Yu Y. Generation of induced pluripotent stem cells from human amniotic fluid cells by reprogramming with two factors in feeder-free conditions. J Reprod Dev. 2013;59(1):72-77.
- Crosland BA, Hedges MA, Ryan KS, D'mello RJ, Mccarty OJT, Amniotic fluid: its role in fetal development and beyond. J Perinatol. 2025 Aug;45(8):1163-1170. doi: 10.1038/s41372-025-02313-1. Epub 2025 May 8. PMID: 40341778; PMCID: PMC12354197.
- Liu L, et al. Amniotic fluid stem cells in birth defects: integrated roles in disease modeling, prenatal diagnosis, and therapy. Stem Cell Rev Rep. 2026. doi:10.1007/s12015-026-11161-1.
- Antonucci I, Provenzano M, Rodrigues M, Pantalone A, Salini V, et al. Amniotic fluid stem cells: a novel source for modeling of human genetic diseases. Int J Mol Sci. 2016;17(4):607.
- Guillot PV. Induced pluripotent stem (iPS) cells from human fetal stem cells. Best Pract Res Clin Obstet Gynaecol. 2016;31:112-120. doi:10.1016/j.bpobgyn.2015.08.007.
- Lu HE, Yang YC, Chen SM, Su HL, Huang PC, et al. Modeling neurogenesis impairment in Down syndrome with induced pluripotent stem cells from trisomy 21 amniotic fluid cells. Exp Cell Res. 2013;319(4):498-505.
- Lee CC, et al. Establishment of a human trisomy 18 induced pluripotent stem cell line from amniotic fluid cells. Stem Cell Res. 2018;29:115-119.
- D'Aurora M, et al. Modeling Klinefelter syndrome using induced pluripotent stem cells reveals impaired germ cell differentiation. Front Cell Dev Biol. 2020;8:567454.
- Mali P, Chou BK, Yen J, Ye Z, Zou J, et al. Butyrate greatly enhances derivation of human induced pluripotent stem cells by promoting epigenetic remodeling and the expression of pluripotency-associated genes. Stem Cells. 2010;28(4):713-720.
- Guo J, Lee Q, Qiu H, Wei Y, Zhu X, et al. Patient-derived neural organoids reveal developmental impairments associated with a novel GJB1 mutation in X-linked Charcot-Marie-Tooth disease. Neurobiol Dis. 2026;220:107299.
- Nanbo A, Sugden A, Sugden B. The coupling of synthesis and partitioning of EBV's plasmid replicon is revealed in live cells. EMBO J. 2007;26(19):4252-4262.
- Chou BK, Mali P, Huang X, Ye Z, Dowey SN, et al. Efficient human iPS cell derivation by a non-integrating plasmid from blood cells with unique epigenetic and gene expression signatures. Cell Res. 2011;21(3):518-529.
- Okita K, Matsumura Y, Sato Y, Okada A, Morizane A, et al. A more efficient method to generate integration-free human iPS cells. Nat Methods. 2011;8(5):409-412.
- Cheng L, Wang Y, Yang Z, Cao J, Peng F, et al. p53 safeguards chemical reprogramming of human somatic cells toward pluripotency. Cell. 2026. doi:10.1016/j.cell.2026.03.038.
- Akutsu SN, Miyamoto T, Oba D, Tomioka K, Ochiai H, et al. iPSC reprogramming-mediated aneuploidy correction in autosomal trisomy syndromes. PLoS One. 2022;17(3):e0264965.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב