סקירה זו מסכמת ראיות על בקרת איכות מיטוכונדריאלית (ביוגנזה, דינמיקה ומיטופאגיה) לאורך שלבי הספרמטוגנזה, תוך קישור שינויים מטבוליים ועיצוב מבני מחדש לאובייניות גברית, וזיהוי פערים מתודולוגיים להכוונת מחקרים עתידיים.
מאמר סקירה
בקרת איכות מיטוכונדריאלית: שומר סף של הספֶרמטוגנזה
במאמר זה
סיכום
תקציר
אי-פריון גברי נמצא בעלייה ברחבי העולם. תהליך הספרמטוגנזה (Spermatogenesis) דורש אנרגיה רבה והוא קשור באופן הדוק לבקרת איכות מיטוכונדריאלית (MQC)—הכוללת ביוגנזה, דינמיקה של איחוי ובקיעה (fusion–fission), ומיטופגיה. כאן אנו מסכמים ראיות עדכניות לאורך שלבי הפיתוח של תאי הנבט, תוך הדגשת שינויים ספציפיים לשלב, מעיצור ATP הנתמך על ידי גליקוליזה למטבוליזם הנשלט על ידי חמצון פוספורילי (OXPHOS), ועיצוב מחדש של הארכיטקטורה המיטוכונדריאלית לתוך מעטפת החלק האמצעי. אנו מסכמים נתונים גנטיים ותפקודיים המקשרים את OPA1/MFN1-2 לאיחוי של הממברנה הפנימית/חיצונית, את DRP1/FIS1/MFF לבקיעה ולארגון המעטפת, ואת תפקידי המיטופגיה התלויה והבלתי תלויה ב-PINK1–Parkin בבקרת איכות מיטוכונדריאלית, תוך הכרה בכך שסילוק ציטופלזמה ותחזוקת האקרוזום במהלך הספרמיוגנזה עשויים לערב אוטופגיה כללית ולא מיטופגיה באופן ספציפי. תפקוד לקוי של המיטוכונדריה—עודף רדיקלים חופשיים (ROS), קריסה של פוטנציאל ממברנת המיטוכונדריה (MMP), דינמיקה לא מווסתת או מיטופגיה פגומה—פוגע בספרמטוגנזה ובתפקוד הזרע. אנו מזהים גם פערים מתודולוגיים המגבילים את היישום הקליני, ובמיוחד את המחסור בפנוטיפינג סטנדרטי ובראיות גנטיות אנושיות. הבהרת הסיבתיות של MQC והיכולת להשפיע עליה תרופתית עשויה לתמוך במחקר אבחנתי או טיפולי עתידי באי-פריון גברי.
מבוא
איכות הזרע נמצאת בירידה ברחבי העולם, והשכיחות של אי-פריון גברי הנגרם מאיכות זרע לקויה עולה1. מטא-אנליזה אחת מהזמן האחרון הראתה כי בין השנים 1973 ל-2011, מספר תאי הזרע בקרב גברים מצפון אמריקה, אירופה, אוסטרליה וניו זילנד ירד ב-50–60%2, וירידה זו הואצה מאז שנת 20003. הירידה המואצת באיכות הזרע דווחה ברחבי העולם2,3,4,5,6. הסיבות לירידה זו מחייבות מחקר נוסף ונקיטת אמצעים ממוקדים להגנה על הפריון הגברי.
ספרמטוגנזה (יצירת תאי זרע) מתרחשת בצינורות הזרע (seminiferous tubules) של האשכים. זהו תהליך דמוי-גל הכולל שילובים ספציפיים של תאי ספרמטוגנזה לאורך הציר הארוך של צינורות הזרע, אשר מוביל בסופו של דבר לשגשוגם של תאי גזע ספרמטוגוניים (SSCs) והבחנתם לזרע (spermatozoa)7. ספרמטוגנזה ביונקים היא אחד מתהליכי ההבחנה המורכבים והארוכים ביותר בביולוגיה. בבני אדם, מחזור ספרמטוגני מלא נמשך 64–74 ימים, כאשר כל מחזור של אפיתל צינורות הזרע נמשך 16 ימים. תהליך מורכב זה כרוך בשינויים משמעותיים בצורה, במספר ובפיזור של המיטוכונדריה8.
בקרת איכות מיטוכונדריאלית (MQC)—התהליכים המתואמים של ביוגנזה מיטוכונדריאלית, היתוך (fusion), פיצול (fission) ומיטופגיה סלקטיבית—שומרת על שלמות האברון תחת דרישות ביו-אנרגטיות משתנות8,9. באשכים, ה-MQC היא תלוית-שלב ותומכת במעבר מספרמטוגוניה מתחלקים למיוזה ולספרמיוגנזה, המגיעים לשיאם בהרכבת נרתיק מיטוכונדריאלי דחוס בחלק המרכזי של תא הזרע9. איור 1 מציג את מנגנון ה-MQC במהלך הספרמטוגנזה. הפרעה ברכיבי ה-MQC עלולה להוביל לספרמטוגנזה פגומה ולתת-פוריות באורגניזמי מודל ובבני אדם. סקירה זו מאחדת תובנות מנגנוניות עדכניות ומתווה הזדמנויות לתרגום קליני.
סקירה ופרספקטיבה
ספרמטוגנזה ומטבוליזם אנרגטי מיטוכונדריאלי
תהליך הספרמטוגנזה מורכב משלושה שלבים רצופים: שגשוג מיטוטי, מיוזה וספרמיוגנזה, הכוללים את שגשוג הספרמטוגוניה, התמיינותם לספרמטוציטים, חלוקה מיוטית, הבשלה של ספרמטידות ושחרורם (spermiation) אל הלומן של הרכיב השמינפרי. הספרמטוגוניה מסווגות לסוגים של רזרבה וסוגים מתחדשים. חלק מהספרמטוגוניה נשמרות כתאי גזע, בעוד שאחרות משתתפות בספרמטוגנזה באמצעות התמיינות. בנוסף, חלקן עוברות מוות תאי מתוכנן, כגון אפופטוזיס. ספרמטוציטים ראשוניים דיפלואידיים עוברים שני סבבים של חלוקה מיוטית כדי להתמיין לספרמטידות הפלואידיות. במהלך הספרמיוגנזה, ספרמטידות עגולות אינן מתחלקות יותר והן הופכות לספרמטידות מוארכות מאוד, שבסופו של דבר מתפתחות לזרעי הגב (spermatozoa) בוגרים.
ספרמטוגנזה דורשת אינטראקציות מתואמות בין תאי נבט (כולל ספרמטוגוניה, ספרמטוציטים, ספרמטידים וספרמטוזואים) לבין תאי סרטולי תומכים, וכן שמירה על שלמות מחסום הדם-אשכים10,11. מחסום הדם-אשכים, הנוצר על ידי צומתים הדוקים בין תאי סרטולי סמוכים, מחלק את האפיתל של הרנולות לתוך מדורי בסיס ומדורי לומינליים, ובכך יוצר ושומר על מיקרו-סביבה ייעודית החיונית להתפתחות תאי הנבט11,12. כתוצאה מכך, תהליך הספרמטוגנזה—מתאי גזע ספרמטוגוניים ועד לספרמטוזואים בוגרים—מתרחש בתוך מיקרו-סביבה ייחודית זו של האשכים. תהליך ייצור הזרע נשען רבות על התפקוד המיטוכונדריאלי13. כמרכז מטבוליזם האנרגיה בתאים איקריוטיים, המיטוכונדריה נחשבת לחיונית לייצור זרע. ייצור הזרע תלוי מאוד באספקת האנרגיה ובפונקציות האיתות של המיטוכונדריה. בתאי נבט מתפתחים, המיטוכונדריה לא רק מספקת ATP חיוני לספרמטוגנזה, אלא גם משפיעה על התהליך באמצעות השתתפות באיתות תוך-תאי, בבקרת מחזור התא ובמוות תאי תכנוני13. בתאי ליידיג, המיטוכונדריה ממלאת תפקיד מכריע בייצור הורמונים סטרואידיים, וסינתזת ATP מיטוכונדריאלית נחוצה לייצור טסטוסטרון בתאים אינטרסטיציאליים אלה של האשכים14. בנוסף, כארגנלה היחידה בעלת DNA עצמאי, ה-DNA המיטוכונדריאלי קשור קשר הדוק לאיכות הזרע. לכן, הבנת המצב המיטוכונדריאלי ומנגנוני הבקרה שלו חשובה לחשיפת תהליך הספרמטוגנזה ולשמירה על פוריות זכרית.
מטבוליזם של אנרגיה הוא קריטי עבור ספרמטוגנזה, הדורשת כמות משמעותית של ATP. שני המסלולים העיקריים לייצור ATP הם זרימה חמצנית מיטוכונדריאלית (OXPHOS) וגליקוליזה. אספקת ה-ATP תלויה בשלב ההתפתחות; בעוד ש-OXPHOS הופך לחשוב יותר במהלך המיוזה והיווצרות החלק המרכזי של תא הזרה, הגליקוליזה תורמת באופן משמעותי לייצור ATP, במיוחד בזרעי מנביים בוגרים. הגליקוליזה תומכת גם בהבשלת הזרע, בניידותו ובמעברו דרך דרכי הנשימה הנקביות על ידי אספקת אנרגיה גמישה ומהירה.
עם זאת, בספרמטוגוניה ובספרמטוציטים בשלבים מוקדמים, המיטוכונדריה קטנה יחסית ומפגינה פעילות OXPHOS מוגבלת. ככל שהספרמטוגנזה מתקדמת לשלבים מאוחרים יותר, כגון ספרמטוציטים, ספרמטידים וספרמטואזואון, המיטוכונדריה עוברת עיצוב מחדש ופעילות ה-OXPHOS שלה הופכת למרוכזת יותר מרחבית ויעילה יותר. בנוסף, בשל מחסום הדם-אשכים, תשתי העובדה הזמינות משתנות בין השלבים השונים. ספרמטוגוניה, השוכנים במדור הבזאלי של האפיתל seminiferous, יכולים לגשת לגלוקוז במחזור הדם ולהפיק אנרגיה באמצעות גליקוליזה. לעומת זאת, ספרמטוציטים וספרמטידים במדור האדלומינלי מופרדים מהדם ומהאינטרסטיציום על ידי מחסום הדם-אשכים ומסתמכים על תאי Sertoli לספיגת גלוקוז באמצעות נשאי גלוקוז (GLUTs), הממירים אותו לפירובט באמצעות גליקוליזה. הפירובט מומר לאחר מכן ללקטט על ידי לקטט דהידרוגנאז (LDH). הלקטט מובל לספרמטוציטים באמצעות נשאי מונוקרבוקסילאט (MCTs), שם הוא מומר בחזרה לפירובט על ידי LDH, אשר יכול להיות מומר לאחר מכן לאצטיל-CoA על ידי פירובט דהידרוגנאז (PDH) לצורך כניסה למעגל חומצה טריקרבক্সילית (TCA). לבסוף, הפירובט מובל למיטוכונדריה באמצעות נשא הפירובט המיטוכונדריאלי כדי לקדם OXPHOS.
פגיעה בספרמטוגנזה כתוצאה מתפקוד לקוי של המיטוכונדריה
במהלך תהליך השחרור של תאי הזרע (spermiation), תאי זרע בוגרים משוחררים מתאי סרטולי אל תוך חלל הרנולות (seminiferous tubules), ולאחר מכן מובלים אל האפידידימיס. תהליך זה דורש אספקת אנרגיה משמעותית ממיטוכונדריה. כאשר התפקוד המיטוכונדרי נפגע, תהליך הספירמטוגנזה מעוכב. סימנים מרכזיים לתפקוד מיטוכונדרי לקוי כוללים ייצור מוגבר של מיני חמצן רהאקטיביים (ROS), שינויים בפוטנציאל ממברנת המיטוכונדריה (MMP), חוסר איזון בדינמיקה של ביקוע ומיזוג מיטוכונדריאלי, פגיעה בביוגנזה מיטוכונדריאלית, מיטופאגיה לקויה ושיבוש בהומאוסטזיס של יוני סידן.
התהליך שבו מיטוכונדריה מייצרות ATP באמצעות OXPHOS מלווה גם בייצור ROS. המיטוכונדריה הן המקור העיקרי ל-ROS, אשר נוצרים בעיקר בקומפלקסים הנשימתיים I ו-III של שרשרת העברת האלקטרונים המיטוכונדריאלית (ETC)15. בתנאים פיזיולוגיים נורמליים, רמות מתאימות של ROS מעורבות במסלולי איתות המווסתים את תהליך הספרמטוגנזה. עם זאת, עודף של ROS עלול להוביל לחוסר איזון רדוקס, לגרום לעקה חמצונית ולפגוע בספרמטוגנזה. לכן, האיזון בין מטבוליזם אנרגטי מיטוכונדריאלי לבין ייצור ROS הוא גורם מפתח בהבטחת הספרמטוגנזה.
phosphorylation חמצונית (OXPHOS) מיטוכונדריאלית יעילה דורשת כניסה של סובסטרטים פחמניים נשימתיים (למשל, pyruvate, חומצות שומן) דרך הממברנה המיטוכונדריאלית החיצונית אל החלל הבין-ממברנלי. סובסטרטים אלו מובלים לאחר מכן למטריקס באמצעות נשאים הממוקמים בממברנה המיטוכונדריאלית הפנימית, שם הם משתתפים במעגל ה-TCA. במעגל ה-TCA, סובסטרטים פחמניים אלו עוברים פירוק חמצוני, המייצר nicotinamide adenine dinucleotide (NADH) ו-flavin adenine dinucleotide (FADH2). תוצרים אלו תורמים אלקטרונים ל-ETC ומניעים את ה-OXPHOS עבור סינתזת ATP מ-ADP ופוספט אנאורגני (Pi). הפרעות במעגל ה-TCA או במסלולי ה-ETC עלולות לפגוע בייצור הזרע16. MMP, כמדד למצב האנרגיה התאי ולתפקוד המיטוכונדריאלי, נמצא קשור לניידות הזרע17 וליכולת ההפריה הכללית18.
במצב של עקה מיטוכונדריאלית, ביסוע (fission) יכול להפריד מקטעים מיטוכונדריאליים פגומים, בעוד שאיחוי (fusion) יכול לקדם ערבוב של תוכן והשלמה תפקודית. מיטוכונדריה פגומות או עודפות עשויות לאחר מכן לעבור פירוק ומחזור באמצעות מיטופגיה (mitophagy). יחד, ביוגנזה מיטוכונדריאלית, ביסוע, איחוי ומיטופגיה מהווים את בקרת האיכות המיטוכונדריאלית (MQC), התומכת בתפקוד ובמידול מחדש של המיטוכונדריה19.
ספרמטוגנזה (יצירת תאי זרע) כוללת את התמיינותם של ספרמטוגוניה לספרמטוזואה, תהליך שאינו מביא לשינויים משמעותיים במורפולוגיית התאים בלבד, אלא דורש גם תמיכה ובקרה של חילוף חומרים אנרגטי. כמרכזות האנרגיה של התאים, המיטוכונדריה ממלאות תפקיד מכריע בהיבטים מרכזיים של הספרמטוגנזה, כולל אספקת אנרגיה, העברת אותות ומוות תאי מתוכנן. במהלך הספרמטוגנזה, הדרישות המטבוליות של תאי הנבט משתנות בשלבים שונים של ההתפתחות. מספר המיטוכונדריה ומורפולוגייתן עוברים שינויים משמעותיים במהלך הספרמטוגנזה. במהלך היווצרות הזרע, מיטוכונדריה רבות נשלפות, בעוד שהמיטוכונדריה שנשארות מאורגנות בחלק המרכזי של תא הזרע כדי ליצור מעטפת מיטוכונדריאלית סביב האקסונמה ומבני השוט המקושרים אליה. לפיכך, במהלך הספרמטוגנזה, מיטוכונדריה בתאי אשכים שונים עוברות תהליכים רצופים של איחוי וביקוע, דבר הדורש מנגנון MQC (בקרת איכות מיטוכונדריאלית) יעיל ומדויק כדי להבטיח את תפקודן התקין ולתמוך בדרישות האנרגיה הגבוהות של הספרמטוגנזה. עם ייצור תאי הזרע, הן המורפולוגיה והן מספר המיטוכונדריה עוברים שינויים משמעותיים, ומנגנון ה-MQC ממלא תפקיד קריטי בתהליך זה. חלבוני המטרה המרכזיים המעורבים ב-MQC רשומים ב- טבלה 1.
ספרמיוגנזה ודינמיקה מיטוכונדריאלית
מיטוכונדריה הן אברונים דינמיים ביותר אשר המורפולוגיה, הגודל וההפצה התת-תאית שלהם מעוצבים מחדש ללא הרף באמצעות תהליכי איחוי (fusion) ובקיעה (fission) מתואמים — תהליך המכונה באופן קולקטיבי דינמיקה מיטוכונדריאלית. בתנאים פיזיולוגיים נורמליים, האיחוי והבקיעה קיימים בשיווי משקל דינמי השומר על הומאוסטזיס מיטוכונדריאלי, מסייע להשלמה תפקודית ומבטיח הורשה מיטוכונדריאלית תקינה במהלך חלוקת התא. שיבוש של מאזן זה — בין אם על ידי מחיקה גנטית, פגמים במודיפיקציות פוסט-טרנסלציונליות או סטרס פתולוגי — פוגע בתפקוד המיטוכונדריה, פוגם בייצור האנרגיה ובסופו של דבר מעכב את הספרמטוגנזה. הבקרה המדויקת של הדינמיקה המיטוכונדריאלית היא קריטית במיוחד בתאי נבט, שכן הספרמטוגנזה כרוכה בשינויים מטבוליים דרמטיים ובשינוי מורפולוגי נרחב הדורשים התאמה ספציפית לשלב של ארכיטקטורת המיטוכונדריה ופעילותה.
איחוי מיטוכונדריאלי מתווך על ידי MFN1 ו-MFN2 על הממברנה המיטוכונדריאלית החיצונית ועל ידי OPA1 על הממברנה הפנימית, ובכך הוא מקל על ערבוב תכולה, השלמה תפקודית ושמירה על שלמות ה-DNA המיטוכונדריאלי. איחוי אינו רק תגובה הגנתית אלא מנגנון התלוי בהקשר התומך בירושה מיטוכונדריאלית ובהסתגלות מטבולית במהלך התמיינות תאי נבט. במהלך התמיינות ספרמטוגוניה, ביטוי MFN עולה, ואובדן של MFN1 או MFN2 מוביל לחמצון DNA ולאפופטוזיס בספרמטוגוניה ובספרמטוציטים, מה שגורם לעקרות בזכרים20,21. מוטציות ב-MFN1 גורמות לניוון של האשכים בעכברים, עם הפחתה ניכרת במספר הספרמטוציטים וכשל בייצור זרע, בעוד שספרמטוגוניה לא מובחנות נותרות ללא פגיעה, מה שמרמז ש-MFN1 נדרש להתקדמות המיוטית20. MFN2, לעומת זאת, מווסת הן את תפקודי המיטוכונדריה והן את תפקודי הרשתית האנדופלזמית, וממלא תפקיד נפרד בספרמטוגנזה21.
ביסוע מיטוכונדריאלי מנוהל על ידי DRP1, אשר מגויס לממברנה המיטוכונדריאלית החיצונית באמצעות חלבוני מתאם הכוללים את FIS1, MFF, MID49 ו-MID51. לאחר הגיוס, DRP1 מתרכב לאוליגומרים דמויי טבעת המצמצמים ומחלקים את המיטוכונדריה באופן תלוי GTP. התהליך כולל שלושה שלבים עיקריים: הפעלת DRP1 על ידי פוספורילציה, גיוס לממברנה החיצונית באמצעות אינטראקציות עם FIS1, MFF, MID49 ו-MID51, והרכבה למבנה טבעתי המקיף ומצמצם את המיטוכונדריה, תוך צריכת GTP ויצירת שני אברונים נפרדים. ביסוע אינו רק מנגנון לפינוי מיטוכונדריה דפולריזית או למענה לדרישות אנרגיה מוגברות; אלא זהו תהליך מתואם המווסת את ההפצה המיטוכונדריאלית, הפרדה של רכיבים פגומים, הורשה במהלך חלוקת התא ועיצוב מחדש של הארכיטקטורה המיטוכונדריאלית. עכברים החסרים DRP1 הם קטלניים בשלב העוברי22,23; עכברים עם חסר ב-MFF מראים פוריות ומספר זרעות מופחתים, דבר המספק מודל בעל ערך לחקר ביסוע מיטוכונדריאלי במהלך התפתחות תאי נבט זכריים24. ביסוע מיטוכונדריאלי חיוני ליצירה תקינה של המעטפת המיטוכונדריאלית במהלך ספרמיוגנזה.
תהליך הספרמטוגנזה תובעני מבחינה אנרגטית, ונשען בעיקר על גליקוליזה בספרמטוגוניה ועל OXPHOS בספרמטוציטים ובספרמטידים. OXPHOS קריטי במיוחד במהלך המיוזה, ויעילותו תלויה בדינמיקה מיטוכונדריאלית תקינה25,26. לאחר המיוזה, MFF וחלבוני ביקוע אחרים מווסתים את הביקוע המיטוכונדריאלי ומשתתפים ביצירת המעטפת המיטוכונדריאלית של תאי הזרע24. במהלך הספרמיוגנזה, חלק מהמיטוכונדריה נשמרים באופן סלקטיבי ומעוצבים מחדש לכדי מעטפת, בעוד שמיטוכונדריה עודפות ורכיבים ציטופלזמיים מסולקים באמצעות אוטופגיה27. חלבונים כגון OPA1, DRP1 ו-MFF עשויים להוות מטרות מחקר פוטנציאליות לשיפור תפקוד תאי הזרע, אך הרלוונטיות הטיפולית שלהם דורשת תיקוף נוסף. חקירה מעמיקה יותר של MQC בספרמטוגנזה אנושית עשויה לסייע למחקר אבחנתי או טיפולי עתידי באי-פריון גברי.
ספרמטוגנזה ואוטופגיה מיטוכונדריאלית
מיטופגיה ממלאת תפקיד קריטי בספרומטוגנזה28. מיטופגיה כוללת בעיקר בליעה של מיטוכונדריה פגומות על ידי אוטופגוזומים. האוטופגוזומים המכילים מיטוכונדריה פגומות מתמזגים לאחר מכן עם ליזוזומים, והמיטוכונדריה מעובדות באמצעות פעילות ליזוזומלית, ובכך מנקיות מיטוכונדריה פגומות ומשיגות בקרת איכות. המסלול הקלאסי של אוטופגיה מיטוכונדריאלית הוא מסלול PINK1/Parkin, אך תוארו גם מסלולים שאינם תלויים ב-PINK1/Parkin29.
אוטופגיה מסייעת בשמירה על שלמות האקרוזום, קוטביות הספרמטידים ופירוק רכיבים ציטופלזמיים במהלך הספירמטוגנזה, אם כי תהליכים אלו משקפים אוטופגיה כללית ולא מיטופגיה סלקטיבית, אלא אם הוכח באופן ספציפי פינוי מיטוכונדריאלי. מחקרים מצאו כי מיטופגיה קשורה קשר הדוק לדינמיקה מיטוכונדריאלית, וביקוע מיטוכונדריאלי עשוי להקל על המיטופגיה לצורך הסרת מיטוכונדריה עודפת או פגומה30. FIS1, למרות היותו חלבון ביקוע מיטוכונדריאלי, מעורב גם במיטופגיה במהלך הספירמטוגנזה31. RAB7A מעורב ביצירת מיטופגוזומים ובהבשלה של אוטופגוזומים32. FIS1 מקים אינטראקציה עם החלבון TBC1D15, שהוא חלבון GTPase-activating protein מיטוכונדריאלי33,34. TBC1D15 מווסת את פעילות RAB7A, המעורבת באיחוי של שלפוחיות וליזוזומים ובהבשאת אוטופגוזומים34,35. כאשר FIS1 אינו פעיל, RAB7A עלול להישאר פעיל על פני השטח של המיטוכונדריה, מה שמוביל לצמיחה וליצירת צינוריות לא מווסתות של ממברנת האוטופגוזום; ניתן להבחין בצבירה של LC3 באמצעות מיקרוסקופיה אופטית35. מיטופגיה יכולה להתרחש גם באופן בלתי תלוי בביקוע מיטוכונדריאלי המתווך על ידי DRP1, ולכן אין להתייחס לביקוע כאל תנאי הכרחי לפינוי מיטוכונדריאלי35.
במהלך הספרמיוגנזה (spermiogenesis), ספרמטידים משתחררים מרכיבים תאיים עודפים, ומחקרים מצאו כי אוטופגוזומים הם השכיחים ביותר בספרמטידים36. הגן המרכזי של האוטופגיה Atg7 קושר לפולריזציה של ספרמטידים ולהסרה של הציטופלזמה במהלך הספרמטוגנזה; עם זאת, נראה כי סוגים מוקדמים של תאי נבט מושפעים פחות בהקשר זה27,36. בנוסף, מיטופגיה מוגברת במודלים של אשכים פגועים, כולל תאי ליידיג (Leydig cells)29, תאי גזע/פרוגניטורים ספרמטוגוניים37,38, תאי סרטולי (Sertoli cells)39, ואשכי חולדה לא בשלים שנחשפו לרעלים40. בספרמטוגנזה, אוטופגיה מיטוכונדריאלית קשורה לאפופטוזיס ולדרכים אחרות של מוות תאי מתוכנן, ובכך היא משפיעה על ייצור הזרע באשכים41,42.
הקשר ביבליומטרי
בוצע ניתוח ביבליומטרי ממוקד של ה-Web of Science Core Collection מהשנים 1970 עד 2023 באמצעות מונחי החיפוש “spermatogenesis” ו-“MQC”; מחקרים שאינם על יונקים ורשומות שאינן רלוונטיות הוצאו, ולצורך הוויזואליזציה נעשה שימוש ב-VOSviewer 1.6.2043. לאחר סינון, נשמרו 1,019 מאמרים מ-1,217 מוסדות ב-66 מדינות ו-5,705 מחברים. מספר הפרסומים עלה באופן עקבי (איור 2A). ארצות הברית וסין תרמו את מספר המאמרים הגבוה ביותר (212 ו-196, בהתאמה), ולארצות הברית היה מספר הציטוטים הגבוה ביותר (12,295; איור 2B). רשתות המוסדות והמחברים מסוכמות באיור 2C,D.
ניתוח השכיחות המשותפת של מילות מפתח (תדירות > 7) הצביע על דגש על מוביליות תאי זרע, עקה חמצונית, אפופטוזיס/מוות תאי מתוכנן, נזק ל-DNA, פריקסדציה של ליפידים ואיכות הזרע (איור 3). תבניות ביבליומטריות אלו תומכות בסקירה המכניסטית, אך אינן מחליפות אותה: התחום מרוכז סביב נזק חמצוני ותוצאות של מוביליות, בעוד שראיות ישירות בבני אדם הקושרות מסלולי MQC ספציפיים לשלב מסוים לאי-פריון נותרות מוגבלות.
מסקנות
עם התקדמות הביוטכנולוגיה, המחקר על פוריות גברים עבר ממורפולוגיה ותנועתיות תיאוריות לעבר המנגנונים המולקולריים והתאיים של הספרמטוגנזה. המיטוכונדריה מרכזיות בתהליך זה: הן מייצרות ATP, תומכות בעיצוב מחדש במהלך המיוזה והספרמיוגנזה, והן רגישות מאוד לפגיעות חמצוניות וסביבתיות44. כדי לשמור על תפקוד תחת עקה כזו, המיטוכונדריה מסתמכות על MQC, המשלב ביוגנזה, דינמיקה של איחוי-פיצול (fusion–fission) ומיטופגיה. שיבוש של מסלולים אלו פוגע בהתפתחות תאי הנבט, בארכיטקטורה של חלק האמצע של תאי הזרע, ובסופו של דבר בפוריות. לסיכום, הראיות הזמינות תומכות במודל תלוי-שלב שבו דינמיקה מיטוכונדריאלית ומיטופגיה מסייעות בתיאום ייצור האנרגיה, עיצוב מחדש של האבנים והסרה של רכיבים פגומים במהלך הספרמטוגנזה. עם זאת, ראיות ישירות בבני אדם ופנוטיפיה סטנדרטית נותרות מוגבלות, ולכן יש לראות בחלבונים הקשורים ל-MQC כמטרות מחקר פוטנציאליות הדורשות תיקוף נוסף ולא כמטרות טיפוליות מבוססות.
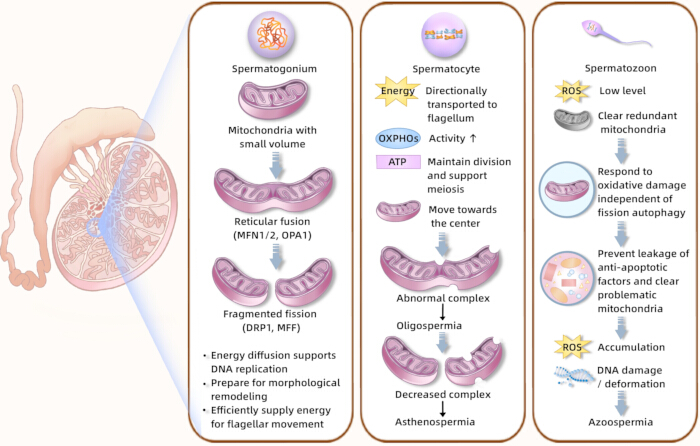
איור 1המנגנון של בקרת איכות מיטוכונדריאלית במהלך ספרמטוגנזה. מטבוליזם אנרגטי ועיצוב מחדש של מיטוכונדריה במחזוריות השלבים של הספירמטוגנזה. הסכימה מראה צימוד מטבולי בין תאי סרטולי לתאי נבט, נשאי גלוקוז, נשאי מונוקרבוקסילאט, ייצור ATP, את המעבר ממטבוליזם הנתמך על ידי גליקוליזה לזרחון חמצוני במהלך המיוזה והספירמיוגנזה, ונזק מיטוכונדריאלי הקשור לרדיקלים חופשיים של חמצן. קיצורים: ATP = אדנוזין טריפוספט; OXPHOS = זרחון חמצוני; ROS = רדיקלים חופשיים של חמצן. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
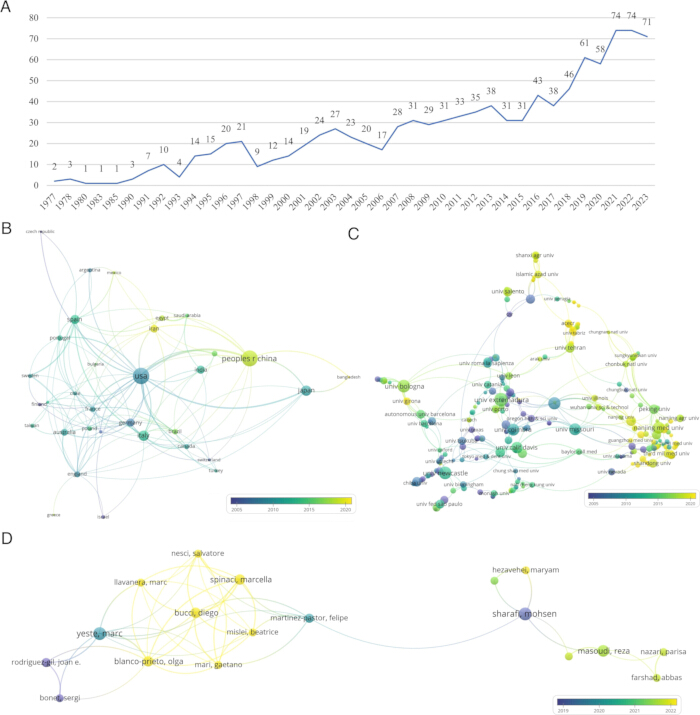
איור 2. פרסומים לאומיים, מוסדיים, פרסומי מחברים וניתוח שיתופי. (A) מספר הפרסומים השנתי בתחום הספרמטוגנזה ו-MQC. (B) מפת התפלגות זמנית של פרסומים בשיתוף פעולה בינלאומי בתחום הספרמטוגנזה ו-MQC. (C) מפת התפלגות זמנית של שיתופי פעולה מוסדיים בתחום הספרמטוגנזה ו-MQC. (D) מפת התפלגות זמנית של פרסומי מחברים בתחום הספרמטוגנזה ו-MQC. הצמתים מציינים את מספר הפרסומים; צבע הצומת מציין את זמן הפרסום מהמוקדם למאוחר יותר; והקווים מייצגים קשרי שיתוף פעולה, כאשר קווים עבים יותר מעידים על שיתוף פעולה הדוק יותר. קיצור: MQC = mitochondrial quality control. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
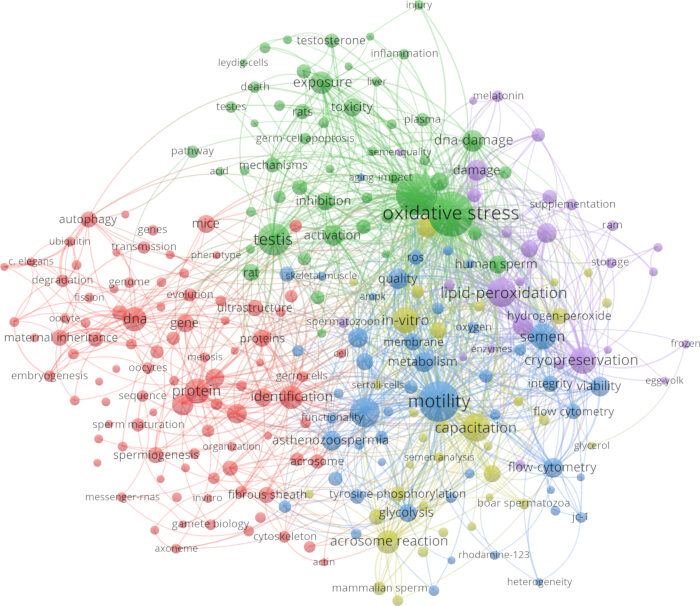
איור 3. תרשים השתתפות משותפת של מילות מפתח בתדירות גבוהה. הצמתים מייצגים מילות מפתח בתדירות גבוהה; גודל הצומת מייצג את התדירות; צבע הצומת מעיד על קיבץ (clustering), כאשר צבע זהה מצביע על נושאים בעלי קשר הדוק יותר; והקווים מייצגים קשרים בין מילות מפתח, כאשר קווים עבים יותר מעידים על קשרים הדוקים יותר. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| תהליך MQC | חלבון מטרה |
| היתוך מיטוכונדריאלי | ניוון עצב ראייה 1 (OPA1) |
| מיטופוסין 1 (MFN1) | |
| מיטופוזין 2 (MFN2) | |
| ביטול מיטוכונדריאלי | חלבון 1 הקשור לדינמין (DRP1) |
| חלבון ביסוע מיטוכונדריאלי 1 (FIS1) | |
| גורם ביקוע מיטוכונדריאלי (MFF) | |
| מיטופגיה | קינאז משוער 1 המושרה על ידי PTEN (PINK1) |
| Ubiquitin-protein ligase Parkin (E3 ubiquitin-protein ligase Parkin) |
טבלה 1: חלבוני מטרה מרכזיים בבקרת איכות מיטוכונדריאלית. הטבלה מפרטת חלבונים מייצגים המעורבים באיחוי מיטוכונדריאלי, בביקוע מיטוכונדריאלי ובמיטופגיה במהלך הספירמטוגנזה.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
עבודה זו נתמכה על ידי פרויקט הקרן למדעים טבעיים של נינגשיה (2025AAC030481, 2024AAC03715), הקרן הלאומית למדעים טבעיים של סין (82560939, 82505601), תוכנית המחקר והפיתוח המרכזית של נינגשיה (2025FRG05005, 2025BEG2008), הקרן למדעים טבעיים של בייג'ינג (7254520), הקרן הפוסט-דוקטורלית למדעים של סין (2025T181076), תוכנית חסות למדענים צעירים מצטיינים של איגוד המדע והטכנולוגיה של סין (YESS20240193), תוכנית לתמיכה בכישרונות צעירים של איגוד הרפואה הסינית של סין (CACM-2024-QNRC2-B17), ופרויקט להקמת דיסציפלינה מרכזית ברמה גבוהה לרפואה סינית מסורתית על ידי המנהל הלאומי לרפואה סינית מסורתית (zyyzdxk-2023238).
מקורות
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.