פרוטוקול זה מתאר שיטות ליצירת דגי זהב טרנסגניים מורכבים, דימות של תאי מערכת החיסון הקשורים לגידולים בדגי זהב בשלבי הלרבה ובבגרות, וכמימות של שכיחות תאי מערכת החיסון בתוך הסביבה המיקרובית של הגידול.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
דימות וכימות של תאי מערכת החיסון במיקרו-סביבת הגידול באמצעות מודל דגי זהב של נוירובלסטומה
* These authors contributed equally
במאמר זה
סיכום
תקציר
גיוס תאי מערכת החיסון לסביבה המיקרוסקופית של הגידול (TME) הוא מרכיב חשוב בוויסות החיסוני ובהתקדמות הגידול. חקר היחסים המרחביים והזמניים בין תאי חיסון לתאי גידול in vivo עשוי לספק תובנות לגבי האינטראקציות בתוך ה-TME. עם זאת, ויזואליזציה וכמות של אינטראקציות אלו באורגניזמים שלמים נותרים מאתגרים בשימוש בגישות היסטולוגיות ובדימות קונבנציונלי. דגי זהב מהווים מודל בעל ערך למחקר הסרטן הודות לנגישות הגנטית שלהם, להתפתחותם המהירה ולשקיפות האופטית שלהם בשלבי התפתחות מוקדמים, המאפשרת ויזואליזציה של תאים המסומנים פלואורסצנטית. in vivoכאן אנו מציגים פרוטוקול ליצירה, זיהוי, דימוי וכמתית של תאי מערכת החיסון ותאי גידול המסומנים באופן דיפרנציאלי באמצעות סמנים פלואורסצנטיים במודל של דג זברה לנוירובלסטומה. הפרוטוקול כולל רבייה וסריקה של דגי זברה טרנסגניים מורכבים, דימוי חי של זחלים, הכנה ודימוי של דגים בוגרים הנושאים גידול, וכמתית של תאי מערכת החיסון המקיפים את אזורי הגידול ובתוכם. באמצעות קווי רפורטר טרנסגניים, CD4+ תאי חיסון ו- MYCNניתן להדמיות ולנתח תאי נוירובלסטומה המוהנחים על ידי [X] בשלבים התפתחותיים שונים. זרימת העבודה מאפשרת להעריך את מיקום תאי החיסון ביחס לגידולים הן בדגי לרווים והן בדגים בוגרים, וניתן להשתמש בה להשוואת שכיחות תאי החיסון לאורך שלבי המחלה. פרוטוקול זה מספק גישה ניתנת לשחזור להדמיה ולכימות של תאי חיסון בתוך ה-TME (סביבת הגידול). in vivo השימוש בדגי zebrafish עשוי להקל על מחקרים של אינטראקציות בין מערכת החיסון לגידול במודלים של סוגי סרטן אחרים.
מבוא
מיקרו-סביבת הגידול (TME) היא מערכת אקולוגית המורכבת מתאי גידול, תאי מערכת החיסון, פיברובלסטים ותאי כלי דם1. ה-TME ממלאת תפקיד חיוני בהתקדמות הסרטן, בתגובה הטיפולית ובחסינות נגד גידולים. בתוך ה-TME, תאי מערכת החיסון הם רגולטורים מרכזיים של גורל הגידול, שכן הם משתתפים בתגובות אנטי-גידוליות או גורמים לדיכוי חיסוני2. הבנת הגיוס, ההפצה והתפקוד של תאי מערכת החיסון בתוך ה-TME היא קריטית להבאת מנגנוני ההתחמקות של גידולים מהמעקב החיסוני. עם זאת, גישות קונבנציונליות לחקר ה-TME, כגון היסטולוגיה של נקודת סיום, ציטומטריית זרימה וריצוף של תא בודד, מספקות תמונות סטטיות בלבד ולעיתים קרובות דורשות הפרעה למבנה הרקמה, מה שמוביל לאובדן מידע מרחבי ואינטראקציות בין תאים3,4,5,6,7. יתרה מכך, שיטות אלו מוגבלות ביכולתן להדמיות וכמות של תאי מערכת החיסון בתוך ה-TME, במיוחד בשלבים מוקדמים של התפתחות הגידול.
דגי זברה (Danio rerio) מהווים מודל רב-עוצמה למחקר סרטן בשל עלותם הנמוכה, התפתחותם המהירה, שקיפותם היחסית והשימור הגנטי הגבוה שלהם8,9. יתרונות אלו מספקים מערכת ניסויית הניתנת לשחזור ולהרחבה, המאפשרת שימוש בגדלי מדגם גדולים ובסריקת מיקרוסקופיה יעילה בפרק זמן קצר10. באופן משמעותי, דגי זברה חולקים שימור אימונולוגי ניכר עם בני אדם, כולל רכיבי מפתח של מערכות החיסון המולדות והנרכשות, מה שהופך את הממצאים לרלוונטיים למחלות בבני אדם1. תכונות אלו שימושיות במיוחד לחקר סרטני ילדים כגון נוירובלסטומה8. כתוצאה מכך, פותחו קווי דגי זברה רבים בעלי רפורטרים למערכת החיסון ומודלים של סרטן1. לפיכך, דגי זברה משמשים כמודל in vivo בעל ערך לחקר האינטראקציות בין תאי גידול לתאי מערכת החיסון, ומספקים תובנות לגבי האופן שבו ויסות חיסוני מעצב את התפתחות הגידול, במיוחד בשלבים מוקדמים.
מחקרים קודמים שבחנו את ה-TME בדגי zebrafish הסתמכו במידה רבה על מודלים של קסנוגרפט גידולים בשילוב עם דימוי בנקודת סיום כדי להעריך את המיקום של תאי מערכת החיסון בתוך הגידולים12,13,14,15,16,17. בעוד ששיטות אלו מספקות תובנות מועילות, הן מוגבלות בשל הסתמכותן על דימוי דו-מדי, אשר אינו יכול ללכוד באופן מלא את הארגון התלת-מדי של ה-TME ואת היחסים המרחביים בין הגידול לתאי מערכת החיסון במהלך ההתפתחות14. בנוסף, מודלים של קסנוגרפט גידולים כוללים השתלה מלאכותית של תאי גידול אנושיים ועשויים שלא לשחזר באופן מלא את התחלת הגידול הטבעית18. מודלים אלו הם בדרך כלל קצרי טווח ואינם יכולים ללכוד באופן מלא את התקדמות הגידול או שינויים ביחס המרחבי בין הגידול לתאי מערכת החיסון במהלך ההתפתחות14,19. יתרה מכך, גישה זו מספקת ייצוג מוגבל של הארגון המרחבי, ההקשר ההתפתחותי והרלוונטיות הפיזיולוגית של התנהגות תאי מערכת החיסון בתוך ה-TME. לאחרונה, אנו ואחרים יישמנו דגי zebrafish טרנסגניים מורכבים, שבהם תאי גידול ותאי מערכת החיסון מסומנים באופן שונה באמצעות סמנים פלואורסצנטיים, כדי להדמות תאי מערכת חיסון הקשורים לגידולים20,21. דגים טרנסגניים מורכבים אלו מאפשרים את חקר ה-TME לאורך התפתחות בעל החיים והגידול, ובכך מקלים על חקירת אינטראקציות בין מערכת החיסון לגידול in vivo.
כאן אנו מציגים שיטה המשתמשת במיקרוסקופיה קונפוקלית כדי לחקור תאי מערכת החיסון בתוך ה-TME של מודל נוירובלסטומה בדגי zebrafish. בגישה זו, השתמשנו בקווי דגי zebrafish רפורטרים המסמנים תאי מערכת חיסון ובקו דגי zebrafish מהונדס גנטית המבטא באופן יתר את האונקוגן האנושי MYCN תחת הפרומוטור של dopamine-β-hydroxylase (dβh), מה שמוביל להתפתחות של נוירובלסטומה הדומה למחלה בבני אדם20. במודל zebrafish טרנסגני מורכב זה, תאי הגידול ותאי מערכת החיסון מסומנים באופן דיפרנציאלי ב-EGFP וב-mCherry, בהתאמה. הפרומוטור dβh פעיל בתאי שושלת הסימפטאואדרנלית ושימש במספר מודלים של נוירובלסטומה בדגי zebrafish2,23,24,25. בנוסף, השתמשנו בפרומוטור Cd4 המניע פלואורסצנציית mCherry כדי להדמיאן תאי CD4+15. דימות קונפוקלי עם רכישת Z-stack הוחל כדי להדמיאן את ה-TME בתלת-ממד בשלבים שונים של התפתחות הגידול, מה שמאפשר הערכה של היחסים המרחביים בין תאי הגידול לתאי מערכת החיסון בתוך רקמה שלמה. שיטה זו מאפשרת ניתוח של ארגון תאי מערכת החיסון ביחס לתאי הגידול במהלך שלבים שונים של התפתחות הגידול.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
All animal procedures were approved by the Institutional Animal Care and Use Committee (IACUC) at Boston University Chobanian & Avedisian School of Medicine under protocol PROTO202100001. The overall workflow for generation of compound transgenic zebrafish, larval imaging, adult tissue preparation, and image analysis is summarized in Figure 1.
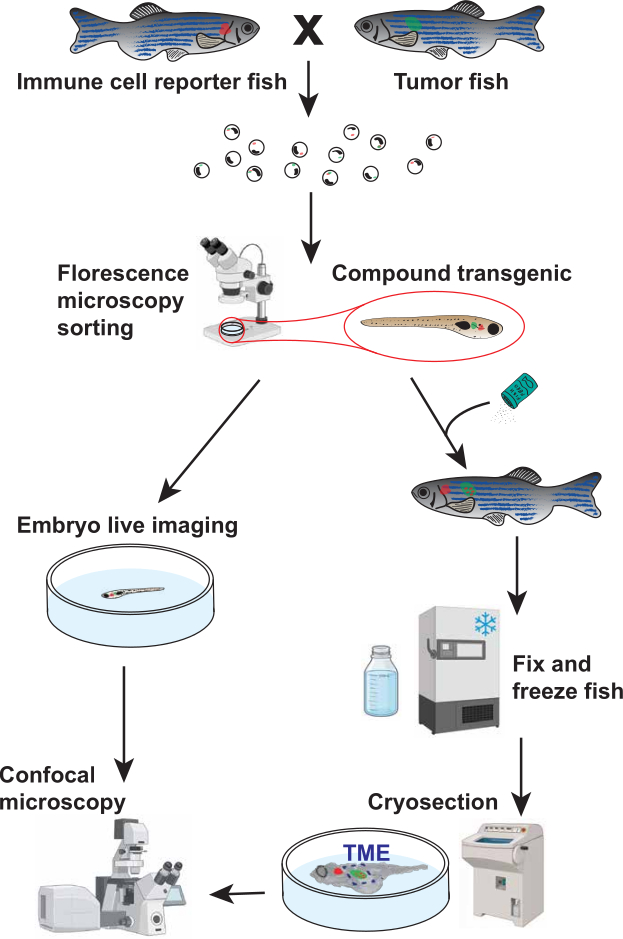
איור 1. זרימת עבודה לוויזואליזציה וכימות של תאי חיסון בתוך מיקרו-סביבת הגידול (TME) של דגי זברה. סקירה סכמטית של זרימת העבודה הניסוית. דגי זברה עם רפורטר למערכת החיסון הורשבו עם דגי זברה הנוטים לגידולים כדי ליצור צאצאים טרנסגניים מורכבים המבטאים סממנים פלואורסצנטיים הן בתאי חיסון (אדום) והן בתאי גידול (ירוק). עוברים נסרקו באמצעות מיקרוסקופיית פלואורסצנציה כדי לזהות דגים טרנסגניים מורכבים. דגים נבחרים הועמדו לדימות קונפוקאלי חי במהלך ההתפתחות הלרבלית (<21 ימים לאחר ההפריה [dpf]) או עובדו באמצעות קיבוע, חיתוך קריוגני ודימות קונפוקאלי עבור דגים בני יותר מ-21 dpf. זרימת עבודה זו מאפשרת ויזואליזציה וכימות של תאי חיסון הקשורים ל-TME לאורך שלבי התפתחות מרובים. חלק מהאיור נוצר באמצעות BioRender. אנא לחצו כאן לצפייה בגרסה גדולה יותר של איור זה.
1. יצירת קווי דגי זברה טרנסגניים מורכבים באמצעות הרבעה
- בחרו דגי רב-דיווח חיסוניים (immune-reporter) בוגרים ודגי גידול גידולים (tumor fish) בני לפחות 3 חודשים לצורך רבייה טבעית.
הערה: לקבלת תוצאות מייצגות, דגים הטרוזיגוטים ל-Tg(cd4-1:mCherry) הוקצו להכלאה עם דגים הטרוזיגוטים ל-Tg(dβh:MYCN; dβh:EGFP) כדי לסמן באופן דיפרנציאלי תאי חיסון ותאי גידול15,23. - בערב שלפני הרבייה, מלאו מיכל הזדווגות בעל שני תאים עד לשני שלישים במי דגים.
- הניחו רשת עליונה בתוך תא ההזדווגות. השתמשו במחיצות כדי להפריד זכר אחד מנקבה אחת או שתיים.
- השאירו את המחיצות במקומן למשך הלילה. הוסיפו צמחים מלאכותיים או פריטי העשרה אחרים כדי לדמות תנאי רבייה טבעיים.
הערה: יחס של 1:2 בין זכרים לנקבות מגביר את הסבירות להטלה מוצלחת בעת רבייה של דגי זכרים עם גידולים ודגי רב-דיווח חיסוניים. אין להרביץ שני זכרים עם נקבה אחת, שכן עלולה להתרחש תחרות בין הזכרים. - בבוקר למחרת, הסירו את המחיצות לאחר הדלקת האורות במתקן.
- הטו מעט את התא העליון בעזרת המחיצה כתושב כדי ליצור אזור מים רדוד. אפשרו לדגים להטיל ביצים למשך שעה אחת לפחות.
- אספו את הביצים מקרקעית תא ההזדווגות על ידי שפיכת המים דרך רשת בעלת רשת דקה.
- העבירו את הביצים לצלחת פטרי סטרילית המכילה מי דגים בצפיפות שאינה עולה על ביצה אחת ל-50 mm2 (כ-20 ביצים לצלחת של 10 mm).
- הסירו ביצים מתות וביצים שלא הופרו.
הערה: ביצים מופרות בריאות הן שקופות ועגולות. הסירו ביצים עכורות, לבנות, לא מופרות או מעוות. - בדקו שוב את הדגים כדי למנוע ערבוב של מינים או זיהום צולב בין מיכלי דגים טרנסגניים.
- החזירו את הזכרים והנקבות למיכלים שלהם.
- הניחו את העוברים באינקובטור בטמפרטורה של 28.5°C למשך הלילה. אין לחרוג מצפיפות העוברים שצוינה בשלב 1.8.
- בצעו חיטוי במלבן (bleaching) לעוברים בבוקר למחרת כדי להסיר מזהמים.
- הכינו תמיסת מלבן עבודה המורכבת מ-10 µL מלבן ב-20 mL מי מערכת. הכינו תמיסת נטרול המורכבת מ-0.5 g נתרים תיוסולפט ב-150–20 mL מי מערכת.
- מיינו והעבירו עוברים חיוניים לתוך תבנית רשת (mesh-net well insert). טבלו את התבנית בתמיסת המלבן למשך 5 min.
- העבירו את התבנית ישירות לתמיסת נתרים תיוסולפט. דגרו למשך 2 min כדי לנטרל שאריות מלבן.
- שטפו את העוברים באמבט אחרון של מי מערכת טריים. השתמשו בבקבוק נטף כדי להעביר בעדינות את העוברים לצלחות פטרי נקיות המכילות מי מערכת טריים.
- החזירו את העוברים לאינקובטור לאחר החיטוי במלבן.
- העבירו את הזחלים 5–7 ימים לאחר ההפריה (dpf) או מאוחר יותר למיכל גדול יותר המכיל מי רוטיפר בריכוז 5 ppt לצורך גידול.
- הכינו מי רוטיפר בריכוז 5 ppt על ידי ערבוב של חלק אחד של מי רוטיפר מלאים (15 ppt) עם שני חלקים של מי מערכת לדגי זברה.
- וודאו שהמליחות הסופית היא 5 ppt באמצעות מד מוליכות לפני העברת הזחלים.
הערה: מיון זחלי EGFP+ MYCN בגיל 3–5 dpf מקל על זיהוי דגים בעלי נטייה לגידולים לפני הגידול. מיון עוברי MYCN בשלב זה מונע זיהוי שגוי כשלי (false-negative), כיוון שביטוי EGFP בתאי רכס עצבי עשוי לרדת בשלב מאוחר יותר של ההתפתחות עקב אפופטוזיס המושרה על ידי MYCN.
2. סריקת דגי זהב לזיהוי סמנים פלואורסצנטיים
- הכינו תמיסת סטוק של tricaine בריכוז 0.4% (w/v) באמצעות מי מערכת.
- העבירו את הדגים לצהיית פטרי נקייה המכילה כמות מי מערכת המספיקה רק לכיסוי התחתית.
- הוסיפו את תמיסת הסטוק של tricaine כדי להגיע לריכוז סופי של כ-0.005% (50 mg/L) עבור דגים צעירים מ-14 dpf, או 0.012% (120 mg/L) עבור דגים מבוגרים מ-14 dpf. ודאו השראת הרדמה נאותה על ידי התבוננות בתנועה רצונית מועטה או בהיעדרה המלאה.
- הסירו את עודפי המים מהצלוחית לאחר שהדגים הורדמו ואינם מסוגלים לשחות יותר, תוך שמירה על תנועה נראית של הזימריים או הלב.
- סננו את הדגים לבדיקת פלואורסצנציה. זהו פלואורסצנציה ירוקה או אדומה באזור הצפוי (למשל, אזור בלוטת האינטרנל בדגי MYCN).
- הפרידו את הדגים לקבוצות באמצעות כלי מיון בעל סיבים קשיחים.
הערה: מיינו דגים הנוטים לגידולים מומרים מוקדם ככל האפשר, מכיוון שאפופטוזיס המושרה על ידי MYCN בשלבי התפתחות מאוחרים יותר עלולה להוביל לזיהוי שלילי-שגוי. מיינו דגי-דיווח חיסוניים מיד לפני הדימוג בשלב הזחלים, או בין הגילאים 2 ל-4 חודשים עבור מחקרי מבוגרים. גישה זו ממזערת את הלחץ הכרוך בטיפול וממקסמת את שיעור ההישרדות. - העבירו את הדגים החיוביים והשליים למכלי גידול נפרדים המכילים מי מערכת להמשך הגידול.
הערה: שלב 3 מתאר את הטיפול והדימוג של זחלים צעירים מ-21 dpf. שלבים 4–6 מתארים קיבוע, הכנת רקמות, דימוג וניתוח תמונות של דגים מבוגרים יותר.
3. קיבוע חי של זחלים והדמיה
- הניחו את הזחלים הממוינים בצלחת פטרי של 100 mm המכילה מי דגים עם tricaine (ראו שלב 2.3 עבור ריכוזים המתאימים לגיל).
- העבירו את הזחלים המורדמים לצלחת דימוי בעלת תחתית זכוכית.
- השתמשו בכמות תמיסה המספיקה רק כדי לכסות את הזחל ולשמור על הרדמתו.
- הכינו agarose בעל נקודת התכה נמוכה בריכוז 1%–1.5% במי דגים. חממו את תמיסת ה-agarose עד להמסה מלאה.
- המתינו שה-agarose יתקרר במשך 1–2 min. שמרו על ה-agarose בטמפרטורה של 30°C באמצעות בלוק חימום כדי למנוע התמצקות לפני הקיבוע.
- מקמו כל זחל במצב צדי בצלחת הדימוי.
- מרחו כ-30–20 µL של agarose מעל הזחל כדי לקבע אותו. השתמשו בנפחים גדולים יותר עבור זחלים גדולים ובנפחים קטנים יותר עבור זחלים קטנים.
- לאחר שה-agarose התמצק, הוסיפו כ-10 µL של תמיסת tricaine בריכוז 0.05% מעל ה-agarose.
- בצעו דימוי של הזחלים באמצעות מיקרוסקופ קונפוקלי.
- השתמשו במיקרוסקופ קונפוקלי סטנדרטי עם סריקת לייזר וסורק רזוננטי. השתמשו בעדשה אובייקטיבית 40× עם מפתח נומרי (numerical aperture) הגבוה מ-1.10.
- הגדירו את ה-pinhole ל-1.0 Airy unit (AU) עבור כל ערוצי הדימוי.
- השתמשו בלייזר 48 nm עבור עירור של EGFP ובלייזר 594 nm עבור עירור של mCherry. שמרו על הספק לייזר נמוך מ-25 mW כדי למזער פוטובליצ'ינג (photobleaching) ופוטוטוקסיות. כווננו את הגברה של הגלאי (detector gain) ואת הספק הלייזר באמצעות טבלת ערכים (LUT) של מחוון טווח כדי למנוע רוויית פיקסלים וקיטוע שחור (black clipping). אין לחרוג מהגברה של הגלאי של 80 V כיוון שמתחים גבוהים יותר יוצרים רעש מוגבר.
- השתמשו בגודל ווקסל של 0.42 × 0.42 × 6.0 µm (x, y, z) ברזולוציה של 1024 × 1024 פיקסלים ובמרווח Z-step של 6.0 µm. רכשו חתכים אופטיים ברצף לאורך כל הנפח הרלוונטי, שבדרך כלל משתרע על עומק דימוי כולל של 90–120 µm. השתמשו בגלאי פוטונים רגישים מאוד הפועלים במצב רכישה של 16-bit.
- רכשו תמונות באמצעות סריקת קו חד-כיוונית בתדר סריקה רזוננטי של 3.3 kHz (זמן שהייה של פיקסל של כ-1.58 µs). השתמשו במיצוע (averaging) של 2× או 4× להפחתת ארטיפקטים של תנועה תוך הגבלת החשיפה ללייזר.
הערה: בצעו אופטימיזציה של החשיפה ל-tricaine כדי לשמור על הישרדות הזחלים במהלך הדימוי. לאחר הדימוי, הוסיפו מי דגים עד שצלחת הדימוי תהיה מלאה בערך עד מחציתה.
- הוסיפו מי דגים טריים לצלחת הדימוי מיד לאחר הדימוי.
- הסִירו בעדינות את הזחל מה-agarose באמצעות מקל בעל סיבים קשיחים והעבירו את הזחל לצלחת המכילה מי דגים נקיים לצורך התאוששות.
- החזירו את הדג לאקווריום המקורי שלו לאחר שחזרת התנהגות שחייה נורמלית.
הערה: עבור דגים בני יותר מ-21 dpf, יש להסיר את העור המכסה את הגידול באמצעות חיתוך קריו-סקציה (cryosectioning) כדי לאפשר דימוי קונפוקלי ברזולוציה גבוהה.
4. קיבוע דגים וחיתוך קריוסטטי
- בצע הריגה של הדגים בהתאם להנחיות המוסדיות המאושרות לטיפול בבעלי חיים.
- בצע חתך ונטרלי המשתרע מנקב פי הטבעת עד לחגורת החזה כדי לחשוף את חל הבטן ולהקל על חדירת המקבע לרקמות הפנימיות.
- העבר את הדגים באמצעות פינצטה לשפופרת של 1.5 mL המכילה 4% paraformaldehyde (PFA) בתוך phosphate-buffered saline (PBS), או לנפח מקבע הגדול פי 10 לפחות מנפח הרקמה.
הערה: הימנע מטיפול באזור המכיל את הגידול כדי לשמור על שלמות הרקמה. - הנח את הדגימות על מנער (nutating rocker) המכוון לערבוב רציף עדין (30 rpm) והדגר למשך הלילה, לפחות 12 h, בטמפרטורה של 4°C.
זהירות: PFA הוא חומר מסוכן, רעיל ועלול להיות מסרטן. הרכב ציוד מגן אישי מתאים, כולל כפפות והגנה על העיניים. בצע את כל הפרוצדורות הכוללות PFA במנדף כימי והימנע משאיפת אדים. - הסר את ה-PFA ושטוף את הדגימות לפחות ארבע פעמים עם 1.5 mL של 1× PBS. הפוך את השפופרת בעדינות פעמיים עד שלוש בכל שטיפה.
- העבר את הדגים לתוך 30% sucrose שהוכן ב-PBS.
- הדגר את הדגים בחדר קר למשך הלילה עד שהדגימה שוקעת לתחתית השפופרת בעמידה (בערך 12 h), דבר המעיד על חדירה מספקת של הסוכרוז.
- הסר עודפי תמיסת סוכרוז על ידי ספיגה עדינה של הדג על נייר ספיגה למעבדה.
- העבר את הדגים לשפופרות אחסון.
- אחסן את הדגימות בטמפרטורה של −80°C עד לדימוי.
הערה: עיבוד הדגימות יש להתבצע בתוך 3 חודשים כדי למזער את פירוק החלבון הפלואורסצנטי ואובדן האות. - העבר את הדגים המקובעים לחדר הקריוסטט על קרח יבש.
- הנח את הדג בצורה שטוחה בתבנית פלסטיק כאשר צד סגיטלי אחד פונה כלפי מטה.
- הוסף תרכובת Optimal Cutting Temperature (OCT) עד שהדג מכוסה לחלוטין.
- הקפא את התבנית בטמפרטורה של −20°C או בקריוסטט עד שה-OCT הופך ללבן.
הערה: מקם את הדג בצורה שטוחה ככל האפשר לפני ההקפאה כדי להקל על חיתוך עקבי. - בצע חיתוכי קריו (cryosection) לדגי zebrafish במישור הסגיטלי כדי להסיר את העור לצורך דימוי של גוף שלם (whole-mount imaging) בהמשך.
- קרר את ראש הקריוסטט (chuck).
- מרח OCT בטמפרטורת החדר על הראש.
- לחץ את בלוק ה-OCT עם הדג בחוזקה לתוך שכבת ה-OCT.
- הקפא את הראש והבלוק עד שה-OCT שנוסף זה עתה הופך ללבן.
- התקן את הראש בקריוסטט.
- בצע חיתוכי קריו לבלוק בעובי של 14 µm עד שהלהב מגיע לדגימה.
הערה: תזוזת דגימה עלולה להתרחש במהלך ההקפאה, מה שיגרום לדג להיות ממוקם גבוה יותר בבלוק מהצפוי. הכניסה לדגימה מסומנת על ידי הופעת רקמה שקופה המחליפה את רקע ה-OCT האטום. - הפחת את עובי החיתוך ל-7 µm.
- המשך בחיתוך עבור חיתוך אחד נוסף.
הערה: פרוצדורה זו מסירה את העור תוך שמירה על פרופיל סגיטלי אחיד לאורך הדגימה. - אשר את נקודת הסיום על ידי זיהוי העור בחיתוכים שנאספו.
הערה: הופעת העור בחיתוכים מספקת אינדיקטור אמין יותר מאשר מורפולוגיית העין. בצע פרוצדורה זו רק כאשר העור מסתיר את הדימוי של מיקרו-הסביבה של הגידול.
- חמם את הראש בעדינות באמצעות הידיים.
- הסר את בלוק ה-OCT מהראש באמצעות פינצטה. הימנע מהפרעה למשטח החיתוך של הדגימה.
- גזום עודפי OCT המקיפים את הדג בעוד ה-OCT קפוא.
- הסר את הדג מבלוק ה-OCT באמצעות פינצטה ברגע שה-OCT מתרכך למרקם צמיגי.
5. קיבוע ודימוי של דגים לאחר הסרת העור
- הניחו את הדג בתוך צלחת בעלת תחתית זכוכית, כאשר הצד הסגיטלי החתוך פונה כלפי משטח הזכוכית.
הערה: שמרו על אוריינטציית הדג במהלך הטיפול. זיהוי הצד החתוך עלול להפוך לקשה לאחר הוצאת הדג מבלוק ה-OCT. - הכינו אגרוז נמוך-המסחה בריכוז של 1%–1.5%.
- מרחו כ-30–50 µL של אגרוז על הצדדים הגביים (dorsal) והבטני (ventral) של הדג כדי לקבע את הדגימה.
הערה: הימנעו מהנחת אגרוז מתחת לדג, כיוון שדבר זה עלול לפגוע באיכות התמונה. השתמשו במינימום הכמות הדרושה של אגרוז לצורך ייצוב. - שמרו את הדגימה על קרח במהלך ההובלה. בצעו דגימה תדמיתית (Imaging) של הדגימה בתוך שעתיים מהקיבוע.
- העבירו את הדגימה למעבדה למיקרוסקופיה קונפוקלית.
- בצעו דגימה תדמיתית של הדגימה באמצעות מיקרוסקופיה קונפוקלית.
- השתמשו במיקרוסקופ קונפוקלי סטנדרטי עם סריקת לייזר וסורק רזוננטי. ניתן להשתמש במיקרוסקופ דו-פוטוני כאשר פלואורסצנציה עצמית (autofluorescence) מגבילה את איכות התמונה. השתמשו בעדשת אובייקטיב 20× מתוקנת עם מפתח נומרי של לפחות 0.80.
- הגדירו את ה-pinhole ל-1.0 Airy unit (AU) עבור כל ערוצי הדמיון.
- השתמשו בלייזר 48 nm עבור עירור של EGFP ובלייזר 594 nm עבור עירור של mCherry. שמרו על הספק לייזר נמוך מ-25 mW. כווננו את הגבר (gain) של הגלאי ואת הספק הלייזר באמצעות טבלת חיפוש (LUT) של מחוון טווח כדי למנוע רוויית פיקסלים וקיטוע שחור (black clipping). אל תעלו על הגבר גלאי של 80 V, שכן מתחים גבוהים יותר יוצרים רעש מוגבר.
- הגדירו את פרמטרי רכישת התמונה באופן הבא.
- השתמשו בגודל ווקסל של 0.42 × 0.42 × 6.0 µm (x, y, z) ברזולוציה של 1024 × 1024 פיקסלים ובמרווח Z-step של 6.0 µm.
- רכשו מחסניות תמונות ספקטרליות (spectral image stacks) לאורך כל הנפח הרלוונטי, שבדרך כלל משתרע על פני טווח רכישת Z-stack כולל של 90–120 µm (15–20 חתכים אופטיים).
- התחילו את רכישת התמונה במרחב הנוזלי מיד מעל פני הרקמה והמשיכו עד לעומק הדמיון המיועד כדי להבטיח כיסוי מלא של הדגימה.
- רכשו תמונות באמצעות גלאים פוטוניים בעלי רגישות גבוהה הפועלים במצב רכישה של 16-bit.
- רכשו תמונות באמצעות סריקת קו חד-כיוונית בתדר סריקה רזוננטי של 3.3 kHz (זמן שהייה של פיקסל של כ-1.58 µs) עם מיצוע קו (line averaging) של 8×.
6. ניתוח תמונות וכימות
- ויזואליזציה של תמונות באמצעות Fiji (גרסה 1.54p).
- פתחו את תמונות ה-z-stack הקונפוקאליות.
- מזגו צבעים כדי לראות את חפיפת הערוצים על ידי בחירה ב-Image > Color > Merge Channels.
- צרו היטל (projection) של מלוא טווח ה-z המכיל את אזור הדימות על ידי בחירה ב-Image > Stacks > Z Project. הזינו את טווח הפרוסות הרלוונטי, וכן את סוג ההיטל Max Intensity. פעולה זו תציג את ההיטל הדו-מדי של התמונה.
הערה: עבור דגי לרובה, ניתן ללכוד את כל ה-TME באמצעות מיקרוסקופיה קונפוקאלית. לכן, אנו ממליצים על שיטת הנורמליזציה והכימות הנפחית לניתוח ה-TME. עבור דגים בוגרים יותר, לא ניתן ללכוד את כל ה-TME במיקרוסקופיה קונפוקאלית; לכן, אנו ממליצים להשתמש בשיטת הנורמליזציה והכימות מבוססת השטח. על סמך הניתוח והכימות שלנו בדגי לרובה, שתי השיטות יכולות לספק תוצאות ביולוגיות מהימנות.
- נורמליזציה וכימות נפחית של ה-TME בדגי לרובה.
- כימות נפח הגידול באמצעות MATLAB R202b (הורידו את החבילה מאתר Matlab) וחבילת Bio-Formats (הורידו מאתר openmicroscopy).
- המשתמש מריץ סקריפט המבצע את המשימות הבאות:
- בקשה מהמשתמש לבחור קובץ .CZI מהמחשב שלו.
- קריאת התמונה וחילוץ הנתונים מהערוץ המכיל את אזור הגידול.
- זיהוי האזור בכל פרוסה המהווה את אזור הגידול באמצעות סף פלואורסצנציה (ניתן באמצעות קלט משתמש או למידת מכונה), תוך שמירה על אותו סף עבור כל התמונות המנותחות לצורך עקביות.
- שרטוט מתאר של אזור הגידול והצגת התמונה עם אזור הגידול המסומן בקו בתוך קולאז' של כל הפרוסות לאישור המשתמש.
- חישוב שטח אזור הגידול לכל פרוסה בפיקסלים והמרתו ל-mm2 באמצעות קנה המידה של התמונה והגדרות הדימות.
- הכפלת שטח אזור הגידול בעומק (השמור במטא-דאטה של הקובץ) כדי לקבל את הנפח של כל פרוסה.
- סיכום הערכים המחושבים של כל פרוסה כדי לקבל את הנפח הכולל של הגידול המדומם והאזור הסובב אותו ב-voxels או mm3.
- נרמול של שתי מדידות הנפח על ידי הכפלה ב-104 עבור נפח הגידול וב-106 עבור האזור הסובב. פעולה זו תיצור יחס הגיוני יותר בין מספר התאים לנפח במהלך הנורמליזציה.
- כימות מספר תאים.
- פתחו את תמונות ה-z-stack הקונפוקאליות.
- מזגו צבעים כדי לראות את חפיפת הערוצים על ידי בחירה ב-Image > Color > Merge Channels.
- צרו תצוגה תלת-מדית של מלוא טווח ה-z המכיל את אזור הדימות על ידי בחירה ב-Image > Stacks > 3D Project. בחרו ב-Brightest Point כשיטת ההיטל והגדירו הגדרות אחרות לערכים הרצויים.
- בשל מספר התאים הקטן, ספרו וטבלו את התאים ידנית, תוך הפרדה בין תאים הממוקמים בתוך גבול הגידול לתאים הממוקמים מחוץ לגבול הגידול.
הערה: תאים הנמצאים על גבול אזור הגידול נספרים כנמצאים מחוץ לו.
- נורמליזציה.
- עבור תאים חודרים בתוך אזור הגידול, חלקו את מספר התאים בנפח הגידול המנורמל. עבור תאים מחוץ לאזור הגידול, חלקו את מספר התאים מחוץ לנפח הגידול בנפח המנורמל של התמונה המלאה פחות נפח הגידול.
- צרו טבלה הכוללת את הכותרות הבאות: "זיהוי דג", "נפח גידול", "מספר תאים בתוך אזור הגידול", "מספר תאים מחוץ לאזור הגידול", "תאים מנורמלים בפנים", "תאים מנורמלים בחוץ".
- נורמליזציה וכימות של ה-TME מבוססת שטח.
- הגדירו את אזור העניין (ROI) של הגידול באמצעות כלי הבחירה Rectangle או Freehand כדי לשרטט את מתאר הגידול.
- הוסיפו את ה-ROI למנהל ה-ROI (ROI Manager) על ידי לחיצה על T או על ידי בחירה ב-Analyze > Tools > ROI Manager > Add.
- מדדו את שטח ה-ROI באמצעות Analyze > Measure.
- וודאו ש-Area נבחר תחת Set Measurements לפני רישום המדידות.
- שמרו את ה-ROI במנהל ה-ROI.
- החילו את אותו ROI על כל התמונות באמצעות ROI Manager > More > Multi-Measure.
- אין לשנות את גודל ה-ROI בין תמונות.
- ספרו ידנית תאים בתוך ה-ROI. אם מספר התאים גדול, ספרו את התאים באמצעות תוסף ה-Cell Counter על ידי בחירה ב-Plugins > Analyze > Cell Counter.
- סמנו כל תא שנספר על ידי לחיצה שמאלית כאשר מרכזו (centroid) נופל בתוך ה-ROI.
- גללו לאורך ה-z-stack כדי לאמת את זהות התא.
- הימנעו מספירת אותו תא יותר מפעם אחת לאורך מספר מישורי תמונה.
- ספרו תאים חודרים בנפרד אם הם נוגעים בגבול הגידול או נמצאים בתוכו.
- רשמו תאים חודרים כקטגוריה נפרדת גם כאשר מרכז התא נופל מחוץ ל-ROI.
- המירות את שטח ה-ROI מפיקסלים ל-mm2.
- השיגו את רוחב הפיקסל, גובה הפיקסל ומרווח צעד ה-Z מתוך Image > Properties.
- חישוב ספירות תאים מנורמלות.
- חלקו את ספירת התאים הגולמית עבור כל דג בערך שטח ה-ROI המתאים.
- רשמו את הערך שהתקבל כספירת תאים מנורמלת.
- למדידות צפיפות מוחלטת, חשבו את השטח הפיזי באמצעות ערכי כיול התמונה שהתקבלו מ-Image > Properties.
- חלקו את ספירת התאים הגולמית בשטח המחושב (mm2).
- רשמו את התוצאה כצפיפות תאים המבוטאת כ-cells/mm2.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
מהלך העבודה הניסיוני הכולל מוצג ב-איור 1. דגי זהב בוגרים מהקו Tg(cd4-1:mCherry) הורחבו עם דגי זהב מהקו Tg(dβh:MYCN;dβh:EGFP) כדי להפיק צאצאים טרנסגניים מורכבים, שבהם תאים CD4+ ותאים המבטאים dβh סומנו באופן דיפרנציאלי בפלואורסצנציית mCherry ו-EGFP, בהתאמה. עוברים נסרקו למסמנים הפלואורסצנטיים המתאימים ולאחר מכן נותחו באמצעות דימוי קונפוקאלי של תאים חיים במהלך ההתפתחות הלרבלית, או בדימוי קונפוקאלי לאחר קיבוע וחיתוך קריוגני בדגים מבוגרים יותר (
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
הפרוטוקול המתואר כאן משתמש בדגי zebrafish כמודל in vivo להדמיה וכמותית של תאי חיסון בתוך ה-TME. מספר גורמים הם קריטיים ליישום מוצלח של גישה זו. ראשית, בחירה ותיקוף נאותים של שילובי קווי zebrafish טרנסגניים הם חיוניים. יש לסרוק את הזחלים כדי לוודא את דפוסי הביטוי הפלואורסצנטיים הצפויים, ובמידת הצורך, לאשר זאת באמצעות גנוטיפינג. יש לוודא את ביטוי ה-Immune-reporter והאונקוגן לפני הניסוי כדי להבטיח השמה מדויקת של קבוצות הניסוי והביקורת. שנית, זיהוי מדויק של אזור העניין הוא קריטי במהלך הדמיה קונפוקלית. ניתן להשתמש בה...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים.
תודות
אנו מודים על תמיכה מהמכונים הלאומיים לבריאות (NIH; 1UL1TR01430, CA215059, ו-NS140967), מהאגודה האמריקאית לסרטן (RSG-17-204-01-TBG), מהקרן הלאומית למדע (191253), ומקרן Alex’s Lemonade Stand עבור H.F.; וממלגת Warren Alpert Distinguished Scholars עבור X.Q. תמיכה ב-Y.W. התקבלה מתוכנית הזדמנויות המחקר לתלמיבי תואר ראשון של אוניברסיטת בוסטון (UROP) ומתוכנית מלגות הקיץ של St. Baldrick’s. תמיכה ב-M.V. התקבלה מתוכנית מלגות הקיץ של St. Baldrick’s. תוכן מאמר זה הוא באחריותם הבלעדית של המחברים ואינו מייצג בהכרח את העמדות הרשמיות של ה-NIH.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| טיפ טעינת ג'ל 20 µL | MilliporeSigma | 1022-0600 | מש למניפולציה של זחלים |
| צמחים מלאכותיים | The Hidden Reef | 62874200 | העשרה אופציונלית להרבייה |
| מלבן (Bleach) | Fisher Scientific | 5037150 | מש לחיטוי עובריים |
| תוסף ספירת תאים (Cell Counter Plugin) | National Institutes of Health (NIH) | N/A | תוסף Fiji המשמש לכמות תאים |
| מחשב ומסך | HP | 2TB68A8#ABA | מש לרכישת תמונות וניתוחן |
| מיקרוסקופ קונפוקאלי | Zeiss | LSM 710 | מש לדימוי זחלים ומבוגרים |
| תבנית הקפאה (Cryomold), פלסטיק | Epredia | 2-050-160 | מש להטמעה ב-OCT |
| קריוסטט | Thermo Fisher Scientific | 95-64-0EC70 | מש לחיתוך קריוגני |
| קרח יבש | Fisher Scientific | N/A | מש להובלת דגימות |
| תוכנת Fiji | National Institutes of Health (NIH) | Version 1.54p | תוכנה לניתוח תמונות |
| רשת דקה | Carolina Biological | 651345 | משת לאיסוף עובריים |
| אינקובטור לדגים | VWR | 35960-056 | נשמר בטמפרטורה של 28.5°C |
| פינצטה (Forceps) | Fisher Scientific | 10-316B | משת לטיפול בדגימות |
| צלחת עם תחתית זכוכית | IBIDI | 81218-20 | משת לדימוי |
| אגרוז בנקודת התכה נמוכה | Prolab Supply | 9012-36-6 | מש לקיבוע זחלים ומבוגרים |
| מיכל הזדווגות (מיכל ראשי, מחיצה, חלק מסונן) | Carolina Biological | 161937 | מש להרביית דגי זברה |
| רוקר נוטטי (Nutating Rocker) | Midsci | R2D-30 | מש לקיבוע במהלך דגירה לילה |
| תרכובת OCT | Tissue-Tek | 4583 | תווך הטמעה לחיתוך קריוגני |
| פראפורמאלדהיד (PFA) | Sigma Aldrich | 158127-50G | מקבע |
| צלחת פטרי, פלסטיק | MilliporeSigma | BR4520 | משמשת לטיפול בעובריים ובזחלים |
| סליין בבופר פוספט (PBS) | Gibco | 14080-05 | מש להליכי שטיפה וקיבוע |
| פיפטת העברה מפלסטיק | Fisher Scientific | 50-98-10 | משת להעברת עובריים וזחלים |
| להב תער | Fisher Scientific | 12-640 | מש במהלך הכנת הדגימה |
| מד מוליכות | YSI | EC30ACC-04 | מש לאימות מליחות מי הרוטיפרים |
| רוטיפרים | The Hidden Reef | 16151603 | משים לגידול זחלים |
| נתר תיוסולפית | Thermo Fisher Scientific | AAA1762936 | מש לניטרול מלבן |
| סוכרוז | Fisher Scientific | S2590A | ריאגנט להגנה קריוגנית |
| טריקאין מתנסולפונאט | Western Chemical | NC0872873 | חומר הרדמה; נמכר על ידי Fisher Scientific |
| פינצטה (Tweezers) | Fisher Scientific | 12-0-12 | משת לטיפול בדגימות |
| מיקרוסקופ פלואורסצנציה אנכי | Leica | M165 | מש לסריקת פלואורסצנציה |
מקורות
- Anderson NM, Simon MC. The tumor microenvironment. Curr Biol. 2020;30(16):R921-R925.
- Kumagai S, Momoi Y, Nishikawa H. Immunogenomic cancer evolution: A framework to understand cancer immunosuppression. Sci Immunol. 2025;10(105):eabo5570.
- Keren L, et al. A structured tumor-immune microenvironment in triple negative breast cancer revealed by multiplexed ion beam imaging. Cell. 2018;174(6):1373-1387.e19.
- Gerner MY, et al. Histo-cytometry: A method for highly multiplex quantitative tissue imaging analysis applied to dendritic cell subset microanatomy in lymph nodes. Immunity. 2012;37(2):364-376.
- Pittet MJ, Weissleder R. Intravital imaging. Cell. 2011;147(5):983-991.
- Wienke J, et al. The immune landscape of neuroblastoma: Challenges and opportunities for novel therapeutic strategies in pediatric oncology. Eur J Cancer. 2021;144:123-150.
- Spitzer MH, Nolan GP. Mass cytometry: Single cells, many features. Cell. 2016;165(4):780-791.
- Roy D, et al. Zebrafish—A suitable model for rapid translation of effective therapies for pediatric cancers. Cancers (Basel). 2024;16(7):1361.
- White RM, et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2008;2(2):183-189.
- MacRae CA, Peterson RT. Zebrafish as tools for drug discovery. Nat Rev Drug Discov. 2015;14(10):721-731.
- Miao KZ, et al. Tipping the scales with zebrafish to understand adaptive tumor immunity. Front Cell Dev Biol. 2021;9:660969.
- Povoa V, et al. Innate immune evasion revealed in a colorectal zebrafish xenograft model. Nat Commun. 2021;12(1):1156.
- Wang J, et al. Novel mechanism of macrophage-mediated metastasis revealed in a zebrafish model of tumor development. Cancer Res. 2015;75(2):306-315.
- Loveless R, Shay C, Teng Y. Unveiling tumor microenvironment interactions using zebrafish models. Front Mol Biosci. 2020;7:611847.
- Dee CT, et al. CD4-transgenic zebrafish reveal tissue-resident Th2- and regulatory T cell-like populations and diverse mononuclear phagocytes. J Immunol. 2016;197(9):3520-3530.
- Murali Shankar N, et al. Preclinical assessment of CAR-NK cell-mediated killing efficacy and pharmacokinetics in a rapid zebrafish xenograft model of metastatic breast cancer. Front Immunol. 2023;14:1254821.
- Tan KE, et al. LMO1 expression in neuroblastoma cells reprograms tumor-associated macrophages to promote metastasis. iScience. 2026;29(3):115144.
- Fior R, et al. Single-cell functional and chemosensitive profiling of combinatorial colorectal therapy in zebrafish xenografts. Proc Natl Acad Sci U S A. 2017;114(39):E8234-E8243.
- Fazio M, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Qin X, et al. CKLF instigates a “cold” microenvironment to promote MYCN-mediated tumor aggressiveness. Sci Adv. 2024;10(11):eadh9547.
- Ludin A, et al. CRATER tumor niches facilitate CD8+ T cell engagement and correspond with immunotherapy success. Cell. 2025;188(24):6720-6736.e26.
- Zhu S, et al. LMO1 synergizes with MYCN to promote neuroblastoma initiation and metastasis. Cancer Cell. 2017;32(3):310-323.e5.
- Tao T, et al. The pre-rRNA processing factor DEF is rate limiting for the pathogenesis of MYCN-driven neuroblastoma. Oncogene. 2017;36(27):3852-3867.
- Zimmerman MW, et al. MYC drives a subset of high-risk pediatric neuroblastomas and is activated through mechanisms including enhancer hijacking and focal enhancer amplification. Cancer Discov. 2018;8(3):320-335.
- Dankert EN, Look AT, Zhu S. Unraveling neuroblastoma pathogenesis with the zebrafish. Cell Cycle. 2018;17(4):395-396.
- Langenau DM, et al. In vivo tracking of T cell development, ablation, and engraftment in transgenic zebrafish. Proc Natl Acad Sci U S A. 2004;101(19):7369-7374.
- Lam SH, et al. Development and maturation of the immune system in zebrafish, Danio rerio: A gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 2004;28(1):9-28.
- Zhen A, et al. CD4 ligation on human blood monocytes triggers macrophage differentiation and enhances HIV infection. J Virol. 2014;88(17):9934-9946.
- Ferrero G, et al. The macrophage-expressed gene (mpeg)1 identifies a subpopulation of B cells in the adult zebrafish. J Leukoc Biol. 2020;107(3):431-443.
- Hall C, et al. The zebrafish lysozyme C promoter drives myeloid-specific expression in transgenic fish. BMC Dev Biol. 2007;7:42.
- Lorenzini F, et al. Melanoma innervation, noradrenaline and cancer progression in zebrafish xenograft model. Cell Death Discov. 2025;11(1):260.
- Ramakrishnan G, et al. Real-time imaging reveals a role for macrophage protrusive motility in melanoma invasion. J Cell Biol. 2025;224(2):e202403096.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב