אנו מתארים צינורות הדמיה קונפוקלית ומעקב המיושמים על שתי אסטרטגיות מדווחים: אורגנואידים פסיפסיים לפתרון התנהגות תאים בודדים ואורגנידים של מדווח גורל למעקב אחר מעברי תאים בבני אדם ועכברים.
מאמר שיטה
הדמיה של תאים חיים ומעקב תאים בודדים למעקב אחר דינמיקת שיבוטים ומעברי גורל באורגנידים במעי אדם ועכברים
* These authors contributed equally
במאמר זה
סיכום
תקציר
האפיתל המעי עובר התחדשות מהירה דרך חלוקת תאי גזע, התמיינות תאים ונדידה. הבנת האופן שבו תאים בודדים מתחייבים לגורלות מסוימים וכיצד דינמיקות קלונליות מתפתחות ברקמה זו דורשת שיטות שתופסות התנהגות תאית בזמן אמת וברזולוציה של תא יחיד. אורגנואידים מעיים משחזרים תכונות מרכזיות של ארגון עצמי אפיתל וגיוון סוגי תאים, מה שהופך אותם למערכת עוצמתית לחקר תהליכים אלו בסביבה מבוקרת. כאן אנו מציגים פרוטוקול להדמיית תאים חיים קונפוקליים ארוכת טווח (עד 72 שעות) ומעקב תאים בודדים באורגנואידים במעי אנושי ועכברים, המבוסס על שתי אסטרטגיות מדווח משלימות. ראשית, אנו מתארים את יצירת אורגניזאידים פסיפסיים על ידי שילוב אוכלוסיות תאים מתויגות באופן שונה, מה שמאפשר רזולוציה של תאים בודדים של מדווחים ממוקדי ממברנה ושלד ציטוסקלטלי שלא ניתן לייחס אותם לתאים בודדים באפיתל צפוף. שנית, אנו משתמשים במדווחי גורל ספציפיים לסוג תא (MUC2 לתאי גביע ו-DEFA5 לתאי פנת') כדי לעקוב בזמן אמת אחר מעברים של סוגי תאים מופרשים. הפרוטוקול כולל תרבית אורגנואידים, יצירת אורגנואידים מוזאיקים, הכנת דגימות עם אסטרטגיות למזעור פוטוטוקסיות, רכישת תמונה במשך מספר ימים, ומעקב תא יחיד חצי-אוטומטי באמצעות OrganoidTracker, המשחזר מסלולי תאים וקווים לאורך זמן. למרות שהודגם באורגנואידים במעי, מסגרת זו ניתנת להתאמה בקלות למערכות אורגנואידים אפיתליות אחרות, כולל מודלים של קיבה, לבלב ומעי גס, ומרחיבה את השימושיות שלה ללימודי ביולוגיה אפיתלית, הומאוסטזיס ומחלות.
מבוא
אפיתל המעי הוא אחד הרקמות המתחדשות במהירות בגוף, כאשר רוב התאים מוחלפים תוך שלושה עד חמישה ימים. תחלופה רציפה זו נשמרת על ידי תאי גזע חיוביים עם קולטני G 5 (Lgr5) העשירים בלוצין, השוכנים בבסיס הקריפטות של המעיים, והם יוצרים אבות מגברים שממינים לסוגי התאים המיוחדים של רירית המעי כאשר הם נודדים לכיוון קצה הווילוס1. השושלות המובחנות העיקריות כוללות אנטרוציטים סופגים, תאי גביע מפרישים ריר, תאי מעיים מייצרי הורמונים, ותאי פנת' אנטימיקרוביאליים2. כיצד תאים בודדים מתחייבים לגורלות מסוימים, כיצד התנהגות קולקטיבית של התאים מתפתחת מתוך דינמיקת תאים בודדת, וכיצד מושג תיאום ברמת הרקמה – נותרו שאלות יסודיות בביולוגיה של המעי. מענה על שאלות אלו דורש גישות ניסיוניות שתופסות התנהגות תאית ברזולוציה של תא יחיד, בזמן אמת, ועל פני טווחי זמן הרלוונטיים להתמיינות והגירה3.
אורגנואידים במעי, מבנים תלת-ממדיים (תלת-ממדיים) המתארגנים עצמית שגדלים מתאי גזע בודדים או קטעי רקמה, משחזרים היבטים מרכזיים של ארכיטקטורת האפיתל, ארגון עצמי וגיוון סוגי תאים 4,5,6. מאז התפתחותם, אורגנידים הפכו לכלי חיוני לחקר ביולוגיה במעי, מודלים של מחלות ותגובות תרופות. גם אורגנואידים של עכברים וגם אורגנואידים של המעי האנושי יכולים להישמר לטווח ארוך בתרבית, לעבור שינוי גנטי באמצעות גישות מבוססות CRISPR (חזרות פלינדרומיות קצרות באשכול באופן קבוע), ולשלב אותם למבני פסיפס על ידי ערבוב תאים בודדים מפורקים מגנוטיפים שונים או רקעי דיווח שונים לפני החזרה לתמצית ממברנת הבסיס 7,8,9. אורגנואידים פסיפסיים משלבים תאים מרקעים גנטיים או פלואורסצנטיים שונים בתוך מבנה יחיד, כך שהאוכלוסיות חוות אותות נישה והקשר מכני זהים וניתן להשוות אותם לבקרות פנימיות מובנות. יכולת הטיפול הגנטית הזו הופכת אותם למתאימים במיוחד למחקרי הדמיה חיה שדורשים תיוג מדויק של אוכלוסיות תאים ספציפיות 6,10,11,12. מדווחים שמסמנים תאים לסירוגין, כמו סימני גורל ספציפיים לסוג תא, מייצרים תאים פלואורסצנטיים מבודדים שניתן לעקוב ולנתח אותם בנפרד באמצעות שיטות מעקב חד-תאיות. עם זאת, מתעורר אתגר מתמשך כאשר חלבונים ממוקליים בממברנה וחלבונים ציטוסקלטליים, כגון מחברי תאים או מיוסין-II קורטיקלי, מתויגים באופן אחיד על פני האפיתל. האותות שלהם אינם יכולים להיות מוקצים לתאים בודדים כי תאים סמוכים חולקים את הגבולות שלהם ברזולוציית מיקרוסקופיה קונפוקלית. אורגנואידים פסיפסיים מתגברים על מגבלה זו: כאשר תא המבטא מדווח פלואורסצנטי מוקף בשכנים לא מסומנים, ניתן לייחס באופן חד-משמעי את אותות הממברנה והשלד התא היחיד שלו, מה שמגלה כיצד הוא משנה את שלד התא שלו במהלך נדידה, חלוקה או אקסטרוזיה 9,13. התאמת יחס התיוג הופכת את התצוגה הזו, ומאפשרת ללכוד את תגובת השכונה סביב תא לא מסומן. מדווחי H2B גרעיניים של Histone כמו H2B-mCherry או H2B-iRFP משמשים ככלים לזיהוי דפוס הפסיפס ואיתור קבוצות תאים אינפורמטיביות לניתוח. מעבר לרזולוציה של תא יחיד, אורגנואידים מוזאיים מאפשרים גם השוואות כשירות ישירות בין גנוטיפים: מכיוון ששתי האוכלוסיות חולקות את אותה נישה, הבדלים בתוחלת החיים של התאים או בקצב האקסטרוזיה מספקים קריאה מבוקרת פנימית של כושר תחרותי 9,14,15.
עם זאת, דימות תאים חיים של אורגנואידים מציב אתגרים טכניים ספציפיים. הגיאומטריה התלת-ממדית שלהם דורשת מיקרוסקופיה קונפוקלית או יריעת אור לחתך אופטי 16,17,18,19. לכידת תהליכים איטיים כמו התמיינות והגירה דורשת משך דימות של 24 שעות ומעלה, עם אופטימיזציה מדויקת של עוצמת הלייזר, זמן החשיפה וטווחי ההדמיה כדי להגביל את הפוטוטוקסיות16,18. מטריצת ההטמעה ומדיום התרבית חייבים לתמוך בבריאות האורגניים תוך שמירה על התאמה לאופטיקה של המיקרוסקופ. יתרה מזאת, חילוץ מידע כמותי על תא יחיד ממאגרי נתונים תלת-ממדיים צפופים דורש כלים חישוביים ייעודיים לזיהוי וקישור תאים במאות נקודות זמן. מעבר למיקרוסקופיה קונפוקלית ומיקרוסקופיית יריעות אור, מיקרוסקופיה רב-פוטונית ומיקרוסקופיית הדמיה פלואורסצנטית לאורך החיים (FLIM) מציעות יכולות נוספות כגון הפחתת פוטוטוקסיות וקריאות מטבוליות ללא תוויות20,21, אם כי מיקרוסקופיה קונפוקלית נשארת הפלטפורמה הנגישה והגמישה ביותר להדמיה חיה רב-צבעונית של אורנואידים מסומנים פלואורסצנטית.
פותחו מספר גישות למעקב אחר תאים באורגנידים, החל מהערות ידניות ועד צינורות מבוססי למידה עמוקה חצי-אוטומטיים ואוטומטיים לחלוטין22. OrganoidTracker הוא כלי תוכנה חצי-אוטומטי המשתמש ברשתות עצביות לזיהוי גרעינים בערימות קונפוקליות תלת-ממדיות ומקשר זיהויים בין נקודות זמן כדי לשחזר מסלולי תאים ועצי שושלת 3,23. הוא אומת למעקב אחר מאות תאים לאורך מספר ימים באורגנידים במעי ומספק מסגרת גמישה לכימות חלוקת תאים, נדידה, התמיינות ואירועי אקסטרוזיה. תמיכתה בהדמיה רב-ערוצית הופכת אותה לתואמת ישירות הן לאורגנואידים פסיפסיים הנושאים דיווחים גרעיניים מובחנים ספקטרלית וגם לאורגנואידים המבטאים סימני גורל ספציפיים לסוג התא.
בפרוטוקול זה, אנו מתארים תהליך עבודה מודולרי המשלב הדמיה קונפוקלית של תאים חיים ומעקב תא יחיד עם שתי אסטרטגיות מדווח משלימות באורגניזמים במעי אנושי ובעכברים. האסטרטגיה הראשונה משתמשת באורגנידים של עכברים מוזאיים שנוצרים על ידי ערבוב שתי אוכלוסיות תאים הנושאות מדווחי H2B גרעיניים שונים (H2B-mCherry ו-H2B-iRFP) ביחסים מוגדרים (איור 1A). אוכלוסייה אחת נושאת בנוסף כתב משותף שמעניין אותו, כמו Myosin-II-mNeonGreen, שאות ממברנה מקומי ניתן לייחס באופן חד-משמעי לתאים בודדים כאשר הם מוקפים בשכנים הנושאים רק את התווית הגרעינית השנייה. דבר זה מאפשר תצפית ישירה כיצד תא יחיד משנה את שלד התא שלו במהלך נדידה, חלוקה או אקסטרוזיה בתוך רקמה שלמה. האסטרטגיה השנייה משתמשת במדווחי גורל ספציפיים לסוג תא באורגניזמים במעי האדם, Mucin 2 (MUC2) לסימון תאי גביע ו-Defensin Alpha 5 (DEFA5) לתיוג תאי Paneth, המאפשר ניטור בזמן אמת של מעברים בין סוגי תאים מופרשים (איור 1B). יחד, שתי המערכות הללו ממחישות כיצד ניתן להתאים צינור דימות ומעקב משותף לשאלות ביולוגיות מגוונות פשוט על ידי החלפת אסטרטגיית המדווח (איור 1C,D). הסעיפים הבאים מספקים את כל השלבים הנדרשים ליישום תהליך עבודה זה, מתרבות אורגנואידים ועד יצירת פסיפסים, רכישת תמונה וניתוח כמותי של תא יחיד.
פרוטוקול
כל הניסויים שכללו בעלי חיים בוצעו בהתאם להנחיות מוסדיות שאושרו על ידי הוועדה המרכזית לניסויים בבעלי חיים (CCD) של ממשלת הולנד וגוף רווחת בעלי החיים של KNAW/מכון הוברכט (IvD). אורגנואידים של המעי האנושי נוצרו מרקמת מטופל שהושגה במרכז הרפואי האוניברסיטאי באוטרכט (UMCU) בהסכמת מטופל מדעת. המחקר אושר על ידי ועדת האתיקה של UMCU (אוטרכט, הולנד) ונערך בהתאם להצהרת הלסינקי ולחוק ההולנדי.
1. תרבית אורגנית ותחזוקה
- הכינו מדיום גדילה של גורם גדילה אפידרמלי, נוגין ו-R-ספונדין (ENR) לאורגנואידים של מעי עכברים (טבלה 1).
- הכין מדיום התרחבות (טבלה 2), מדיום דפוס (טבלה 3), ומדיום הבשלה (טבלה 4) עבור אורגנואידים במעי האדם.
- הפשיר בקבוקון של תמצית ממברנת בסיס מופחתת עם גורם גדילה (BME) על קרח במשך הלילה לפני השימוש.
- תמיד תשמור את ה-BME על הקרח כדי למנוע ג'לציה מוקדמת.
- אורגנידי מעי של עכברים בתרבית בתווך ENR המוטמע ב-BME, עוברים כל 7 ימים ביחס פיצול של 1:4 ל-1:8 באמצעות דיסוציאציהמכנית 4.
- תרבית אורגנואידים של המעי האנושי במדיום התרחבות המוטמע ב-BME, עוברים כל 7–10ימים.
הערה: לצורך התרחבות או התאוששות של אורגנואידים עכבריים לאחר ניתוק תא יחיד, תרבית בתווך ENR הושלמה במדיום מותנה ל-Wnt (בהשלמה של 10 מ"מ ניקוטינמיד ו-10 מיקרומום Y-27632 דיהידרוכלוריד) במשך 2–3 הימים הראשונים לקידום צמיחת אורגנואידים ויכולת חיות. - כדי לעודד התמיינות של אורגנואידים במעי האדם, מגדלים אורגנואידים ברצף בתווך דפוס במשך 14 ימים, ואחריהם מדיום הבשלה במשך 7–10 ימים6.
הערה: לפרוטוקולים מפורטים להתבססות ותרבות אורגנואידים, ראו את סאטו ואח' 4 עבור אורגנואידים במעי עכברים, סאטו ואח' 5 ו-He ואח'6 עבור אורגנואידים במעי האדם.
2. יצירת אורגנידים טרנסגניים במעי
- אורגנואידים למעבר כדי להבטיח תרביות מתרבות פעילה בזמן האלקטרופורציה: שלושה ימים לפני האלקטרופורציה עבור אורגנואידים של עכברים וחמישה עד שבעה ימים לאורגנואידים אנושיים. לכל תגובת אלקטרופורציה, השתמשו באורגנידים מ-4–8 בארות של לוח של 24 בארות (כ-200–400 מיקרוליטר של אורגנואידים המכילים BME, מה שמניב כ-500–1,000 אורגנואידים). הפרדת אורגנואידים לתאים בודדים באמצעות תגובת דיסוציאציה דמוית טריפסין רקומביננטית למשך 5–10 דקות בטמפרטורה של 37 מעלות צלזיוס.
- יצירת קווי אורגנואיד מדווח גרעיניים על ידי אלקטרופורציה של מבנה ביטוי מבוסס טרנספוזון (p2T-H2B-mCherry-IRES-BlastR או p2T-H2B-iRFP-IRES-PuroR; 5 מיקרוגרם כל אחד) יחד עם וקטור טרנספוזאז (p2T-CAG-mT2TP; 5 מיקרוגרם) לתאים המנותקים באמצעות מערכת אלקטרופורציה בהתאם לפרוטוקולים24.
הערה: כמויות ה-DNA הפלסמידיות המוגדרות בשלב 2.2 (5 מיקרוגרם לכל מבנה) מותאמות לכ-500–1,000 אורגנואידים בכל תגובת אלקטרופורציה. במהלך האלקטרופורציה, יש לוודא שההתנגדות הנמדדת על ידי האלקטרופורטור נמצאת בטווח של 25–55 Ω. התנגדות מתחת ל-25 Ω מצביעה על בעיות בצפיפות תאים מופרזת או במוליכות בופר; התנגדות מעל 55 Ω מצביעה על חוסר מספיק במספר תאים או חיוניות נמוכה. כוון את ריכוז התא או החלף את בופר האלקטרופורציה אם ההתנגדות יוצאת מהטווח הזה. - לאחר האלקטרופורציה, תאי תרבית בתווך מותאם ל-Wnt הושלמו ב-10 מיקרומום Y-27632 דיהידרוכלוריד במשך 3 ימים לתמיכה בהתאוששות התאים ובתצורה אורגנואידית.
- התחל בבחירת אנטיביוטיקה למבנים של ביטוי יתר (פורומיצין (2 מיקרוגרם/מ"ל) לקווי H2B-iRFP או בלסטיצידין (10 מיקרוגם/מ"ל) לקווי H2B-mChery) שבוע לאחר האלקטרופורציה כדי לאפשר התאוששות מספקת לפני לחץ הבחירה.
- שמור על בחירה רציפה במשך שבועיים.
- בחרו שיבוטים אורגנואידיים פלואורסצנטיים תחת מיקרוסקופ סטריאו המצויד באפיפלואורסצנציה באמצעות מערכות מסננים מתאימות.
- הפרדו שיבוטים נבחרים לתאים בודדים באמצעות תגובת דיסוציאציה דמוית טריפסין רקומביננטי והתרחבו בתווך מותאם Wnt למשך שבועיים לפני המעבר למדיום ENR.
- אימות קווי דיווח על ידי אישור מיקום גרעיני אחיד של אות הפלואורסצנט והביטוי היציב בין מעברים.
- ודאו שהכנסת המדווח אינה משנה את קצב הגדילה האורגנית, המורפולוגיה או יכולת ההבחנה על ידי השוואה לקווים הוריים לא מסומנים.
- כדי לאפשר קריאות של חלבונים מקומיים בממברנה או חלבונים ציטוסקלטליים, ניתן לבטא יחד דיווח פלואורסצנטי מעניין (למשל, Myosin-II המתויג ב-mNeonGreen) באותו קו אורגנואידי כמו המדווח הגרעיני H2B.
הערה: קווי אורגנואיד של כתב H2B מבוססים יכולים להיות מורחבים ולשמור בקריופר. קווים אלו משמשים כבסיס רב-שימושי לניסויים פסיפסיים במורד הזרם: ניתן להכניס מדווחים נוספים או מוטציות גנטיות לאותו רקע מסומן ב-H2B, וליצור ספריית קווים התואמת את תהליך הפסיפס המתואר בסעיף 4.
3. יצירת אורגנואידים של מדווחי גורל אנדוגניים
- הפיק את מדווח ה-knock-in הפלואורסצנטי MUC2 באורגנואידים של המעי האנושי באמצעות אינטגרציה ממוקדת בלתי תלויה בהומולוגיה בתיווך CRISPR (CRISPR-HOT) כפי שמתואר ב-Artegiani ואחרים.
- הפיק את דיווח ה-DEFA5 הפלואורסצנטי באורגנואידים של המעי האנושי באמצעות תיקון מונחה הומולוגיה (HDR) כפי שמתואר ב-He ואחרים.
הערה: CRISPR-HOT (שלב 3.1) ו-HDR (שלב 3.2) מייצרים דיווחים אנדוגניים שנכנסים. - אימות ביטוי המדווח על ידי אישור קולוקליזציה של אות פלואורסצנטי עם צביעת נוגדנים עבור MUC2 ו-DEFA5, בהתאמה.
- ודאו שהכנסת המדווח אינה משנה את הצמיחה האורגנית, המורפולוגיה או יכולת ההתמיינות.
הערה: הגישה של CRISPR-HOT ישימה באופן רחב מעבר לסמני גורל ויכולה לשמש ליצירת מדווחים פלואורסצנטיים אנדוגניים לחלבונים מקומיים בממברנה וחלבונים תאי שלד כמו Myosin-II, E-cadherin או ZO-1 באורגנידים אנושיים ועכברים.
4. יצירת אורגניזאידים פסיפסיים
- שלושה ימים לפני יצירת מוזאיקה אורגנואידית, העבירו את שני קווי האורגנואיד לתוך מדיום מותאם ל-Wnt כדי לקדם התרחבות תאי גזע ולמקסם את חיוניות התא במהלך דיסוציאציה.
- ביום יצירת הפסיפס, יש לצפות כל באר של לוח עם 48 בארות ב-20 מיקרוליטר של 5% BME ב-DMEM כדי לספק שכבת דבק דקה לחיבור תאים. דגרו בטמפרטורה של 37 מעלות צלזיוס למשך שעה.
- ממיסים את ה-BME על ידי הוספת מדיום בסיס קר ואספו אורגנואידים מכל קו בנפרד בצנטריפוגה ב-300 × גרם למשך 5 דקות בטמפרטורה של 4 מעלות צלזיוס. הפרדת אורגנואידים לתאים בודדים על ידי דגירה בתמיסת ניתוק תאים אנזימטית למשך 5–7 דקות באמבט מים בטמפרטורה של 37 מעלות צלזיוס. הפיפט על המתלה שוב ושוב באמצעות פיפטה P1000 כדי לסייע בניתוק מכני. מנטרים את הדיסוציאציה תחת מיקרוסקופ שדה בהיר ועצרו את התגובה על ידי הוספת תווך בסיסי קר עודף כאשר נראים בעיקר תאים בודדים או שברי אורגנואיד קטנים של 2–10 תאים.
- תאי פלט בצנטריפוגציה ב-300 × גרם למשך 5 דקות בטמפרטורה של 4 מעלות צלזיוס. אופציונלי: סינון כל תליון תא דרך מסננת תאים של 40 מיקרון להסרת גושים, פסולת תאית וחתיכות ג'ל BME.
הערה: דבר זה מבטיח תלות תאים נקייה, משפר את ההומוגניות של הפסיפס ומפחית את הסיכון לכתמים גדולים של שיבוטים הנובעים מאשכולות תאים שנוצרו מראש. כדי ליצור גבולות גדולים יותר בין אוכלוסיות תאים, לא מומלץ לסנן. - הערך את חיוניות התאים וספירת תאים בריאים באמצעות הדרה של טרייפן בלו. משלבים את שתי אוכלוסיות התאים ביחס הרצוי (למשל, 1:1, 1:3 או 1:9) לסך של 300,000 תאים ב-500 מיקרוליטר של מדיום מותאם ל-Wnt עם תוספת של 10 מיקרומום Y-27632 דיהידרוכלוריד. ערבבו היטב על ידי פיפטינג עדין.
הערה: יחס הערבוב קובע את סוג הניתוח: יחס נמוך בין מדווח לא-מתויג (למשל, 1:9) מבודד תאים מסומנים בודדים בין שכנים לא מתויגים, ומאפשר ייחוס חד-משמעי של אותות ממברנה ושלד לתאים בודדים. חלק גדול מתאי המדווח (למשל, 9:1) הופך את ההשקפה הזו, ומאפשר ללכוד את תגובת השכונה סביב תא לא מסומן. - זרע את מתלי התא בלוח מצופה עם 48 בארות. צנטריפוגה את הפלטה ב-200 × גרם למשך 5 דקות בטמפרטורת החדר ודגרה ב-37 מעלות צלזיוס.
- לאחר 24 שעות, ניתוק מכני של שכבת התא על ידי גירוד עם קצה פיפטה P200 ושטיפה יסודית עם מדיום בסיס קר או שימוש במגרד תאים. אספו את האגרגטים המנותקים באמצעות צנטריפוגה ב-300 × גרם למשך 3 דקות בטמפרטורה של 4 מעלות צלזיוס ללא גזירה מכנית נוספת. החזירו את האגרגטים ב-BME ובלוח לנושאי דגימות תואמים להדמיה. תרבות במדיום ENR.
הערה: שלב האגרגציה הדו-ממדי ללא BME הוא קריטי ליצירת אורגנידים פסיפסיים מעורבים היטב עם התפלגות מלח ופלפל בין שתי אוכלוסיות התאים. - עבור אורגנואידים פסיפסיים אנושיים, יש להחליף את המדיום וה-ENR במונחי Wnt במדיום ההתרחבות האנושי (טבלה 2); כל שאר השלבים נותרו ללא שינוי.
5. הכנת דגימות להדמיה קונפוקלית של תאים חיים
- השתמשו בתאי הדמיה עם תחתית זכוכית (למשל, לוח זכוכית עם 24 בארים עם כיסוי בורוסיליקט #1.5 בעל ביצועים גבוהים) כדי להבטיח תאימות אופטית עם מטרות קונפוקליות בעלות מפתח מספרי גבוה (NA).
- ציפוי את המתלה האורגני-BME ככיפה דקה (≤30 מיקרוליטר לבאר) קרוב למרכז תחתית הזכוכית. לפני המעבר ל-37 מעלות צלזיוס, דגרו את הפלטה בטמפרטורה של 4 מעלות צלזיוס למשך 5–10 דקות כדי לאפשר לאורגנואידים לשקוע לקרקעית הזכוכית בכוח הכבידה לפני ג'לציה של BME.
הערה: זה מפחית את מרחק העבודה בין האורגנואיד לכיסוי הכיסוי, וממקסם את איכות התמונה עם מיקרוסקופים הפוכים. - העבר ל-37 מעלות צלזיוס ואפשר ל-BME להתייצב למשך 20–30 דקות. לאחר מכן מוסיפים 500 מיקרוליטר של מדיום גדילה מחומם מראש לכל 24 בארות. אפשרו לאורגנואידים להתאושש ולקבוע את המורפולוגיה שלהם לפחות 24 שעות לאחר השריון לפני תחילת הדמיה חיה.
- כדי למזער אידוי במהלך הדמיה ארוכת טווח, השתמשו בתא דגירה לחות-שלב עליון. הנח את הדגימה בשלב המיקרוסקופ 1–2 שעות לפני ההדמיה כדי לאפשר איזון תרמי ולמזער את ה-Z-drift במהלך הרכישה.
- ודא שהאינקובטור בראש הבמה שומר על 37 מעלות צלזיוס ו-5% CO₂ לאורך כל תקופת ההדמיה.
- אורגנואידים נבחרים הממוקמים קרוב לקרקעית הזכוכית (≤50 מיקרון מהכיסוי) עם מורפולוגיה בריאה: ארכיטקטורה ברורה של נבטיית קריפטה עבור אורגנואידים של עכברים או מבנה ציסטי/נבוט עבור אורגנואידים אנושיים. הימנעו מאורגנידים הממוקמים עמוק ב-BME, שכן איכות האות ודיוק המעקב יורדים משמעותית עם עומק הדימות.
הערה: נוכחות פנול אדום הן ב-BME והן במדיום התרבית אינה גורמת לאוטופלואורסצנציה משמעותית או לארטיפקטים של הדמיה, שכן המדווחים הפלואורסצנטיים המשמשים בפרוטוקול זה (H2B-mCherry, H2B-iRFP, MUC2-mNeonGreen ו-DEFA5-dsRed) מפיקים יחס אות לרעש מספק לזיהוי גרעיני אמין ומעקב תא יחיד. עם זאת, בניסויים עם מדווחים חלשים יותר או תעלות פלואורסצנטיות נוספות, מעבר ל-BME ותרבית ללא פנול אדום עשוי להיות מועיל.
6. רכישת דימוי קונפוקלי
- השתמש במיקרוסקופ קונפוקלי סורק לייזר המצויד בדוגמת שלב (37°C, 5% CO₂), מנוע Z ממונע וקווי לייזר המתאימים לפלואורופורים בשימוש.
- בחר את המטרה לפי דרישת הניסוי. השתמשו באובייקטיב הטבילה במים 40×/1.10 NA עם מרחק עבודה של 0.62 מ"מ כדי לצלם עמוק יותר לתוך ה-BME. השתמש במטרה אווירית 20×/0.75 NA עם מרחק עבודה של 0.62 מ"מ לרכישת רב-אורגנואיד או שדה ראייה גדול.
הערה: NA גבוה משפר את איסוף האור, הרזולוציה והחתך האופטי, ולכן אובייקטיביית הטבילה במים 40×/1.10 מפרטת פרטים עדינים עמוק יותר בתוך ה-BME, בעוד שההגדלה הגבוהה מגבילה את השדה לאחד או כמה אורגנואידים. המטרה האווירית 20×/0.75 אוספת פחות אור וקטעים פחות צפופים, אך השדה הרחב שלה תופס מספר אורגנואידים ברכישה אחת, מה שהופך אותה לבחירה טובה יותר להדמיה בקנה מידה אוכלוסייה או רב-מיקומים. - אפשר לדגימה ולמדיום הטבילה לאזן תרמית בשלב המיקרוסקופ לפחות 1–2 שעות לפני תחילת הרכישה (שלב 5.8).
- אמת את הפוקוס בכל המיקומים בנקודות הזמן הראשונות ותקן ידנית כל מיקום שמראה דריפט לפני שהוא מצטבר.
הערה: אובדן פוקוס וסטיית תמונה הם אתגרים נפוצים במהלך רכישות קונפוקליות ארוכות טווח ויש לנהל אותם באופן פעיל. למטרות טבילה במים, השתמש בשמן טבילה עם מקדם שבירה תואם למים (n = 1.333) במקום למים עצמם, ובכך מבטלת אידוי תוך שמירה על התכונות האופטיות של טבילה במים. - הגדר הגדרות עירור ופליטה לכל פלואורופור. כדי למזער דימום צולב, יש לרכוש ערוצי פלואורסצנציה ברצף במקום בו-זמנית, כדי להבטיח שרק קו לייזר אחד פעיל בכל פעם. השתמש בסריקה רציפה דו-כיוונית כדי להפחית את זמן הרכישה הכולל לנקודת זמן תוך שמירה על הפרדת ערוצים.
הערה: כללו אורגנואידים בקרה בצבע יחיד המבטאים רק מדווח אחד כדי לכמת את הדימום הצלב השארי וליישם תיקוני פירוק ספקטרליים במידת הצורך. - עבור אורגנואידים של פסיפס עכברים דו-צבעוניים, השתמשו בגירוי 561 ננומטר ל-H2B-mCherry וב-638 ננומטר ל-H2B-iRFP670 עם מסנני פליטה מתאימים למזעור דליפת ספקטרום. עבור אורגנואידים במעי האדם, השתמשו בגירוי 488 ננומטר ל-MUC2-mNeonGreen וב-561 ננומטר ל-DEFA5-dsRed.
הערה: צבעים גרעיניים חיים כמו Hoechst 33342 או צבע DNA פלואורסצנטי אדום רחוק יכולים להחליף את הסמן הגרעיני הגנטי, שכן צינור הגילוי פועל על אות גרעיני ולא על פלואורופור ספציפי. יש לשים לב שצבעים הקשרים ל-DNA עלולים להפוך לפוטוטוקסיים ולאנטי-רבלרטיביים תחת תאורה חוזרת, במיוחד Hoechst, שיש לו עירור ~400 ננומטר, ולכן שמרו על ריכוזים נמוכים ומעדיפים צבעים אדומים קשיחים בעלי פוטוטוקסיות נמוכה להדמיה חיה ממושכת. - הגדר את מחסנית ה-Z כ-25–35 חתכים אופטיים במרווחים של 2 מיקרון. קבעו מרווח זמן ל-5–10 דקות לאורגנואידים במעי עכברים ו-15–30 דקות לאורגנואידים אנושיים.
הערה: לגילוי גרעיני אמין באמצעות OrganoidTracker, אנו ממליצים על ההגדרות הבאות כנקודת התחלה: 40x מטרה במים, מהירות סריקה 600 הרץ, גורם זום 0.75×, מה שמביא לגודל פיקסל של 0.38 מיקרון ב-XY. הגדרות אלו מספקות דגימה מרחבית מספקת לפירוק גרעינים בודדים תוך שמירה על זמן הרכישה לכל z-stack במסגרת גבולות מקובלים להדמיה ארוכת טווח מרובת מיקומים. - שמור על עוצמת הלייזר נמוכה ככל האפשר, אבל הגדילו עד שהגרעינים יפותרעו בבירור. התחילו ברכישת טיים-לאפס רב-מיקומים. ודא שסך זמן הרכישה לכל נקודת זמן בכל העמדות אינו עולה על 90% מהזמן שנקבע כדי להתאים לתנועת הבמה והתאמות פוקוס אוטומטי. תמונה ל-12–72 שעות, תלוי בשאלות הביולוגיות.
הערה: לפני שמתחילים ריצה ארוכה של OrganoidTracker, יש לרכוש מחסנית z אחת ולבדוק את הזיהוי. זיהוי אמין עם מעט זיהויים שגויים או פספוסים מאשר שההגדרות מספקות. אחרת, כוון את עוצמת הלייזר, הגיין של הגלאי או שלב ה-z לפני הממשיך. לכידת אירועי התמיינות כמו הופעת תאי גביע חיוביים ל-MUC2 או תאי פנת' חיוביים ל-DEFA5 דורשת בדרך כלל 48–72 שעות. דינמיקות קצרות טווח כמו אקסטרוזיה של תאים יכולות להתבצע בתוך 12–24 שעות. פוטוטוקסיות היא הגורם המגביל העיקרי לצילום ארוך טווח. הסימנים כוללים האטה בחלוקת תאים, אפופטוזיס, עיבוי גרעיני וקריסת אורגנואיד (איור 2). מומלץ לכלול אורגנואידים בקרה שלא צולמו כהתייחסות פנימית. אם נצפה, הפחיתו את עוצמת הלייזר או הגדלו את מרווח הזמן.
7. מעקב תא יחיד ושחזור שושלת באמצעות כלי תוכנה חצי-אוטומטי למעקב תאים אורגנואידי כמו OrganoidTracker
- התקן את OrganoidTracker לפי ההוראות ב-https://github.com/jvzonlab/OrganoidTracker.
הערה: התוכנה דורשת פייתון 3.8 או מאוחר יותר עם numpy, scipy, matplotlib ו-tensorflow. - טען את מערך הנתונים של טיים-לאפס ל-OrganoidTracker. פורמטים מקובלים כוללים TIFF stacks, ND2 ו-LIF. הרץ את זיהוי הגרעין מבוסס רשת עצבית על ערוץ הגרעין (H2B-mCherry או H2B-iRFP עבור אורגנואידים של עכברים).
הערה: המודל המאומן מראש שמספק התוכנה מותאם לגרעיני אורגנואיד מעיים מסומנים ב-H2B ואינו ניתן ליישמו ישירות לזיהוי אוטומטי של תאי MUC2-mNeonGreen או DEFA5-dsRed-חיוביים. - סקירה ותיקון ידני של זיהויים אוטומטיים, תוך התמקדות בחיוביים שגויים (זיהויים על פסולת, חומר אוטופלואורסצנטי, או דמויות מיטוטיות שנספרו כפול), שליליות שגויות (גרעינים שהוחמצו באזורים צפופים או בשולי האורגנואיד), והחלפות זהות (הקצאות זהות תא שגויות כאשר שני תאים עוברים בקרבה).
- הרץ את אלגוריתם הקישור כדי לחבר זיהויים בין נקודות זמן ולשחזר מסלולי תאים. בדוק קישורים ידנית, תוך תשומת לב מיוחדת לאירועי חלוקת תאים (מסילה אחת מתפצלת לשני מסלולי בת) ולאירועי אקסטרוזיה של תא (סיום מסלול כאשר תא יוצא מהאפיתל).
הערה: עבור אורגנואידים פסיפסיים, יש לבצע גילוי ומעקב על הערוץ הגרעיני הראשי, ואז לסווג כל תא שנעקב כשייך לאוכלוסייה A או B בהתבסס על יחס עוצמת הפלואורסצנציה בין שני הערוצים הגרעיניים. - השתמשו באפשרות "מעקב ידני" בתוכנה כדי לעקוב אחרי אורגנואידים של מדווחי גורל האדם. כימות פלואורסצנציה של המדווח על ידי מדידת עוצמת האות הממוצעת בתוך ROI מוגדר סביב מיקום מרכז התא שהוכנס במהלך מעקב ידני. נקודת הזמן שבה עוצמת העיתונאי חוצה סף מוגדר מסמנת את המחויבות לגורל. תחילת אות MUC2-mNeonGreen מגדירה מחויבות לתאי גביע, בעוד שתחילת אות DEFA5-dsRed מגדירה מחויבות לתאי Paneth.
- שמור את פרויקט המעקב באופן קבוע באמצעות פונקציית השמירה ההדרגתית של התוכנה, שמאפשרת להשהות ולהמשיך את תהליך התיקון. ייצוא נתוני מעקב (כולל מיקומי תאים, עצי שושלת וסיווגי תאים) לניתוח במורד הזרם בפייתון או R.
8. כימות מעברי גורל תא והתנהגות תא יחיד
- כדי לכמת מעברים בין סוגי תאים, זהה את נקודת הזמן שבה כל תא שלילי DEFA5-dsRed הופך לראשונה לחיובי ל-DEFA5-dsRed (מחויבות תאי פנת') בהתבסס על עוצמת ערוץ המדווח במעקב. עבור כל תא שנעקב, יש להפיק את עוצמת הפלואורסצנציה של ערוצי MUC2-mNeonGreen ו-DEFA5-dsRed לאורך זמן כדי לנטר את הקשר הזמני בין שני הדיווחים. שרטט עקבות עוצמה דו-ערוצית עבור תאים בודדים כדי לזהות דינמיקות מדווחות מתואמות.
הערה: ניטור שני הערוצים בו-זמנית בתאים שנעקבו הוא חיוני להבחנה בין מחויבות תאי גביע (הפעלה מתמשכת של MUC2-mNeonGreen) לבין מחויבות תאי Paneth (הפעלה חולפת של MUC2-mNeonGreen ואחריה הופעת DEFA5-dsRed). ניתוח חד-ערוץ לבדו אינו מספיק כדי ללכוד דינמיקה זו ועלול להוביל לסיווג שגוי של קודמי תאי פנת' מוקדמים כתאי גביע. - באורגנידים פסיפסיים, יש להפיק מדדים התנהגותיים לכל תא עבור כל תא שנעקב, כולל אורך חיי התא (זמן מהחלוקה האחרונה ועד סיום ההדמיה), קצב החלוקה ומהירות הנדידה. כאשר נוכח מדווח משותף של עניין, כמת את עוצמת הפלואורסצנציה שלו לאורך זמן כדי ללכוד שינויים דינמיים באירועים ספציפיים כגון חלוקה, הגירה או אקסטרוזיה. קשר את המדידות הללו להקשר השכונה המקומית של התא על ידי השוואת התנהגות התא המסומן לשכניו המיידיים הלא מסומנים.
הערה: כאשר שני גנוטיפים מעורבבים באותו אורגנואיד, הבדלים שיטתיים בכל אחד מהמדדים הללו בין שתי האוכלוסיות יכולים להצביע על יתרון כושר תחרותי של גנוטיפ אחד על פני השני. - בצע ניתוח סטטיסטי באמצעות מבחנים מתאימים. להשוואת תזמון התחייבות גורל או מדדים לכל תא כגון אורך חיים, מהירות נדידה וקצב חלוקה בין שתי קבוצות, השתמשו במבחן Mann-Whitney U. להשוואת דינמיקת עוצמת המדווח לאורך זמן, השתמשו במודל השפעות מעורבות ליניאריות כדי להתחשב במדידות חוזרות בתוך אותו תא.
הערה: כל הכימות חייבות להתבצע על נתוני מעקב מתוקנים ידנית. מערכי נתונים שלא תוקנו או תוקנו חלקית יוצרים שגיאות שיטתיות בתזמון התחייבות הגורל, בהקצאות מרחביות ובחישובי מדדים התנהגותיים. הקצו זמן מספק לתיקון ידני לפני המעבר לכמת (ראו סעיף 7).
תוצאות
בהתאם לפרוטוקול המתואר בסעיף 4, אוכלוסיות תאים מסומנות H2B-mCherry ו-H2B-iRFP נוצרות בתוך 48 שעות מהזריעה. היווצרות פסיפס מוצלחת מאופיינת בהתפלגות מלח ופלפל או בגבולות מוגדרים בין שתי האוכלוסיות, בהתאם למידת הדיסוציאציה שבה נעשה שימוש. התפלגות מלח ופלפל מתייחסת לערבוב אקראי של תא יחיד בין שתי האוכלוסיות, שבו תאים מכל אוכלוסייה משולבים ברמת התא היחיד, ללא תחומים קלונליים גדולים. לעומת זאת, גבולות מוגדרים יוצרים כתמים קוהרנטיים של כל אוכלוסיית תאים בתוך אותו אורגנואיד. דרגת פיזור התאים נשלטת על ידי משך שלב הדיסוציאציה ועוצמת הפיפטינג: דיסוציאציה חד-תאית יסודית יוצרת פסיפסים של מלח ופלפל, בעוד שפיצול עדין שומר על אשכולות קלונליים קטנים (איור 3A).
סימון הפסיפס מאפשר ניתוח תא יחיד של תהליכים שאינם ניתנים לפתרון ברקמות עם תיוג אחיד. כאשר תא בודד שמבטא במשותף מדווח מעניין (למשל, מדווח פלואורסצנטי מיוזין-II) מוקף בשכנים לא מסומנים, ניתן לייחס באופן חד-משמעי את הדינמיקה הציטוסקלטלית שלו במהלך ההגירה, החלוקה או האקסטרוזיה לאותו תא (איור 3B). מדווחי H2B גרעיניים מסייעים בזיהוי קבוצות תאים אינפורמטיביות בתוך הפסיפס, וניתן להפיק מדידות לכל תא, כגון אורך חיים, קצב חלוקה ודינמיקת עוצמת המדווח, מתוך נתוני המעקב (איור 3C). כאשר שני גנוטיפים מעורבים, ניתן להשוות את המדדים לכל תא בין אוכלוסיות כדי להעריך הבדלים תחרותיים בכושר.
באורגנידים במעי האנושיים הנושאים את MUC2-mNeonGreen ו-DEFA5-dsRed, מחויבות גורל תאי הפרשה ניכרת כעלייה הדרגתית בפלואורסצנציה של המדווח לאורך ימים. אורגנואידים שגודלו ב-Maturation Medium הועברו ללוחות עם תחתית זכוכית ביום השביעי וצולמו במיקרוסקופיה קונפוקלית של תאים חיים (איור 4A). הדמיית טיים-לאפס חושפת שתי דינמיקות מדווחות מובחנות: תאי הגביע מפעילים ושומרים על ביטוי גבוה של MUC2-mNeonGreen לאורך כל תקופת ההדמיה, בעוד שתאי Paneth מציגים הפעלה ראשונית של MUC2-mNeonGreen ואחריה ירידה הדרגתית באות ובהמשך הפעלה של DEFA5-dsRed6 (איור 4A). כימות תא יחיד מאשר את המעבר הסדרתי הזה ברמת התאים הבודדים (איור 4B), ומציע שהמחויבות לתאי פנת' מתקדמת דרך מצב ביניים חולף המבטא את MUC2 ולא ישירות ממקור אב לא מסומן. עקומות עוצמה ממוצעות בין תאים מעקבים מרובים מאשרות כי דפוס זה עקבי ברמת האוכלוסייה, כאשר קודמי תאי Paneth מציגים קשר הפוך אופייני בין אותות MUC2-mNeonGreen ל-DEFA5-dsRed (איור 4C). יחד, הנתונים הללו מראים שמערכת הדו-מדווח פותרת מסלולי גורל הפרשה מובחנים ברזולוציה של תא יחיד.
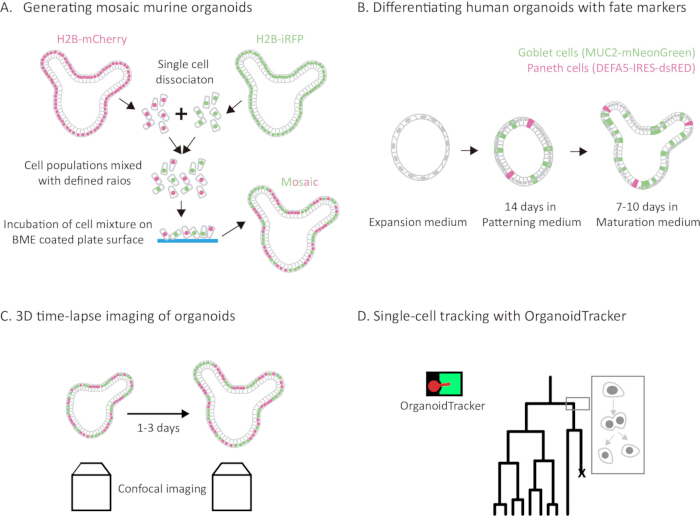
איור 1: זרימת העבודה שמשלבת דימות קונפוקלי של תאים חיים ומעקב תא יחיד עם שתי אסטרטגיות מדווח משלימות באורגנידים במעי אנושי ועכברים. (א) סקירה סכמטית של תהליך יצירת האורגנידים במוזאיק. אורגנואידים במעי עכברים המבטאים H2B-mCherry (מג'נטה) או H2B-iRFP (ירוק) מתפרקים לתאים בודדים, מעורבבים ביחסים מוגדרים, ומוזרעים על פלטה מצופה BME ליצירת מצטברות של 24 שעות לפני ההטמעה מחדש ב-BME. (ב) סקירה סכמטית של התמיינות אורגנואידים במעי האדם. אורגנואידים אנושיים המבטאים MUC2-mNeonGreen (תאי גביע, ירוקים) ו-DEFA5-dsRed (תאי פנת', מג'נטה) מדווחי נוק-אין אנדוגניים מובחנים באמצעות פרוטוקול דו-שלבי. אורגנואידים מתרבים תחילה במדיום דפוס למשך 14 ימים, ואחריהם במדיום הבשלה למשך 7–10 ימים. במהלך ההתמיינות, אורגנואידים עוברים ממורפולוגיה ציסטית וכדורית למבנה נבטי נרחב, המכיל סוגי תאי מעי עיקריים, כולל תאי גביע חיוביים ב-MUC2-mNeonGreen ותאי פנת' חיוביים ב-DEFA5-ds. (C) הדמיה קונפוקלית תלת-ממדית של אורגנואיד מעי פסיפס עכברו המבטא מדווחים גרעיניים. (D) מעקב ותאי בודדים ושחזור שושלת באמצעות כלי תוכנה חצי-אוטומטי למעקב אחרי תאים אורגנואידיים. גרעינים שזוהו מקושרים בין נקודות זמן כדי לשחזר מסלולי תאים ועצי שושלת, ומאפשרים כימות של חלוקת תאים, נדידה ואירועי אקסטרוזיה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
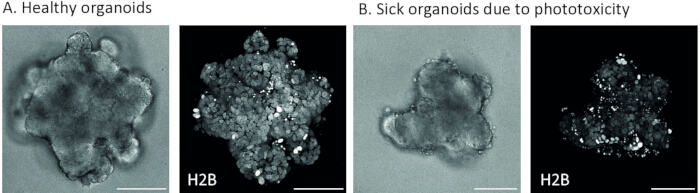
איור 2: השוואה בין אורגנואידים בריאים ופוטוטוקסיים במעי האדם במהלך הדמיה קונפוקלית חיה. (א) תמונות מייצגות של שדות בהירים ופלואורסצנציה של אורגנואיד מעי אנושי בריא. אורגנואידים בריאים מציגים מורפולוגיה ציסטית או נבטית ברורה, ללא שאריות תאים בתווך הסובב. (B) תמונות מייצגות של שדות בהירים ופלואורסצנציה של אורגנואיד במעי האנושי המראות נזק פוטוטוקסיבי. סימנים לפוטוטוקסיות כוללים הצטברות פסולת תאים בתווך הסובב, עיבוי גרעיני ועצירת חלוקת תאים. תמונות פלואורסצנציה H2B-mCherry מוצגות כהקרנות בעוצמה מקסימלית. פסי קנה מידה, 100 מיקרון. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של האיור.
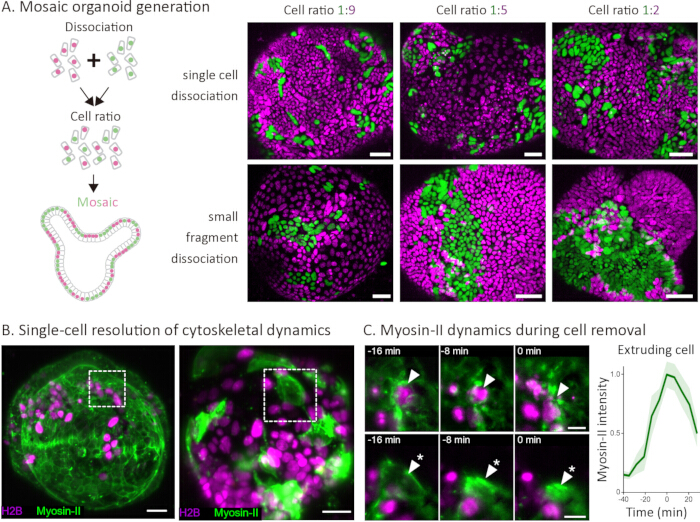
איור 3: יצירת אורגנואידים בפסיפס ופתרון תא יחיד של דינמיקת שלד ציטוסקלטלי באורגנואידים במעי עכברים. (א) סכמטי של יצירת אורגנואידים מוזאיים באמצעות דיסוציאציה, ערבוב ביחסים מוגדרים ואיחוד מחדש. תמונות קונפוקליות מייצגות של אורגנואידים פסיפסיים שנוצרו ביחס תאים של 1:9, 1:5 ו-1:2 (H2B-mCherry, ירוק; H2B-iRFP, מג'נטה) באמצעות דיסוציאציה של תא יחיד (שורה עליונה) או דיסוציאציה קטנה (שורה תחתונה). דיסוציאציה חד-תאית יוצרת דפוס ערבוב מלח ופלפל, בעוד שדיסוציאציה של מקטעים קטנים גורמת לכתמים קלונליים גדולים יותר. פסי קנה מידה, 50 מיקרומטר. (B) תמונות קונפוקליות של אורגנואידים פסיפסיים שבהן אוכלוסייה צפופה (שמאל) או דלילה (מימין) מבטאת Myosin-II-mNeonGreen (ירוק), בעוד שהאוכלוסייה השנייה מבטאת רק H2B-iRFP (מג'נטה). תיבות מקווקו מציינות את האזורים המוגדלים ב-(C). פסי סולם, 20 מיקרומטר. (C) סדרות טיימ-לאפס המציגות אקסטרוזיה של תאים במרווחים של 8 דקות, מיושרת למומנט הסרת התא (t = 0 דקות). שורה עליונה (ראשי חצים): אקסטרוזיה של תא לא מסומן מוקף בשכנים המביעים Myosin-II-mNeonGreen, החושפת את תגובת השכונה. שורה תחתונה (כוכביות): אקסטרוזיה של תא בודד המבטא Myosin-II-mNeonGreen מוקף בשכנים לא מסומנים, מה שמאפשר ייחוס חד-משמעי של דינמיקת המיוזין הקורטיקלית לתא האקסטרוד. פסי קשקש, 10 מיקרון. מימין: נורמל עוצמת הפלואורסצנציה של Myosin-II-mNeonGreen לאורך זמן עבור תאים מתחילים, מיושרת לרגע הסרת התא (t = 0 דקות). מיוסין-II מצטבר בהדרגה בדקות שלפני האקסטרוזיה, ומגיע לשיא בזמן ההסרה. שטח מוצל מצביע על סטיית תקן. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
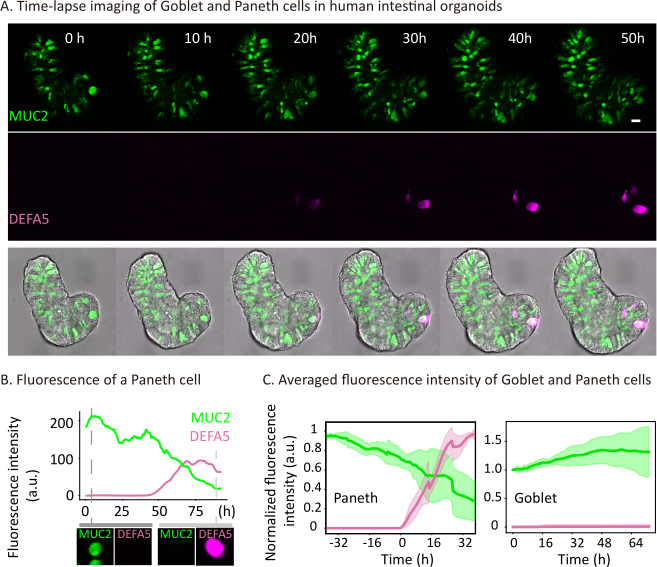
איור 4: ניטור בזמן אמת של מעברי גורל תאי הפרשה באורגנואידים של המעי האנושי באמצעות דיווחי גורל MUC2-mNeonGreen ו-DEFA5-dsRed. אנא לחצו כאן לצפייה בגרסה רחבה יותר של איור זה.
(א) תמונות קונפוקליות מייצגות של אורגנואיד מעי אנושי שגודל ב-Maturation Medium וצולם מהיום השביעי של ההתבגרות. MUC2-mNeonGreen (ירוק) מסמן תאי גביע ו-DEFA5-dsRed (מג'נטה) מסמן תאי Paneth. פס סולם, 20 מיקרון. (B) כימות תא יחיד של עוצמת הפלואורסצנציה של MUC2-mNeonGreen (ירוק) ו-DEFA5-dsRed (מג'נטה) לאורך זמן עבור תא Paneth מייצג, המראה הפעלה ראשונית של MUC2-mNeonGreen, ואחריה ירידה הדרגתית באות והופעת DEFA5-dsRed. עוצמת הפלואורסצנציה מוצגת ביחידות שרירותיות (a.u.). (C) עקומות עוצמת פלואורסצנציה ממוצעות לתאי גביע (n = 7 תאים) וקודמי תאי פנת' (n = 8 תאים) המראות דינמיקת אות MUC2-mNeonGreen (ירוק) ו-DEFA5-dsRed (מג'נטה) לאורך זמן6. עבור קודמי תאי פנת', הזמן מיושר להופעה הראשונה של אות DEFA5-dsRed (t = 0 h). תאי הגביע שומרים על עוצמת MUC2-mNeonGreen גבוהה באופן עקבי לאורך זמן, בעוד שקודמי תאי פנת' מציגים קשר הפוך אופייני בין אותות MUC2-mNeonGreen ל-DEFA5-dsRed. אזורים מוצלים מצביעים על סטיית תקן.
| רכיב | ריכוז מלאי | ריכוז סופי |
| Advanced Dulbecco Modified Eagle Medium/F12 (Advanced DMEM/F12) | מדיום בסיס | |
| HEPES | 1M | 10 מ"מ |
| גלוטמקס | 200 מ"מ | 2mM |
| תוספת N2 | 100x | 1x |
| תוספת B27 | פי 50 | 1x |
| N-אצטילציסטאין | 500mM | 1mM |
| פניצילין/סטרפטומיצין | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| EGF של עכברים רקומביננטיים | 50ng/ml | |
| עכברוש רקומביננטי נוגין | 100ng/ml | |
| R-ספונדין אנושי רקומביננטי 1 | 500ng/ml |
טבלה 1: מדיום גדילה לאורגנואידים במעי עכברים.
| רכיב | ריכוז מלאי | ריכוז סופי |
| Advanced Dulbecco Modified Eagle Medium/F12 (Advanced DMEM/F12) | מדיום בסיס | |
| HEPES | 1M | 10 מ"מ |
| גלוטמקס | 200 מ"מ | 2mM |
| תוספת B27 | פי 50 | 1x |
| פניצילין/סטרפטומיצין | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| פרימוסין | 50 מ"ג/מ"ל | 100 מיקרוגרם/מ"ל |
| מדיום מותנה על ידי R-ספונדין (U-Protein Express) | 2% | |
| מדיום מותנה לנוגין (U-Protein Express) | 2% | |
| N-אצטילציסטאין | 500mM | 1mM |
| ניקוטינאמיד | 1M | 10 מ"מ |
| EGF רקומביננטי אנושי | 500 מיקרוגר/מ"ל | 50ng/ml |
| A83-01 | 5mM | 500 ננומטר |
| SB202190 (מעכב עמוד 38) | 30mM | 3uM |
| פרוסטגלנדין פרק 2 | 10 מ"מ | 1uM |
| תחליף נשים | 1000x |
טבלה 2: מדיום התרחבות לאורגנואידים של המעי האנושי.
| רכיב | ריכוז מלאי | ריכוז סופי |
| Advanced Dulbecco Modified Eagle Medium/F12 (Advanced DMEM/F12) | מדיום בסיס | |
| HEPES | 1M | 10 מ"מ |
| גלוטמקס | 200 מ"מ | 2mM |
| תוספת B27 | פי 50 | 1x |
| פניצילין/סטרפטומיצין | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| פרימוסין | 50 מ"ג/מ"ל | 100 מיקרוגרם/מ"ל |
| מדיום מותנה על ידי R-ספונדין (U-Protein Express) | 2% | |
| מדיום מותנה לנוגין (U-Protein Express) | 2% | |
| N-אצטילציסטאין | 500mM | 1mM |
| EGF רקומביננטי אנושי | 500 מיקרוגר/מ"ל | 50ng/ml |
| A83-01 | 5mM | 500 ננומטר |
| תחליף נשים | 1000x | |
| CHIR99021 | 3mM | 3uM |
| אדם רקומביננטי IL-22 | 10 מיקרוגרם/מ"ל | 2ng/ml |
טבלה 3: מדיום דפוס לאורגנואידים במעי האדם.
| רכיב | ריכוז מלאי | ריכוז סופי |
| Advanced Dulbecco Modified Eagle Medium/F12 (Advanced DMEM/F12) | מדיום בסיס | |
| HEPES | 1M | 10 מ"מ |
| גלוטמקס | 200 מ"מ | 2mM |
| תוספת B27 | פי 50 | 1x |
| פניצילין/סטרפטומיצין | 10000U/ml, 10000U/ml | 100U/ml, 100U/ml |
| פרימוסין | 50 מ"ג/מ"ל | 100 מיקרוגרם/מ"ל |
| מדיום מותנה על ידי R-ספונדין (U-Protein Express) | 2% | |
| מדיום מותנה לנוגין (U-Protein Express) | 2% | |
| N-אצטילציסטאין | 500mM | 1mM |
| EGF רקומביננטי אנושי | 500 מיקרוגר/מ"ל | 50ng/ml |
| A83-01 | 5mM | 500 ננומטר |
| תחליף נשים | 30000x | |
| אדם רקומביננטי IL-22 | 10 מיקרוגרם/מ"ל | 2ng/ml |
טבלה 4: מדיום הבשלה לאורגנואידים במעי האדם.
דיון
פרוטוקול זה מספק תהליך עבודה שלב אחר שלב להדמיה קונפוקלית של תאים חיים ולמעקב אחר תא בודד באורגנידים במעי אנושי ובעכברים, המבוסס על שני מערכות ניסוי משלימות: אורגנואידים פסיפסיים שמבטאים התנהגות תאית בודדת בתוך אפיתל צפוף, ואורגנואידים של מדווח גורל המבטאים MUC2-mNeonGreen ו-DEFA5-dsRed למעקב בזמן אמת אחר מעברים של סוגי תאים מופרשים.
בהשוואה לשיטות עם נקודת זמן קבועה כמו אימונופלואורסצנציה או ריצוף RNA חד-תאים, הדמיה חיה לוכדת את הדינמיקה של המעברים ולא תמונות. בהשוואה למעקב שושלות מבוסס Cre, הוא מספק פתרון זמני לזיהוי החלטות גורל אישיות. הגישה של הפסיפס מוסיפה השוואות מבוקרות פנימית בתוך אותו הקשר רקמתי, ומונעת בלבול שונות בין אורגנואיד לאורגנואיד.
מספר שלבים בפרוטוקול הם קריטיים להצלחה. לפסיפס עם פיזור מלח ופלפל, הפרדה של אורגנואידים לתאים בודדים חייבת להיות יסודית אך עדינה: דיסוציאציה לא שלמה יוצרת כתמים שיבוטיים גדולים, בעוד שדיסוציאציה מופרזת מפחיתה את החיוניות (סעיף 4.3). שלב ההצטברות של 24 שעות על משטח שטוח לפני ההטמעה מחדש ב-BME נחוץ לערבוב נכון של שתי האוכלוסיות; השמטה גורמת לפסיפסים משולבים בצורה לקויה (סעיף 4.6–4.8). ניהול פוטוטוקסיות במהלך הדמיה דורש כיול זהיר, החל מהגדרות לייזר שמרניות והגברה רק אם תוכנת המעקב מפיקה שליליות שגויות מופרזות (סעיף 6.8).
המגבלות העיקריות נוגעות למגבלות הטבועות במערכות אורגנואידיות ובדימות חי. לאורגנואידים אין רכיבים סטרומליים, כלי דם ומערכת חיסונית שעשויים להשפיע על התנהגות התאים ב-vivo. במיקרוסקופיה קונפוקלית, עומק ההדמיה מוגבל לכ-100 מיקרון מהמסגרת, מעבר לכך פיזור אור פוגע באיכות האות ודיוק המעקב. מיקרוסקופיה מולטיפוטונית ומיקרוסקופית יריעת אור יכולה להרחיב משמעותית את טווח העומק הזה במחיר של מדידה נוספת והתאמת פרוטוקולים. גישת המעקב החצי-אוטומטית, אף שהיא יעילה בהרבה מהערה ידנית, עדיין דורשת זמן תיקון משמעותי, במיוחד ברקמות צפופות (סעיף 7.4).
שתי האסטרטגיות ניתנות להרחבה בקלות. על ידי שינוי המדווח המובע יחד עם הסמן הגרעיני, ניתן לבחון היבטים שונים של התנהגות תא יחיד, החל מ-Myosin-II הקורטיקלי לדינמיקה מכנית ועד E-cadherin מחולק לעיצוב מחדש של הידבקות, חיישני ביולוגיים של סידן כמו tq-Ca-FLITS ו-ColBD-Twitch, או חיישני ביולוגיים מטבוליים כמו SoNar למצב חמצון תאי NAD+/NADH, המאפשרים קריאה סימולטנית של זהות התא, שושלת ומצב פיזיולוגי בתוך אותו אורגנואיד9, 25, 26, 27. התאמת יחס הערבוב מכוונת את הניתוח: תאים עם סימון דליל מאפשרים ייחוס אותות ממברנה לתאי יחיד, בעוד תאים לא מתויגים מועטים חושפים תגובות שכונתיות. אסטרטגיית מדווח הגורל ניתנת להרחבה לכל מיקום אנדוגני המתאים לתיוג מבוסס CRISPR-HOT או HDR. שילוב שתי הגישות בתוך אותו אורגנואיד יאפשר מעקב סימולטני אחר מחויבות שושלת ודינמיקת תא יחיד.
באופן רחב יותר, צינור ההדמיה והניתוח רלוונטי לאורגנואידים שמקורם ברקמות אפיתל אחרות, כולל מודלים קיבה, מעי הגס, כבד ובלבלב. אורגנואידים שמקורם בתאי גזע פלוריפוטנטיים מושרים (iPSC) הם הרחבה מבטיחה, שכן תיוג גרעיני מבוסס H2B ויצירת פסיפס על ידי ערבוב תאים ניתנים להעברה ישירה, והצינור עשוי לאפשר מחקרים ספציפיים למטופל על גורל התא ודינמיקה תחרותית. מודלים סינתטיים של עוברים כמו גסטרולואידים ועוברים שמקורם בתאי גזע מתאימים גם הם למעקב תא יחיד, אם כי הגיאומטריה המורכבת יותר והצפיפות הגרעינית הגבוהה שלהם עשויים לדרוש הכשרה מחדש של מודל רשת עצבית של כלי תוכנה חצי-אוטומטי למעקב תאים אורגנואידים והתאמת פרמטרי הדמיה. אורגנואידים במוח מציבים אתגרים נוספים בשל גודלם הגדול וצפיפותם האופטית, שמגבילים את עומק ההדמיה הקונפוקלי. יתרה מזאת, אורגנואידים במוח דורשים שבועות עד חודשים של התמיינות לפני שניתן לבצע ניסויים דימותיים משמעותיים, מה שמגדיל משמעותית את לוחות הזמנים של הניסוי לעומת אורגנואידים במעי. חלק מהפרוטוקולים האורגניים של המוח גם הם מסתמכים על תרבית השעיה ולא על הטמעת BME, שאינה תואמת את שיטת הכנת הדגימה המתוארת כאן ותדרוש התאמה לפורמטים משובצים במטריצה או בצורת משטח לפני ההדמיה. מיקרוסקופיית יריעת אור, שמציעה פוטוטוקסיות מופחתת ועומק הדמיה גדול יותר, עשויה להתאים יותר למערכות אלו13. יחד, ההרחבות הללו מדגישות את הפוטנציאל הרחב של הצינור במערכות מודל תלת-ממדיות מגוונות מעבר לאורגנואידים אפיתליים המתוארים כאן.
גילויים
H.C. הוא ממציא פטנטים הקשורים לטכנולוגיית אורגנואידים. כל שאר המחברים מצהירים שאין להם אינטרסים מתחרים.
תודות
מחקר זה ממומן על ידי משרד החינוך, התרבות והמדע של ממשלת הולנד באמצעות פרויקט הכבידה של NWO בשם Material Driven Regeneration (024.003.013 ZWK MDR) ועל ידי המועצה האירופית למחקר דרך ERC Advanced Grant GutHormones (מספר 101020405)
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | עם בקרת אקלים לטמפרטורה ו-CO2 |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | open source | open source https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | צבע גרעין חי אדום רחוק | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | open source | open source https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | homemade | פרוטוקול ליצירת הפלסמיד DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | homemade | פרוטוקול ליצירת הפלסמיד DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | homemade | פרוטוקול ליצירת הפלסמיד DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | צבע DNA חי אדום רחוק | ||
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | custom order | |
| Wnt3A conditioned medium | homemade | ייצור מדיום מותנה של Wnt3A ניתן למצוא כאן: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב