פרוטוקול זה מתאר זיהוי באמצעות ציטומטריה של זרימה של חלבונים תוך-תאיים בתאי erythroleukemia אנושיים מסוג K562, תוך שימוש בנוגדנים פוליקלונליים ראשוניים שאינם מצומדים. ספציפיות הנוגדנים מודגמת על ידי עיכוב תלוי-מינון של הצביעה באמצעות תחרות פפטידית.
מאמר שיטה
זיהוי פלוו-ציטומטרי של חלבונים תוך-תאיים בתאי אריתרו-לוקמיה אנושיים מסוג K562 באמצעות נוגדנים ראשוניים לא מסומנים
במאמר זה
סיכום
תקציר
ציטומטריה של זרימה היא טכניקה עוצמתית לניתוח כמותי של ביטוי חלבונים ברזולוציה של תא בודד. פרוטוקול זה מתאר תהליך עבודה לגילוי חלבונים תוך-תאיים בתאי erythroleukemia אנושיים מסוג K562, תוך שימוש בנוגדנים ראשוניים פוליקלונליים לא מצומדים ובנוגדנים משניים מצומדים לפלואורופור. התאים עוברים קיבוע, פרמיליזציה (חדירה) וחסימה באופן רצופי לפני צביעה בנוגדנים. על ידי שינוי סדר דגירת הנוגדנים ביחס לקיבוע ולפרמיליזציה, הפרוטוקול מאפשר הערכה של חלבונים בעלי לוקליזציה על פני השטח או תוך-תאית באמצעות תהליכי צביעה נפרדים. צביעה גרעינית של splicing factor 3a subunit 1 (SF3A1) מודגמת באמצעות נוגדן פוליקלונלי של ארנב נגד SF3A1 שעבר טיהור באפיניות, וסגוליות הנוגדן מוערכת על ידי עיכוב תלוי-מינון של הצביעה באמצעות הפפטיד האנטיגני המתאים. בנוסף, תנאי הצביעה משמשים להערכת התגובתיות של נוגדן המכוון לדומיין התוך-תאי של erythropoietin receptor. תהליך עבודה סטנדרטי זה מרחיב את השימוש בנוגדנים ראשוניים לא מצומדים בציטומטריה של זרימה ומספק גישה מעשית להערכת ביטוי ולוקליזציה של חלבונים, וכן להערכת סגוליות של נוגדנים בתאי erythroleukemia אנושיים מסוג K562.
מבוא
ציטומטריית זרימה היא כלי אנליטי עוצמתי ונפוץ המאפשר הערכה כמותית של ביטוי חלבונים ברזולוציה של תא בודד, ובכך מקלה על בחינה של אוכלוסיות תאים נדירות והטרוגניות1,2,3. בעוד שגישות ציטומטריית זרימה קונבנציונליות משתמשות בעיקר בנוגדנים המכוונים לאנטיגנים על פני השטח של התא, חלבונים רבים בעלי חשיבות תפקודית, כגון גורמי שעתוק, רגולטורים של עיבוד RNA וקולטנים העוברים התפנמות (internalization) בהשראת ליגנד, ממוקמים בתוך מדורים תוך-תאיים. כתוצאה מכך, חלבונים ציטופלזמיים וגרעיניים אלה אינם נגישים באמצעות פרוטוקולי צביעה סטנדרטיים של פני השטח. שילוב של שיטות צביעה תוך-תאית, הכוללות קיבוע וחדירה (permeabilization) של ממברנות תאיות, הרחיב באופן משמעותי את התועלת של ציטומטריית זרימה בכך שאפשר הערכה כמותית של חלבונים תוך-תאיים, ציטוקינים ומתווכי איתות, תוך שמירה על היכולות הרב-פרמטריות והסריקה בהספק גבוה (high-throughput) של אנליזת ציטומטריית זרימה קונבנציונלית4,5,6,7.
מגבלה מרכזית בזיהוי של חלבונים הקשורים לפני השטח ושל חלבונים תוך-תאיים באמצעות ציטומטריה של זרימה היא הזמינות של נוגדנים מתאימים, ובמקרים רבים, ידע חלקי על רצפי האפיטופ או האימונוגן8,9. מכיוון שאסטרטגיות של אימונופנוטיפיקה מבוססות במידה רבה על סמנים לפני השטח של התא, רוב הנוגדנים הזמינים מסחרית אשר תוקפו עבור ציטומטריה של זרימה הם מונוקלונליים, מזהים אפיטופים חוץ-תאיים בודדים, וסומנו מראש בפלואורופורים. לעומת זאת, נוגדנים פוליקלונליים מסוגלים לזהות מספר אפיטופים בתוך חלבון מטרה והם נמצאים בשימוש נפוץ בבדיקות וסטרן בלוט (western blotting), אימונוהיסטוכימיה או אימונופלואורסנציה. עם זאת, נוגדנים אלו הם בדרך כלל לא מסומנים ולכן אינם תואמים באופן ישיר לזרימת העבודה הסטנדרטית של ציטומטריה של זרימה. שימוש בנוגדנים ראשוניים לא מסומנים בשילוב עם נוגדנים משניים המסומנים בפלואורופור מספק חלופה גמישה המרחיבה את טווח המטרות הניתנות לזיהוי ועשויה לאפשר הגברה של האות, דבר שיכול להיות יתרון עבור חלבונים בשפע נמוך.
כדי להתגבר על מגבלות אלו, ביצענו אופטימיזציה לפרוטוקול לצביעת חלבונים בתאי erythroleukemia אנושיים מסוג K56210. צביעה תוך-תאית דורשת קיבוע כדי לשמר את המבנה והמצב התאי, וכן פרמיאביליזציה (החדרה) כדי לאפשר לנוגדנים להגיע למדורים תוך-תאיים. בפרוטוקול זה, תאים מקובעים באמצעות פאראפורמאלדהיד (PFA), מקבע הצלבה נפוץ השומר על המורפולוגיה התאית ועשוי להגביר את חדירות ממבט התא בתנאים ספציפיים11,12,13,14. פרמיאביליזציה באמצעות אתנול (EtOH) מאפשרת כניסת נוגדנים למדורים תוך-תאיים, כולל גישה למטרות גרעיניות5,13,15. לאחר הפרמיאביליזציה מתבצעת צביעה עם נוגדנים ראשוניים פוליקלונליים לא מצומדים ונוגדנים שניוניים מצומדים לפלואורופור. במסגרת זרימת עבודה זו, טיפול ב-PFA לבדו משמש לזיהוי של אימונוראקטיביות שאינה על פני השטח, בעוד ששלב פרמיאביליזציה נוסף ב-EtOH משמש לזיהוי מטרות גרעיניות. הערכת ספציפיות הצביעה הגרעינית באמצעות תחרות פפטידית הראתה עיכוב תלוי-מינון של קישור הנוגדנים על ידי הפפטיד ההומולוג ולא על ידי ביקורת לא ספציפית. באופן כללי, השימוש בנוגדנים ראשוניים פוליקלונליים לא מצומדים מרחיב את היישומים של ציטומטריה זרימה מעבר לניתוח קונבנציונלי של סממני שטח עם נוגדנים מצומדים לפלואורופור, ומספק גישה גמישה להערכת ביטוי חלבון תוך-תאי ברזולוציה של תא בודד.
פרוטוקול
תאי K562 נרכשו באופן מסחרי ועברו אימות תקופתי ובדיקה למייקופלסמה על ידי ה-University of Arizona Genetics Core. לא השתתפו במחקר זה בני אדם או בעלי חוליות.
1. הכנת ריאגנטים
- תרבתו את התאים בתנאים סטריליים. השתמשו בשורת התאים K562 של לוקמיה מילואית אנושית עבור פרוטוקול זה.
- הפשיקו ושמרו תאי K562 במצע Roswell Park Memorial Institute (RPMI) המועשר ב-10% סרום בקר עוברי (fetal bovine serum) ו-1% פניצילין-סטRepartitionיקה ב- 37°C ב-5% CO₂16לצורך הרחבה, זרעו תאים בצפיפות של כ-1 × 10⁵ תאים למילליליטר (cells/mL), קצרו את התאים כאשר התרביות מגיעות ל-75%–95% מצפיפות התאים המקסימלית המומלצת, ואל תתרבבו מעבר ל-20 מעברים. לצורך צביעה, קצרו את התאים ב-50%–75% מצפיפות התאים המקסימלית המומלצת.
- הכינו תמיסת פוספט מאוזנת (PBS) סטרילית בריכוז 10× בתוך קבינה לבטיחות ביולוגית מסוג class II.
- הוסיפו 80 גרם נתרן כלוריד (NaCl), 2 גרם אשלגן כלוריד (KCl), 2.4 גרם אשלגן פוספט מונובסי (KH₂PO₄), ו-14.4 גרם נתרן פוספט דיבסי (Na₂HPO₄) ל-800 מ"ל מים שעברו עיקור באוטוקלאב, בתוך משורה בנפח של 1 ליטר.
- הוסיפו מגנט Stir bar וערבבו את התמיסה על פלטת ערבול מגנטית עד להמסה מלאה של כל האבקה.
- השתמשו במגש pH כדי לכוון את ה-pH ל-7.2–7.4. השלימו את הנפח הסופי ל-1 ליטר באמצעות מים שעברו אוטוקלביזציה. בצעו סטריליזציה של התמיסה באמצעות סינון בעזרת מסנן על-בקבוק המצויד ב- 0.2 µm ממברנת ניילון בעלת גודל נקבוביות.
- דללו PBS בריכוז 10× ל-PBS בריכוז 1× על ידי הוספת 100 מ"ל של 10× PBS סטרילי ל-900 מ"ל מים שעברו אוטוקלב, בתוך מrepresents מ মনחול בטיחות ביולוגית דרגה II.
- הכינו את צבע הבדיקה לחיוניות הניתן לקיבוע (fixable viability dye) בהתאם להוראות היצרן. עבור פרוטוקול זה, הוסיפו 50 µL דימתיל סולפוקסיד (DMSO) למבחנה אחת של צבע ליופיליзирован (lyophilized), וערבב במערבל Vortex עד להמסה מלאה של הצבע.
- יש לשמור את הצבע המשוחזר בטמפרטורה של −20°Cבמקום מוגן מאור, למשך עד שנה אחת. יש לאחסן את הצבע במכסויות קטנות (aliquots) כדי למנוע מחזורי הקפאה והפשרה חוזרים.
- הכינו באפר למיון תאים מופעל פלואורסצנציה (FACS) על ידי שילוב של 10% PBS בריכוז 10×, 86% מים ו-4% סרום בקר עוברי (FBS). לדוגמה, שלבו 10 מ"ל PBS בריכוז 10×, 86 מ"ל מים ו-4 מ"ל FBS כדי להכין 100 מ"ל באפר FACS.
- הכינו רק את נפח באפר ה-FACS הדרוש למשך כשבועיים.
- יש לשמור את באפר ה-FACS ב- 4°C.
- הכינו פראלדהיד (PFA) בריכוז 1%.
זהירות: יש לטפל ב-PFA כחומר דליק, ריאקטיבי ומסרטן. יש להשתמש בציוד מגן אישי מתאים ולהכין את ה-PFA בתוך מ 빠르게 מנדף כימי מאושר.- ערבבו 350 מ"ל מים ו-50 מ"ל PBS בריכוז 10×, הניחו את התמיסה על פלטת ערבוב מחוממת, וחממו אותה ל- 65°Cהוסיפו בהדרגה 20 גרם אבקת PFA לתמיסה המחוממת כדי להכין PFA בריכוז של 4% (משקל/נפח).
- הוסיפו 1–3 טיפות של נתרן הידרוקסיד (NaOH) בריכוז 5 M כדי להקל על המסת ה-PFA. ערבבו את התמיסה על פלטת ערבוב מחוממת למשך כ-20 דקות. השתמשו במד pH כדי לכוון את ה-pH ל-7.4.
- השלם את הנפח הסופי ל-500 מ"ל באמצעות מים.
- חלק את ה-PFA בריכוז 4% לנפחים של 50 מ"ל ואחסן ב-20°C עד לשנה אחת. לאחר הפשרה, יש לאחסן את ה-PFA בריכוז 4% ב- 4°C עד חודשיים. יש להשליך כל שארית של PFA 4% שהופשרה לאחר חודשיים.
- דללו את ה-PFA בריכוז 4% לריכוז של 1% באמצעות 1× PBS ואחסנו את התמיסה המדוללת ב- 4°C למשך עד 4 שבועות17.
- הכינו אתנול (EtOH) קר בריכוז 70% על ידי שילוב של 70 מ"ל אתנול בריכוז 200-proof עם 30 מ"ל מים אולטרה-טהורים מסוג I.
- שמור את ה-EtOH בריכוז 70% בטמפרטורה של −20°C למשך עד שנה אחת. שמרו את התמיסה קרה מאוד (בקרח) מיד לפני ההוספה לתאים לצורך פרמיליזציה (permeabilization).
2. איסוף וספירת תאים
- העבירו תאים מתוך צלחת תרבית רקמות של 10 cm למבחנת צנטריפוגה של 15 mL.
- צנטריפגו את התאים ב-600 × g למשך 5 min ב-4°C עם בלימה (brake) כדי לשקיע את התאים.
- הסִירו את מצע התרבית ושטפו את התאים על ידי השהייה מחדש ב-5 mL של 1× PBS. צנטריפגו שוב ב-600 × g למשך 5 min ב-4°C עם בלימה, ולאחר מכן שאבו את העליון (supernatant), והשאירו את משקע התאים.
- השהו מחדש את משקע התאים ב-1× PBS. ספרו את התאים באמצעות המוציטומטר או סופר תאים אוטומטי על ידי ערבוב של 10 µL של תרחיף תאים עם 10 µL trypan blue, העמסה של הדגימה על שקופית לספירת תאים וקביעת ריכוז התאים.
הערה: המשיכו רק אם חיוניות התאים היא >90% כדי להבטיח תוצאות מהימנות. - צנטריפגו את תרחיף התאים ב-600 × g למשך 5 min ב-4°C עם בלימה ושאבו את העליון, והשאירו את משקע התאים. השהו מחדש את התאים לצפיפות של 2 × 10⁵ תאים חיוניים/mL (מינימום 0.5 × 10⁵ תאים חיוניים/mL).
- חלקו 1 mL של תרחיף תאים למספר הדגימות ומבחנות הביקורת הנדרשות לזרימה (flow tubes).
- הכינו מבחנות דגימה נפרדות עבור כל חלבון מטרה ותהליך צביעה. תנאי צביעה של פני השטח (Pre-PFA), Post-PFA, Pre-EtOH ו-Post-EtOH מבוצעים באמצעות מבחנות דגימה עצמאיות ולא באמצעות צביעה סדרתית של אותם תאים. לדוגמה, בעת הערכת שני חלבוני מטרה, הכינו שמונה מבחנות: מבחנה 1 (נוגדן ראשוני A, Pre-PFA), מבחנה 2 (נוגדן ראשוני B, Pre-PFA), מבחנה 3 (נוגדן ראשוני A, Post-PFA), מבחנה 4 (נוגדן ראשוני B, Post-PFA), מבחנה 5 (נוגדן ראשוני A, Pre-EtOH), מבחנה 6 (נוגדן ראשוני B, Pre-EtOH), מבחנה 7 (נוגדן ראשוני A, Post-EtOH), ומבחנה 8 (נוגדן ראשוני B, Post-EtOH).
הערה: כפי שמוצג בתהליך הצביעה (איור 1), בצעו צביעה בנוגדן ראשוני ושני עבור דגימות ה-Pre-PFA וה-Pre-EtOH ביום 1. בצעו צביעה בנוגדן ראשוני ושני עבור דגימות ה-Post-PFA וה-Post-EtOH ביום 2. - הכינו מבחנות ביקורת ללא צביעה וביקורות עם צביעה בודדת לכל תנאי טיפול. אם אתם מעריכים חיוניות ושני חלבוני מטרה, הכינו ביקורת אחת ללא צביעה, ביקורת אחת עם צבע חיוניות בלבד, וביקורת אחת עם נוגדן שני בלבד עבור כל תנאי טיפול.
הערה: למרות שהנוגדן הראשוני אינו מצומד, ניתן לכלול ביקורת של נוגדן ראשוני בלבד במהלך תיקוף הבדיקה או בעת הערכת קישור לא ספציפי של הנוגדן הראשוני. - העבירו את כל מבחנות הביקורת ללא צביעה והביקורות עם צביעה בודדת את אותם טיפולים שקיבלו מבחנות הדגימה. אם הדגימות קובעו עם 1% PFA והוחדרו באמצעות 70% EtOH, עבדו את מבחנות הביקורת באופן זהה.
- הכינו מבחנות דגימה נפרדות עבור כל חלבון מטרה ותהליך צביעה. תנאי צביעה של פני השטח (Pre-PFA), Post-PFA, Pre-EtOH ו-Post-EtOH מבוצעים באמצעות מבחנות דגימה עצמאיות ולא באמצעות צביעה סדרתית של אותם תאים. לדוגמה, בעת הערכת שני חלבוני מטרה, הכינו שמונה מבחנות: מבחנה 1 (נוגדן ראשוני A, Pre-PFA), מבחנה 2 (נוגדן ראשוני B, Pre-PFA), מבחנה 3 (נוגדן ראשוני A, Post-PFA), מבחנה 4 (נוגדן ראשוני B, Post-PFA), מבחנה 5 (נוגדן ראשוני A, Pre-EtOH), מבחנה 6 (נוגדן ראשוני B, Pre-EtOH), מבחנה 7 (נוגדן ראשוני A, Post-EtOH), ומבחנה 8 (נוגדן ראשוני B, Post-EtOH).
- הכינו ביקורות פיצוי (compensation controls) עם צביעה בודדת באמצעות חרוזי פיצוי.
הערה: ניתן להשתמש בחרוזים במקום בתאים להכנת ביקורות פיצוי.- סמנו מבחנת ביקורת פיצוי אחת עבור כל פלואורופור ומבחנת ביקורת אחת ללא צביעה. אם משתמשים בצבע חיוניות ושני נוגדנים שניים המסומנים בפלואורופורים שונים, הכינו ארבע מבחנות: ביקורת אחת ללא צביעה, ביקורת אחת לצבע חיוניות (פלואורופור 1), ביקורת אחת לנוגדן שני A (פלואורופור 2), וביקורת אחת לנוגדן שני B (פלואורופור 3).
הערה: אם משתמשים בצבע חיוניות המגיב לאמינים, השתמשו בחרוזי פיצוי המגיבים לאמינים עבור ביקורת צבע החיוניות. - הוסיפו רק צבע אחד או נוגדן אחד לכל מבחנת ביקורת פיצוי, כך שכל ביקורת תהיה חיובית לפלואורופור בודד במהלך הפיצוי בציטומטריה של זרימה.
- סמנו מבחנת ביקורת פיצוי אחת עבור כל פלואורופור ומבחנת ביקורת אחת ללא צביעה. אם משתמשים בצבע חיוניות ושני נוגדנים שניים המסומנים בפלואורופורים שונים, הכינו ארבע מבחנות: ביקורת אחת ללא צביעה, ביקורת אחת לצבע חיוניות (פלואורופור 1), ביקורת אחת לנוגדן שני A (פלואורופור 2), וביקורת אחת לנוגדן שני B (פלואורופור 3).
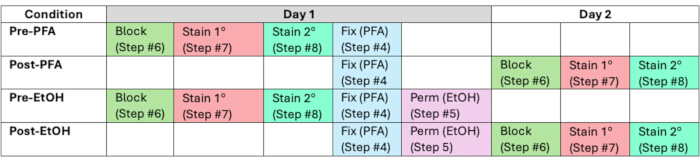
איור 1. זרימת עבודה אופטימלית לצביעה לזיהוי מטרות הקשורות לפני השטח ומטרות תוך-תאיות. זרימת העבודה מדגימה את הרצף והתזמון של קיבוע, פרמביליזציה, חסימה, צביעה בנוגדן ראשוני וצביעה בנוגדן שני לאחר צביעה בצבע חיוניות הניתן לקיבוע. זרימות עבודה נפרדות מוצגות עבור תנאי Pre-PFA, Post-PFA, Pre-EtOH ו-Post-EtOH. צביעה בנוגדן ראשוני ובנוגדן שני מבוצעת ביום 1 עבור זרימות העבודה Pre-PFA ו-Pre-EtOH, וביום 2 עבור זרימות העבודה Post-PFA ו-Post-EtOH. PFA, פאראפורמאלדהיד; EtOH, אתנול. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
3. צביעת תאים בצבע חיוניות הניתן לקיבוע
- צבעו את התאים בצבע חיוניות קבוע (fixable viability dye) לפי הוראות היצרן. הוסיפו 1 µL של תמיסת המלאי של צבע החיוניות (שהוכנה בשלב 1.4) ישירות לכל מבחנת דגימה ולמבחנת הבקרת צביעה בודדת תואמת של צבע החיוניות המכילה 1 × 10⁶ תאים ב-1 מ"ל של 1× PBS.
- ערבבו בעדינות במערבל וורטקס (vortex) למשך 3 שניות והדגירו את הדגימות בטמפרטורת החדר למשך 30 דקות, מוגנים מאור.
הערה: יש להגן על התאים מאור במהלך שלב זה ובכל השלבים הבאים. - סבבו את תרחיף התאים בצנטריפוגה ב-600 × g למשך 5 דקות ב- 4°C כאשר הבלם מופעל, שאבו את העל-משקע (supernatant) והשאירו את משקע התאים.
- שטפו את התאים פעמיים ב-1 מ"ל של 1× PBS והשביו את משקע התאים הסופי ב- 100 µL של 1× PBS.
הערה: אם צובעים מטרות על פני השטח של התא באמצעות נוגדנים ראשוניים המשולבים עם פלואורופור, בצעו את צביעת הפני השטח בשלב זה בהתאם להוראות היצרן לפני המעבר לקיבוע.
4. טיפול בתאים ב-1% PFA
הערה: עבור דגימות לפני קיבוע ב-PFA (ראו שלב 2.6.1 ואיור 1), בצעו את שלבים 6, 7 ו-8 לפני המשך לעבודה עם סעיף זה.
- אל התאים שהושעו מחדש ב-100 µL של 1× PBS, הוסיפו 1 mL של 1% PFA לכל מבחנה של דגימה, כולל כל מבחנות הביקורת עם צבע בודד. ערבבו בעזרת וורטקס (Vortex) בעדינות למשך 3 s והדגיתו את הדגימות בטמפרטורת החדר למשך 15–20 min, כשהן מוגנות מאור.
- סובבו במרכזפוגה את תרחיף התאים ב-600 × g למשך 5 min ב-4°C עם הפעלת הבלם. שאבו והשליכו את העליון (supernatant), והשאירו את משקע התאים.
- שטפו את משקע התאים פעמיים על ידי השעיה מחדש שלו ב-1 mL של FACS buffer, ולאחר מכן ביצוע סבב מרכזפוגה ב-600 × g למשך 5 min ב-4°C עם הפעלת הבלם.
- השעו מחדש את משקע התאים הסופי ב-100 µL של FACS buffer.
הערה: ניתן לשמור תאים מקובעים (צבועים או לא צבועים) ב-1 mL של FACS buffer ב-4°C למשך 12–48 h. כדי להמשיך בפרוטוקול, סובבו במרכזפוגה את תרחיף התאים ב-600 × g למשך 5 min ב-4°C עם הפעלת הבלם, שאבו את העליון והשעו מחדש את משקע התאים ב-100 µL של FACS buffer.
5. חדיר את התאים באמצעות EtOH
הערה: עבור דגימות Pre-EtOH (ראה שלב 2.6.1 ואיור 1), בצע את שלבים 6, 7 ו-8 לפני המשך לעבודה עם סעיף זה.
- הוסיפו בעדינות 1 mL של 70% EtOH קר מאוד לדופן הפנימית של כל מבחנה לדוגמית המכילה 100 µL של תרחיף תאים, ולאחר מכן ערבלו מיד במכשיר vortex בעוצמה של כ-50% למשך 5 s. חזרו על הליך זה עבור כל שאר מבחנות הדגימה ומבחנות הביקורת הצבועות בצבע בודד.
- דגרו את המבחנות בטמפרטורה של −20°C למשך שעיים לפחות, תוך הגנה מאור.
הערה: ניתן לאחסן את התאים ב-1 mL של 70% EtOH בטמפרטורה של −20°C למשך 12–48 h לפני המשך הפרוטוקול. - סבבו את תרחיף התאים בצנטריפוגה במהירות של 600 × g למשך 5 min בטמפרטורה של 4°C עם בלימה, ולאחר מכן שאבו את העילוי והשאירו את משקע התאים.
- שטפו את התאים שלוש פעמים עם 1 mL של FACS buffer, תוך סבב בצנטריפוגה במהירות של 600 × g למשך 5 min בטמפרטורה של 4°C עם בלימה בין השטפות.
- סספנדו מחדש את משקע התאים הסופי ב-100 µL של FACS buffer.
6. חסום את התאים
- הוסיפו 820 µL של FACS buffer ו-80 µL של סרום עזים נורמלי (NGS) לכל מבחנה כדי להכין תמיסת חסימה סופית המכילה 92% FACS buffer ו-8% NGS. ערבבו בעדינות ב-Vortex למשך 3 s והדגירו את הדגימות בטמפרטורת החדר למשך 30 min, במצב סטטי ובמקום מוגן מאור.
- סובבו את תרחיף התאים בצנטריפוגה במהירות של 600 × g למשך 5 min בטמפרטורה של 4°C עם בלימה, ולאחר מכן שאבו את הנוזל העליון (supernatant), כך שיישאר משקע התאים.
- שטפו את התאים פעמיים על ידי סספנסיות מחדש של המשקע ב-1 mL של FACS buffer, ולאחר מכן בצעו צנטריפוגה כפי שמתואר בשלב 6.2.
- סספנו מחדש את משקע התאים הסופי ב-100 µL של FACS buffer.
7. צביעת תאים עם נוגדן ראשוני לא מצומד
- הוסיפו 0.5 µL של הנוגדן הראשוני שאינו מצומד ל-100 µL של תרחיף תאים (דילול 1:200). דגרו את הדגימות בטמפרטורת החדר למשך 1 h, מוגנים מאור.
הערה: דילול של 1:200 הוא ריכוז התחלה מומלץ ועשוי לדרוש אופטימיזציה עבור נוגדים אחרים.- במידה ומבצעים תחרות פפטידים, הוסיפו את הפפטיד מיד לפני הוספת הנוגדן הראשוני. בפרוטוקול זה, הפפטידים תיתרו ביחסים מולריים של פפטיד-לנוגדן בטווח שבין 50 ל-0.625, שחושבו ביחס לריכוז הנוגדן (4.3 nM) בתערובת התגובה. ייתכן שתידרש אופטימיזציה עבור זוגות פפטיד-נוגדן ספציפיים.
- הוסיפו 1 mL של FACS buffer וסובבו את תרחיף התאים בצנטריפוגה במהירות של 600 × g למשך 5 min בטמפרטורה של 4°C עם בלימה (brake). שאבו את העלייה, והשאירו את משקע התאים.
- שטפו את התאים פעמיים נוספות עם 1 mL של FACS buffer, תוך סיבוב בצנטריפוגה כפי שמתואר בשלב 7.2.
- השעיו שוב את משקע התאים הסופי ב-100 µL של FACS buffer.
8. צביעת תאים עם נוגדן שני המשוייך לפלואורופור
- הוסיפו לדוגמית לכל מבחנה לדגימה ולמבחנת הביקורת התואמת דילול של 1:200 של הנוגדן המשני המסומן בפלואורופור (0.5 µL נוגדן ב-100 µL של תגלהי תאים).
הערה: בפרוטוקול זה נעשה שימוש בנוגדן משני Goat anti-rabbit DyLight 488. - דגרו את הדגימות בטמפרטורת החדר למשך 1 h, תוך הגנה מאור.
- הוסיפו 1 mL של FACS buffer. סנטריפוגו את תגלהי התאים ב-600 × g למשך 5 min ב-4°C עם בלם פעיל, לאחר מכן שאבו את הנוזל העליון והשאירו את משקע התאים.
- שטפו את התאים פעמיים עם 1 mL של FACS buffer על ידי חזרה על הסנטריפוגה המתוארת בשלב 8.3.
- סספנדו מחדש את התאים ב-300–500 µL של FACS buffer.
הערה: ניתן לשמור את התאים ב-FACS buffer ב-4°C, מוגנים מאור, למשך 1–3 ימים לפני ניתוח בציטומטריית זרימה.
9. ניתוח דגימות באמצעות פלוו-ציטומטריה
- בצעו פיצוי פלואורסצנציה (fluorescence compensation) באמצעות בקרות מתאימות לצביעה בודדת. רכשו את הדגימות בציטומטר זרימה ואספו לפחות 5,000–10,000 אירועים של תאים חיים בודדים לצורך ניתוח. בפרוטוקול זה, נעשה שימוש בתוכנת FACSDiva לרכישת הנתונים.
- נתחו את הנתונים על ידי החרגה ראשונית של פסדתיים (debris) באמצעות גרף של שטח פיזור קדמי (FSC-A) מול שטח פיזור צדי (SSC-A), ולאחר מכן החרגה של דובלטים (doublets) באמצעות גובה FSC (FSC-H) מול רוחב FSC (FSC-W) וגובה SSC (SSC-H) מול רוחב SSC (SSC-W). הדירו תאים מתים באמצעות ערוץ צבע החיוניות.
- נתחו את אחוז התאים החיים הבודדים שנותרו ואשר שמיקומהם חיובי או שלילי עבור חלבוני המטרה שנבחרו (ראו תוצאות מייצגות). הגדירו שערי חיוביות (positive gates) באמצעות הבקרות ללא צביעה ובקרות של נוגדן שני בלבד, והשלימו קריטריוני שערים זהים לכל הדגימות המשוואות בתוך אותה סדרת רכישה.
תוצאות
הפרוטוקול המתואר כאן מאפשר סומון תוך-תאי של חלבוני מטרה שעבורם אין נוגדנים מסחריים המוכשרים לציטומטריה של זרימה. כדוגמה מייצגת, נערך הערכה של סומון של תת-יחידה 1 של גורם השחייה 3a (SF3A1), חלבון שחייה המובע באופן נרחב והממוקם בגרעין, תוך שימוש בנוגדן פוליקלונלי מארנב שהוכן כנגד פפטיד המקביל לחומצות האמינו 18–37 של SF3A1 (SF3A118–37; EPKQPTEEEASSKEDSAPSK)18,19.
על מנת להעריך את תהליך הצביעה, התאים נצבעו באמצעות anti-SF3A1 לא מצומד18–37 נוגדן פוליקלונלי ראשוני לפני או אחרי טיפול ב-paraformaldehyde (PFA) בלבד, או טיפול רצופי PFA + EtOH (איורים 1 ו-2). כפי שצפוי, לא זוהתה אוכלוסייה חיובית ל-SF3A1 בדגימות שנצבעו לפני הטיפול ב-PFA (Pre-PFA) או לפני טיפול עקיף ב-PFA וב-EtOH (Pre-EtOH) (איור 2A). צביעה שבוצעה לאחר טיפול ב-PFA בלבד (Post-PFA) זיהתה אוכלוסייה קטנה חיובית ל-SF3A1 (איור 2Bבניגוד לכך, אוכלוסייה מובחנת חיובית ל-SF3A1 נצפתה רק כאשר הצביעה בוצעה לאחר חדירות באמצעות EtOH (Post-EtOH) (איור 2בממצאים אלו מעידים כי תהליך העבודה מזהה כמות גדולה משמעותית יותר של צביעת SF3A1 לאחר חדירות (permeabilization) באמצעות EtOH מאשר לאחר טיפול ב-PFA בלבד.
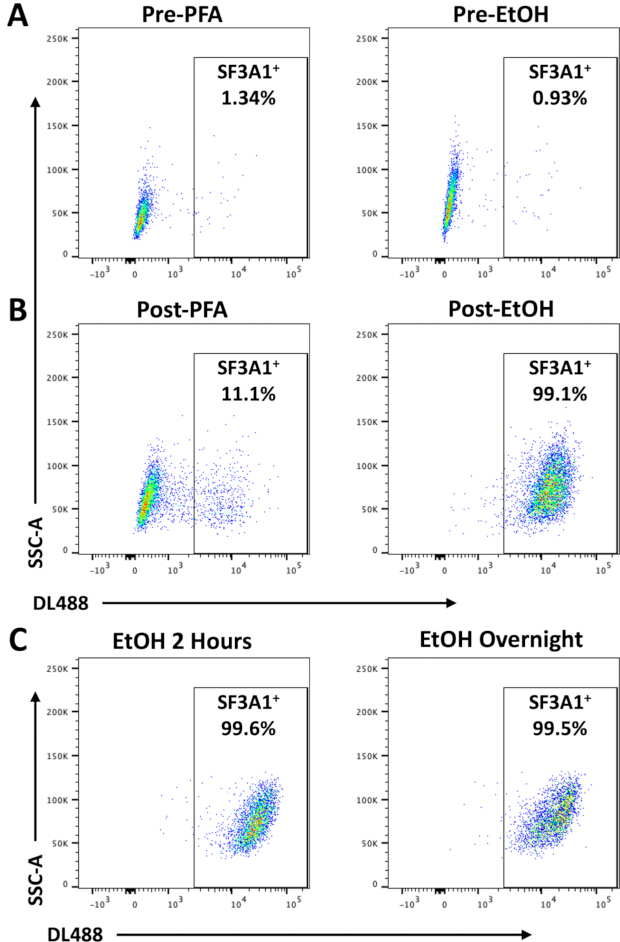
איור 2. הערכה של צביעת SF3A1 לאחר קיבוע בפראפורמלהיד ופרמיאביליזציה באתנול. תרשימי ציטומטריה זרימה מייצגים של תאי K562 חיים, שליליים לצבע חיוניות, המראים פלואורסצנציית DyLight 488 (DL488) לעומת שטח פיזור צדי (SSC-A). האזור הממוסגר מציין את אוכלוסיית התאים החיוביים ל-SF3A1 (SF3A1⁺). SF3A1, splicing factor 3a subunit 1; PFA, פראפורמלהיד; EtOH, אתנול. (A) צביעה בנוגדן SF3A1 שבוצעה לפני קיבוע ב-PFA (Pre-PFA; שמאל) או לפני קיבוע ב-PFA ופרמיאביליזציה עוקבת ב-EtOH (Pre-EtOH; ימין). (B) צביעה בנוגדן SF3A1 שבוצעה לאחר קיבוע ב-PFA (Post-PFA; שמאל) או לאחר קיבוע ב-PFA ופרמיאביליזציה עוקבת ב-EtOH (Post-EtOH; ימין). (C) השוואה של צביעת SF3A1 לאחר פרמיאביליזציה ב-EtOH למשך 2 h או למשך לילה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
כדי לקבוע האם משך החשיפה ל-EtOH השפיע על הצביעה או על שלמות התאים, תאים טופלו ב-EtOH למשך שעתיים או ללילה. ניתוח בציטומטריה זרימתית לא הראה הבדלים ניכרים בעוצמת הצביעה או בשלמות הנראית של התאים בין שני התנאים (איור 2C). ממצאים אלו מעידים כי חדירות (permeabilization) של שעתיים ב-EtOH הניבה צביעה דומה לזו של דגירה למשך לילה בתנאים שנבדקו.
לאחר אישור העובדה שחדירות באמצעות EtOH הניבה צביעה גילוי של SF3A1 (איור 2B) וקביעת רמת baseline של צביעת SF3A1 בהיעדר פפטיד מתחרה (איור 3A), הוערכה ספציפיות הנוגדן באמצעות תחרות פפטידית. תאים הועשרו עם SF3A118–37 או עם פפטיד בקרה לא ספציפי המתאים לחומצות האמינו 778–793 של SF3A1 (SF3A1778–793; GAVIHLALKERGGRKK). הפפטידים הוספו יחד עם הנוגדן הראשוני (פרוטוקול, שלב 7). דגירה עם עודף של הפפטיד הספציפי SF3A118–37 הפחיתה את אחוז התאים החיוביים ל-SF3A1 לרמה דומה לבקרת התאים שלא נצבעו, בעוד שהפפטיד הלא ספציפי SF3A1778–793 לא שינה באופן מדיד את פרופיל הצביעה (איור 3B,C). ניסויי טיטראציה של פפטידים הדגימו עיכוב תלוי-מינון של קישור הנוגדן על ידי הפפטיד ההומולוג SF3A118–37 (IC50 = 21.6 nM), בעוד שלא נצפה עיכוב עם עודף מולרי של עד 50-מכפלה של הפפטיד הלא ספציפי SF3A1778–793 (איור 3D). תוצאות אלה מוכיחות כי ניתן להשתמש במבחן תחרות פפטידית להערכת עיכוב של קישור נוגדנים באמצעות ציטומטריית זרימה.
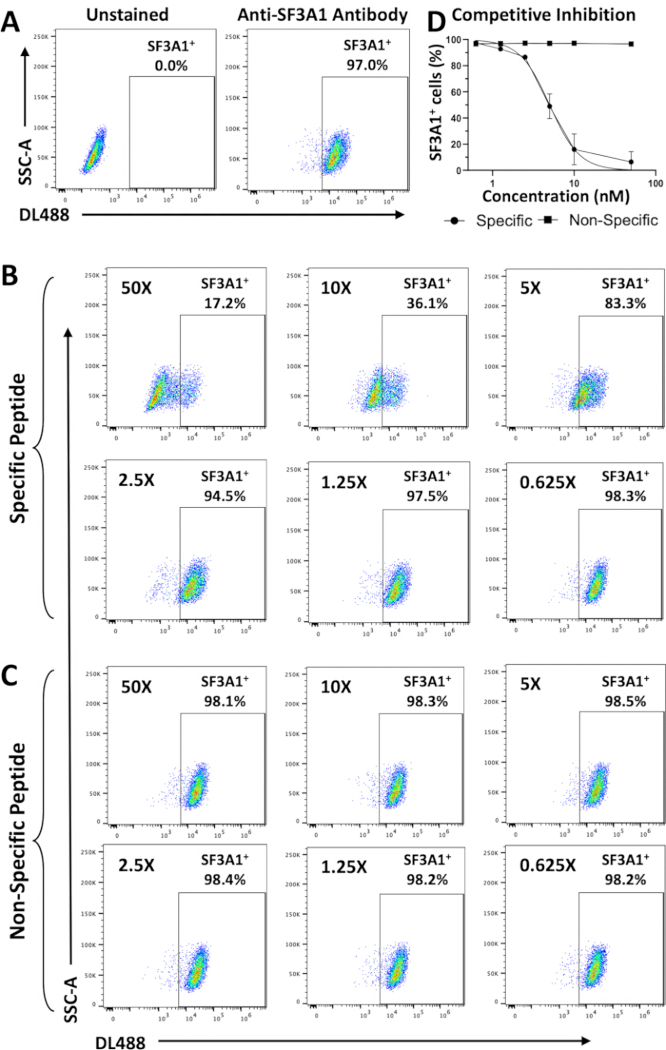
איור 3עיכוב תחרותי תלוי-מינון של צביעה בנוגדן SF3A1 על ידי פפטיד קוגנאטי. תרשימי זרימה (flow cytometry plots) מייצגים של תאי K562 חיים, שאינם צבועים בצבע בדיקת חיוניות, המראים פלורסצנציית DyLight 488 (DL488) לעומת שטח פיזור צד (SSC-A). האזור המסומן בריבוע מצביע על האוכלוסייה החיובית ל-SF3A1 (SF3A1⁺). SF3A1, תת-יחידה 1 של גורם השחייה 3a (splicing factor 3a subunit 1). (A) ביקורת לא צבועה וצביעה בנוגדן אנטי-SF3A1. (B) צביעת SF3A1 לאחר הוספה תלוית-מינון של הפפטיד ההומולוג SF3A1(18–37). (C) צביעת SF3A1 לאחר הוספה תלוית-מינון של הפפטיד הבלתי ספציפי SF3A1(778–793). ריכוזי הפפטידים היו 216, 43.3, 21.7, 10.8, 5.4 ו-2.7 nM; יחסי המולריות של פפטיד-נוגדן המוצגים באיור חושבו ביחס לריכוז נוגדן SF3A1 של 4.33 nM. (D) עקום עיכוב תחרותי המראה את אחוז התאים החיוביים ל-SF3A1 כפונקציה של ריכוז הפפטיד. הפפטיד ההומולוג SF3A1(18–37) עיכב את קישור הנוגדן באופן תלוי מינון, בעוד שהפפטיד SF3A1(778–793) לא עיכב. הריכוז המעכב החציוני (IC₅₀) עבור הפפטיד ההומולוג היה 21.6 nM, כפי שנקבע באמצעות מודל התאמה מיטבית לא-ליניארי של מעכב מול תגובה מנורמלת עם שיפוע משתנה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
לבסוף, הפרוטוקול הוערך לזיהוי של קולטן האריתרופואטין (EpoR), קולטן על פני התאC שנמצא גם בתוך התא במהלך הביוסינתזה של הקולטן ולאחר הפנמה המושרה על ידי ליגנד20,21. EpoR הוא חלבון בן 508 חומצות אמינו המורכב מדומיין N-טרמינלי חוץ-תאי, אזור חסום-מעבר יחיד המשתרע על חומצות אמינו 251–273, ודומיין C-טרמינלי תוך-תאי. נוגדן פוליקלונלי לארנב נגד EpoR שאינו מצומד (BS-1424R), אשר תוקף בעבר עבור western blotting, אימונוהיסטוכימיה ואימונופלואורסצנציה אך לא עבור ציטומטריה זרימה22,23,24,25,26, הוחל באמצעות זרימת העבודה של הצביעה שתוארה לעיל. לפי היצרן, BS-1424R הופק נגד חומצות אמינו 330–365 בתוך הדומיין התוך-תאי של EpoR.
כאשר התאים נצבעו לפני הטיפול ב-PFA (Pre-PFA), <10% מתאי K562 היו חיוביים לצביעת EpoR (איור 4A). לעומת זאת, כ-77% ו-84% מתאי K562 היו חיוביים לאחר טיפול ב-PFA בלבד (Post-PFA) ובטיפול רצופי של PFA בתוספת EtOH (Post-EtOH), בהתאמה (איור 4B–D). בניגוד לצביעת SF3A1, נצפתה צביעת EpoR מוגברת לאחר שני זרימי העבודה, Post-PFA ו-Post-EtOH (השוו איורים 2B ו-4Dממצאים אלו עולים בקנה אחד עם מיקומו של האפיטופ BS-1424R בתוך הדומיין התוך-תאי של EpoR. זיהוי של תגובתיות חיסונית (immunoreactivity) של EpoR תחת שני תנאי הצביעה מעיד על כך שטיפול ב-PFA חולל חדירות מספקת בממברנת הפלזמה של תאי K562, באופן המאפשר קישור של הנוגדן לאפיטופ התוך-תאי. בזרימת עבודה זו, שימוש בנוגדן משני יחיד מחייב הערכה של מאגרי EpoR על פני השטח ובתוך התא באמצעות דגימות שעברו טיפול וצביעה בנפרד. ניתן להתגבר על מגבלה זו על ידי שימוש בנוגדנים ראשוניים שהופקו במינים מארחים שונים, כדי לאפשר זיהוי מרובה (multiplex detection) באמצעות נוגדנים משניים ספציפיים למינים.
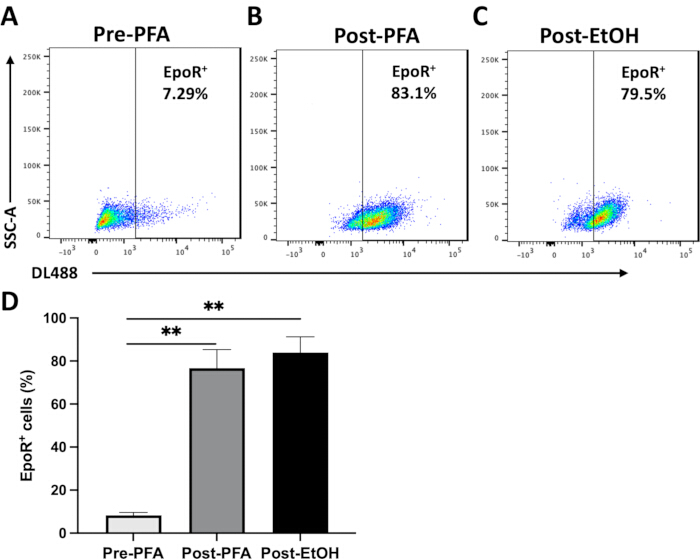
איור 4. זיהוי של קולטן האריתרופויטין (EpoR) בתאי K562 תחת תנאי קיבוע וחדירה (permeabilization) שונים. תרשימי ציטומטריית זרימה מייצגים של תאי K562 חיים ושליליים לצבע חיוניות, המראים פלואורסצנציית DyLight 488 (DL488) לעומת שטח פיזור צדי (SSC-A). האזור במסגרת מציין את אוכלוסיית תאי ה-EpoR-חיוביים (EpoR⁺). צביעת EpoR בוצעה באמצעות הנוגדן הפוליקלונלי BS-1424R שהופק נגד חומצות האמינו 330–365 בתוך הדומיין התו-תאי של EpoR. (A) צביעת EpoR לפני קיבוע ב-PFA (Pre-PFA). (B) צביעת EpoR לאחר קיבוע ב-PFA (Post-PFA). (C) צביעת EpoR לאחר קיבוע רצופי ב-PFA וחדירה באמצעות EtOH (Post-EtOH). (D) כימות של תאי EpoR-חיוביים תחת כל תנאי צביעה. הנתונים מוצגים כממוצע ± טעות תקן של הממוצע (SEM) משלושה ניסויים עצמאיים (n = 3). מובהקות סטטיסטית נקבעה באמצעות מבחן Student's t-test. P < 0.01 מסומן על ידי **. ההשוואות המוצגות הן Pre-PFA מול Post-PFA ו-Pre-PFA מול Post-EtOH. Ab, נוגדן; EpoR, קולטן האריתרופויטין; PFA, פאראפורמאלדהיד; EtOH, אתנול. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
דיון
התוצאות המוצגות כאן מדגישות מספר פרמטרים קריטיים לזיהוי חלבונים באמצעות ציטומטריה של זרימה ת hücreית (intracellular flow cytometry) תוך שימוש בנוגדנים ראשוניים שאינם מצומדים. שיקול חשוב הוא אסטרטגיית הפרמיליזציה (permeabilization), אותה יש לבחור בהתאם למיקום התוך-תאי של חלבון המטרה. בזרימת העבודה המתוארת כאן, קיבוע ב-PFA ואחריו פרמיליזציה ב-EtOH אפשרו זיהוי של החלבון הגרעיני SF3A1, בעוד שתגובתיות חיסונית של EpoR זוהתה הן בזרם העבודה של Post-PFA והן בזה של Post-EtOH. בעת הערכה של חלבוני פני השטח, יש לבצע את הצביעה לפני הטיפול ב-PFA, בעוד שצביעה תוך-תאית יכולה להתבצע לאחר הטיפול ב-PFA ובמידת הצורך, לאחר מכן פרמיליזציה נוספת ב-EtOH. זרימת עבודה זו מאפשרת הערכה של חלבוני פני השטח ושל חלבונים תוך-תאיים בתוך אוכלוסיות תאים המוגדרות אימונופנוטיפית, תוך שימוש בתנאי צביעה נפרדים.
למרות ש-PFA משמש בדרך כלל כחומר מקבע לתאים, טיפול ב-1% PFA גרם לחדירות מספיקה של ממברנה הפלזמה של תאי K562 כדי לאפשר קישור של הנוגדן ל-EpoR לאפיטופ תוך-תאי. הוכח כי חדירות המתווכת על ידי PFA מאפשרת כניסה של נוגדנים גם בקווי תאים אחרים, כולל תאי HEK293T ותאי HeLa; עם זאת, הדבר הושג באמצעות ריכוז גבוה יותר של PFA (4%)11. הבדלים אלו מרמזים על השפעות של PFA התלויות בסוג התא; לכן, ייתכן שיהיה צורך באופטימיזציה של תנאי הקיבוע כדי למקסם את זיהוי האפיטופ. חומרי חדירות תאיים חלופיים כוללים את הדטרגנטים saponin, digitonin ו-Triton X-100, הפועלים במנגנונים שונים. בעוד ש-Triton X-100 יוצר חדירות באופן לא ספציפי בממברנות התאיות, saponin ו-digitonin יוצרים חדירות בתאים על ידי קישור לכולסטרול ולסטרולים אחרים של הממברנה27. מחקרים הראו כי ריכוזים נמוכים של digitonin יוצרים חדירות סלקטיבית לממברנת הפלזמה תוך שמירה על שלמות הממברנות המיטוכונדריאליות והגרעיניות28,29,30. לפיכך, ניתן להשתמש בשילובים מתאימים של חומרים אלו כדי להבחין בין מיקומי חלבונים בתאים במדורים תת-תאיים שונים, אם כי מגבלה אחת של גישות אלו היא הפסד פוטנציאלי של אנטיגנים תוך-תאיים ופגיעה בשלמות האפיטופ13,31.
הפרוטוקול ניתן להתאמה בקלות וניתן לשנותו בהתאם לדרישות הניסוי. לדוגמה, ניתן להתאים את משך הטיפול ב-EtOH מבלי לפגוע באופן ניכר בביצועי הצביעה או בשלמות התאים, מה שמעניק גמישות לזרימות עבודה הנפרסות על פני מספר ימים, במיוחד כאשר תנאי הצביעה שלפני ואחרי הפירמיליזציה מבוצעים במקביל (איור 1). ניתן להחיל את הפרוטוקול גם על סוגי תאים אחרים, כולל תאי המטופואזיס אנושיים ראשוניים; עם זאת, ייתכן שיהיה צורך באופטימיזציה של תנאי הקיבוע, הפירמיליזציה והצנטריפוגה, מכיוון שטיפולים אלו עשויים להשפיע על נגישות האפיטופ, יעילות קישור הנוגדנים, שלמות התאים ועוצמת אות הפלואורסצנציה14,32,33. בנוסף, אופטימיזציה של זמני החשיפה ל-PFA ו-EtOH, כמו גם תנאי הצנטריפוגה, עשויה לסייע בשמירה על חיוניות התאים ובצמצום אובדן תאים מוגבר. גילוי של מטרות חלבוניות נוספות אפשרי באופן דומה לאחר אופטימיזציה של ריכוז הנוגדנים ותנאי האינקובציה.
מגבלות פוטנציאליות כוללות עוצמת אות חלשה, אותה ניתן לשפר על ידי הגברת ריכוז הנוגדן הראשוני או על ידי הגברה באמצעות נוגדן משני. ניתן להפחית צביעה לא ספציפית באמצעות אופטימיזציה של תנאי החסימה (blocking) או על ידי תחרות פפטידית. השימוש בנוגדי גוף פוליקלונליים עלול להוביל לשונות בין סדרות ייצור ולהגביר את הפוטנציאל לקשירה לא ספציפית; לכן, יש לתקף בקפידה את ספציפיות הנוגדן עבור כל יישום. יתרה מכך, תחרות פפטידית מעידה על תלות בפפטיד המעורר את התגובה החיסונית, אך אינה קובעת באופן עצמאי את ספציפיות הנוגדן. במקרה של הנוגדן anti-SF3A1, מחקרי שיקוע חיסוני (immunoprecipitation) קודמים ביססו את ספציפיות הנוגדן19. גישות משלימות נוספות לתיקוף ספציפיות של נוגדנים כוללות דלדול אנטיגן (antigen depletion), השתקת גנים (gene knockdown), השבאת גנים (gene knockout), או שימוש במודלים של תאים שאינם מכילים את האנטיגן. בנוסף, גישה זו אינה תואמת באופן מובנה לכל הפנלים רב-הצבעיים, מכיוון שהשימוש במספר נוגדנים משניים עלול להביא לתגובה צולבת ולהגביל את הריבוי (multiplexing), אלא אם ייושמו בקרות מתאימות. לכן, בחירה קפדנית של נוגדנים משניים ופלואורופורים היא חשובה כדי למזער את צביעת הרקע ולמקסם את רזולוציית האות.
הפרוטוקול המתואר כאן מספק זרימת עבודה להערכה באמצעות פלואו-סייטומטריה של חלבונים תוך-תאיים בתאי erythroleukemia אנושיים מסוג K562. הוא תומך גם בהערכת ביצועי נוגדנים באמצעות תחרות פפטידים ובהערכת תגובתיות חיסונית הקשורה לרצפטורים תחת תנאי צביעה שונים. גישה זו עשויה להיות שימושית לחקירת שינויים בביטוי חלבונים במהלך התמיינות תאית או בתגובה לגירויים חוץ-תאיים, כולל מחקרים של גורמי שעתוק, חלבונים לעיבוד RNA וביולוגיה של רצפטורים בתוך אוכלוסיות תאים המוגדרות אימונו-פנוטיפית. במחקר נפרד, זרימת עבודה זו שימשה לחקירת שינויים המתווים על ידי erythropoietin באנזימים של מטבוליזם ליפידי תוך-תאי בתאי גזע ותאי פרוגניטורים המטופויטיים אנושיים העוברים התמיינות אריתרואידית34, מה שמוכיח את יכולת ההתאמה של הפרוטוקול לתאים ראשוניים. באופן כללי, פרוטוקול זה מרחיב את היישום של נוגדנים ראשוניים לא מצומדים בפלואו-סייטומטריה ומספק זרימת עבודה גמישה להערכת ביטוי חלבונים בתאים מתרבות.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
המחברים מודים על תמיכה מימונית ל-SS מהמכון הלאומי למדעי הרפואה הכללית (R01GM127464) ומהמכון הלאומי לסרטן (P30CA023074), שניהם מטעם המכוניים הלאומיים לבריאות (National Institutes of Health), מתכנית השותפות למחקר של ואלי (VRP P1-4009 ו-VRP77), וממרכז המחקר הביו-רפואי של אריזונה (ABRC: RFGA2022-010-30). התוכן הוא באחריותם הבלעדית של המחברים ואינו מייצג בהכרח את העמדות הרשמיות של המכוניים הלאומיים לבריאות. המחברים מודים גם על תמיכתה של ד"ר Mrinalini Kala, מנהלת יחידת הליבה לציטומטריה זרימתית (Flow Cytometry Core Facility), במכללה לרפואה–פיניקס, אוניברסיטת אריזונה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 10× Phosphate-buffered saline (PBS) | הכנה עצמית | N/A | חלופה: PBS זמין מסחרית |
| מבחנות צנטריפוגה 15 mL | VWR | 89039-664 | חלופה: כל מבחנת צנטריפוגה סטרילית בגודל מתאים |
| מבחנות פוליסטירן בעלות תחתית עגולה 5 mL | Corning | 352052 | חלופה: כל מבחנת ציטומטריית זרימה התואמת לציטומטר הזמין |
| נוגדן משני Anti-rabbit DyLight 488 | Thermo Fisher Scientific | PI35553 | חלופה: נוגדן משני התואם למין המארח של הנוגדן הראשוני |
| סופר תאים אוטומטי | Thermo Fisher Scientific | AMQAF2000 | חלופה להמיציטומטר |
| ערכת חרוזי פיצוי ArC Amine Reactive Compensation Bead Kit | Thermo Fisher Scientific | A10628 | חלופה: תאים; במידה ומשתמשים בתאים עבור בקרות צביעה בודדת, יש לעבד את כל מבחנות הבקרה באופן זהה למבחנות הדגימה |
| מסנן קצה לבקבוק | Thermo Fisher Scientific | 595-4520 | ממברנת ניילון; 0.2 µm |
| שקופיות לספירת תאים | Thermo Fisher Scientific | C10228 | נדרש רק בעת שימוש בסופר תאים אוטומטי |
| Dimethyl sulfoxide (DMSO) | סופק עם ערכת צבע הבקיאות | N/A | משמש להמסה מחדש של צבע הבקיאות הליופילים |
| אתנול, 200 proof | Thermo Fisher Scientific | BP28184 | בדרגת ביולוגיה מולקולרית; משמש להכנת אתנול 70% קר במקרר |
| נוגדן ראשוני פוליקלונלי לקולטן an Erythropoietin | Bioss | BS-1424R | |
| סרום עגל עדאי (FBS) | Omega Scientific | FB-12 | חלופה: כל FBS שעבר תיקוף עבור קו התאים המטרה |
| ציטומטר זרימה | BD Biosciences | BD Canto II | חלופה: כל ציטומטר זרימה מתאים |
| המיציטומטר | Hausser Scientific | HS3200 | חלופה: סופר תאים אוטומטי |
| פלטת ערבוב מגנטית מחוממת | Thermo Fisher Scientific | SP88857100 | משמשת להכנת PBS ופרהפורמלהיד |
| תאי לוקמיה מיאלואית אנושית K562 | ATCC | CCL-243 | ניתן לרכוש מכל מקור מאומת אחר |
| צבע בקיאות מקבע Live-or-Dye fixable viability dye (405/545) | Biotium | 32009 | חלופה: כל צבע בקיאות מקבע תואם. צבעים שאינם מקובעים (למשל 7-AAD) אינם מתאימים |
| סרום עיזים נורמלי | Thermo Fisher Scientific | 16210064 | משמש לחסימה |
| אבקת פרהפורמלהיד | Sigma-Aldrich | P6148 | חלופה: תמיסת פרהפורמלהיד זמינה מסחרית |
| מד/פרוב pH | Accumet | AB15 | משמש לכיוון pH של הבאפר |
| אשלגן כלוריד (KCl) | Thermo Fisher Scientific | BP366-1 | |
| אשלגן פוספט מונובסי (KH2PO4) | Thermo Fisher Scientific | BP362-1 | |
| נוגדן ראשוני פוליקלונלי ל-SF3A1 | הכנה עצמית | N/A | |
| נתרן כלוריד (NaCl) | Thermo Fisher Scientific | BP358-1 | |
| תמיסת נתרן הידרוקסיד (5 M) | MilliporeSigma | S8263 | חלופה: הכנת תמיסה 5 M מגבישי נתרן הידרוקסיד |
| נתרן פוספט דיבסי (Na2HPO4) | Thermo Fisher Scientific | BP332-1 | |
| מגנט ערבוב | VWR | 74950-286 | משמש עם פלטת הערבוב המגנטית |
| Trypan Blue, 0.4% | Thermo Fisher Scientific | 15250061 | משמש לספירת בקיאות תאים |
| חרוזי פיצוי UltraComp eBeads Compensation Beads | Thermo Fisher Scientific | 01-2222-42 | חלופה: תאים; במידה ומשתמשים בתאים עבור בקרות צביעה בודדת, יש לעבד את כל מבחנות הבקרה באופן זהה למבחנות הדגימה |
מקורות
- Schippel N, Sharma S. Dynamics of human hematopoietic stem and progenitor cell differentiation to the erythroid lineage. Exp Hematol. 2023;123:1-17. DOI:10.1016/j.exphem.2023.05.001.
- Schippel N, Kala M, Sharma S. Erythropoietin-dependent acquisition of CD71hiCD105hi phenotype within CD235a- early erythroid progenitors. Stem Cells. 2025;43(12). DOI:10.1093/stmcls/sxaf061.
- Robinson JP. Flow cytometry: past and future. BioTechniques. 2022;72(4):159-169. DOI:10.2144/btn-2022-0005.
- Freer G, Rindi L. Intracellular cytokine detection by fluorescence-activated flow cytometry: basic principles and recent advances. Methods. 2013;61(1):30-38. DOI:10.1016/j.ymeth.2013.03.035.
- Krutzik PO, Nolan GP. Intracellular phospho-protein staining techniques for flow cytometry: monitoring single-cell signaling events. Cytometry A. 2003;55(2):61-70. DOI:10.1002/cyto.a.10072.
- Manso BA, Medina KL. Standardized flow-cytometry-based protocol to simultaneously measure transcription factor levels. STAR Protoc. 2021;2(2):100485. DOI:10.1016/j.xpro.2021.100485.
- Hallden G, Andersson U, Hed J, Johansson SG. A new membrane permeabilization method for the detection of intracellular antigens by flow cytometry. J Immunol Methods. 1989;124(1):103-109. DOI:10.1016/0022-1759(89)90191-9.
- Kalina T, Lundsten K, Engel P. Relevance of antibody validation for flow cytometry. Cytometry A. 2020;97(2):126-136. DOI:10.1002/cyto.a.23895.
- Voskuil JL. The challenges with the validation of research antibodies. F1000Res. 2017;6:161. DOI:10.12688/f1000research.10851.1.
- Koeffler HP, Golde DW. Human myeloid leukemia cell lines: a review. Blood. 1980;56(3):344-350.
- Bernard E, et al. Assessing the limitations of paraformaldehyde fixation for accurate cell surface receptor measurement. Front Pharmacol. 2026;17:1727410. DOI:10.3389/fphar.2026.1727410.
- Jamur MC, Oliver C. Permeabilization of cell membranes. Methods Mol Biol. 2010;588:63-66. DOI:10.1007/978-1-59745-324-0_9.
- Cheng R, et al. Influence of fixation and permeabilization on the mass density of single cells: a surface plasmon resonance imaging study. Front Chem. 2019;7:588. DOI:10.3389/fchem.2019.00588.
- Hobro AJ, Smith NI. An evaluation of fixation methods: spatial and compositional cellular changes observed by Raman imaging. Vib Spectrosc. 2017;91:31-45. DOI:10.1016/j.vibspec.2016.10.012.
- Schimenti KJ, Jacobberger JW. Fixation of mammalian cells for flow cytometric evaluation of DNA content and nuclear immunofluorescence. Cytometry. 1992;13(1):48-59. DOI:10.1002/cyto.990130109.
- Kandarian F, Sunga GM, Arango-Saenz D, Rossetti M. A flow cytometry-based cytotoxicity assay for the assessment of human NK cell activity. J Vis Exp. 2017;(126). DOI:10.3791/56191.
- Bapat A, Keita N, Sharma S. Pan-myeloid differentiation of human cord blood derived CD34+ hematopoietic stem and progenitor cells. J Vis Exp. 2019;(150). DOI:10.3791/59836.
- Martelly W, et al. Identification of a noncanonical RNA binding domain in the U2 snRNP protein SF3A1. RNA. 2019;25(11):1509-1521. DOI:10.1261/rna.072256.119.
- Sharma S, et al. Stem-loop 4 of U1 snRNA is essential for splicing and interacts with the U2 snRNP-specific SF3A1 protein during spliceosome assembly. Genes Dev. 2014;28(22):2518-2531. DOI:10.1101/gad.248625.114.
- Sulahian R, Cleaver O, Huang LJ. Ligand-induced EpoR internalization is mediated by JAK2 and p85 and is impaired by mutations responsible for primary familial and congenital polycythemia. Blood. 2009;113(21):5287-5297. DOI:10.1182/blood-2008-09-179572.
- Sinclair AM, et al. Erythropoietin receptor transcription is neither elevated nor predictive of surface expression in human tumour cells. Br J Cancer. 2008;98(6):1059-1067. DOI:10.1038/sj.bjc.6604220.
- Li X, et al. Oxidative stress induces the decline of brain EPO expression in aging rats. Exp Gerontol. 2016;83:89-93. DOI:10.1016/j.exger.2016.07.012.
- Liu T, et al. Multifaceted roles of a bioengineered nanoreactor in repressing radiation-induced lung injury. Biomaterials. 2021;277:121103. DOI:10.1016/j.biomaterials.2021.121103.
- Zhang Y, et al. Erythropoietin receptor is a risk factor for prognosis: a potential biomarker in lung adenocarcinoma. Pathol Res Pract. 2023;251:154891. DOI:10.1016/j.prp.2023.154891.
- Liu J, et al. Lithium chloride promotes endogenous synthesis of CLA in bovine mammary epithelial cells. Biol Trace Elem Res. 2024;202(2):513-526. DOI:10.1007/s12011-023-03679-z.
- Wu G, et al. EPO promotes the progression of rheumatoid arthritis by inducing desialylation via increasing the expression of neuraminidase 3. Ann Rheum Dis. 2024;83(5):564-575. DOI:10.1136/ard-2023-224852.
- Sudji IR, et al. Membrane disintegration caused by the steroid saponin digitonin is related to the presence of cholesterol. Molecules. 2015;20(11):20146-20160. DOI:10.3390/molecules201119682.
- Niklas J, Melnyk A, Yuan Y, Heinzle E. Selective permeabilization for the high-throughput measurement of compartmented enzyme activities in mammalian cells. Anal Biochem. 2011;416(2):218-227. DOI:10.1016/j.ab.2011.05.039.
- Liu J, Xiao N, DeFranco DB. Use of digitonin-permeabilized cells in studies of steroid receptor subnuclear trafficking. Methods. 1999;19(3):403-409. DOI:10.1006/meth.1999.0876.
- Krawczyk E, Suprynowicz FA, Sudarshan SR, Schlegel R. Membrane orientation of the human papillomavirus type 16 E5 oncoprotein. J Virol. 2010;84(4):1696-1703. DOI:10.1128/JVI.01968-09.
- Goldenthal KL, et al. Postfixation detergent treatment for immunofluorescence suppresses localization of some integral membrane proteins. J Histochem Cytochem. 1985;33(8):813-820. DOI:10.1177/33.8.3894499.
- Fahlberg MD, et al. Overcoming fixation and permeabilization challenges in flow cytometry by optical barcoding and multi-pass acquisition. Cytometry A. 2024;105(11):838-848. DOI:10.1002/cyto.a.24904.
- Law JP, et al. The importance of Foxp3 antibody and fixation/permeabilization buffer combinations in identifying CD4+CD25+Foxp3+ regulatory T cells. Cytometry A. 2009;75(12):1040-1050. DOI:10.1002/cyto.a.20815.
- Schippel N, et al. Erythropoietin mediates glycerophospholipid remodeling during human early erythropoiesis. bioRxiv. 2026. DOI:10.64898/2026.02.20.707106.
הדפסות חוזרות והרשאות
תגיות
מאמר זה פורסם
הסרטון יגיע בקרוב