פיתחנו מודל של אסטרוציטים ראשוניים מחולדה המספק מערכת רלוונטית פיזיולוגית לחקר מחלת אלכסנדר (AxD), המאפשרת בחינה של אגרגציה של GFAP, מודיפיקציה פתולוגית ותפקוד לקוי של אסטרוציטים. מערכת זו מגשרת בין מחקרים in vitro לבין מחקרים in vivo, ומציעה פלטפורמה חסונה לחקר הפתולוגיה של AxD ולזיהוי מטרות טיפוליות למחלות נוירודגנרטיביות.
מאמר שיטה
מודלים תאיים לחקר מחלת אלכסנדר: ניתוח תפקודי של אסטרוציטים ראשוניים מחולדות
במאמר זה
סיכום
תקציר
אסטרוציטים ממלאים תפקיד חיוני בשמירה על ההומאוסטזיס של מערכת העצבים המרכזית, בתמיכה בתפקוד נוירונלי ובתגובה לפציעות או למחלות. הפרעה בפעילות האסטרוציטים מזוהה יותר ויותר כגורם מרכזי להפרעות נוירודגנרטיביות, כולל מחלת אלכסנדר (AxD), מצב נדיר וקטלני הנגרם על ידי מוטציות בחלבון חומצה גליאלית פיברילית (GFAP). מוטציות אלה מובילות לאגרגציה של GFAP, להיווצרות סיבי רוזנתל (Rosenthal fibers) ולתפקוד אסטרוציטי לקוי הולך וגובר. בעוד שמודלים של בעלי חיים in vivo מציעים סביבה תאית מורכבת, הן המודלים הנוכחיים in vitro והן אלה in vivo מתמודדים עם מגבלות בשחזור מדויק של ההקשר התאי והתפקודים המורכבים של אסטרוציטים. כדי לטפל בכך, פיתחנו מודל תאי המשתמש באסטרוציטים ראשוניים של חולדות המופקים מחולדות מסוג בר (WT) ומחולדות מודל של AxD, במטרה לחקור את ההשפעות התפקודיות של מוטציות ב-GFAP. מערכת רלוונטית פיזיולוגית זו מאפשרת חקירה מפורטת של מנגנונים ספציפיים לאסטרוציטים, כולל אגרגציה של GFAP, תגובות לעקה חמצונית ושינויים פתולוגיים. עבור חוקרים שאין להם גישה לחולדות מודל של AxD, טרנסדוקציה לנטיביריאלית מציעה שיטה חלופית להחדרת מוטציות GFAP הקשורות ל-AxD לאסטרוציטים המופקים מחולדות נורמליות, ובכך מרחיבה את יישומיותה של גישה זו. בהשוואה לקווי תאי אסטרוציטים מונצחים או למחקרים in vitro המשתמשים בחלבון רקומביננטי, אסטרוציטים ראשוניים משמרים טוב יותר את הארכיטקטורה התאית והפרופילים המולקולריים הטבעיים, ומספקים פלטפורמה חסונה לחקר הדינמיקה, המסיסות והתגובות האסטרוציטיות לגורמי עקה כגון נזק חמצוני ושינויים פתולוגיים. מודל תאי זה מגשר על הפער בין מחקרים מולקולריים למערכתיים, ומספק מסגרת ניסוית מבוקרת לבחינת תפקוד לקוי של אסטרוציטים ב-AxD. על ידי השלמה של מתודולוגיות קיימות, תרביות של אסטרוציטים ראשוניים משפרות את הבנתנו את הפתולוגיה של AxD ומהוות כלי בעל ערך לזיהוי מטרות טיפוליות פוטנציאליות למחלות נוירודגנרטיביות.
מבוא
אסטרוציטים הם תאי גליה מיוחדים הנפוצים בכל מערכת העצבים המרכזית (CNS), וממלאים תפקידים קריטיים בשמירה על ההומאוסטזיס של המוח, בוויסות הפעילות הנוירונלית ובתגובה לפציעות או למחלה1. תפקידיהם כוללים פינוי ומיחזור של מוליכים עצביים, שמירה על הומאוסטזיס של מים ויונים חוץ-תאיים, ותמיכה בתפקוד מעגלים עצביים. מולקולות המופרשות על ידי אסטרוציטים חיוניות להתפתחות סינפסות ולפלסטיות סינפטית במוח הבוגר2. בתגובה לפציעה או למחלה במערכת העצבים המרכזית, עוברים אסטרוציטים שינויים ריאקטיביים שיכולים לתווך אותות פרו-דלקתיים או אנטי-דלקתיים, מה שמאפשר תפקודים נוירופרוטקטיביים אך עשוי לתרום לפתולוגיות של מערכת העצבים המרכזית, תלוי בהקשר3. הפרעה בוויסות התפקוד של האסטרוציטים מוכרת יותר ויותר כגורם מפתח לבריאות ולמחלה במערכת העצבים המרכזית4,5.
חלבון חומצה גליאלית פיברילית (GFAP), חלבון פילמנט ביניים (IF) מסוג III, הוא מרכיב שלד תאי מרכזי של אסטרוציטים, המבוטא ברוב האסטרוציטים אך לא בכולם. ביטוי ה-GFAP עולה בעקבות פגיעה במערכת העצבים המרכזית (CNS), והוא משמש כסמן לחומרת הנזק לרקמה.6על אף ש-GFAP מקושר באופן מסורתי לתפקידים מבניים7, אך השלכותיה התפקודיות נותרו לא חקורות דיו. מוטציות ב-GFAP גורמות למחלת אלכסנדר (AxD)8, הפרעה נוירודגנרטיבית נדירה המאופיינת באגרגציה של GFAP, ביצירת סיבי רוזנثال (Rosenthal fiber) ובדיספונקציה פרוגרסיבית של אסטרוציטים. בעוד ש in vitro מחקרים ביוכימיים9,10,11 ו- in vivo מודלים של בעלי חיים12,13 סיפקו תובנות לגבי הפתולוגיה של AxD, אך הם אינם מצליחים ללכוד את ההקשר התאי המורכב של תפקוד האסטרוציטים14.
כדי להתגבר על מגבלות אלו, פיתחנו מודל תאי המשתמש באסטרוציטים ראשוניים של חולדה שנגזרו מחולדות מסוג בר (WT) ומחולדות מודל AxD13. מערכת זו משמרת את הארכיטקטורה התאית המקורית ואת הפרופילים המולקולריים של האסטרוציטים, ובכך מאפשרת את חקר האגרגציה של GFAP, תגובות לעקה חמצונית ומודיפיקציות פתולוגיות הקשורות ל-AxD. עבור חוקרים שאין להם גישה לחולדות מודל AxD, טרנסדוקציה לেন্টি-ויראלית מציעה שיטה חלופית להחדרת מוטציות ב-GFAP הקשורות ל-AxD לאסטרוציטים שנגזרו מחולדות נורמליות10.
בהשוואה לקווי תאים ממורטלים, אסטרוציטים ראשוניים שומרים על ההטרוגניות והמורכבות של אוכלוסיות אסטרוציטים in vivo, ובכך מספקים פלטפורמה רלוונטית פיזיולוגית לחקירת מנגנונים ספציפיים לאסטרוציטים15. בניגוד למחקרים in vitro המשתמשים בחלבון רקומביננטי9, אסטרוציטים ראשוניים מבטאים באופן טבעי GFAP וסמנים אחרים ספציפיים לאסטרוציטים, מה שמאפשר לחקור וריאנטים הקשורים למחלות בתוך סביבה תאית טבעית10,16,17. יתרה מכך, אסטרוציטים ראשוניים מאפשרים חקירה של תגובות תפקודיות לגירויי עקה, כגון נזק חמצוני18 ודלקת19, אשר קשה לשחזר במערכות in vitro מפושטות.
במחקר של AxD, אסטרוציטים ראשוניים משלימים גישות ביוכימיות וגישות in vivo על ידי גישור על הפער בין מחקרים מולקולריים למחקרים סיסטמיים. בעוד שבדיקות ביוכימיות מתמקדות בתכונות המולקולריות של מוטציות ב-GFAP, הן חסרות מורכבות תאית, בעוד שדגמים in vivo לוכדים השפעות סיסטמיות אך פחות מתאימים למחקרים תאיים מכניסטיים. אסטרוציטים ראשוניים מספקים מערכת ביניים בעלת מורכבות תאית ובקרה ניסויית, בהלימה למגמות עכשוויות במחקר של מחלות ניוורו-דגנרטיביות המדגישות מודלים תאיים להבנת מנגנוני המחלה וזיהוי מטרות טיפוליות20.
כתב יד זה מציג את הפיתוח והיישום של אסטרוציטים ראשוניים של חולדה כמודל תאי למחקר של AxD. על ידי מתן אפשרות להשוואה ישירה בין אסטרוציטים מסוג WT לבין אסטרוציטים מסוג AxD, גישה זו נותנת מענה למגבלות מרכזיות של טכניקות חלופיות ומרחיבה את הנגישות באמצעות טרנסדוקציה לנטי-ויראלית. ממצאים אלו תורמים להבנה עמוקה יותר של תפקוד לקוי של אסטרוציטים ב-AxD ומספקים כלי בעל ערך לקידום תגליות טיפוליות במחלות ניוורו-דגנרטיביות.
פרוטוקול
השימוש בבעלי החיים בפרוטוקול זה אושר על ידי הוועדה המוסדית לטיפול ובקרת בעלי חיים של המכללה למדעי החיים והרפואה באוניברסיטת National Tsing Hua (מספרי אישור NTHU IACUC 109088 ו-111060), ובוצע בהתאם להנחיות של ה-Agriculture Guidebook for the Care and Use of Laboratory Animals.
1. הכנת מצעים, לבישי זכוכית (coverslips), צלחות פטרי ולוחיות תרבית
- לפני התחלת העבודה, ודאו כי התמיסות הבאות (טבלה 1) מוכנות לשימוש.
- סטריליזציה של מספריים ופינצטות תתבצע באמצעות אוטוקלאב לפני השימוש כדי להבטיח סטריליות.
- הכינו תמיסת poly-L-lysine (PLL) בריכוז של 0.02 mg/mL בבופר חומצה בורית.
- הוסיפו כמות מספקת של תמיסת PLL כדי לכסות באופן מלא את פני השטח של הזכוכית המכסה או את תחתית כלי/צלחת התרבית. ודאו כי הציפוי אחיד.
- השאירו את הזכוכית המכסה ואת הכלים המצופים ב-PLL להדגרה למשך לילה בטמפרטורת החדר בתוך מנדף זרימה למינרית.
- למחרת, הסירו בזהירות את תמיסת ה-PLL. שטפו את הזכוכית המכסה או את הכלי/הצלחת המצופים שלוש פעמים במים סטריליים טריים כדי להסיר שאריות PLL.
הערה: חשוב לשטוף ביסודיות את הבקבוק/הצלחת או את הזכוכית המכסה המצופים ב-PLL, כדי להסיר שאריות PLL שעלולות להשפיע לרעה על חיוניות התאים.
2. הכנת תרבית ראשונית של אסטרוציטים
הערה: סקירה סכמטית מוצגת ב-איור 1.
- לאחר השראת היפותרמיה על ידי הנחת הגורים על קרח, בצעו דקפיטציה לגור חולדה ביום postnatal 1–3 והפרידו את הראש מהגוף.
- הניחו את הראש בצלחת של 60-mm וקבעו את הצדדים באמצעות פינצטה. בעזרת מספריים עדינים, בצעו דיסקציה עדינה של העור בחלקו העליון של הראש.
- בצעו חתך בvertex של הראש באמצעות מספריים עדינים כדי לפתוח בזהירות את הגולגולת. הפרידו בעדינות והסירו את שני חצאי הגולגולת.
- בעזרת פינצטה, תלשו את המוח מבסיסו והעבירו אותו לצלחת של 60-mm המכילה תמיסת דיסקציה.
- הניחו כל המיספירה כאשר הפני הפנימי (medial surface) פונה כלפי מעלה כדי לחשוף את מבני קו האמצע.
- תחת מיקרוסקופ דיסקציה, הסירו בעדינות את רקמות המוח האמצעי וגזע המוח, והשאירו שלמות את ההמיספירות המכילות את הקורטקס וההיפוקמפוס.
- השתמשו בפינצטה עדינה כדי לקלף בעדינות את הקרומים (meninges), רצוי כיחידה אחת. בדקו בזהירות אם נותרו קרומים חבויים בחריצים והסירו אותם לחלוטין.
- העבירו את רקמת המוח המדוקסקת למנדף זרימה למינרית (laminar flow hood). שאבו את תמיסת הדיסקציה באמצעות פיפטה של 1 mL והוסיפו תמיסת דיסקציה טרייה.
- קצצו את הרקמה דק בעזרת להב סקלפל סטרילי.
- העבירו את הרקמה הקצוצה ל-5 mL של תמיסת דיסוציאציה במבחנה של 15 mL. הדגירו את המבחנה באמבט מים של 37ºC למשך 15 min, תוך ניעור עדין של המבחנה בכל 5 min כדי להבטיח אינטראקציה נאותה בין האנזים לרקמה.
- לאחר ההדגרה, המתינו עד שהרקמה תשקע לתחתית המבחנה. שאבו את הנוזל העליון (supernatant) והוסיפו 5 mL של תמיסת דיסקציה.
- הפכו את המבחנה 5 פעמים כדי לשטוף את הרקמה. הניחו למבחנה לעמוד במשך 3 min כדי לאפשר לרקמה לשקוע, ולאחר מכן חזרו על תהליך השטיפה שלוש פעמים תוך שימוש בתמיסת דיסקציה טרייה.
- לאחר השטיפה האחרונה, הסירו את הנוזל העליון והוסיפו 2.5 mL של תמיסת דיסקציה ו-2.5 mL של תמיסת תחזוקה.
- בצעו טריטורציה לרקמה על ידי העברת התמיסה מעלה ומטה 10–15 פעמים באמצעות פיפטה של 10-mL.
- הניחו למבחנה לעמוד במשך 3 min כדי לאפשר לרקמה לשקוע. העבירו את הנוזל העליון (המכיל את התאים) למבחנה קונית חדשה של 50 mL.
- הוסיפו 5 mL של תמיסת MEM למבחנה המקורית המכילה את הרקמה השקועה. בצעו טריטורציה נוספת של 10–15 פעמים עם פיפטה של 10-mL עד שרוב הגושים ייעלמו.
- העבירו את תרחיף התאים דרך מסננת תאים סטרילית של 40 µm לתוך מבחנה קונית נקייה של 50 mL המכילה 5 mL של תמיסת תחזוקה.
- סבבו את תרחיף התאים המסונן בצנטריפוגה ב-200 × g למשך 5 min בטמפרטורת החדר.
- הסירו את הנוזל העליון, ולאחר מכן שחררו בעדינות את משקע התאים על ידי תיפוף על המבחנה.
- הוסיפו 5 mL של תמיסת MEM וסבבו עם פיפטה מעלה ומטה 10 פעמים כדי לערבב מחדש את המשקע. שמרו את תרחיף התאים באמבט מים של 37ºC במהלך ספירת התאים.
- דללו 10 μL של תרחיף התאים עם 90 µL של תמיסת MEM. ערבבו היטב באמצעות טיפ של פיפטה של 200 µL.
- הוסיפו 20 μL של תרחיף תאים מדולל ל-20 µL של trypan blue. ספרו את התאים באמצעות המוציטומטר.
- זריעו את התאים בכלי תרבית באופן הבא: עבור פלטה של 24 בארות, זריעו 2 × 10⁵ תאים לבאר; עבור פלטה של 6 בארות, זריעו 5 × 10⁵ תאים לבאר; עבור צלחת של 6-cm, זריעו 1 × 10⁶ תאים לצלחת.
- הניחו את הפלטות או הצלחות באינקובטור לתרביות רקמה. הימנעו מהשארת התאים בטמפרטורת החדר לפרקי זמן ממושכים.
- בחנו את התאים תחת מיקרוסקופ כדי לוודא שהם נצמדו למצע 4 h לאחר הזריעה.
- במרחק של 24 h לאחר הזריעה, החליפו את תמיסת התרבית בתמיסת תחזוקה טרייה.
- הזינו את התרבית בכל 2–3 ימים על ידי החלפת מחצית מהתמיסה בתמיסת תחזוקה טרייה.
- לאחר 7 ימים, התאים אמורים להגיע לכ-80% קונפלואנסיות ויהיו מוכנים לניסויים.
הערה: כדי להבטיח תנאים אופטימליים לתרביות אסטרוציטים, בצעו את כל השלבים בסביבה סטרילית, רצוי בתוך מנדף זרימה למינרית, כדי למנוע זיהומים. בנוסף, ודאו שכל הרכיבים חוממו מראש ל-37°C במידת הצורך. היו קפדניים בהסרת הקרומים, שכן כל שארית של רקמת קרומים עלולה להפריע לתרביות. יתרה מכך, הימנעו מהשארת תאים בטמפרטורת החדר לפרקי זמן ממושכים במהלך הזריעה והספירה כדי לשמר את חיות התאים ושלמותם.
3. ייצור חלקיקים לנטיביריאליים והטרנסדוקציה
הערה: סקירה סכימטית מוצגת ב-איור 2.
- זרע תאי HEK293T בצלחת פטרי של 10 cm2 המכילה מצע גידול טרי (טבלה 1).
- גדל את התאים למשך לילה באינקובטור בטמפרטורה של 37ºC עד להגעה למסף (confluency) של 50%–60%.
- ל-1 mL של Opti-MEM, הוסף 20 µg של פלסמיד לנטיווירוס המקודד ל-GFAP או לווריאנטים שלו, 5.6 µg של וקטור אריזה (packaging vector), ו-1.8 µg של וקטור מעטפת (envelope vector).
- הוסף 45 µL של ריאגנט טרנספקציה לתמיסה המכילה את ה-DNA.
- ערבב בעדינות והדגר בטמפרטורת החדר למשך 15 דקות.
- הוסף את תמיסת הטרנספקציה ישירות לתאי ה-HEK293T והדגר באינקובטור לתרביות תאים בטמפרטורה של 37°C למשך 4 שעות.
- שאב את תמיסת הטרנספקציה והחלפה במצע גידול טרי.
- המשך בגידול התאים למשך יומיים.
- אסוף את העלייה (supernatant) של תרבית התאים והחלפה במצע גידול טרי.
- ביום למחרת, אסוף שוב את העלייה של תרבית התאים והחלפה במצע גידול טרי.
- ביום שאחריו, אסוף את העלייה הסופית של תרבית התאים.
- אחד את העליות משלבים 3.9–3.11 לתוך מבחנה קונית של 50-mL.
- סנן את העלייה המאוחדת דרך מסנן של 0.45 µm באמצעות מזרק של 60 mL להסרת פסולת תאית.
- סבב בצנטריפוגה את העלייה המסוננת ב-1,400 × g למשך 5 דקות בטמפרטורת החדר להסרת תאים מתים.
- העבר את העלייה המנוקה למבחנות אולטרה-צנטריפוגה.
- סבב בצנטריפוגה ב-100,000 × g למשך 70 דקות בטמפרטורה של 4°C כדי לשקיע את חלקיקי הלנטיווירוס.
- הסר בזהירות את העלייה מבלי להפריע למשקע בתחתית המבחנה.
- השבה את המשקע ב-600 µL של מצע Opti-MEM על ידי פיפטור עדין מעלה ומטה.
- חלק את חלקיקי הלנטיווירוס המושבים לאליקוטות של 50 μL ואחסן אותן ב-80°C- עד למועד השימוש.
- זרע אסטרוציטים ראשוניים בצלחת של 6 בארות ואפשר להם להגיע למסף של 50%–70% (סעיף 2).
- הפשר את הכמויות הדרושות של חלקיקי הלנטיווירוס על קרח.
- הוסף 50 µL של חלקיקי לנטיווירוס לכל בארה, בתוספת של 8 µg/mL Polybrene.
- סובב בעדינות את הצלחת כדי להבטיח פיזור אחיד של הוירוס וה-Polybrene. הדגר את התאים באינקובטור לתרביות תאים בטמפרטורה של 37ºC למשך 4–8 שעות.
- שאב בזהירות את המצע המכיל את הוירוס כדי להימנע מהפרעה לתאים.
- החלף את המצע במצע גידול טרי והמשך בגידול למשך 2–3 ימים.
- בצע אנליזות המשך על התאים שעברו טרנסדוקציה באמצעות מיקרוסקופיית אימונופלואורסצנציה להדמיית היווצרות רשת פילמנטים ביניים, או אימונובלוטינג להערכת ביטוי GFAP.
הערה: בעת טיפול בחלקיקי לנטיווירוס, חובה להשתמש בציוד מיגון אישי (PPE) מתאים להבטחת הבטיחות. בנוסף, כדי לשמור על שלמות חלקיקי הוירוס, הימנע ממחזורי הקפאה-הפשרה חוזרים.
4. מיקרוסקופיית אימונופלואורסצנציה
- שאבו בעדינות את מצע התרבית מהבארים המכילות לכיסויות עם תאים שנזרעו. הימנעו מהפרעת התאים.
- קבעו את התאים על ידי הוספה של אחד ממסלולי הקיבוע הבאים: עבור אסטרוציטים ראשוניים, השתמשו ב-3.2% (wt/vol) paraformaldehyde; עבור תרבית של אסטרוציטים ונוירונים, השתמשו ב-3.2% (wt/vol) paraformaldehyde ו-4% (wt/vol) sucrose.
- דגרו את הלכיסויות במקבע למשך 15 min בטמפרטורת החדר. אלא אם צוין אחרת, בצעו את כל השלבים הבאים בטמפרטורת החדר.
- שטפו את התאים המקובעים שלוש פעמים עם phosphate-buffered saline (PBS) כדי להסיר את מקבע.
- בצעו פרמיאביליזציה לתאים על ידי דגירה ב-0.2% (vol/vol) Triton X-100 שהוכן בבופר חסימה (5% (vol/vol) normal goat serum ב-PBS) למשך 15 min.
- שטפו את התאים שעברו פרמיאביליזציה שלוש פעמים עם PBS.
- הכינו את תמיסת הנוגדן הראשוני על ידי דילול הנוגדן בבופר חסימה בהתאם לריכוז המומלץ על ידי היצרן.
- דגרו את הלכיסויות בתמיסת הנוגדן הראשוני למשך שעה אחת לפחות בטמפרטורת החדר.
- שטפו את הלכיסויות שלוש פעמים עם PBS כדי להסיר נוגדן ראשוני שלא נקשר.
- הכינו את תמיסת הנוגדן המשני על ידי דילול נוגדנים משניים מסוג goat anti-mouse ו-goat anti-rabbit המשורשרים לפלואורופורים בבופר חסימה בדילול של 1:500.
- דגרו את הלכיסויות בתמיסת הנוגדן המשני למשך 1 h בטמפרטורת החדר.
- שטפו את הלכיסויות שלוש פעמים עם PBS כדי להסיר נוגדן משני שלא נקשר.
- העבירו בזהירות את הלכיסויות אל על גבי למסות זכוכית באמצעות פינצטה.
- הצמידו את הלכיסויות באמצעות תוך מקבע (mounting medium) כדי לשמר את הפלואורסצנציה.
- אטמו בעדינות את קצוות הלכיסות בעזרת לק שקוף למניעת תזוזה ואידוי.
- המתינו לייבוש מלא של הלק לפני המעבר לדימות.
- הלמסות המוכנות מוכנות לדימות באמצעות מיקרוסקופ אימונופלואורסצנטי או קונפוקאלי.
הערה: כדי להבטיח את הצלחת הניסויים, הכינו את כל הרכיבים, כגון PBS, בופר חסימה ונוגדנים, באופן טרי ושמרו על סטריליות. טפלו בלכיסויות בזהירות כדי למנוע פגיעה בתאים או שריטות של משטח הזכוכית. הגנו על הדגימות מאור במהלך דגירת הנוגדנים ולאחר ההצמדה כדי למנוע פוטובליצ'ינג של האותות הפלואורסצנטיים. בנוסף, בצעו אופטימיזציה לריכוזי הנוגדנים ולזמני הדגירה בהתאם למערך הניסויי הספציפי.
5. אימונובלוטינג (Immunoblotting)
- שטוף את האסטרוציטים פעמיים עם PBS כדי להסיר שאריות של מצע ופסולת תאית.
- הנח את הפלטה או את הצלחת על קרח כדי למזער פירוק חלבונים. עבוד עם באר אחת בכל פעם, ושאב את ה-PBS באופן מלא.
- הוסף באפר RIPA (radioimmunoprecipitation assay) קר מאוד המכיל מעכבי פרוטאז ופוספטאז. עבור פלטה של 6 בארות, הוסף 250 µL לבאר; עבור צלחת של 6-cm, הוסף 500 µL לצלחת.
- השתמש במגרדת תאים כדי לגרד ביסודיות את כל האסטרוציטים אל תוך באפר ה-RIPA (50 mM Tris, pH 8.0, 150 mM NaCl, 1% (wt/vol) NP-40, 5 mM ethylenediaminetetraacetic acid (EDTA), 0.5% (wt/vol) sodium deoxycholate, ו-0.1% (wt/vol) SDS, 1 mM phenylmethylsulfonyl fluoride [PMSF]).
- העבר את התאים המגורדים להומוגניזר Dounce בנפח של 1-mL המונח על קרח. ביצע הומוגניזציה לתאים על ידי טחינה עדינה בעזרת המכתש.
- דגור את ליזאטי התאים ההומוגניים על קרח למשך 10 min כדי להבטיח ליזיס מלא. שמור 20 µL מהליזאטים הכוללים כדי לקבוע את ריכוז החלבון באמצעות בדיקת BCA (bicinchoninic acid).
- סבב את ליזאטי התאים בצנטריפוגה במהירות של 13,500 × g בטמפרטורה של 4ºC למשך 10 min כדי להשקיע חלבונים לא מסיסים.
- העבר בזהירות את supernatant לתוך מבחנה נקייה. שמור 20 µL מה-supernatant כדי לקבוע את ריכוז החלבון באמצעות בדיקת BCA.
- רכז את ה-supernatant על ידי ביצוע שקיעה באמצעות methanol/chloroform.
- השהה מחדש את המשקע המתקבל ב-0.1 mL של באפר דגימות Laemmli (25 mM Tris-HCl (pH 6.8), 1% (w/v) SDS, 12.5% (v/v) glycerol, 0.01% (w/v) bromophenol blue, 355 mM β-mercaptoethanol).
- השהה מחדש את המשקע בבאפר דגימות Laemmli ופזר אותו באמצעות סוניקציה.
- בצע שלושה מחזורי סוניקציה בפולסים של 0.5-s בהספק של 10%. שמור את קצה הפרובה לכיוון תחתית המבחנה כדי למנוע הקצפה.
- בצע בדיקת חלבון BCA (bicinchoninic acid) הן על ה-supernatant של ה-RIPA והן על ליזאטי התאים הכוללים.
- טען את דגימות החלבון על ג'ל SDS-PAGE (sodium dodecyl sulfate polyacrylamide gel electrophoresis) בריכוז של 12% או 15%. הרץ את הג'ל במתח קבוע של 200 V למשך 45 min.
- העבר את החלבונים מהג'ל לממברנת ניטרוסלולוז באמצעות מערכת העברה רטובה. פעל לפי הוראות היצרן והעבר במתח של 100 V למשך 70 min.
- הנח את הממברנה ב-5% (wt/vol) BSA (bovine serum albumin) המומס ב-TBST (Tris-buffered saline עם 0.1% (wt/vol) Tween-20). בצע חסימה למשך שעה אחת לפחות בטמפרטורת החדר תוך써 ניעור עדין.
- דלל את הנוגדנים הראשוניים ב-TBST בהתאם להוראות היצרן. דגור את הממברנה בתמיסת הנוגדן הראשוני למשך לילה ב-4ºC תוך ניעור עדין.
- שטוף את הממברנה שלוש פעמים ב-TBST, כאשר כל שטיפה נמשכת 5 min.
- דלל נוגדנים משניים המצומדים לפלואורופור או ל-HRP (horseradish peroxidase) ב-TBST בדילול של 1:500 (או כפי שצוין על ידי היצרן).
- דגור את הממברנה בתמיסת הנוגדן המשני למשך 1 h בטמפרטורת החדר תוך ניעור עדין.
- שטוף את הממברנה שלוש פעמים ב-TBST, כאשר כל שטיפה נמשכת 5 min.
- פתח את הממברנה באמצעות פלואורסצנציה או chemiluminescence משופר (ECL) בהתאם להוראות היצרן.
- הדמ את פסי החלבון באמצעות מערכת דימוי.
הערה: כדי למנוע פירוק חלבונים, בצע את כל השלבים על קרח או ב-4ºC, למעט שלבי הדגירה של הנוגדנים והחסימה. ודא שכל הבאפרים, הריאגנטים והציוד קוררו מראש לפני השימוש כדי לשמור על טמפרטורות נמוכות לאורך כל התהליך. הימנע מהעמסה יתרה של הג'ל כדי למנוע מריחה (smearing), ובצע אופטימיזציה לריכוזי הנוגדנים ולזמני הדגירה בהתאם לניסוי הספציפי.
6. הכנת נוירונים ראשוניים לתרבית משותפת
- בצע הריגה הומנית לחולדה ההרה באמצעות פחמן דו-חמצני כחומר הרדמה בשאיפה. הוצא את הרחם והנח אותו בצלחת פטרי סטרילית.
- הוצא את המוחות מהעוברים והנח אותם בצלחת של 6-cm המכילה תמיסת דיסקציה. ודא שהרקמה נשארת טבולה בתמיסה בכל עת כדי למנוע התייבשות.
- בצע דיסקציה לקורטקס (קליפת המוח) והסר את הקרומיות כפי שתואר (שלב 2.7).
- העבר את הרקמה המבודדת למנדף זרימה למינרית.
- שאב את תמיסת הדיסקציה באמצעות פ pipette של 1 mL והוסף תמיסת דיסקציה טרייה לצלחת.
- קצץ את רקמת המוח לחתיכות קטנות באמצעות להב סקלפל סטרילי.
- העבר את הרקמה הקצוצה ל-5 mL של תווך דיסוציאציה נוירונלית (טבלה 1) שחומם מראש ל-37 ºC, בתוך מבחנה של 15 mL.
- דגור את המבחנה באמבט מים של 37 ºC למשך 30 min, תוך ניעור עדין של המבחנה כל 5 min כדי להבטיח אינטראקציה תקינה בין האנזים לרקמה.
- הוצא את המבחנה מאמבט המים ואפשר לרקמה לשקוע לתחתית המבחנה. שאב בזהירות את הנוזל העליון (supernatant) באמצעות טיפ של פ pipette של 1 mL מבלי להפריע לרקמה.
- הוסף 5 mL של תמיסת דיסקציה שחוממה מראש למבחנה והפוך אותה 5 פעמים כדי לשטוף את הרקמה. השאר את המבחנה למשך 3 min כדי לאפשר לרקמה לשקוע, ולאחר מכן חזור על תהליך השטיפה שלוש פעמים, בכל פעם תוך שימוש בתמיסת דיסקציה טרייה.
- לאחר השטיפה האחרונה, הסר את הנוזל העליון והוסף 2.5 mL של תמיסת דיסקציה ו-2.5 mL של תווך זריעה (plating medium).
- בצע טריטורציה (Trituration) לרקמה על ידי שאיבה והזרקה של התמיסה למעלה ולמטה 10–15 פעמים באמצעות פ pipette של 10-mL.
- השאר את המבחנה למשך 3 min כדי לאפשר לרקמה לשקוע. העבר את הנוזל העליון (המכיל את התאים) למבחנה קונית חדשה של 50 mL.
- הוסף 5 mL של תווך זריעה למבחנה המקורית המכילה את הרקמה ששקעה.
- בצע טריטורציה לרקמה שוב 10–15 פעמים באמצעות פ pipette של 10-mL עד שרוב הגושים ייעלמו.
- העבר את תרחיף התאים דרך מסננת תאים סטרילית של 40 µm לתוך מבחנה קונית נקייה של 50 mL המכילה 5 mL של תווך זריעה.
- בצע סנטריפוגציה לתרחיף התאים המסונן במהירות של 200 × g למשך 5 min בטמפרטורת החדר.
- הסר את הנוזל העליון, ולאחר מכן שחרר בעדינות את משקע התאים (cell pellet) על ידי נקישה על המבחנה. הוסף 5 mL של תווך זריעה שחומם מראש ובצע שאיבה והזרקה למעלה ולמטה 10 פעמים כדי לערבב מחדש את המשקע.
- ספור את התאים כפי שתואר קודם לכן (שלבים 2.21 ו-2.22). שמור את תרחיף התאים באמבט מים של 37°C במהלך ספירת התאים.
- זרוע את הנוירונים ישירות מעל האסטרוציטים הראשוניים בכלי תרבית באופן הבא: עבור פלטה של 24 בארות, זרוע 1.45 × 10⁵ תאים לבאר; עבור פלטה של 6 בארות, זרוע 5 × 10⁵ תאים לבאר; עבור צלחת של 6-cm, זרוע 1 × 10⁶ תאים לבאר.
- הנח את הפלטות או הצלחות באינקובטור לתרביות רקמה המכוון ל-37ºC עם 5% CO₂. הימנע מהשארת התאים בטמפרטורת החדר לפרקי זמן ממושכים כדי לשמור על חיוניותם.
- החלף את תווך הזריעה בתווך תחזוקה נוירונלית 4 שעות לאחר הזריעה.
- החלף מחצית מהתווך בתווך תחזוקה נוירונלית טרי כל 3–4 ימים.
הערה: הנוירונים בתרבית המשותפת (coculture) יהיו מוכנים לניסויים לאחר 7–10 ימים במבחנה (DIV).
תוצאות
סקירה מורפולוגית של תרביות ראשוניות של אסטרוציטים בנקודות זמן שונות לאחר הבידוד מוצגת ב-איור 3. בעקבות זריעת תרחיף התאים הקורטיקליים, חלק מהאסטרוציטים נצמדים לפני השטח של כלי התרבית בתוך 24 השעות הראשונות (איור 3A). במהלך 3 עד 5 הימים הראשונים, התרביות מכילות פסולת תאית ונוירונים גוועים (איור 3B), שכן מצע התרבית עבר אופטימיזציה לתמיכה בהישרדות ובצמיחה של אסטרוציטים. עד ליום ה-7 לאחר הזריעה, מתחילה להיווצר שכבה אחת (monolayer) של אסטרוציטים, מה שמעיד על הקמה מוצלחת של התרבית (איור 3C). נוירונים מופרדים המוחזקים בתרבית עוברים שלבי התמיינות מובחנים, ובסופו של דבר מפתחים נוריטים מוגדרים היטב (איור 3D–F). ניתן לגדל נוירונים אלו כשכבה אחת על כיסויי זכוכית או לזרוע אותם מעל אסטרוציטים ראשוניים לצורך ניסויי תרבית משותפת (co-culture), ובכך לספק פלטפורמה ורסטילית לחקר האינטראקציות בין אסטרוציטים לנוירונים.
באמצעות אסטרוציטים ראשוניים שהוכנו מחולדות נורמליות לפי פרוטוקול זה, בחנו את ההשפעות של מוטציות ב-GFAP הקשורות ל-AxD על היווצרות רשת IF. כדי לאפשר מחקר זה, WT GFAP (איור 4A) וצורות שונות של GFAP מוטנטי, כולל E373K (איור 4B), R376W (איור 4C), D395Y (איור 4D), D417A (איור 4E), ו-Q426L (איור 4F) GFAP, הופקו על ידי מוטגנזה מכוונת לאתר תוך שימוש ב-WT GFAP בוקטור לנטיבירי pLEX-MCS כתבנית (קובץ משלים 1 ו-איור משלים 1). לאחר מכן, מבני הביטוי של GFAP הועברו לאסטרוציטים ראשוניים באמצעות זיהום לנטיבירי. תהליך זיהום זה כלל דגירה של התאים עם לנטי-וירוסים בריבוי זיהום (MOI) של 10, בנוכחות של 8 μg/mL polybrene. בתנאים אלה, מיקרוסקופיית אימונופלואורסצנציה גילתה כי כ-70%–80% מהאסטרוציטים נדבקו בהצלחה. התפלגות ה-GFAP שעבר טרנסדוקציה ביחס ל-GFAP אנדוגני של חולדה נותחה באמצעות מיקרוסקופיית אימונופלואורסצנציה עם סימון כפול. נוגדן מונוקלונלי anti-human GFAP שימש לזיהוי GFAP אנושי שעבר טרנסדוקציה (איור 4A–F, ערוץ ירוק), בעוד שנוגדן פוליקלונלי anti-panGFAP, המזהה הן GFAP של חולדה והן GFAP אנושי שעבר טרנסדוקציה, שימש להדמיית ההתפלגות הכללית של GFAP (איור 4A–F, ערוץ אדום). באסטרוציטים המבטאים WT GFAP, רשתות סיביות היו מפוזרות ברחבי הציטופלזמה (איור 4A). לעומת זאת, מוטציות ב-GFAP (איור 4B–F, ערוץ ירוק) יצרו בעיקר אגרגטים ציטופלזמיים, שלעיתים קרובות שיבשו והביאו לקריסת רשתות ה-IF האנדוגניות (איור 4B–F, ערוץ אדום). רמות הביטוי היחסיות של WT GFAP ושל ה-GFAP המוטנטי נקבעו על ידי אימונובלוטינג של ליזאטים של תאים כוללים (איור 4G). טרנסדוקציה של WT (איור 4G, נתיב 2) או GFAP מוטנטי (איור 4G, נתיבים 3–7) הניבה חלבונים בגודל הצפוי ברמות דומות. כדי להעריך האם האגרגטים הציטופלזמיים שנוצרו על ידי GFAP מוטנטי הפגינו תכונות מסיסות שונות בהשוואה לחלבון WT, אסטרוציטים שעברו טרנסדוקציה חולצו באמצעות באפר radioimmunoprecipitation assay (RIPA)16. ניתוח אימונובלוטינג של פראקציות העל-נוזל (supernatant) (איור 4H) והמשקע (pellet) (איור 4I) חשף הבדלים מובחנים במסיסות. בתאים המבטאים WT GFAP, רוב החלבון חולץ בקלות אל העל-נוזל (איור 4H, נתיב 2). לעומת זאת, ה-GFAPs המוטנטים הפגינו עמידות מוגברת לחילוץ, כאשר מרבית החלבון נשאר בפראקציית המשקע (איור 4I, נתיבים 3–7). ממצאים אלה מרמזים כי מוטציות ב-GFAP הקשורות ל-AxD מקדמות היווצרות של אגרגטים בלתי מסיסים, ובכך משנות את תכונות המסיסות של GFAP באסטרוציטים ראשוניים.
כדי להבין כיצד מוטציית R237H ב-GFAP וביטוי יתר משפיעים על ארגון הסיבים ועל היווצרות רשת ה-IF, ניתחנו את יכולת יצירת הרשת של GFAP באסטרוציטים ראשוניים שהופקו מחולדות WT או מחולדות מודל AxD13 עם מוטציית knock-in הומוזיגוטית R237H. מיקרוסקופיה קונפוקלית של אימונופלואורסצנציה גילתה כי באסטרוציטים WT, GFAP יצר רשתות סיביות מאורגנות היטב המפוזרות ברחבי הציטופלזמה, אשר נמצאו במיקום משותף (colocalized) עם סיבי vimentin IF (איור 5A). לעומת זאת, בכ-70% מהתאים החיוביים ל-GFAP באסטרוציטים מוטנטים הומוזיגוטים נצפו אגרגטים ציטופלזמיים בולטים (איור 5B). אגרגטים אלו שיבשו לעיתים קרובות את רשתות ה-vimentin IF, וגרמו להן לקרוס לאגרגטים פרי-נוקליאריים גדולים. כימות של תאים חיוביים ל-GFAP המכילים אגרגטים מוצג ב-איור 5C. כדי להעריך את ביטוי GFAP ברמת החלבון, הוכנו ליזאטים של תאים כוללים מאסטרוציטים WT ומאסטרוציטים מוטנטים הומוזיגוטים. אימונובלוטינג באמצעות נוגדן anti-panGFAP גילה עלייה מתונה ב-GFAP הכולל באסטרוציטים מוטנטים הומוזיגוטים (איור 5D, נתיב 2), המראה עלייה של 1.3-מכפלות (איור 5E) בהשוואה לאסטרוציטים WT (איור 5D, נתיב 1). כדי לקבוע האם ביטוי יתר של GFAP מוטנטי משנה את שיווי המשקל הדינמי בין מאגרים מסיסים לבלתי מסיסים, הופרדו פראקציות של עלה (supernatant) ומשקע (pellet) ונותחו באמצעות אימונובלוטינג (איור 5F). כימות של התפלגות GFAP בין פראקציית העלה ופראקציית המשקע מוצג ב-איור 5G. באסטרוציטים WT (איור 5F, נתיבים 1 ו-2), GFAP התפלג באופן שווה בקירוב בין פראקציית העלה לפראקציית המשקע. עם זאת, אסטרוציטים מוטנטים הומוזיגוטים הראו עלייה ברמות GFAP בפראקציית המשקע (איור 5F, נתיב 4), מה שמעיד על סקווסטרציה מוגברת של GFAP לתוך אגרגטים ציטופלזמיים. ראוי לציין כי הצטברות אגרגטים של GFAP באסטרוציטים מוטנטים הומוזיגוטים נמצאה במתאם עם זיהוי של מיני GFAP שעברו יוביקוויטינציה בפראקציית המשקע (איור 5F, נתיב 4), דבר התומך עוד יותר בנוכחות של GFAP שעבר שינוי פתולוגי באגרגטים ציטופלזמיים בתאים אלו.
אסטרוציטים ממלאים תפקיד קריטי בתמיכה בבריאות ובתפקוד של נוירונים. כדי לקבוע האם הצטברות של המוטציה R237H ב-GFAP באסטרוציטים משפיעה על נוירונים באמצעות מנגנונים שאינם אוטונומיים לתא, השתמשנו בתרביות שיתוף (cocultures) של אסטרוציטים ונוירונים. נוירונים ראשוניים מעוברים של חולדה ביום 18 (E18) נזרעו על אסטרוציטים ראשוניים שגודלו במשך 10–12 DIV והושארו להבשיל למשך 10 ימים נוספים. לאחר מכן, תרביות השיתוף קובעו ונצבעו אימונוהיסטוכימית עם נוגדנים נגד βIII tubulin כדי להעריך את המורפולוגיה הנוירונלית. נוירונים (Figure 6A) שגודלו בתרבית שיתוף עם אסטרוציטים מסוג WT (Figure 6B) הראו צמיחת נוריטים ארוכה משמעותית יותר (Figure 6C) בהשוואה לנוירונים (Figure 6D) שגודלו בתרבית שיתוף עם אסטרוציטים מוטנטים הומוזיגוטים (Figure 6E). ניתוח כמותי גילה כי אורכי הנוריטים של נוירונים שגודלו בתרבית שיתוף עם אסטרוציטים מוטנטים הומוזיגוטים פחתו ב-76% בהשוואה לנוירונים שגודלו בתרבית שיתוף עם אסטרוציטים מסוג WT (Figure 6G). ממצאים אלו מעידים כי הצטברות של GFAP מוטנט באסטרוציטים פוגעת קשות ביכולתם לתמוך בהתפתחות ובמורפולוגיה נוירונלית תקינה. שיבוש זה עשוי לתרום לפנוטיפ הנוירודגנרטיבי המאפיין את AxD.
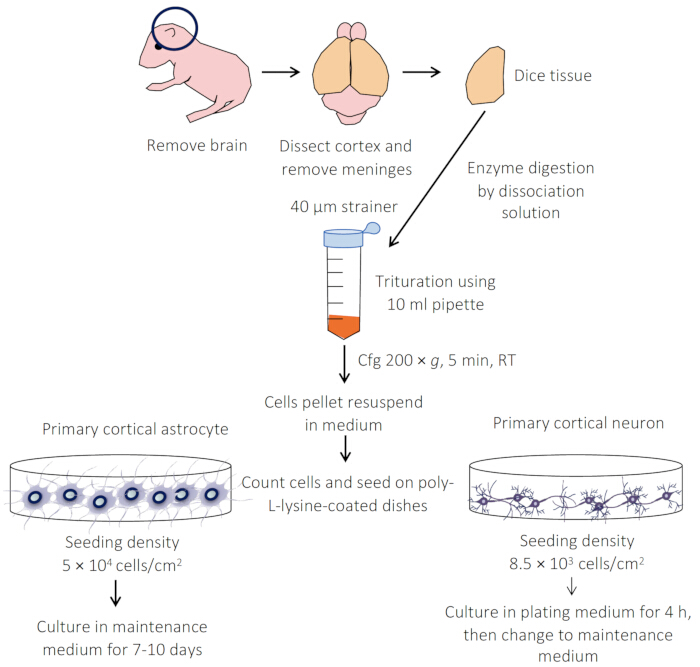
איור 1סקירה כללית של הפרוטוקולים להכנת תרביות ראשוניות של אסטרוציטים ונוירונים. מבצעים דיסקציה קפדנית של הקורטקס (הקליפה) ומעבדים את הרקמות בעיכול אנזימטי באמצעות טריפסין או פפאאין. התאים המופרדים נזרעים לאחר מכן על כיסויי זכוכית, צלחות פטרי או פלטות שהוכשרו מראש. הן אסטרוציטים והן נוירונים גודלים במדיום תחזוקה ויכולים להישמר למשך עד 28 ימים. אנא לחץ כאן כדי לצפות בגרסה מורחבת של איור זה.
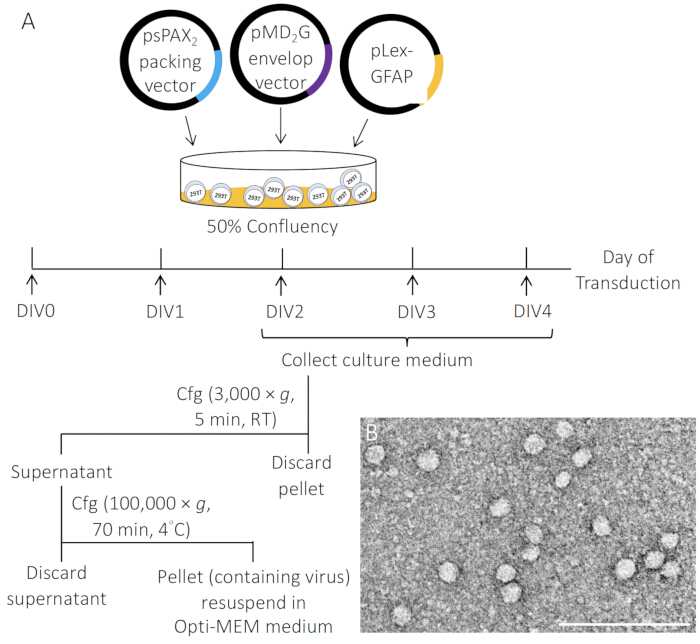
איור 2ייצוג סכמטי של ייצור חלקיקים לנטיביריאליים. (Aלנטי-וירוסים הופקו באמצעות טרנספקציה משותפת זמנית (transient cotransfection) של תאי 293T עם וקטור pLEX-MCS–GFAP, וקטור אריזה psPAX2 ווקטור מעטפת pMD2.G ביחס של 4:3:1, תוך שימוש בחומר טרנספקציה. עלוני תרבית המכילים חלקיקי לנטי-וירוס נאספו לאחר 2–4 ימים. in vitro (DIV), מסונן דרך ממברנה של 0.45-μm סנון להסרת שרידים, וריכוז באמצעות סרצ'פוגציה במהירות גבוהה. (B) מיקרוגרף אלקטרוני של חלקי לנטי-וירוס. סרגל קנה מידה, 50 ננומטר. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
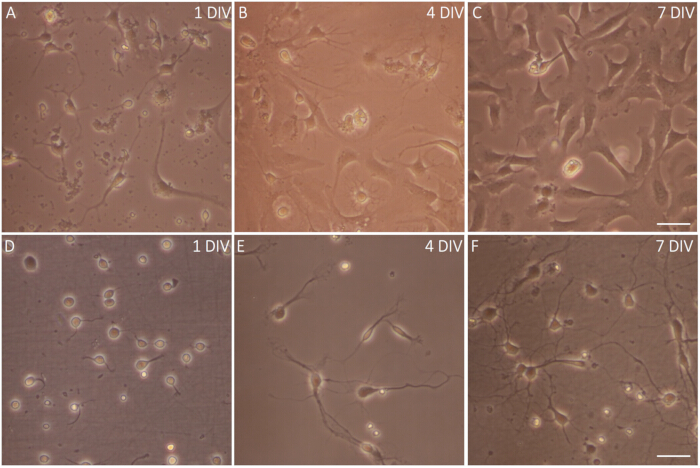
איור 3תמונות בניגודיות פאזה של אסטרוציטים ונוירונים ראשוניים. (א–ג) סקירה מורפולוגית של תרביות אסטרוציטים ראשוניים בנקודות זמן שונות לאחר הבידוד. (Aיום אחד לאחר הזריעה, חלק מהאסטרוציטים נצמדו לתחתית הבקבוק.Bארבעה ימים לאחר הזריעה, מתחיל להיווצר שכבת אסטרוציטים.Cשבעה ימים לאחר הזריעה, שכבת האסטרוציטים הגיעה כמעט למצב של התמזגות (confluency). שימו לב כי תחת תנאי תרבית אלו, נוירונים כמעט ואינם נוכחים. (ד–ו) זמן קצר לאחר הזריעה, (ד'נוירונים קורטיקליים מתחילים להוציא מבנה למלרי המקיף את גוף התא.ה) במהלך הימים הבאים בתרבית, (Fהדיפרנציאציה העצבית מתקדמת, וחלק מהנוירונים מפתחים שלוחות מסועפות, מה שמעיד על היווצרות של רשת נוירונלית מורכבת יותר. סרגל קנה מידה, 20 μm. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
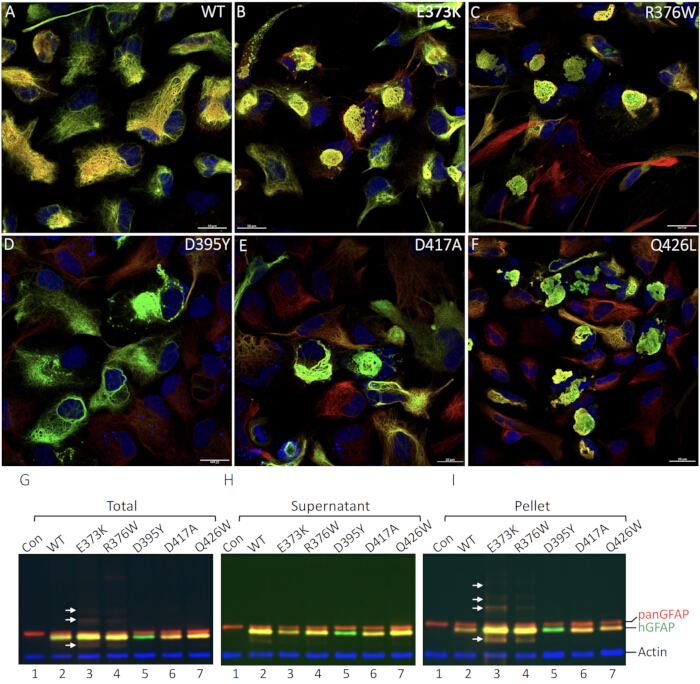
איור 4ארגון פילמנטים ותכונות מסיסות של GFAP מסוג WT ומוטנטים באסטרוציטים ראשוניים. (א–ואסטרוציטים ראשוניים של חולדה עברו טרנסדוקציה עם WT (A), או מוטנטים הקשורים ל-AxD, כולל E373K (B), R376W (C), D395Y (ד'), D417A (ה_), ו-Q426L (FGFAP. התאים קובעו ועברו צביעה אימונוהיסטוכימית עם נוגדנים נגד GFAP אנושי (ערוץ ירוק) ונגד panGFAP (ערוץ אדום). מוצגות תמונות ממוזגות, שבהן הגרעינים הודגמו באמצעות צביעה ב-DAPI (ערוץ כחול). בעוד ש-GFAP מסוג WT התארגן בעיקר לרשתות סיביות (A), חלבוני ה-GFAP המוטנטיים יצרו אגרגטים ציטופלזמיים ברוב התאים שעברו טרנסדוקציה (ב–ו). סרגל קנה מידה, 20 μm. (מערכת העיכול) ניתוח של רמות הביטוי ותכונות המסיסות של GFAP מוטנט. אסטרוציטים ראשוניים הושארו ללא טרנסדוקציה (מערכת העיכול, נתיב 1) או שהועברו אליהם (transduced) מבני GFAP המצוינים (מערכת העיכול, נתיבים 2–7). 72 שעות לאחר ההעברה (post-transduction), התאים לויסו בבופר RIPA (radioimmunoprecipitation assay), והליסאטים הכוללים שהתקבלו (ג'), וכן את הנוזל העלון (ה) ומשקע (Iהפракציות נותחו באמצעות אימונובלוטינג (immunoblotting) תוך שימוש בנוגדנים נגד GFAP אנושי (ערוץ ירוק) ונגד panGFAP (ערוץ אדום). בלוטים שנבדקו עם נוגדן נגד אקטין (ערוץ כחול) שימשו כבקרת טעינה. מיקומיהם של GFAP אנושי (hGFAP), GFAP כולל (panGFAP) ואקטין מצוינים מימין. שים לב כי אסטרוציטים שעברו טרנסדוקציה עם מוטציית D395Y של GFAP לא הראו צביעה בערוץ האדום עם הנוגדן נגד panGFAP, ככל הנראה עקב שיבוש של האפיטופ מטרה של הנוגדן שנגרם על ידי המוטציה. כאשר אסטרוציטים עברו טרנסדוקציה עם E373K GFAP, ניתוח אימונובלוטינג חשף פסים אימונופוזיטיביים נוספים (חצים) מעל ומטה לפס ה-GFAP המונומרי. הפסים התחתונים הם ככל הנראה תוצרי פירוק, בעוד הפסים העליונים תואמים ל-GFAP שעבר מודיפיקציה על ידי יוביקוויטינציה (ubiquitination). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
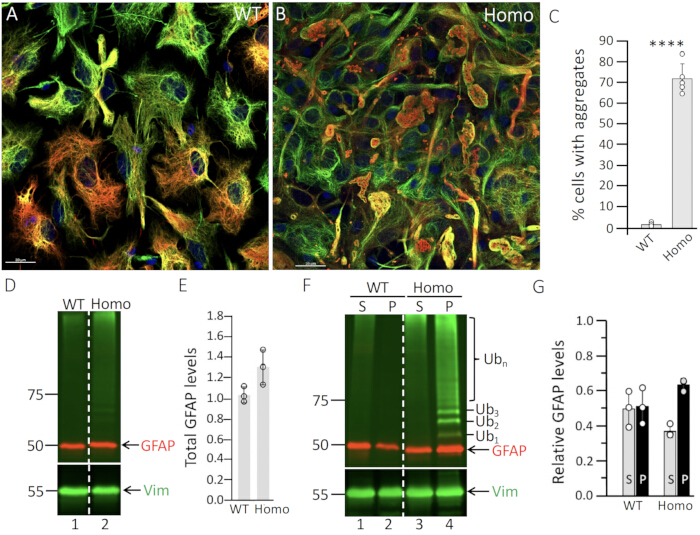
איור 5אגרגציה של GFAP באסטרוציטים המופקים מחולדות מוטנטיות הומוזיגוטיות. אסטרוציטים ראשוניים שהופקו מ- (A(WT או (Bחולטים מוטנטים הומוזיגוטים תורבדו למשך 14 DIV, ולאחר מכן עובדו למיקרוסקופיית אימונופלואורסצנציה עם סימון כפול באמצעות נוגדנים נגד GFAP (ערוץ אדום) ו-vimentin (ערוץ ירוק). מוצגות תמונות ממוזגות, כאשר הגרעינים הודגמו על ידי צביעה ב-DAPI (ערוץ כחול). סרגל קנה מידה, 20 μmבאסטרוציטים מסוג WT (A), GFAP יצרה רשתות של סיבי IF שהופיעו במיקום משותף (colocalized) עם vimentin. לעומת זאת, ברוב האסטרוציטים המוטנטים ההומוזיגוטים נמצאו אגרגטים של GFAP שהיו חיוביים כפולי ל-GFAP ו-vimentin (B). (C) כימות של תאים הנושאים אגרגטים באסטרוציטים מסוג WT ובאסטרוציטים מוטנטים הומוזיגוטים. הנתונים מייצגים את הממוצע ± טעות תקן (SE) משלושה ניסויים בלתי תלויים, המוצגים כתרשימי עמודות. ניתוח סטטיסטי בוצע באמצעות מבחן t דו-זנבי; ****p < 0.0001. (ד–ז) רמות ביטוי ותכונות מסיסות של GFAP באסטרוציטים מסוג WT ובאסטרוציטים מוטנטים הומוזיגוטים. אסטרוציטים ראשוניים הופקו באמצעות בופר RIPA ביום ה-14 לאחר הזריעה (DIV 14). ליזאטים של תאים כוללים (ד'), וכן פראקציות של עליון (S) ומשקע (P) (F), נותחו באמצעות אימונובלוטינג תוך שימוש בנוגדנים נגד GFAP (ערוץ אדום), יוביקוויטין (ערוץ ירוק) ווימנטין (ערוץ ירוק). סמני מסה מולקולרית (ב-kDa) מוצגים משמאל, בעוד שמיקומי ה-GFAP, הווימנטין (Vim) והיוביקוויטין (Ub) מצוינים מימין. Ub1–3 מייצגים מיני GFAP עם מונו-, די- וטרי-יוביקוויטינציה, בעוד ש-Ubנ" מעיד על מיני GFAP שעברו פולי-יוביקוויטינציה. הקו המקווקו ב- (ד' ו- פ) מציין כי הנתיבים הורצו על אותו ג'ל אך לא היו רציפים. שימו לב כי מיני GFAP שעברו יוביקיטינציה זוהו באופן בלעדי בפרקציית המשקע של אסטרוציטים מוטנטים הומוזיגוטים (פ, נתיב 4). כימות רמות ה-GFAP מוצג ב- (ה_,G). כל נקודה לבנה מייצגת שכפול ביולוגי (נ" = 3). הנתונים מוצגים כממוצע ± סטיית תקן (SD). אנא לחץ כאן כדי להציג גרסה מוגדלת של איור זה.
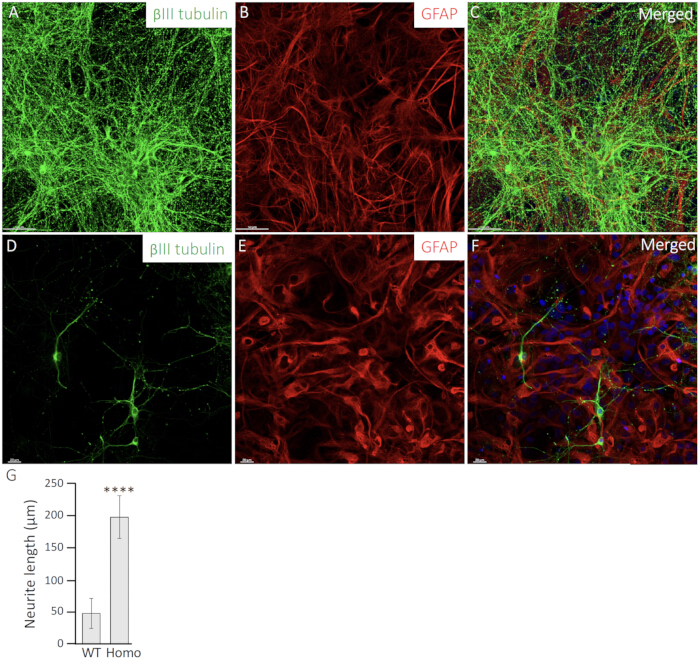
איור 6ביטוי של GFAP מוטנטי באסטרוציטים מוטנטיים הומוזיגוטים משנה את מורפולוגיית הניוריטים. נוירונים ראשוניים (A,ד'גודלו בתרבית משותפת עם אסטרוציטים מסוג WT (B) או אסטרוציטים מוטנטים הומוזיגוטים (ה). נוירונים נצבעו אימונוהיסטוכימית באמצעות נוגדנים נגד $\beta\text{III tubulin}$ (ערוץ ירוק) כדי להדמיות של המורפולוגיה הנוירונלית (A,ד) בעוד שאסטרוציטים (B,ה{}סומנו עם נוגדנים נגד GFAP (ערוץ אדום). תמונות ממוזגות מוצגות (C,F), כאשר הגרעינים נצבעו ב-DAPI (ערוץ כחול). סרגל קנה מידה, 20 μm. (ג'נמדד אורך הניוריטים של נוירונים שגודלו בתרבית משותפת עם אסטרוציטים מסוג WT או Homo, והנתונים הוצגו בתרשימי עמודות. הנתונים מבוטאים כממוצע ± SD. מובהקות סטטיסטית נבחנה באמצעות מבחן t דו-זנבי, כאשר הבדל מובהק בין אסטרוציטים מסוג WT ל-R237H סומן ב-****P < 0.0001. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| רכיב | ריכוז סופי | |
| תוכס נתיחה | HBSS בריכוז 10× | 10% |
| 1 M HEPES, pH 7.4 | 10 mM | |
| פניצילין-סטרפטומייצין בריכוז 10× | 1× | |
| תווך דיסוציאציה | טריפסין 2.5% | 0.25% |
| 1 M HEPES, pH 7.4 | 10 mM | |
| 150 mM CaCl22 | 1.5 mM | |
| DNase I (15,00U) | 80 U | |
| HBSS בריכוז 10× | 10% | |
| תווך תחזוקה | סרום עגל עוברי | 10% |
| penicillin-streptomycin בריכוז 10× | 1× | |
| תווך גידול מינימלי מאובשר (MEM) | 97% | |
| תוכיר לדיסוציאציה של נוירונים | 10 mM נתרבן פירובט | 1 mM |
| גלוקוז 10% | 0.10% | |
| HEPES 1 M, pH 7.4 | 10 mM | |
| EDTA בריכוז 0.5 M | 5 mM | |
| 2 מ"ג/מ"ל ציסטאין | 0.2 mg | |
| פפאאין | 67 U | |
| 150 mM CaCl22 | 1.5 mM | |
| DNase I (15,0U) | 80 U | |
| תווך לזריעת נוירונים | סרום עגל עוברי | 5% |
| GlutaMax-1 | 1% | |
| גלוקוז 10% | 0.06% | |
| פניצילין-סטרפטומייצין בריכוז 100× | 1× | |
| תווך תחזוקה נוירונלי | תווך נוירובזאלי (Neurobasal medium) | 97% |
| B27 | 1/50 | |
| GlutaMax-1 | 0.5 mM | |
| פניצילין-סטרפטומייצין 10× | 1% | |
| תווך גידול לתאי 293T | DMEM עם 10% | 90% |
| סרום עגל עובר | 10% | |
| גלוטמין | 2 mM | |
| פניצילין-סטרפטומייצין 10× | 1% |
טבלה 1: הרכב המצעים.
קובץ משלים 1: מבנים לנטיווירליים של מוטציות ב-GFAP. מוטציות ב-GFAP נוצרו באמצעות מוטגנזה מכוונת (site-directed mutagenesis). אנא לחצו כאן להורדת קובץ זה.
איור משלים 1: תרשים של מוטציות GFAP שנוצרו על ידי מוטגנזה מכוונת (site-directed mutagenesis).נא לחץ כאן להורדת קובץ זה.
דיון
תרביות ראשוניות של אסטרוציטים קידמו באופן משמעותי את הבנתנו לגבי תפקידם של אסטרוציטים בבריאות ובמחלה. בהתבסס על עבודתם המכוננת של McCarthy ו-de Vellis21, תרביות אלו הן קריטיות לחקר AxD, שכן הן מאפשרות בחינה מפורטת של תהליכים ספציפיים לאסטרוציטים, ובמיוחד את השפעת מוטציות AxD על הרכבת GFAP ויצירת אגרגטים.
בידוד וטיפוח מוצלחים של אסטרוציטים ראשוניים תלויים בכמה שלבים מרכזיים המשפיעים על חיות התאים, טוהרם והשחזוריות של התוצאות. דיסקציה מהירה ומדויקת של רקמת המוח, בשילוב עם אופטימיזציה קפדנית של ריכוז ה-trypsin ומשך העיכול, חיוניים למניעת התדרדרות הרקמה ולהבטחת דיסוציאציה מלאה לתליה של תאים בודדים. טריטורציה עדינה ושימוש במסננת תאים סטרילית משפרים עוד יותר את טוהר התאים על ידי הסרת פסולת וצברים. שלבים אלו, שאחריהם צנטריפוגה במהירות נמוכה וריסספנסיה זהירה במצע גידול טרי, מסייעים בשמירה על חיות וצמיחה גבוהה של התאים, תוך מזעור השונות והזיהום. לאחר הבידוד, בחירת הציפוי של המשטח היא קריטית להבטחת היצמדות תאיות חסונה ולהשגת המטרות הניסיוניות. Poly-L-lysine (PLL) משמש לעיתים קרובות בשל יעילותו הכלכלית ויכולתו לקדם היצמדות תאית חזקה, אך ציפויים אחרים כמו laminin22,23 וקולגן24 עשויים לדמות טוב יותר תנאי in vivo או להקל על מחקרים תאיים ספציפיים. הבנת השפעות אלו מאפשרת לחוקרים לתכנן ניסויים המניבים תוצאות רלוונטיות וניתנות לשחזור.
למרות האתגרים הטכניים, פרוטוקול זה נותר חיוני, שכן הוא מציע מודל רלוונטי פיזיולוגית העדיף על פני שורות תאים מוטמעים (immortalized cell lines). עם זאת, חשוב להכיר במספר מגבלות: 1) תהליך הבידוד והתרבית תובעני מבחינה טכנית ודורש מיומנויות וציוד ייעודיים. בהשוואה לשורות תאים מבוססות, שיטה זו דורשת זמן רב יותר ונוטה לשונות, מה שעלול להשפיע על השחזוריות של הניסוי. 2) אסטרוציטים מראים הטרוגניות אזורית משמעותית in vivo25,26, כאשר אוכלוסיות מובחנות נמצאות באזורים שונים של ה-CNS. תרביות אסטרוציטים ראשוניות נגזרות בדרך כלל מאזורי מוח ספציפיים, כגון הקורטקס או ההיפוקמפוס, וייתכן שלא ישקפו במלואן את המגוון של אוכלוסיות האסטרוציטים ברחבי ה-CNS. 3) תהליך הבידוד והתרבית גורמים לעיתים קרובות למצב ריאקטיבי באסטרוציטים עקב הפרוצדורה הפולשנית, עיכול אנזימטי וחשיפה לתנאי תרבית מלאכותיים. בעוד שמצב ריאקטיבי זה שימושי לחקר אסטרוגליאוזיס ריאקטיבית, ייתכן שהוא אינו מייצג במדויק את התגובות הפיזיולוגיות של אסטרוציטים לפגיעה או למחלה in vivo. דבר זה עלול להוביל לארטיפקטים לא-פיזיולוגיים שעלולים להטות את תוצאות הניסוי. 4) בתרביות אסטרוציטים ראשוניות חסרה סביבת המיקרו המורכבת של המוח הקיימת in vivo, כולל אינטראקציות עם נוירונים, מיקרוגליה, תאי אנדותל ומרכיבי המטריצה החוץ-תאית. אינטראקציות אלו קריטיות לתפקוד האסטרוציטים ולתגובתם לגורמי עקה, והיעדרן מגביל את היכולת לשחזר באופן מלא התנהגות in vivo. 5) אסטרוציטים ראשוניים המופקים ממכרסמים, כגון חולדות או עכברים, עשויים להיות שונים משמעותית במאפייניהם המולקולריים והתפקודיים בהשוואה לאסטרוציטים אנושיים27,28. גורמים אלו עלולים להכניס ארטיפקטים לא-פיזיולוגיים, מה שמדגיש את הצורך בתכנון ופירוש ניסוייים קפדניים. כדי להתמודד עם אתגרים אלו, שלבי טיהור נוספים, כגון מיון תאים מגנטי29 או בידוד מבוסס FACS30, עשויים להניב אוכלוסיות אסטרוציטים טהורות יותר. למרות ששיטות אלו מגבירות את מורכבות הפרוטוקול, הן מאפשרות מחקרים מדויקים יותר של תפקודי אסטרוציטים ספציפיים.
בניגוד לכמה מהפרוטוקולים המתקדמים הללו, השיטה המתוארת כאן מסתמכת על חומרי תרבית תאים נפוצים ומונעת את הצורך בציוד יקר. בנוסף, פרוטוקול זה מפשט את הכנת התרביות הראשוניות על ידי זריעה ישירה של תאים לאחר הבידוד, ללא צורך בניעור נוסף או בתת-תרבית31. גישה זו עשויה לשמר טוב יותר את ביטוי ה-GFAP ואת המצבים הראקטיביים של אסטרוציטים. היא קלה לביצוע, הדירה וניתנת ליישום על תאים מכל אזור במערכת העצבים המרכזית (CNS), ובכך מספקת כלי רב-גוני לחוקרים. אסטרוציטים ראשוניים המועשרו באמצעות פרוטוקול זה שומרים על הארכיטקטורה התאית המקורית שלהם, על מסלולי האיתות ועל התכונות התפקודיות, מה שהופך אותם למתאימים למגוון רחב של מחקרים ביולוגיים ובכימיים בתאים16,17,32. עם מומחיות טכנית מתונה וטיפול זהיר, ניתן לתחזק תרביות אלו עם חיוניות גבוהה, והן מספקות תובנות בעלות ערך לגבי המורפולוגיה, התפקוד וההתנהגות של אסטרוציטים. למרות שהפרוטוקול תוכנן במיוחד לבידוד אסטרוציטים מקליפת המוח של חולדות לאחר הלידה, ניתן להתאימו בקלות לבידוד אסטרוציטים מעכברים או מאזורי מוח אחרים, כגון ההיפוקמפוס או חוט השדרה. גמישות זו הופכת את השיטה לרב-גונית מאוד עבור מענה לשאלות מחקר מגוונות במדעי העצבים. לצורך מידול מחלות, אסטרוציטים המופקים מחולדות מדגם AxD יכולים לשחזר מוטציות GFAP הקשורות למחלה, היווצרות סיבי Rosenthal ותגובות פתולוגיות לעקה33, ובכך מספקים פלטפורמה עוצמתית לחקר מנגנוני AxD.
ניתן לבצע מניפולציה גנטית של אסטרוציטים ראשוניים המופקים מחולדות נורמליות באמצעות טרנסדוקציה של לנטי-וירוס, כדי לבחון את ההשפעות של מוטציות AxD על הרכבת GFAP ויצירת אגרגטים9,33. שלב קריטי בתהליך זה הוא בחירת באפר מיצוי מתאים, שכן הוא משפיע באופן משמעותי על הערכת תכונות המסיסות של GFAP מוטנטי באסטרוציטים שעברו טרנסדוקציה34. באפר Radioimmunoprecipitation assay (RIPA), בשל השילוב של דטרגנטים יוניים ולא-יוניים, ממיס ביעילות סיבי GFAP תוך שימור אגרגטים10, ובכך מאפשר ניתוחים ביוכימיים מקיפים המרכזיים למטרות המחקר של לימוד זה.
באופן כללי, תרביות ראשוניות של אסטרוציטים מספקות פלטפורמה רב-גונית ועוצמתית לחקר הביולוגיה של האסטרוציטים ומנגנוני מחלות, במיוחד ב-AxD. באמצעות אופטימיזציה של הפרוטוקולים וטיפול במגבלות, חוקרים יכולים לשפר את השחזוריות והמהימנות, מה שהופך שיטה זו לחיונית לקידום הבנתנו לגבי תפקוד האסטרוציטים ולזיהוי מטרות טיפוליות עבור אסטרוציטופתיה הקשורה ל-GFAP.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
אנו מודים לד"ר Tracy Hagemann (מרכז Waisman, אוניברסיטת ויסקונסין-מדיסון) על אספקת חולדות ה-knock-in מסוג R237H. עבודה זו נתמכה על ידי מענקים מהמועצה הלאומית למדע וטכנולוגיה (111-2320-B-007-008 ו-112-2320-B-007-006 עבור N.-H. L. ו-M.-D.P.). המחברים אסירי תודה על התמיכה של מרכז הדימות הקונפוקאלי באוניברסיטת National Tsing Hua בטייוואן, הנתמך על ידי המועצה הלאומית למדע וטכנולוגיה (NSTC-114-2740-M-007-001). אנו מודים גם למרכז המכשירים באוניברסיטת National Tsing Hua על הגישה למיקרוסקופ האלקטרונים.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1 M HEPES , pH 7.4 | Gibco | 15630-080 | |
| 100× penicillin-streptomycin | Gibco | 15140-122 | |
| 10× Hank's Balanced Salt Solution (HBSS) | Gibco | 14180-046 | |
| 2.5% Trypsin | Gibco | 15090046 | |
| 30% Acrylamide/Bis solution 37.5:1 | Biorad | 1610158 | |
| נוגדן anti-GFAP | Cell Signaling Technology | 12389 | |
| נוגדן anti-human GFAP | Biolegend | 837202 | Clone SMI21 |
| נוגדן anti-panGFAP | Agilent | GA524 | |
| נוגדן anti-ubiquitin | Millipore | ST 1200 | Clone FK2 |
| נוגדן anti-vimentin | Sigma-Aldrich | V6389 | Clone V9 |
| נוגדן anti-β III tubulin | Biolegend | 801201 | |
| תוסף B27 | Gibco | 17504044 | |
| סידום כלורי (CaCl2) | Arcos | 34961 | |
| ריאגנטים הקשורים לתרבית תאים | |||
| מערכת דימוי ChemiDoc | BioRad | NA | |
| צבע Coomassie blue | USB | 32826 | |
| ציסטאין | Sigma-Aldrich | C1276 | |
| דיתיותריטול (DTT) | UR | DTT | |
| DNase I | Sigma-Aldrich | D5025 | |
| הומוגניזטור Dounce | Wheaton | ||
| תווך Dulbecco's modified Eagle Medium (DMEM) | Corning | 10-013-CM | |
| ערכה להכנת DNA פלסמידי נקי מאנדוטוקסינים | Qiagen | 12943 | |
| ריאגנט כימילומינצנציה משופר (ECL) | PerkinElmer | NEL 105001 | |
| חומצה אתילנדיאמין טטרה אצטית (EDTA) | USB | 15699 | |
| סרום עגל עוברי | Gibco | A5209401 | |
| גלוקוז | Sigma-Aldrich | G8270 | |
| GlutaMax | Gibco | 35050-061 | |
| תווך מינימלי חיוני (MEM) | Corning | 10-010-CVR | |
| NaCl | Honeywell | 31434S | |
| תווך Neurobasal | Gibco | 21103049 | |
| אולטרסנטריפוגה Optima XE-90 | Beckman | NA | |
| פאפאין | Worthington | LS003126 | |
| פנילמתילסולפוניל פלוריד (PMSF) | ACROS ORGANICS | 215740050 | |
| פוליאתילן-אימין | Sigma-Aldrich | P3143 | |
| Poly-L-lysine | Sigma-Aldrich | P6516 | |
| אשלגן כלורי (KCl) | Honeywell | 12636 | |
| נוגדן Rhodamine anti-actin | BioRad | 12004164 | |
| סודיום דודציל סולפט (SDS) | USB | 75819 | |
| סודיום פירובט | Gibco | 11360070 | |
| StarBright Blue 520 goat anti-mouse IgG | Biorad | 12005867 | |
| StarBright Blue 700 goat anti-rabbit IgG | BioRad | 12004161 | |
| סוכרוז | Sigma-Aldrich | S5391 | |
| רוטור SW-28 | Beckman | NA | |
| ריאגנט טרנספקציה TansIT-LT1 | Mirus | MR-MIR-2300 | |
| TEMED | USB | 76320 | |
| Tris(hydroxymrthyl)aminomethane (Tris) | USB | 75825 | |
| Triton X-100 | Sigma-Aldrich | T9284 | |
| β-מרקפטואתנול | Sigma-Aldrich | M3148 |
מקורות
- Verkhratsky A, Nedergaard M. Physiology of astroglia. Physiol Rev. 2018;98(1):239-389.
- Eroglu C, Barres BA. Regulation of synaptic connectivity by glia. Nature. 2010;468(7321):223-31.
- Sofroniew MV. Astrogliosis. Cold Spring Harb Perspect Biol. 2014;7(2):a020420.
- Sofroniew MV, Vinters HV. Astrocytes: biology and pathology. Acta Neuropathol. 2010;119(1):7-35.
- Brandebura AN, Paumier A, Onur TS, Allen NJ. Astrocyte contribution to dysfunction, risk and progression in neurodegenerative disorders. Nat Rev Neurosci. 2023;24(1):23-39.
- Sofroniew MV. Molecular dissection of reactive astrogliosis and glial scar formation. Trends Neurosci. 2009;32(12):638-47.
- Hol EM, Pekny M. Glial fibrillary acidic protein (GFAP) and the astrocyte intermediate filament system in diseases of the central nervous system. Curr Opin Cell Biol. 2015;32:121-30.
- Brenner M, et al. Mutations in GFAP, encoding glial fibrillary acidic protein, are associated with Alexander disease. Nat Genet. 2001;27(1):117-20.
- Lin NH, Jian WS, Perng MD. Deletions in glial fibrillary acidic protein leading to alterations in intermediate filament assembly and network formation. Int J Mol Sci. 2025;26(5):1913.
- Yang AW, et al. Effects of Alexander disease-associated mutations on the assembly and organization of GFAP intermediate filaments. Mol Biol Cell. 2022;33(8):ar69.
- Lin NH, Perng MD. Experimental approaches for biochemical analysis of glial fibrillary acidic protein and its disease-associated variants. J Vis Exp. 2025;(225).
- Hagemann TL, Connor JX, Messing A. Alexander disease-associated glial fibrillary acidic protein mutations in mice induce Rosenthal fiber formation and a white matter stress response. J Neurosci. 2006;26(43):11162-73.
- Hagemann TL, et al. Antisense therapy in a rat model of Alexander disease reverses GFAP pathology, white matter deficits, and motor impairment. Sci Transl Med. 2021;13(620):eabg4711.
- Hagemann TL. Alexander disease: models, mechanisms, and medicine. Curr Opin Neurobiol. 2022;72:140-7.
- Lange SC, et al. Primary cultures of astrocytes: their value in understanding astrocytes in health and disease. Neurochem Res. 2012;37(11):2569-88.
- Lin NH, Yang AW, Chang CH, Perng MD. Elevated GFAP isoform expression promotes protein aggregation and compromises astrocyte function. FASEB J. 2021;35(5):e21614.
- Lin NH, Jian WS, Snider N, Perng MD. Glial fibrillary acidic protein is pathologically modified in Alexander disease. J Biol Chem. 2024;300(7):107402.
- Goya-Iglesias N, et al. Alexander disease mutations differentially sensitize glial fibrillary acidic protein (GFAP) to posttranslational modifications and network disruption by oxidants. Redox Biol. 2026;92:104103.
- Olabarria M, Putilina M, Riemer EC, Goldman JE. Astrocyte pathology in Alexander disease causes a marked inflammatory environment. Acta Neuropathol. 2015;130(4):469-86.
- Lee HG, Wheeler MA, Quintana FJ. Function and therapeutic value of astrocytes in neurological diseases. Nat Rev Drug Discov. 2022;21(5):339-58.
- McCarthy KD, de Vellis J. Preparation of separate astroglial and oligodendroglial cell cultures from rat cerebral tissue. J Cell Biol. 1980;85(3):890-902.
- Olsen ML, et al. Functional expression of Kir4.1 channels in spinal cord astrocytes. Glia. 2006;53(5):516-28.
- Strack A, et al. Chemokines are differentially expressed by astrocytes, microglia and inflammatory leukocytes in Toxoplasma encephalitis and critically regulated by interferon-gamma. Acta Neuropathol. 2002;103(5):458-68.
- East E, Golding JP, Phillips JB. A versatile 3D culture model facilitates monitoring of astrocytes undergoing reactive gliosis. J Tissue Eng Regen Med. 2009;3(8):634-46.
- Zhang Y, Barres BA. Astrocyte heterogeneity: an underappreciated topic in neurobiology. Curr Opin Neurobiol. 2010;20(5):588-94.
- Oberheim NA, Goldman SA, Nedergaard M. Heterogeneity of astrocytic form and function. Methods Mol Biol. 2012;814:23-45.
- Vasile F, Dossi E, Rouach N. Human astrocytes: structure and functions in the healthy brain. Brain Struct Funct. 2017;222(5):2017-29.
- Oberheim NA, et al. Uniquely hominid features of adult human astrocytes. J Neurosci. 2009;29(10):3276-87.
- Peterson IL, et al. Isolation and monoculture of functional primary astrocytes from the adult mouse spinal cord. Front Neurosci. 2024;18:1367473.
- Agalave NM, et al. Isolation, culture, and downstream characterization of primary microglia and astrocytes from adult rodent brain and spinal cord. J Neurosci Methods. 2020;340:108742.
- Du F, et al. Purity, cell viability, expression of GFAP and bystin in astrocytes cultured by different procedures. J Cell Biochem. 2010;109(1):30-7.
- Lin NH, et al. The role of gigaxonin in the degradation of the glial-specific intermediate filament protein GFAP. Mol Biol Cell. 2016;27(25):3980-90.
- Lin NH, Perng MD. Synergistic effects of glial fibrillary acidic protein mutation and overexpression in the pathogenesis of Alexander disease. Int J Mol Sci. 2026;27(10).
- Perng M, et al. The Alexander disease-causing glial fibrillary acidic protein mutant, R416W, accumulates into Rosenthal fibers by a pathway that involves filament aggregation and the association of alpha B-crystallin and HSP27. Am J Hum Genet. 2006;79(2):197-213.
הדפסות חוזרות והרשאות
תגיות
מאמר זה פורסם
הסרטון יגיע בקרוב