עבודה זו מציגה פרוטוקול להשגת עוברים משובטים של מין צבי בסכנת הכחדה באמצעות ציטות (oocytes) שעברו דנוקליאציה מבקרים. כאן אנו מתארים את המתודולוגיה המפורטת של העברה גרעינית של תאים סומטיים בין-מינית (interspecific somatic cell nuclear transfer) ואת השימוש בציטות ללא הזונה פלוסידה (zona pellucida) כציטופלסטים. בנוסף, התוצאות שהתקבלו נדונות בפירוט.
מאמר שיטה
העברה גרעינית של תאי סומטיים בין-מינית באמצעות ציטיות נטולות זונה פלוסידה של בקר (Bos taurus) ופיברובלסטים של צבי (Mazama americana)
במאמר זה
סיכום
תקציר
ביוטכנולוגיות רבייתיות המשמשות בבעלי חיים מאפשרות להגדיל אוכלוסיות של מינים בעלי ערך גנטי גבוה. יתרה מכך, טכנולוגיות אלו מסייעות בשימור, בהגנה ובהפצה של חומר גנטי מפרטים בעלי תכונות מעולות. ההצלה הגנטית של פרטים נבחרים הובילה למחקרים רבים במינים ביתיים במטרה להשליך את הממצאים על אוכלוסיות בעלי חיים אחרות או על פרטים ספציפיים. גישה אחת כזו היא באמצעות שימוש בהעברה גרעינית של תא סומטי (SCNT), או שיבוט, המשמשת להפקת עוברים עם חומר גנטי זהה לזה של דגימה קיימת. בין המגבלות של טכניקה זו נמצאת הזמינות המוגבלת של ציטות מבעלי חיים ברים. לכן, כחלופה, עלתה שיטת ההעברה גרעינית של תא סומטי בין-מינית (iSCNT), המשתמשת בתא סומטי (קריופלסט) מהמין המיועד לשיבוט כתור גרעין, והחדרתו לתוך ציטה ללא גרעין (ציטופלסט) שהושגה ממין השייך לסדרה או לטקסון אחר. גישה זו מאפשרת לקבל עוברים משובטים חיוניים. בברזיל קיימים תשעה מיני צבאים, ורבים מהם נמצאים בסכנת הכחדה עקב ציד חסר רסון, אובדן בתי גידול וסיבות אחרות. צבי הברוקט האדום (Mazama americana) הוא אחד המינים הסובלים מתנאים אלו. לפיכך, עבודה זו מציגה מתודולוגיה להפקת עוברים משובטים מצבי הברוקט האדום באמצעות טכניקת iSCNT, במטרה להקים בנק עוברים להעברה עתידית לנקבות מקבלות ובכך לסייע בהבטחת הישרדותו של המין.
מבוא
משפחת ה-Cervidae כוללת כיום 55 מינים של יונקים פרסתיים בעלי קרניים אמיתיות – מבנים גרמיים החשופים בחלק העליון של גולגולת הזכרים, למעט האייל הצפון-ארקטי (Rangifer tarandus), שבו שני המינים מחזיקים בהן1, ואייל המים הסיני (Hydropotes inermis), שבו אף אחד מהמינים אינו מחזיק בהן2. ה-Cervids שייכים לסדרה Cetartiodactyla, הכוללת גם את משפחות ה-pronghorn, הבקריים, החזירים, ה-taiassuids, הגמלים, ה-tangs, הגירפות והסספונים. באופן כללי, ה-cervids הם מעליסות עשבוניים המאכלסים מגוון רחב של בתי גידול ברחבי העולם, למעט יבשת אנטארקטיקה3.
תשעה מינים השייכים למשפחת ה-Cervidae מוכרים כיום בברזיל: Odocoileus virginianus (אייל זנב-לבן), Blastocerus dichotomus (אייל ביצות), Ozotoceros bezoarticus (אייל הפמפס), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira, ו-Passalites nemorivagus4.
טקסונומיה זו משקפת מחקרים מולקולריים עדכניים המראים כי הסוג Mazama הוא פוליפילטי5, מה שהוביל להכרה ב-Subulo6 וב-Passalites7 כסוגים נפרדים תקפים. רבים מהצבאים הניאוטרופיים הללו מאוימים יותר ויותר על ידי לחצים אנתרופוגניים, הכוללים אובדן בתי גידול, פרגמנטציה של הנוף וההפחתה הנובעת מכך במגוון הגנטי הקשור לבידוד של אוכלוסיות8.
במהלך 100 השנים האחרונות, טכניקות לרבייה מסייעת הוטמעו בהצלחה תחילה ביונקים במעבדה, ומועברות בהדרגה למינים פראיים בעלי עדיפות שימור גבוהה9. כתוצאה מכך, מרבית הביוטכנולוגיות הרבייתיות התפתחו באמצעות המודל של היונקים, ולפיכך, קבוצה זו זכתה למרבית תשומת הלב המחקרית. מספר טכנולוגיות רבייתיות הותאמו בהצלחה ליונקים, כולל הדחכה מלאכותית, העברת עוברים, הפריה חוץ-גופית (IVF), מיון מין של גמטות ועוברים, והקפאה של משאבים גנטיים10. עם זאת, טכניקה אחת בפרט, העברה גרעינית של תאי גוף (SCNT), בלטה על פני האחרות בשל תוצאותיה והשפעתה הפוטנציאלית בעת שימושה במינים בסכנת הכחדה11.
מבין הביוטכנולוגיות הרבייתיות הזמינות, השבוב מאפשר יצירת פרטים הזהים גנטית לבעל החיים התורם. העברה גרעינית של תאי סומטיים (SCNT) היא האסטרטגיה העיקרית המשמשת לשבוב, שבה גרעין של תא סומטי מוחדר לתוך ציטה (oocyte) שעוברה דה-נוקלאציה. עם זאת, בהקשר של מיני בר, יישומה מוגבל לעיתים קרובות בשל המחסור בתורמי ציטות והקשיים הטכניים הקשורים לאחזורן12. מגבלות אלו הובילו לפיתוח העברה גרעינית של תאי סומטיים בין-מינית (iSCNT) כגישה משלימה בתוכניות שימור, שבה ציטות מבעלי בית משמשות כציטופלסטיים מקבלים עבור גרעינים המופקים ממינים בסכנת הכחדה (איור 1). ההיתכנות של גישה זו הוכחה על ידי ייצור מוצלח של צאצאים חיים ממספר מיני בר באמצעות iSCNT13,14,15.
אסטרטגיות שונות הוצעו להפקה של עוברים משובטים, בהתאם לאופן המניפולציה של התאים הביציתים ותאי התורם. בגישה הקונבנציונלית, תאים ביציתיים בעלי zona pellucida שלמה עוברים להוצאת גרעין (enucleation), לאחר מכן מוחדר תא התורם לחלל הפריביטלין (perivitelline space) וממזגים אותו באמצעות אלקטרו-פיוזיה16. אפשרות אחרת היא הזרקה ישירה של הגרעין הסומטי לתוך תא ביציתי עטוף ב-zona באמצעות טכניקות של מיקרו-מניפולציה כגון מיקרו-הזרקה17. לעומת זאת, מערכות ללא zona pellucida (מערכות ZP-free) מפשטות את הליך השבטי על ידי הימנעות ממספר שלבי מיקרו-מניפולציה, שכן ניתן לבצע את הוצאת הגרעין באמצעות פיפטה קהה ללא צורך בציוד מורכב18. בניסוי זה, אנו מציעים להשתמש בתאים ביציתיים מסוג ZP-free כציטופלסטים במהלך iSCNT כדי להפיק עוברים משובטים תוך שימוש בציטופלסט של בקר ובקריופלסט של צבי.
פרוטוקול
נקבת אייל ברוקט אדום בוגרת נאספה על ידי רשויות הסביבה בגוארמירנגה, סארה, ברזיל (4°13'53.0'' דרום, 38°(56'42.6'' W). בעל החיים התקבל מת במעבדה לשימור צביים ניאוטרופיים (LACCERNE), באוניברסיטת מדינת סארה (UECE), פורטאלזה, ברזיל. ממצאי הנתיחה לאחר המוות הצביעו על כך שהמוות נגרם מפגיעות טראומטיות מרובות שנגרמו מקליע נשק חם שחדר דרך האזור הבטני הדורסו-לטרלי השמאלי. השימוש בדגימה זו אושר על ידי ועדת האתיקה לניסויים בבעלי חיים של אוניברסיטת מדינת סארה (CEUA-UECE, מספר פרוטוקול 450620/2022) והמכון הברזילאי לאיכות הסביבה ומשאבי טבע מתחדשים (IBAMA, מספר פרוטוקול 02027.014734/99-34). בנוסף, השימוש בשחלות בקר אושר על ידי CEUA/UECE (מספר פרוטוקול 31032.004671/2024-81). פרטיהם של כל הריאגנטים והציוד שנעשה בהם שימוש מופיעים ב- טבלת חומריםהנתונים התומכים במחקר זה זמינים ב-Zenodo תחת מספר DOI 10.5281/zenodo.22129414.
1. תמיסות ומצעי גידול
הערה: בצע את כל פעולות הסינון באמצעות מסנן סטרילי של 0.22 µm ושמור את התסנין בטמפרטורה של 4 °C למשך עד שבוע. שמור את תמיסות המלאי בטמפרטורה של -20 °C.
- תוכס ההובלה: יש להוסיף 8.1 g של NaCl ו-0.045 g של pentabiotic ולהשלים ל-900 mL עם מים מזוקקים.
- סליין עם בופר פוספט (PBS): יש להוסיף 0.4 g של NaCl, 0.01 g של KCl, 0.077 g של NaH2PO4 ו-0.01 g של KH2PO4, ולהשלים ל-50 mL עם מים אולטרה-טהורים.
- מדיום לתרבית תאים: Dulbecco's Modified Eagle Medium (DMEM) תומתק ב-10% (v/v) סרום בקר עוברי (FBS) ו-1.0% (v/v) תמיסת פניצילין, סטריפטומייצין ואמפוטריצין B (ATB).
- תמיסת קריו-שימור לפיברובלסטים: DMEM תומתק ב-10% (v/v) FBS, 10% (v/v) dimethyl sulfoxide (DMSO) ו-2.0% (v/v) תמיסת ATB.
- Trypsin-EDTA (0.25%).
- מדיום למניפולציה: מדיום Tyrode עם בופר HEPES המכיל אלבומין, לקטט ופירובט (H-TALP). יש להשתמש במדיום זה לכל ההליכים המבוצעים מחוץ לאינקובטור. ל-1 L, יש להוסיף 6.763 g NaCl, 0.239 g KCl, 0.294 g CaCl2·2H2O, 0.048 g MgCl2, 0.168 g NaHCO3 ו-3.575 g HEPES, ל-981.86 mL של מים סטריליים לבדיקת עוברים. יש לערבב ולהוסיף 10 mL של אנטיביוטיקה-אנטימיקוטית, 1 mL של phenol red, 1.44 mL של sodium lactate, 1 mL של תמיסת אם של sodium pyruvate בריכוז 100 mM, ו-3 g של albumin סרום בקר (BSA). יש לכוון את האוסמולריות ל-280 mOsm ואת ה-pH לטווח של 7.2 עד 7.4. יש לחלק לאליקוואטות של 50-mL ולאחסן ב-4 °C למשך חודש אחד.
- מדיום להבשלה במערכת in vitro: Medium 199 (TCM-199) תומתק ב-10% (v/v) FBS, 10 ng/mL לגור growth factor (EGF), 1 mM sodium pyruvate, 100 µM cysteamine, 10 µg/mL הורמון מעורר זקיקים (FSH), 1 µg/mL estradiol ו-1% (v/v) ATB. יש לכוון את ה-pH ל-7.2–7.4.
- תמיסת היאלורונידאז (ריכוז סופי: 1 mg/mL): יש להמיס 10 mg של hyaluronidase ב-10 mL של H-TALP. יש להכין אליקוואטות של 200 µL באותות של 1.5-mL, מוכנות לשימוש.
- תמיסת פרונאז (ריכוז סופי: 1.5 mg/mL): יש להמיס 15 mg של pronase ב-10 mL של H-TALP. יש להכין אליקוואטות של 200 µL באותות של 1.5-mL, מוכנות לשימוש.
- דמהקולצין (ריכוז סופי: 0.4 µg/mL): יש להמיס 5 mg של demecolcine (DMC) ב-125 µL של DMSO ולהכין אליקוואטות של 5 µL (תמיסת אם). יש להקפיא את האליקוואטות עד לשימוש. יש לדלל אותן על ידי ערבוב של 2 µL מתמיסת האם עם 1998 µL של TCM כדי לקבל את תמיסת העבודה. לפני השימוש, יש להוסיף 5 µL מתמיסת העבודה ל-495 µL של נוזל חצוצרה סינתטי (SOF).
- Hoechst (ריכוז סופי: 10 µg/mL): יש להמיס 1 mg/mL של Hoechst 33342 ב-H-TALP. יש להכין אליקוואטות של 5 µL ודילולים של 1:100 במדיום תרבית SOF.
זהירות: Hoechst 33342, המשמש להדמיית DNA גרעיני תחת תאורה UV, הוא חומר אינטרקלאטורי ומוטגנט חזק. יש לטפל בו עם ציוד מגן אישי מתאים. - פיטוהמוגלוטינין (ריכוז סופי: 1 mg/mL): יש להמיס 5 mg של phytohemagglutinin (PHA) ב-500 µL של H-TALP. יש להכין אליקוואטות של 10 µL באותות של 200 µL. לשימוש, יש להוסיף 90 µL של H-TALP.
- מדיום להיתוך תאים: 0.3 M mannitol, 0.1 mM MgSO4, 0.05 mM CaCl2, HEPES 0.5 mM ו-1 mg/mL polyvinyl alcohol (PVA) במים אולטרה-טהורים. יש להשתמש באותו יום של ההכנה.
- יונומייסין (ריכוז סופי: 5 µM): יש להוסיף 1 mL של DMSO לבקבוקון ionomycin (1 mg/vial). יש להוסיף 1.67 mL של TCM-199. יש להקפיא אליקוואטות של 10 µL באותות של 1.5 mL ב-20 °C-. לשימוש, יש להוסיף 990 µL של H-TALP לתוכן של כל אות של 1.5 mL. יש להגן מאור.
- 6-Dimethylaminopurine (ריכוז סופי: 2 mM): יש להמיס 10 mg של 6-dimethylaminopurine (6-DMAP). יש להקפיא אליקוואטות של 50 µL באותות של 1.5-mL ב-20 °C-. לשימוש, יש להוסיף 950 µL של SOF לתוכן של כל אות של 1.5 mL.
- מדיום לתרבית עוברים: 0.2 mM L-glutamine, 0.2 mM sodium pyruvate, 2% חומצות אמינו חיוניות Basal Medium Eagle (BME), 1% חומצות אמינו לא חיוניות MEM 100×, 1.0% (v/v) תמיסת ATB, 2.77 mM myo-inositol, 2.5% (v/v) FBS, 10 µL/mL ITS (תערובת של אינסולין, טרנספרין אנושי וסלנית נתרן) ו-3 g/L BSA.
2. איסוף וטיפול במדגם רקמה מתורם
- יש לשטוף ולגלח את פני השטח של אוזן נקבת התורמת בעזרת סבון ומים; לאחר מכן, יש לחטא את האזור באלכוהול (70%).
- יש להסיר דגימת אוזן קטנה (1 × 2 cm) באמצעות להב סקלפל, להניח אותה בתמיסת PBS המכילה 4% ATB, ולהעביר אותה למעבדה תוך שמירה על טמפרטורה של 4 °C.
- יש לחתוך את דגימת הביופסיה לחתיכות קטנות באמצעות להב סקלפל ולהניח אותן בצלחת פטרי של 35 mm המכוסה בתווך גידול. יש לגדל בטמפרטורה של 38.5 °C תחת לחות רוויה עם 5% CO₂.
- יש להחליף את תוך הגידול בכל 48 h עד שהתאים יגיעו לקונפלואנציה (confluence), וזאת כדי למנוע זיהום.
- יש להסיר את תוך הגידול מהצלחת שהגיעה לקונפלואנציה ולהוסיף 1 mL של 0.25% trypsin-EDTA לצלחת פטרי של 35 mm למשך 2 min.
- כדי לנטרל את ה-trypsin, יש להוסיף 2 mL של תוך גידול תאים. יש להעביר את תלי suspension התאים למבחנה של 15 mL ולסבב אותה בצנטריפוגה במהירות של 200 x g למשך 10 min בטמפרטורת החדר (≈ 25 °C).
- יש להסיר את הנוזל העליון (supernatant) ולפרוס מחדש את משקע התאים (pellet) ב-10 mL של תוך גידול. יש לבצע פסאז' (passage) לתרבית הפיברובלסטים מדי 5 ימים.
- יש לבצע קריו-שימור לפיברובלסטים על ידי פריסה מחדש של משקע התאים ב-1 mL של תמיסת קריו-שימור. יש להעביר את תלי התאים למבחנות הקפאה (cryovials), להניח אותן ב-80 °C- במכל הקפאה בקצב מבוקר למשך 18 h, ולאחר מכן להעביר אותן למיכל חנקן נוזלי (196 °C-) עד למועד השימוש. לאחר קריו-שימור הפיברובלסטים, ניתן להשהות את הטיפול בתאים ולהחליתו רק במועד סנכרון מחזור התא.
- יש להפשיר ולגדל את הפיברובלסטים שבוע-שבועיים לפני השימוש בהם ל-iSCNT.
3. סנכרון מחזור התאים
- סנכרנו את מחזור התא באמצעות הגעה לצפיפות (confluence) בשלב G0/G1.
- הסירו את מצע התרבית מהצלחת הצפיפה והוסיפו 1 mL של 0.25% trypsin-EDTA לצלוחית פטרי בקוטר 35 mm למשך 2 דקות באינקובטור CO₂ בטמפרטורה של 38.5 °C. הוסיפו 2 mL של מצע תרבית כדי לנטרל את ה-trypsin.
- העבירו את סספנסיית התאים למבחנה של 15 mL וסבבו בצנטריפוגה במהירות של 200 x g למשך 10 דקות.
- הסירו את העילאי (supernatant) והשביו מחדש את משקעי התאים ב-1-3 mL של מצע תרבית תאים עבור iSCNT.
4. איסוף ביציות
- אסוף שחלות בקר מעגלות או פרות מיד לאחר השחיטה והעבר אותן למעבדה בתוך תרמוס המכיל תווך הובלה, תוך שמירה על טמפרטורה של 25-30 °C.
- שטוף את השחלות פעמיים בתווך תרבית והנח אותן בכלי כימי (beaker) בתוך מקלח מים בטמפרטורה של 38.5 °C.
- שאב נוזל זקיקי מזקיקים שקוטרם 2-8 mm באמצעות מחט בנפח 18-gauge המחוברת למזרק של 10 mL המכיל תווך H-TALP.
- העבר את הנוזל הזקיקי שנשאב לשפופרת קונית של 50-mL והשאר אותו למשך 15 min לפחות במקלח מים בטמפרטורה של 38.5 °C.
5. הבשלה וניקוי של ביציות
- לאחר 15 דק', העבירו בזהירות את כל המשקע באמצעות פיפט פסטור מפלסטיק לצלוחית פטרי (100 × 15 mm).
- השתמשו במיקרוסקופ סטריאוסקופי כדי לבחור קומפלקסים של תאי קומולוס ואוציט (COCs) בעלי לפחות שלוש שכבות דחוסות של תאי קומולוס התואמות לדרגות I עד III (טבלה 1)19.
- שטפו את ה-COCs שלוש פעמים בחצי H-TALP ולאחר מכן פעמיים במצע הבשלה in vitro.
- העבירו 20-25 COCs לכל טיפה של 100 µL של מצע הבשלה in vitro המכוסה בשמן מינרלי. דגרו אותם בטמפרטורה של 38.5 °C באטמוספירה המכילה 5% CO₂ ובלחות רוויה למשך 20-22 שעות.
- הסִירו את התאים מצביר ה-COC על ידי פיפטאג עדין ב-200 µL של תמיסת היאלורונידאז למשך 2 דק'.
- שטפו את האוציטים כדי לנקות אותם מתאי קומולוס ב-2 mL של מצע H-TALP.
- תחת מיקרוסקופ סטריאוסקופי, בחרו את האוציטים המראים פליטה של הגוף הקוטבי הראשון (metaphase II - MII) עבור השלבים הבאים.
6. הסרת ה-zona pellucida, דנוקלאציה ושחזור של ציותים נקיים מ-zona pellucida
- דגרו את התאי ביצומות (oocytes) בשלב MII בטיפה של 100-µL של תמיסת pronase בטמפרטורה של 38.5 °C למשך 1-2 דקות. עקבו תחת מיקרוסקופ סטריאו עד שה-zona pellucida מתחילה להידלל.
- הוציאו מיד את התאים ביצומות והעבירו אותם למצע תרבית מועשר ב-20% FBS כדי לנטרל את ה-pronase.
- דגרו את התאים ביצומות ללא ה-zona pellucida במצע SOF המכיל 0.4 µg/mL של demecolcine למשך 20 דקות כדי להשרות היווצרות של בליטה ציטופלזמית המכילה DNA, ולאחר מכן בצעו דגירה שנייה של 20 דקות באותו מצע המועשר ב-10 µg/mL של Hoechst.
- העבירו את התאים ביצומות ללא ה-zona pellucida לטיפות של H-TALP ובצעו דנוקליאציה (enucleation) באמצעות מיקרו-מניפולטורים המחוברים למיקרוסקופ הפוך.
- מקמו את התא ביצומות לצד פיפטת ההחזקה.
- סובבו את התא ביצומות עד שהבליטה ממוקמת בשעה שלוש, ושאבו את הבליטה יחד עם 5-10% מהציטופלזמה באמצעות פיפטת הזרקה בעלת קצה קהה של 25 µm.
- אשרו את הצלחת הדנוקליאציה על ידי צפייה בציטופלזמה שנשאבה תחת אור ultraviolet (איור 2).
זהירות: חשיפת תאים ביצומות לצבעי DNA ולאור ultraviolet גורמת לנזק לחומר הגנטי ומשרה סטרס חמצוני. מזענו את זמן החשיפה.
7. היתוך תאים
- הרכיבו את תא ההיתוך תחת מיקרוסקופ סטריאואי and מלאו אותו ב-2 mL של תווך היתוך ב-pH 7.
- בצ Dish פטרי בקוטר 60 mm, הכינו חמש טיפות של 100 µL וטיפה אחת של 30 µL של H-TALP, והוסיפו 50 µL של PHA.
- הוסיפו 5 µL של פיברובלסטים לטיפה של 30 µL של H-TALP, בחרו את התאים השומניים והבעירים (refractive), והעבירו אותם לטיפה של 100 µL של H-TALP.
- העבירו את הביציות שעברו דנוקלאציה (enucleated oocytes) לטיפה של 100 µL של H-TALP.
- חשפו את הביצית לטיפת ה-PHA למשך 4 s, הניחו אותה על תא, ואשרו שהשניים נצמדו. לאחר מכן, העבירו את הקומפלקס לטיפת TALP-H נקייה מתוכן.
- לאחר שהביצית והתא נצמדו, העבירו אותם לצלחת המכילה 2 mL של תווך היתוך כדי לאפשר להם לשקוע. לאחר מכן, הניחו את הקומפלקס בתא ההיתוך בין האלקטרודות, כאשר התא ממוקם בשעה 6 או 12.
אזהרה: באפרים של האקטיבציה המשמשים במהלך האלקטרו-פיוז'ן מכילים ionomycin, המשבש את ההומאוסטזיס של הסידן התאי. שדות חשמליים במתח גבוה מהווים סיכון להתחשמלות או לקשת חשמלית אם הציוד רטוב או אם נעשה בו שימוש שגוי. - בצעו את ההיתוך באמצעות תא מיקרו-פיוז'ן עם מרווח אלקטרודות של 0.2 mm. באמצעות electroporator, גרמו לרצף פולסים בודד המורכב משני פולסים של זרם ישר (DC) חד-כיווניים ב-0.72 kV/cm, כאשר כל פולס נמשך 30 µs והרווח בין הפולסים הוא 0.1 s.
- לאחר מתן הפולס, העבירו כל זוג ביצית-תא בנפרד למיקרו-טיפות של 5 µL של SOF המועשר ב-2.5% FBS, וגדלו אותם ב-38.5 °C באטמוספירה של 5% CO₂.
- העריכו את ההיתוך באופן פרטני לאחר 30 min תחת מיקרוסקופ סטריאואי.
- העבירו מבנים שלא התמזגו לסבב היתוך שני.
- התייחסו לקומפלקסים הממוזגים כאל עוברי שחזורים ללא zona pellucida, והדגירו אותם למשך 2 h עד לאקטיבציה (זמן תכנות מחדש).
8. הפעלת ביציות ותרבית עובריים
- דגרו את המבנים המשוחזרים בטיפות של 100 µL של תמיסת H-TALP המכילה 5 µM ionomycin למשך 4 דקות.
- שטפו את המבנים המשוחזרים בארבע טיפות של 100 µL של תמיסת H-TALP.
- דגרו את המבנים המשוחזרים בטיפות של 100 µL של תמיסת SOF המכילה 2 mM 6-DMAP למשך 3 שעות.
- שטפו את המבנים המשוחזרים בארבע טיפות של 100 µL של תמיסת SOF.
- הכינו פלטות מיקרו-בארות באמצעות קפילרה מזכוכית מחוממת שנלחצה קלות לתחתית של צלחת פטרי במידות 35 × 10 mm. צרו בין 20 ל-25 מיקרו-בארות, שכל אחת מהן היא בקוטר של 500 µm ובעומק של 250 µm20.
- הניחו את העוברים המשוחזרים באופן פרטני בתוך בארות המיקרו-פלטה המותאמות, כסו אותם ב-100 µL של תמיסת SOF, ולבסוף כסו ב-3 mL של שמן מינרלי. הכניסו את המיקרו-פלטות למדגרה תלת-גזית עם 5% CO₂, 5% O₂, ו-90% N₂ למשך 7 ימים.
תוצאות
התוצאות נותחו באמצעות תוכנת R (גרסה 4.5.2). שיעורי ההביקוע והבלאסטוציסט הושוו בין זוגות (צבי/בקר לעומת בקר/בקר) באמצעות מבחן Fisher המדויק. בוצעו עשרה חזרות: ארבע עבור זוג צבי/בקר ושש עבור זוג בקר/בקר. בנוסף, עבור כל הבדיקות, רמת המובהקות נקבעה ל-5%.
במהלך הבדיקה, 472 ציטות של בקר שהושגו ממסבך מקומי שימשו כמקלטי ציטופלסט. עם זאת, לאחר הבשלה חוץ-גופית (in vitro) ואלקטרו-היתוך עוקב, 73 מבנים לא התמזגו והוצאו מהשלבים הבאים, מה שהביא ל-399 מבני קריופלסט/ציטופלסט שהתמזגו בהצלחה. מתוך סך זה, נעשה שימוש בזוגות הבאים (קריופלסט/ציטופלסט): ארבע חזרות של צבי/בקר (n = 175) ושש חזרות של בקר/בקר (n = 224) (טבלה 2).
כדי להעריך את ההשפעה של iSCNT, תרבתו עוברים משוחזרים ללא zona pellucida במיקרו-בארים עד ליום 7. מיקרו-פוטוגרפיות מייצגות של מורולה ובלסטוציסט ללא zona pellucida מוצגות ב-איור 3.
טבלה 2 מציגה את שיעורי הפילול והבלאסטוציסטה שהתקבלו בניסוי זה. שיעור הפילול לא הראה הבדלים משמעותיים (P = 0.74) בין הקבוצות (זוגות צבי/בקר ובקר/בקר). מנגד, בנוגע לשיעור היווצרות הבלאסטוציסטה, נצפתה הבדל סטטיסטי (P=0.02), עם אחוז גבוה יותר בקבוצת השיבוט התוך-מינית. עם זאת, חשוב להדגיש את מגבלת העוצמה הסטטיסטית עבור סוג זה של ניסוי, שבו מספר השיבוטים הבין-מיניים הוא בדרך כלל קטן.
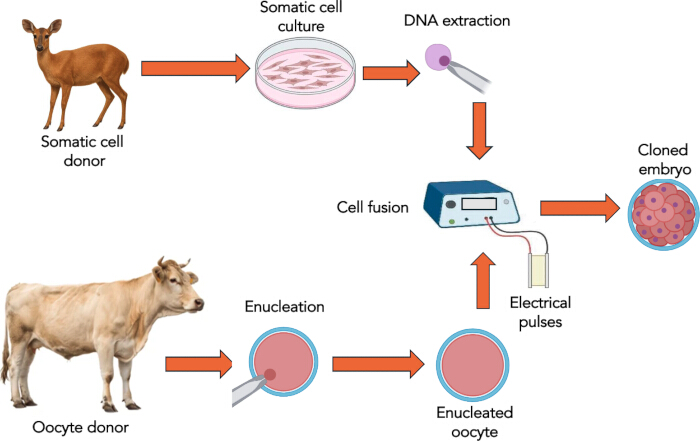
איור 1: שלבים סכמתיים של העברת גרעין של תא סומטי בין-מינית. פרות משמשות כתורמות ציטופלזם (cytoplast), בעוד שצבאים משמשים כתורמי גרעין (karyoplast). לאחר השגת העובר המשובט, ניתן להעבירו לנקבות מקבלות או להקפיאו בשימור קריוגני להעברה עתידית. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
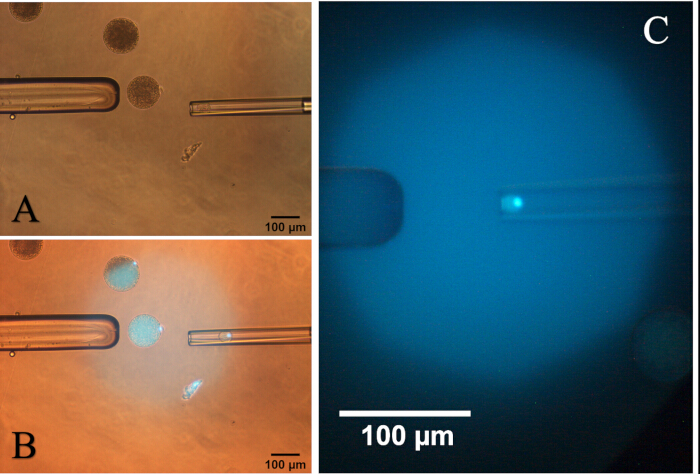
איור 2: פוטומיקרוגרפיה של ציטה (oocyte) מופעלת עם בליטה ציטופלזמית. (A) סיבוב הציטה להצבת הבליטה בשעה שלוש. (B) שאיבה של הבליטה יחד עם 5-10% מהציטופלזמה תחת חשיפה לאור על-סגול. (C) ציטופלזמה ובליטתה בפיפט השאיבה תחת אור על-סגול. אנא לחצו כאן להצגת גרסה מוגדלת של איור זה.
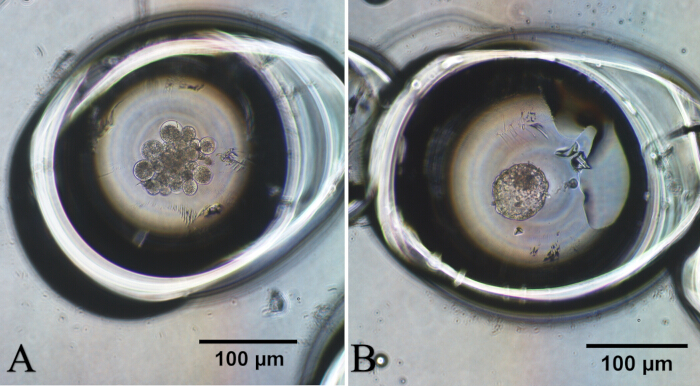
איור 3: פוטומיקרוגרפיה של עוברי צבאים שהופקו באמצעות העברה גרעינית של תאי גוף בין-מינית. (A) עובר משובט בשלב המורולה. (B) עובר משובט בשלב הבלסטוציסט. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| דירוג | מספר שכבות הקומולוס | התרחבות של תאי הקומולוס |
| I | > 3 | כיסוי מלא של ענני קומולוס עם מספר שכבות של תאים דחוסים ותאים רפויים במקצת |
| II | 2 - 3 | התרחבות קלה בשכבות התאים החיצוניות |
| III | 1 | כיסוי ענני קומולוס חלקי ושכבות תאים רפויות |
| עירוי תוך-ורידי (IV) | 0 | ללא ענני תאים (no cumulus) |
טבלה 1: סיווג של ציטות בקר המיועדות להוצאת גרעין לאחר מכן ולשימוש כציטופלסטים במהלך העברה של גרעין תא סומטי בין-מינית (מותאם מ-Aguila et al.)19.
| קבוצות (קריופלסט/ציטופלסט) | מספר חזרות | מספר עוברים ששוחזרו | מספר תאים שהתחלקו (%) | מספר בלאסטוציסטים (%) |
| Deer/cattle | 4 | 175 | 122 (69.7)a | 8 (4.6)a |
| Cattle/cattle | 6 | 224 | 160 (71.4)a | 24 (10.7)b |
| אותיות שונות באותה עמודה מעידות על הבדל סטטיסטי. | ||||
| שיעור התחלקות: P = 0.74 | ||||
| שיעור בלאסטוציסטים: P = 0.02 | ||||
טבלה 2: פיתוח in vitro של עוברים משובטים של צבי ברוקט אדום באמצעות ציטופלסט בקר. בוצעו עשרה חזרות: ארבע של זוג צבי/בקר ושש של זוג בקר/בקר. שיעורי הפילוג והבלאסטוציסט חושבו כאשר מספר העוברים המשוחזרים שימש כמכנה.
דיון
כבר תועד היטב כי ניתן לתכנת מחדש את הגנום של מינים בסכנת הכחדה באמצעות ציטות מבעלי משק, ובמיוחד מבקרים וחזירים, המהווים את המקור הגדול ביותר לציטופלסטים21. אחת ההתפתחויות המשמעותיות ביותר שהושגו ב-iSCNT הייתה השבחה של זבזב פירנאי (Capra pyrenaica pyrenaica), תת-מין שנכחד בעקבות מות הפרט האחרון הידוע ממנו. העוברים המשוחזרים הותגו על ידי היתוך של תאי אפיתל של זבזב עם ציטות של עיזים (Capra hircus). המחברים השיגו לידה של נקבה, ללא מומים מורפולוגיים חיצוניים. עם זאת, הצאצא סבל מכשלי נשימה חמורים ומת דקות ספורות לאחר הלידה22.
אחד המועמדים החזקים יותר ל"תחייה" הוא הממוט הצמרי (Mammuthus primigenius). כדי שהשבטיקה תהיה אפשרית, זמינותו של רקמה חיונית עם גרעינים שניתן לזהותם היא יסודית, דבר שמהווה קושי עבור מין שנכחד לפני כ-10,000 שנים. עם זאת, גופי ממוט שנמצאו בשכבת אדמה קפואה עומדים בדרישות המינימום עבור iSCNT23. עם זאת, ייתכן שמינים בסכנת הכחדה הם המועמדים המתאימים יותר להפיק תועלת מהשימוש בטכניקה זו.
קצב הסגמנטציה שנצפה במחקרנו הוכיח כי האקטיבציה והחלוקה העוברית הראשונה לא הושפעו מהשילוב הבינ-מיני של הגרעין והציטופלזמה. במהלך שלב השחזור, המניפולציה והמיזוג של המבנים (קריופלסט/ציטופלסט) הציגו את אותה קלות טכנית בשתי הקבוצות, מה שמעיד על תאימות מבנית בין המינים. באשר לשיעור הבלסטוציסטות, התוצאות מצביעות על כך שמרגע השחזור והאקטיבציה המוקדמת שלו עוברי iSCNT אינם מהווים גורם מגביל, אך קיימת אי-תאימות גרעינית-ציטופלזמית המתגלה בשלבים מאוחרים יותר של ההתפתחות, וככל הנראה קשורה לתכנות אפיגנטי בלתי שלם או למעבר המטרי-זיגותי המשפיע על יכולתו של העובר ההיברידי להגיע לשלב הבלסטוציסטה24. היעילות של iSCNT נוטה להיות גבוהה יותר כאשר הקריופלסטים והציטופלסטים מופקים ממינים קרובי משפחה מבחינה פילוגנטית, שכן הייצור הטבעי של צאצאים היברידיים בריאים מעיד על מידה מסוימת של תאימות נוקלאו-ציטופלזמית בין שני המינים23. לפיכך, כבר הוכח כי SCNT בין-תת-מיני יכול להוביל להולדה של צאצאים בריאים. המחברים השתמשו בציטופלסט של כלבה ובפיברובלסט של זאב והעבירו את העוברים ל-12 נקבות, מה שהוביל להולדה של צאצא אחד25.
השימוש ב-iSCNT נתקל ב"מגבלת עוצמה" משמעותית ביעילות הביולוגית וההתפתחותית שלו, אשר צונחת באופן דרסטי ככל שהמרחק האבולוציוני בין הגרעין התורם לבין הציט פולס של הביצית המקבלת גדל. בעוד שהשיטה מצליחה בין מינים קרובים (למשל, בקר ביתי וגאור)26, היא נכשלת באופן שגרתי בייצור צאצאים חיוניים או שורות תאים עובריים יציבות כאשר מנסים לחצות גבולות טקסונומיים רחוקים יותר.
שיבוט מהווה כלי חשוב לתוכניות של רביית בעלי חיים ושימור, שכן הוא מאפשר הכפלה של פרטים בעלי עליונות גנטית, תומך ביצירת בעלי חיים טרנסגניים, ותורם לשימור ארוך טווח של משאבים גנטיים בעלי ערך באמצעות בנקי גנים. עם זאת, אימוץ השיבוט בתוכניות רבייה של בעלי משק עדיין מוגבל בשל המספר הנמוך של בעלי חיים חיים המיוצרים ביחס למספר העוברים שהועברו18. הגישות הנוכחיות לייצור עוברים משובטים מחולקות בדרך כלל לשתי קטגוריות: שיבוט קונבנציונלי ושיבוט נטול ZP (ZP-free). בגישה הקונבנציונלית, נדרש מיקרו-מניפולטור להוצאת גרעין הביצית ולהחדרת התא הסומטי התורם לתוך הציטופלסט המקבל26. בניגוד לשיבוט קונבנציונלי, שיטת ה-ZP-free מבוצעת ללא מיקרו-מניפולציה27. התוצאות שהתקבלו במחקר שלנו היו דומות מאוד לאלה שאומתו באמצעות iSCNT, הן עבור קצב הביצוע של השסעים (cleavage rate) והן עבור ייצור בלאסטוציסטים20,21.
לבסוף, בהתחשב בשלבים השונים של הליך זה, חשוב להדגיש את הנקודות הקריטיות ואת פתרון הבעיות המעשי. בנוגע להסרת ה-ZP, שיטות שיבוט ללא ZP מציעות מספר יתרונות, הכוללים קלות תפעול, יעילות כלכלית ושיעור לידות חיים משופר יחסית לכל עובר שהועבר28. אישור הסרה מלאה של הגרעין (enucleation) ללא גרימת נזק קטלני לציטופלסט קובע האם המבנה המשוחזר יכול לתמוך בהצלחה בעובר משובט. למרות שחשיפה ל-UV ידועה כבעלת השפעות מזיקות29, היא נמצאת בשימוש שגרתי ברוב מעבדות השיבוט. לבסוף, בתרביות עוברים ללא ZP חסר מעטפת הגליקופרוטאין החיצונית המגנה, מה שמוביל לבעיות מרכזיות כגון שבירות פיזית גבוהה במהלך הטיפול ודיסוציאציה של בלאסטומרים30.
לסיכום, יש לפרש את התוצאות שהתקבלו במחקרנו כראיות ראשוניות להיתכנות הטכנית של פרוטוקול ה-iSCNT בשילוב של צבי/בקר, ולא כהוכחה חלוטה ליעילותו הפרודוקטיבית. לפיכך, נדרשים מחקרים נוספים עם מספר רב יותר של חזרות כדי לאשש ממצאים אלו.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
עבודה זו נתמכה על ידי הקרן הסירנזית לתמיכה בפיתוח מדעי וטכנולוגי (FUNCAP, פורטאלזה, ברזיל, מספר מענק 11212233/2022) והמכונים הלאומיים למדע וטכנולוגיה (INCT/CNPq, מספר מענק 406866/2022-8).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מחט שאיבה (18G) | LABIMPORT | 353601 | מחט חד-פעמית, חיתוך קצר |
| 6-דימתילאמינו-פורין (6-DMAP) | Sigma-Aldrich | D2629 | |
| אנטיביוטיקה–אנטימיקוטי (נוגד פטריות) | Gibco, Thermo Fisher Scientific | 15240062 | |
| אלבומין סרום בקר | Sigma-Aldrich | A9647 | |
| קלציום כלוריד דיהידרט (CaCl2·2H2O)·2H2O) | Sigma-Aldrich | C7902 | |
| בקבוק לתרבית תאים T-25 | Corning | 430639 | |
| מיקרו-מזרק CellTram | Eppendorf | 5196 000.021 | |
| צנטריפוגה | Eppendorf | 5702 | משמש לסבוב של תאים בצנטריפוגה במהירות של 200 × ב-g למשך 10 דקות לצורך שקיעת הדגימות ושטיפתן לפני פרוצדורות של העברה גרעינית. |
| מבחנות צנטריפוגה (50 מ"ל) | Corning | CLS430291 | |
| מבחנות הקפאה (1.8 מ"ל) | Nunc / Thermo Fisher | 368632 | |
| ציסטאמין | Sigma-Aldrich | M9768 | |
| דמקולצין | Sigma-Aldrich | D1925 | |
| מים מזוקקים. | _ | _ | |
| DMSO (הקפאת תאים) | Sigma-Aldrich | D2650 | חומר קריו-פרוטקטורי בריכוז 10% להקפאה של תאי תורם |
| מצע איגל משופר של דולבקו (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| פיפטה לאנוקולציה (20–25 µm מזהה) | Narishige | GD-1 | |
| גורם גדילה אפידרמלי (EGF) | Sigma-Aldrich | E4127 | |
| חומצות אמינו חיוניות BME | Sigma-Aldrich | M5550 | |
| אסטרדיול | Sigma-Aldrich | E8875 | |
| EVE אינקובטור (5% O2)2, 5% CO₂2, 90% N2) | רפואת WTA | סימוכין 23578 | |
| סרום עוברי בקר (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| קפילרה מזכוכית עם פילמנט | Narishige | GD-1 | קפילרית זכוכית זו משמשת ליצירת מיקרו-בארות (microwells) בתוך פטרי dish. |
| פלטה מחוממת | WTA רפואי | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (צבע DNA) | Sigma-Aldrich | B2261 | |
| החזקת פיפטה (120 μm OD) | Narishige | GD-1 | |
| היאלורונידאז | Sigma-Aldrich | H4272 | |
| מיקרוסקופ הפוך ECLIPSE | Nikon | TE2000-U | |
| יונומיצין (איונופור סידן A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| מCב laminar flow (מכלול זרימה למינרית) Isocide | Esco | 2120765 | מCב זרימה למינרית המספק סביבת עבודה סטרילית עבור פרוצדורות של תרבית עוברים ותאים. |
| L-גלוטמין | Sigma-Aldrich | G8540 | |
| מכל אחסון (דוואר) לחנקן נוזלי | ניטרואגרו | משתנה | |
| מגנזיום סולפט (MgSO4) | Sigma-Aldrich | M2643 | |
| תווך היתוך מניטול (0.3M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microforge MF-900 | Narishige | MF-900 | |
| מערכת מיקרו-מניפולטור | Narishige | MM-89 / TransferMan 4r | |
| מכשיר למשיכת מיקרופיפטות | Narishige | Narishige PC-100 | |
| מיקרופיפטות (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | סדרת Research Plus | |
| תא מיקרו-היתוך | Eppendorf | 12816532 | אביזר מרווח ייעודי של 0.2 מ"מ המיועד ליישומי אלקטרופורציה |
| שמן מינרלי (נבדק עבור עוברים) | Sigma-Aldrich | M8410 | |
| מולטיפורטור (Multiporator) | Eppendorf | 4308 000.015 | |
| מיו-אינוזיטול | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| חומצות אמינו שאינן חיוניות MEM | Sigma-Aldrich | M7145 | |
| פנטאביוטיקה | Zoetis | 10005048 | בקבוקון של 2,400,000 IU. |
| צלחת פטרי 35 מ"מ (נבדקה עבור עוברים) | Corning | 430165 | |
| צלחת פטרי 60 מ"מ (נבדקה עבור עוברים) | Corning | 430196 | |
| פנול אדום | Sigma-Aldrich | P0290 | |
| טיפים לפיפטה 1000 µL | Eppendorf | 9401030 | |
| טיפי פפיטה 200 µL | Eppendorf | 94052300 | |
| טיפים לפיפט ללא פילטר (0.5–10 µL) | Axygen | T-300 | |
| פולי(ויניל אלכוהול) (PVA) | Sigma-Aldrich | P8136 | |
| פרונאז (Protease מ-S. griseus) | Sigma-Aldrich | P8811 | |
| סודיום לקטט | Sigma-Aldrich | L7900 | |
| סודיום פירובט | Sigma-Aldrich | P4562 | |
| מיקרוסקופ סטריאו | Nikon | SMZ800 | |
| מים מזוקקים סטריליים לבדיקת עוברים | Sigma-Aldrich | W3500 | |
| מסנן סטרילי (0.22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| אינקובטור תלת-גזים (5% O2)2, 5% CO22, 90% N2) | רפואת WTA | סימוכין 23578 | |
| Trypsin-EDTA (0.25%) | Gibco / Thermo Fisher | 25200056 | |
| מים בדרגת ניקיון גבוהה ביותר (Ultrapure water)áנראה כי הטקסט שהזנת קצר מדי ("ter") מכדי להוות תוכן לתרגום. אנא ספק את הטקסט המלא שברצונך לתרגם. | Sigma-Aldrich | W3500 | |
| מנורת UV / מודול פלואורסצנציה | Leica / Olympus | משתנה | חשיפה קצרה לקרינת UV לאימות נקיעה של הגרעין; מזערי את הפוטו-טוקסיות |
מקורות
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב