פרוטוקול זה מתאר מודל מכרסמים לקוצר ראייה (myopia) ללא צורך במשקפיים או בתפירת עפעפיים, המושרה על ידי הזרקות של TGF-β2 לתחת הלחמית; הזרקות אלו מפעילות את ציר NLRP3/IL-1β-MMP2 הגורם להארכה צירית, בעוד ששיטת רישום ביומטרי מפוצלת ממזערת ארטיפקטים של הרדמה לצורך קבלת נתונים ברמת דיוק גבוהה.
מאמר שיטה
הקמה של מודל למיופיה במכרסמים המושרה על ידי TGF-β באמצעות הזרקות תת-לחמית
במאמר זה
סיכום
תקציר
קוצר ראייה (מיופיה) הוא בעיה מרכזית של בריאות הציבור בעולם, המאופיינת בהארכה מוגזמת של הציר האופטי ובשינוי מבני (remodeling) של המטריצה החוץ-תאית (ECM) של הלובנה. בעוד שדגמים ניסיוניים חיוניים לחקירת מנגנונים אלו, שיטות מסורתיות של טשטוש אופטי (defocus) במכרסמים קטנים מציבות מגבלות טכניות. כאן, הוקם והוערך מודל פרמקולוגי סטנדרטי לקוצר ראייה באמצעות הזרקות תת-לחמיות חוזרות של גורם גדילה טרנספורמטיבי בטא (TGF-β). כדי להשיג הזרקה ממוקדת, פותחה טכניקת ייצוב כירורגית דו-ידנית להפכת העפעף העליון, המאפשרת למחט במידה 33 למתגב את הלחמיה העפעלית בזווית רדודה של 20°–30°. באמצעות סריקת in vivo בחולדות, זוהה TGF-β2 (במינון של 500 pg/eye) כמניע בולט לצמיחה אחורית של העין. תיחום תגובה למינון (dose-response titration) לאחר מכן בעכברים חשף פרופיל בצורת U הפוכה. בקבוצת התיקוף הראשונית, המינון הנמוך ביותר (250 pg/eye) השרא הארכה צירית ניכרת (0.197 ± 0.012 mm) ושינויים רפרקטיביים לקוצר ראייה (−1.58 ± 0.63 D). ברמה המולקולרית, מתן חוזר של TGF-β2 הפעיל את קשקש האינפלאמסום של משפחת קולטני NOD עם דומיין pyrin 3 (NLRP3) / אינטרלוקין-1בטא (IL-1β) ברשתית, והעלה את ביטוי המטריקס מטלופרוטיינאז 2 (MMP2) בשני המינים. יחד עם משטר הקלטה ביומטרית מפוצלת למשך יומיים הממזער ארטיפקטים הקשורים להרדמה, פרוטוקול זה מספק פלטפורמה אמינה וניתנת להרחבה להערכת התערבויות נגד קוצר ראייה.
מבוא
קוצר ראייה (מיופיה) הפך למשבר בריאות הציבור גלובלי מרכזי, כאשר השכיחות שלו צפויה להשפיע על קרוב ל-50% מאוכלוסיית העולם עד שנת 20501,2. המניע הפתולוגי העיקרי לקוצר ראייה פרוגרסיבי הוא התארכות אקסייאלית (צירית) מופרזת של העין, הגורמת לרמיodeling פעיל של המטריקס החוץ-תאי ולניוון רקמות, המובילים לדלילות מבנית של מעטפות העין האחוריות3. שינויים דינמיים אלו כוללים הן רמיodeling מבני (המאופיין בניוון של ה-ECM בסקלרה, אובדן קולגן ודלילות של השכבה האחורית) והן רמיodeling תפקודי (המתאפיין בנוקשות ביומכנית מופחתת, הפרעה בפרפוזיה של הכורואיד ואיתות דלקתי חריג של ה-retino-RPE), אשר יחד מגבירים את הסיכון לכל cuộc החיים לסיבוכים המסכנים את הראייה ולליקוי ראייה בלתי הפיך, כולל מקולופתיה מיופית, היפרדות רשתית, גלאוקומה וקטראקט מוקדם4,5,6,7. למרות הנטל הקליני והסוציו-אקונומי המשמעותי של מצב זה, המנגנונים המולקולריים המדויקים המכוונים את הצמיחה העיןית החריגה עדיין אינם מובנים במלואם. לכן, פענוח מסלולי האיתות המניעים את ההתארכות האקסייאלית ופיתוח מודלים של בעלי חיים סטנדרטיים וניתנים לשחזור הם שלבים קריטיים לזיהוי מטרות טיפוליות חדשות ולניהול המגפה העולמית של קוצר ראייה.
בעוד שקוצרה כתוצאה מהסרת צורה (FDM) וקוצרה מושרית-עדשה (LIM) משמשים כסטנדרטים מובילים לחקירת טשטוש אופטי ואמטרופיזציה8,9,10,11, יישום של מודלים אלו של טשטוש אופטי במכרסמים קטנים — ובמיוחד בעכברים — מציב אתגרים טכניים משמעותיים. התנהגות הטיפוח האקטיבית של עכברים מובילה לעיתים קרובות להתנתקות המשקפיים, מה שמחייב נקיטת אמצעים מונעים מלחיצים כמו קולרים מגינים12. יתרה מכך, חיכוך מכני, תפירת עפעפיים ושינויים במיקרו-סביבה תחת המחסום גורמים באופן שגרתי לסיבוכים קרנאליים משניים, כגון עכירות או כיבובים בקרנית13,14,15. בעוד ש-FDM ו-LIM נותרים פרדיגמות בסיסיות לחקירת טשטוש חזותי, סיבוכים משניים של פני השטח של העין — כגון עכירות של הקרנית, חיכוך מכני או גירוי מתפירת העפעפיים — עלולים להפריע למדידות ביומטריות אופטיות15. ארטיפקטים פרוצדורליים אלו פוגעים ביציבות שכבת הדמעות ובשקיפות הקרנית, מה שמוביל לשיעורי החרגה גבוהים יותר מהניסוי ולרעש מדידה מוגבר13,16. לעומת זאת, השראה פרמקולוגית עוקפת מחסומים פיזיים, שומרת על בהירות הקרנית ומאפשרת ביומטריה אופטית ואולטרסונית מהימנה וניתנת לשחזור. בקוצרה, התארכות מופרזת של גלגל העין מונעת על ידי שינוי בבנייה מחדש של המטריקס extracelluar (ECM) של הסקלרה האחורית17, שבה איזופורמים של transforming growth factor-beta (TGF-β) פועלים כווסתים מרכזיים של סינתזה של קולגן ופרוטאו глиקנים18,19. עדויות חדשות מצביעות על כך שאיתות TGF-β עשוי להשפיע על דלקת עינית בדרגה נמוכה ועל פירוק מטריקס המתווך על ידי matrix metalloproteinase 2 (MMP2)20, ובכך לתרום פוטנציאלית לבנייה מחדש של הסקלרה ולהתארכות צירית21,22,23,24. נתון זה נתמך על ידי רמות מוגברות של transforming growth factor-beta 2 (TGF-β2), interleukin-6 (IL-6) ו-MMP2 שדווחו בנוזל העין של עיניים עם קוצרה25,26,27, כמו גם הפעלה של ציר ה-TGF-β / nuclear factor kappa B (NF-κB) / MMP2 במודלים ניסיוניים20,21. בעוד שממצאים אלו משקפים איתות מולקולרי תוך-עיני דינמי במהלך התקדמות הקוצרה, התרומות האנטומיות היחסיות לסמני נוזל העין — בין אם מהפרשה קדמית מקומית, זרימה ממאגר תת-לחמית או דיפוזיה מהוויטריוס האחורי — עדיין אינן ברורות לחלוטין. עם זאת, יש להכיר בהיקף ובמגבלות האינהרנטיות של מודל פרמקולוגי זה. מכיוון שהגשה של TGF-β לתת-הלחמית עקפה את הטשטוש האופטי ונתיבי העיבוד החזותי, מודל זה הוא המתאים ביותר לניתוח שרשראות ביוכימיות במורד הזרם — ובסגול, בנייה מחדש של ECM בסקלרה המתווכת על ידי TGF-β2 / NOD-like receptor family pyrin domain-containing 3 (NLRP3) / interleukin-1β (IL-1β) / MMP2 — ולסריקת סוכני טיפול מועמדים המכוונים לנתיבי דלקת או פירוק מטריקס. לעומת זאת, הוא אינו מתאים לחקירת העברה של אותות חזותיים במעלה הזרם, איתות אופטי מהרשתיסקלרה, או מנגנוני אמטרופיזציה מונעי-אור סביבתיים, שבהם מודלים מסורתיים של FDM או LIM נותרים חיוניים.
כדי לגשר על פערים מתודולוגיים אלו, הוקם ותוקף מודל לקוצר ראייה (myopia) באמצעות הזרקות חוזרות של TGF-β לתת-הלחמית בחולדות ועכברים, גישה מזוקקת הממזערת טראומה מכנית וגירוי של פני השטח של העין. על ידי עקיפת הצורך בחסימות פיזיות של הראייה, פרוטוקול זה מאפשר בקרה מדויקת על המינונים הפארמקולוגיים ולוחות הזמנים הניסיוניים, תוך הפחתה משמעותית של משתנים התנהגותיים מבלבלים הקשורים לציוד המותקן על הראש. במחקר זה, הוערכה יעילותן של שלוש איזופורמות רקומביננטיות של TGF-β אנושי (בעלות תגובתיות צולבת תפקודית מאושרת ברקמות מכרסמים, הנתמכת על ידי שימור הרצף28) בחולדות, ומופו קינטיקות התגובה למינון הבלתי-ליניאריות של TGF-β2 בעכברים. באופן משמעותי, משטר סטנדרטי זה השריע ביעילות קוצר ראייה פנוטיפי — המאופיין בהארכה אקסית (axial elongation) ובשינויים רפדקטיביים מיופיים בו-זמנית — והפעל את ציר ה-MMP2 ואת האינפלאמסום של NLRP3 (NOD-like receptor family pyrin domain-containing 3) / IL-1β (interleukin-1β) ברשתית. בסופו של דבר, פרוטוקול זה מספק מסגרת בת-קיימא ומוגדרת מולקולרית למיקוד בשינוי מבנה הסקלרה (scleral remodeling) במורד המסלול, תוך פירוט הגבולות התפעוליים הספציפיים שלו.
פרוטוקול
כל הניסויים על בעלי חיים נערכו בהתאם להנחיות ולתקנות של ועדת טיפול ושימוש בבעלי חיים של המוסד (IACUC) של אוניברסיטת הרפואה של סין (CMU). כל ההליכים עמדו בהצהרת עמותת מחקר הראייה והאופטאלמולוגיה (ARVO) בנוגע לשימוש בבעלי חיים במחקרים בתחום האופטאלמולוגיה ומחקר הראייה. התקבלה אישור מלא מ-IACUC של CMU לפני תחילת כל הניסויים. בעלי החיים הורגו בסופו של הניסוי בהתאם מחמירים להנחיות של ועדת טיפול ושימוש בבעלי חיים של המוסד (IACUC) של אוניברסיטת הרפואה של סין (CMU) ולחוקי הרווחה לבעלי חיים המקומיים.
1. בעלי חיים ואישור אתי
- השיגו עכברים זכרים מהגזע בראון נורווגי (BN) (3–4 שבועות של גיל, 60–80 גרם) ועכברים זכרים מהגזע C57BL/6 (B6) (3–4 שבועות של גיל, 15–20 גרם) מספק חיות מעבדה מתאים.
- החזק את כל החיות בסביבה מבוקרת (מחזור אור/חשכה של 12 שעות, 22°C) °C ± 2 °50% C ± 70%–50% יחסית לחות, עם גישה חופשית לאוכל סטנדרטי ולמים.
- השאירו תקופת התאקלמות מינימלית של 3 ימים לפני תחילת כל נוהל ניסיוני.
- הקצו עכברים או חולדות באופן אקראי לקבוצות טיפול: קבוצת ביקורת של ווסת וקבוצת TGF-βקבוצת הזרקה 2. השתמשו במספר מינימלי של N = 5 חיות לכל קבוצה כדי להבטיח עוצמה סטטיסטית מספקת.
הערה: נעשה שימוש בעיצוב מחקר בין-נושאי. שני העיניים של חיה בודדת קיבלו טיפולים זהים (למשל, בקרת וEHICLE דו-צדדית [1–2 µL BSS] או פעילות דו-צדדית rhTGF-β2).- מדוד פרמטרים עיניים דו-צדדיים (אורך צירית ושגיאת רפרקטיבית) עבור כל חיה.
הערה: יש לוודא שהתקבל אישור כתוב מה-CMU-IACUC, ושכל הצוות המבצע את ההליכים עבר הדרכה וקיבלה רישוי מתאים.
- מדוד פרמטרים עיניים דו-צדדיים (אורך צירית ושגיאת רפרקטיבית) עבור כל חיה.
2. הכנת TGF-β2 פתרון
הערה: יש לבצע את כל שלבי ההשעיה וההימעכות בתוך ארון בטיחות ביולוגית מאושר, תוך שימוש בטכניקות אספטיות מדויקות.
- הזרקה של חומר יבש ליופילייליזציה של TGF- אנושי, מומש מחדשβ2 ב-50% גליצרול סטרילי שמכיל 0.1% אלבומין ממסת בקר (BSA) להכנה של 100 µתמיסת מלאי של g/mL
- הכן תמיסות עבודה על ידי ביצוע דילולים עוקבים של תמיסת המOTHER בפתרון מלחים מאוזן סטרילי (BSS).
- לקבוצות העכברים (500 פיקוגרם), הימס את תמורת המאגר לריכוז סופי של 250 ננוגרם/מ"ל (250 פיקוגרם/µל) ל-2 µ0.5 מ"ל נפח זריקה לכל עין.
- לערכי עכברורי עקביות תגובת מינון, הכינו שלוש תמיסות עבודה נפרדות בריכוזים של 250 ננוגרם/מ"ל, 375 ננוגרם/מ"ל ו-500 ננוגרם/מ"ל (250, 375 ו-500 פיקוגרם/µל) ל-1 µ0.5 מ"ל נפח הזרקה לעין.
- הכן 15 שימוש-ייחודי–20 µL אליקוטים בצינורות סטריליים למיקרו-צנטריפוגה, הקפאה מיידית בnitrogen נוזלי, ואחסון ב-20- °C. התיך את האליקוווטים על קרח מיד לפני השימוש.
אזהרה: חנקן נוזלי עלול לגרום לכוויות קור חמור ולהוות סיכון לחנק. יש ללבוש ציוד מגן אישי מתאים לעבודה בטמפרטורות נמוכות ולעבוד בו באזור מאוורר היטב, בהתאם לנהלי הבטיחות של המוסד. - הכן את תמורת הבקרה במקביל באמצעות BSS סטרילי שמשולב בו מטריקס שווה ערך של 50% גליצרול ו-0.1% BSA.
3. הליך הזרקה סובקונג'ונקטיבלית
- הכניסו את החיות לחדר אינדוקציה עם 3–4% איזופלוראן לעירוי הרדמה. לאחר מכן, העבר את החיה לחרטום חוטם שמספק 1.5–תחזוקת הרדמה באמצעות איזופלוראן 2%.
אזהרה: איזופלוראן הוא חומר הרדמה נדיף. יש להשתמש במערכת איסוף מתאימה ולטפל בו בהתאם לנהלי הבריאות והבטיחות בסביבת העבודה של המוסד. - ודאו עומק תירשוש מספיק על ידי אימות היעדר תגובת הימנעות מלחיצת אצבעות הרגל.
- הצב את החיה בתנוחת שכיבה תחת פנס סיבים אופטיים. אחז, הרם והפוך כלפי חוץ בזהירות את העפעף העליון בעזרת מלקחיים מיקרוסקופיים בעלי קצוות עדינים, כדי לחשוף לחלוטין את ה結junctiva הפאלפברית ואת עמק ה结junctivaתמונה 1B).
- הרטיבו מראש 10 µסyringe זכוכית L ומחט 33 גייג' 2–3 פעמים עם הפתרון העבד כדי להיפטר מהנפח המת (Dead space). טען את נפח היעד (2 µלעכברים או 1 µלעכברים) ולנקות כל מיקרו-בועות.
אזהרה: יש להתייחס במזעריות ובכלי חדים אחרים בזהירות ולפזר אותם בקופסת זריקות מאושרת בהתאם להנחיות המוסד. - החזיקו את המחט בגודל 33-G עם המנוף פונה כלפי מעלה (מנוף-למעלה) ומיינו אותה לנקודת ההכנסה שסומנה על פני השטח ה結לח העורפי הגלוי (תמונה 1B,ג').
- הכנס את קצה המחט דרך האפיתל ה結ונקטיבלי בזווית שטוחה של 20°–30° זווית (תמונה 1C).
- להתקדם בזהירות עם המחט דרך המרחב הסובמוקרוזלי הצר, מעבר לקונג'ונקטיבה הפורניקס, לתוך התחום הסובקונג'ונקטיבלי הפאלפרלי (תמונה 1C).
שלב חשוב (מבנים שאותם יש להימנע מהם): יש להימנע בקפידה מחדירה של בלוטות מיבומיאן הקיימות מתחתיה או מחסימה לא רצויה של מבנים עיניים עמוקים יותר. יש לאשר חזותית את המיקום השטחי הנכון תחת המנורה על ידי בדיקה שחריטת המחט נותרת נראית מתחת לפני הקונג'ונקטיבה השקוף לאורך כל התקדמותה. - הזריקו את הפתרון לאט תוך 5 דקות–10 שניות. החזיקו את המחט במקומה עוד 5 שניות לפני הוצאתה לאט כדי למנוע זרימה אחורית של הנוזל.
הערה: אספקת תת-קונג'ונקטיבלית מתאימה מאושרת על ידי עלייה מיידית וממוקדת של הקונג'ונקטיבה ולבנות (יצירת בועית).- אם לא נוצר בועית או אם מתרחשת דליפה משמעותית, יש לבצע חזרה בודדת של ההזרקה במרחב ה結junctival הפלפברי התחתון ולרשום את הסטייה ביומן הניסוי.
הערה: יש להגביל את ההזרקות החוזרות לניסיון אחד בלבד לכל עין בכל ישיבה; לשלול חיות עם כשל מתמשך במתן החומר מהניתוח האורך-רוחב.
- אם לא נוצר בועית או אם מתרחשת דליפה משמעותית, יש לבצע חזרה בודדת של ההזרקה במרחב ה結junctival הפלפברי התחתון ולרשום את הסטייה ביומן הניסוי.
- סננו את חלל המיקרו-סyrינג' בין הזרקות בבעלי חיים נפרדים באותה קבוצה על ידי שטיפה 3 פעמים עם אתנול סטרילי בריכוז 70%, ולאחר מכן 5 פעמים עם נוזל מלח סטרילי.
- בדקו את קצה המחט 33-G תחת תוספת מידה כל 3–5 הזרקות, והחלף את המחט מיד אם קצה המחט נעשה עמום או מתכופף.
- הזריקו תחילה את כל חיות הקבוצות הביקורת (vehicle-control), לפני שעוברים על טיפול בקבוצות הניסוי, כדי לאלם את הסיכון של זיהום פרמקרולוגי. חזרו על מחזור הסניטציה של הסירינג לפני מעבר לקבוצות הטיפול.
- תרחף את גוף המזרק והמשאב בפתרון ניקוי מיקרו-מזרקים ייעודי, ולאחר מכן במים על-טהורים ובאيثנול מוחלט לאחר כל ישיבת ניסוי, ושמור יבש.
- חזרו על הזרקות תת-結לחית פעם בשבוע למשך 3 שבועות רצופים (ימים 0, 7 ו-14). בצעו הערכות ביומטריות ארוכות-טווח בנקודת התחילית (ימים −1 ו-0) ונקודה סופית (ימים 20 ו-21) כמפורט בסעיף 4.
- הניחו את החיה בקן חימום שצויד במטפחות נייר לאחר ההזרקה. עקבו אחר החיה באופן מתמיד עד שהחיה תשוב למצב שכיבה חזה מלא ותשקם לפעילות תנועה נורמלית.
- בדוק את העיניים תחת מיקרוסקופ סטריאוסקופי לאחר השחזרה כדי לשלול דימום תוך-עורי, עיבוי קorneה או טראומה מכנית חריפה. עקוב אחר החיות יומית כדי לאתר סימנים של דחק או זיהום מקומי.
4. שיטות אימות מודל
- הערכת שגיאת רפרקציה עינית
- הניחו חולייתנים על מזרן חימום שמתוחכם על פי תרמוסטט כדי לשמור על טמפרטורת גוף פיזיולוגית ולמנוע היווצרות של מיתול אנסטטי. שמרו על החיות תחת הרדמה קלה באיזופלוראן (1–1.5%) דרך חרוט אפו, כדי להבטיח עומק אנסטזיה עקבי.
- הזריקו טיפת עין אחת של Mydrin-P (0.5% טרופיאמיד ו-0.5% הידרוכלוריד פנילפרין) לכל עין, 10 דקות לפני הבדיקה.–15 דקות לפני המדידה כדי לעורר שלמות ציקלופלגיה ורחבון תורן.
- הצב את החיה בתנוחת שכיבה על החזה, תחת תאורה עמומה ולא ישירה. חלול תמיסת BSS סטרילית באופן מתמיד עד רגע רכישת התמונה האופטית, על מנת לשמור על שקיפות הקרנית.
- מדוד את שבירת העין באמצעות פוטורפרקטומטר אינפרא-אדום אוטומטי בטווח של 5 גרados בלבד–חלון זמן של 10 דקות לאחר עירוי הרדמה. אצל עכברים מהגזע BN, יש למשוך בזהירות את העפעפיים באופן ידני כדי לחשוף באופן מלא את התו pupils המורחבים במהלך האיסוף.
- קבלו שלוש קריאות אופטיות עצמאיות לכל עין ולחצו את הערכים כדי לקבוע את שגיאת הרפרקציה בבסיס או בנקודת הסיום.
שלב קריטי (זמן נדרש & סדרת הבדיקה): בצעו פוטורפרקטומטריה ביום 1 של סדרת ההערכה (יום –1 לבסיס; יום 20 לנקודת סיום) בהארה חלשה לפני כל הליכי מגע. ביצוע פוטורפרקטומטריה לאחר אולטרסאונד במגע או יישום ג'ל אקוסטי מפריע בצורה חמורה לאופטיקה הקרנית, מפזר אור אינפרא-אדום ומבטל קריאות רפרקטיביות אוטומטיות.
- מדידת אורך צירי באמצעות אולטראסונוגרפיית B-scan בתדר גבוה
- ביום שלאחר מכן (יום 0 לנקודת היסוד או יום 21 לנקודת הסיום), יש להעריך את אורך הציר העיני תחת הרדמה קלה באיזופלורן (1–1.5%) באמצעות prob ליניארי אולטרסוני נייד בתדר 16 MHz שכיולל למהירות הקול ברקמת גידולי עכבר (1532–1550 מטר לשנייה).
- לעכברים מקבוצת B6 (מגע קorneלי ישיר): יש להחיל שכבת הגנה בסיסית של ג'ל ג'ינפול קרבומר (0.2%) ישירות על הקרנית, ולאחר מכן שכבת ג'ל אקוסטי סטנדרטית.
הערה: יש להבטיח כי שכבת הג'ל מכסה לחלוטין את פני השטח הקרניתי מבלי ליצור בועות אוויר תחומות, אשר גורמות לדעיכת אותות אקוסטיים. - עבור עכברי BN (אינטר페이ס טרנספלפברי): הצב את החיה עם עפעפיים סגורים, חלול ג'ל אולטרסאונד על פני השטח החיצוני של העפעף, וקבל מדידות טרנספלפבריות.
הערה: מדידה טרנספלפרלית מונעת מגע ישיר עם הקרנית, ובכך מפחיתה משמעותית את הסיכון לפגיעת קרנית בעיניים גדולות של יונקים קטנים.
- לעכברים מקבוצת B6 (מגע קorneלי ישיר): יש להחיל שכבת הגנה בסיסית של ג'ל ג'ינפול קרבומר (0.2%) ישירות על הקרנית, ולאחר מכן שכבת ג'ל אקוסטי סטנדרטית.
- יישרו את גלאי האולטראסאונד ומדדו את אורך הציר לאורך ציר האופטיקה המרכזי, מהמשטח הקדמי של העין לקיר ההדף האחורי.
- השיגו עשרה עקבי רישום של סריקות-B עצמאיים לכל עין ולחשבו את אורך הציר הממוצע.
- שטפו בעדינות את הג'ל האקוסטי שנותר מהעין בעזרת BSS סטרילי מיד לאחר האיסוף, כדי למנוע חמצוץ קorneלי לאחר ההליך.
שלב קריטי (מגע ללא לחץ): הניחו את.prob של האולטראסאונד על ממשק הג'ל באמצעות מגע קל ביותר, ללא כל לחץ. כל לחץ פיזי כלפי מטה על קודקוד הקרנית מכווץ באופן מלאכותי את עומק החדר הקדמי ומביא לתקצרון מוטעה של האורך הצירי. - רשמו את אורך הציר הממוצע ומדידות השגיאת רfraction לצורך ניתוח עתידי.
- ביום שלאחר מכן (יום 0 לנקודת היסוד או יום 21 לנקודת הסיום), יש להעריך את אורך הציר העיני תחת הרדמה קלה באיזופלורן (1–1.5%) באמצעות prob ליניארי אולטרסוני נייד בתדר 16 MHz שכיולל למהירות הקול ברקמת גידולי עכבר (1532–1550 מטר לשנייה).
תוצאות
הקמה ותיקוף אנטומי של מודל הזרקה סובקונג'ונקטיבית
כדי להתמודד עם השונות הטכנית הקשורה להצמדת משקפיים אופטיים או תפירת עפעפיים, התועד החלל הסובקונג'ונקטיבי (מתחת ללחמית) בין הלחמית העפעפית (palpebral conjunctiva) ללחמית הבולבית (bulbar conjunctiva) כמאגר תרופות מקומי ממוקד (איור 1A). גישה אנטומית דרך ה-superior fornix סיפקה חשיפה עקבית של אתר המטרה תוך שמירה על שלמות פני השטח של העין (איור 1B). הקמה מוצלחת של המודל אוששה על ידי קריטריונים תפעוליים וביומטריים ספציפיים, כולל אימות מיידי באמצעות תאורה נגדית (transillumination) של שלפוחית תת-רירית מקומית ומלאה בנוזל (chemosis) מעל החלל הסובקונג'ונקטיבי העפעפתי המיועד, ללא נקב בסקלרה, דימום של הרקמה או פגיעה בבלוטות מייבומיאן (איור 1C), וכן אימות ביומטרי ארוכי טווח של התארכות צירית נלווית (Δ AL > 0.15 mm בעכברים; >0.40 mm בחולדות) המלווה בשינוי רפרקטיבי מיופי (Δ Refraction < −1.0 D) ביום 21 ביחס לבקרים שקיבלו vehicle. לעומת זאת, תוצאות לא מוצלחות או תת-אופטימליות זוהו על ידי מצבי כשל טכניים ופיזיולוגיים ספציפיים. כשל טכני — כגון רפלקס נוזלים מוקדם עם נסיגת המחט או חדירה שגויה ועמוקה לרקמת העפעף או למסלול העין — הוביל ליצירת שלפוחית מינימלית או להיעדרה, מה שגרם למשמורת פרמקולוגית לא מספקת ולכישלון בהשראת שינויים מיופיים; בעלי חיים שהפגינו דליפה מתמשכת תועדו והוצאו מהניסוי בהתאם לשלב 3.8.1 בפרוטוקול. בנוסף, סיבוכים בפני השטח של העין כתוצאה מהצבת מחט עמוקה ושגויה או משיכה מכנית מופרזת גרמו לדימום סובקונג'ונקטיבי מקומי או לטראומה קרנאלית, מה שהוסיף תגובות דלקתיות מבלבלות. תוצאות פנוטיפיות תת-אופטימליות נצפו גם במהלך הערכות תגובה למינון, שבהן מתן ריכוזים מעל הסף (למשל, 500 pg/eye בעכברים) הניב תגובה בצורת U מוחלשת עם התארכות צירית מופחתת, דבר המדגיש את הדרישה הפיזיולוגית לאופטימיזציה קפדנית של המינון. משמורת תרופה מקומית מאושרת תחת קריטריונים סטנדרטיים אלה הבטיחה דיוק גבוה במיקוד הרקמה עבור אנליזות ביומטריות ומולקולריות המשך.
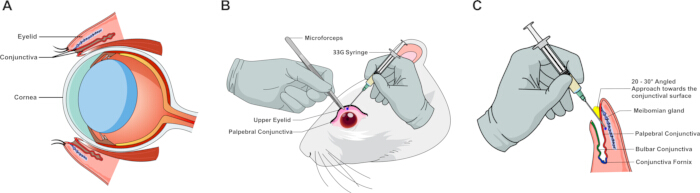
איור 1: נקודות ציון אנטומיות ואיור סכמתי של הליך הזרקה סוב-קונג'ונקטיבית (תת-לחמית) במכרסמים. (A) חתך סגיטלי של עין המכרסם המציג נקודות ציון אנטומיות עיקריות, כולל העפעף, הקרנית, שקיק הלחמית והחלל הסוב-קונג'ונקטיבי המיועד להזרקה. (B) הדגמה כירורגית של קיבוע רקמות וחשיפה של הלחמית העפעפית באמצעות מיקרו-פינצטה; הנקודה הכחולה מציינת את אתר הכניסה של המחט להזרקה מיקרוסקופית באמצעות מזרק 33-gauge. (C) סכימה בהגדלה גבוהה הממחישה את כיוון המחט ומסלול ההחדרה ביחס לפני השטח של הלחמית העפעפית, ה-conjunctival fornix והמבנים העיניים התשתיים. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
סריקה של איזופורמים של TGF-β בחולדות ותיטור תגובה למנה של TGF-β2 בעכברים עבור התארכות ציר העין
הניסויים נערכו בקבוצות ניסוייות נפרדות ועוקבות, הכוללות את קבוצות סריקת המינון (איור 2) ואת קבוצות התיקוף הראשוניות (איור 3). פרמטרים דו-צדדיים נמדדו בכל הקבוצות, כאשר חיות בודדות (N) הוגדרו כחזרה ביולוגית ראשונית. תלות בין העיניים (OD לעומת OS באותה חיה) טופלה באמצעות ANOVA דו-כיוונית למדידות חוזרות או מודלים של אפקטים מעורבים, בהתאם לצורך. נתונים רציפים מוצגים כממוצע ± SD. הבדלים בין קבוצת הביקורת לקבוצות הטיפול הוערכו באמצעות מבחני Student's t דו-זנביים, ANOVA חד-כיוונית או ANOVA דו-כיוונית למדידות חוזרות, בהתאם לצורך. ערך p < 0.05 נחשב למשמעותי מבחינה סטטיסטית.
כדי לקבוע את האיסופורם החזק ביותר של גורם גדילה ממיר-β (TGF-β) ולבסס משטר מינון אופטימלי להשראת התארכות ציר העין, הוערכו ההשפעות של הזרקות תת-לחמיות חוזרות בקבוצות של חולדות ועכברים החל מנקודת הבסיס (יום 0) ועד ליום 21 (איור 2). רישומים ביומטריים בוצעו באמצעות משטר מחולק של יומיים כדי למנוע ארטיפקטים הנגרמים מהאלחוש.
שלושה איזופורמים רקומביננטיים של TGF-β אנושי (TGF-β1, TGF-β2 ו-TGF-β3) נבדקו תחילה בקבוצת החולדות בריכוז סטנדרטי של 500 pg/eye (איור 2A). מבחן ANOVA חד-כיווני, ולאחריו השוואות מרובות post hoc, העלו כי כל שלושת האיזופורמים גרמו לגירוי משמעותי של גדילה עינית אחורית בהשוואה לקבוצת הביקורת שטופלה בנשאי הריסוס (vehicle) לאורך תקופה של 21 ימים. בעוד שגם TGF-β1 (0.442 ± 0.044 mm) וגם TGF-β3 (0.454 ± 0.049 mm) קידמו התארכות צירית משמעותית (p < 0.05 ו-p < 0.01 לעומת הביקורת שעמדה על 0.328 ± 0.071 mm, בהתאמה), TGF-β2 הוביל לעלייה הגדולה ביותר באורך הצירי (0.486 ± 0.074 mm) והפגין את המובהקות הסטטיסטית הגבוהה ביותר (p < 0.001), ובכך התבסס כמשרה היעיל ביותר של הפנוטיפ המיופי.
בהתבסס על תוצאות הסריקה בחולדות, בוצע תיטור תגובה למינון של TGF-β2 בקבוצת העכברים, תוך בדיקה של שלושה ריכוזים: 250, 375 ו-500 pg/eye (איור 2B). מתן TGF-β2 מתחת ללחמית הוביל לפרופיל תגובה למינון בצורת U הפוכה. המינון הנמוך ביותר (250 pg/eye) הניב את ההאצה המשמעותית ביותר בהתארכות האקסיילית בהשוואה לבישגרי הביקורת (0.177 ± 0.038 mm לעומת 0.044 ± 0.011 mm; p < 0.0001). במינונים גבוהים יותר (375 ו-500 pg/eye), עוצמת השינוי באורך האקסיילי פחתה בהדרגה, אם כי היא נותרה גבוהה באופן משמעותי מהביקורות (0.123 ± 0.029 mm; p < 0.001 ו-0.095 ± 0.024 mm; p < 0.01, בהתאמה).
במבט כולל, נתונים אלה קובעים כי משטר שבועי של הזרקה תת-לחמית של 500 pg/eye עבור חולדות ו-250 pg/eye עבור עכברים מהווה את הפרמטרים האופטימליים לבדיקות מבניות ומולקולריות עתידיות.
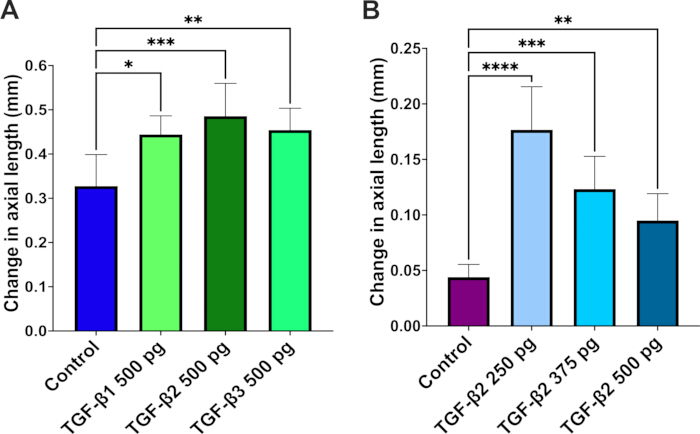
איור 2: סריקת בחירת מינון של איזופורמים וריכוזים של transforming growth factor-β (TGF-β) על אורך ציר העין בעיני חולדות ועכברים. (A) שינוי באורך ציר העין בחולדות (קוהורט סריקה ראשוני), שחושב כהפרש בין קו הבסיס (יום 0, לפני ההזרקה הראשונה) לנקודת הסיום הסופית (יום 21), לאחר שלוש הזרקות תת-לחמיות רצופות של TGF-β1, TGF-β2 או TGF-β3 (במינון 500 pg/eye שניתן בימים 0, 7 ו-14), בהשוואה לביקורות שטופלו ב-vehicle. (B) שינוי באורך ציר העין בעכברים (קוהורט סריקת מינון), שחושב כהפרש בין קו הבסיס (יום 0) ליום 21, לאחר שלוש הזרקות תת-לחמיות רצופות של TGF-β2 בשלושה ריכוזים שונים (250, 375 או 500 pg/eye שניתנו בימים 0, 7 ו-14), בהשוואה לביקורות שטופלו ב-vehicle. נתונים מוצגים כממוצע ± SD (N = 5 בעלי חיים לקבוצה, המייצגים 10 עיניים לקבוצה). מובהקות סטטיסטית הוערכה באמצעות one-way ANOVA ולאחריה השוואות מרובות post hoc; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001 לעומת קבוצת ביקורת ה-vehicle. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
הזרקות תת-לחמיות חוזרות של TGF-β2 גורמות להארכה צירית של העין ולסטיות מיופיות בחולדות ועכברים
כדי להעריך את ההשפעה הביומטרית של מתן חוזר של TGF-β2 תת-לחמיות (3 הזרקות שבועיות), נוטרו שינויים לאורכיים באורך הציר העיני ובשגיאה הרפרקטיבית מהקו הבסיסי ועד לשבוע 3 הן במודלים של חולדות והן במודלים של עכברים (איור 3). פרוטוקול הפיצול בן יומיים (בדיקת מצב רפרקטיבי ביום 20, ולאחריה אולטרסאונד מסוג B-scan ביום 21) צמצם ארטיפקטים פוטנציאליים של הרדמה ועקה עינית. שני המינים הראו שינויים פנוטיפיים העקביים עם התפתחות של מיופיה ניסויית בעקבות משטר ריבוי המנות זה.
בקוהורט החולדות, בעלי חיים שקיבלו הזרקות תת-לחמית חוזרות של 500 pg/eye TGF-β2 הראו עלייה משמעותית יותר באורך האקסיל (axial length) לאורך תקופה של 21 ימים בהשוואה לקבוצות הביקורת שקיבלו וקטור (0.466 ± 0.045 mm לעומת 0.388 ± 0.032 mm; p < 0.01; איור 3A). התארכות זו לוותה בהסתה מיופית (קוצר ראייה) משמעותית בשגיאה הרפרקטיבית (p < 0.05; איור 3B). בעוד שעיני קבוצת הביקורת הראו סחף היפרופי (רוחק ראייה) קל כמצופה (+0.31 ± 0.93 D), עיניים שטופלו ב-TGF-β2 עברו למצב רפרקטיבי מיופי (−1.38 ± 0.91 D).
בדומה לנתונים בחולדות, עכברים שטופלו ב-250 pg/eye של TGF-β2 הפגינו גם הם שינויים מבניים ורפרקטיביים מובחנים. התארכות ציר העין הייתה מוגברת באופן משמעותי בעכברים שטופלו ב-TGF-β2 בהשוואה לקבוצות הביקורת שקיבלו את חומר הנשא (0.197 ± 0.012 mm לעומת 0.110 ± 0.014 mm; p < 0.0001; איור 3C). יתרה מכך, התארכות מבנית זו הובילה לסטייה מיופית משמעותית (p < 0.05; איור 3D), שהפכה באופן יעיל את הרפרקציה ההיפרופית הטבעית שנצפתה בעכברי הביקורת (+2.25 ± 1.77 D) לפרופיל מיופי (−1.58 ± 0.63 D).
כדי לוודא סימטריה בתגובה בין העיניים ולאשר שאיחוד של מדידות עיניות דו-צדדיות אינו יוצר הטיה סטטיסטית, נבחנו דינמיקות של התארכות צירית בנפרד עבור העין השמאלית (OS, n = 5) והעין הימנית (OD, n = 5) בכל קבוצה (Supplementary Figure 1). הן בחולדות (Supplementary Figure 1A) והן בעכברים (Supplementary Figure 1B), לא נצפתה הבדלה מובהקת סטטיסטית בין עיני OS ל-OD הן בקבוצות הביקורת שקיבלו vehicle והן בקבוצות שטופלו ב-TGF-β2, מה שמאשר דינמיקת תגובה סימטרית בין העיניים. יתרה מכך, הן עיני OS והן עיני OD בבעלי חיים שטופלו ב-TGF-β2 הראו התארכות צירית עקבית ועוצמתית ביחס לביקורות ה-vehicle התואמות להן (p < 0.05 עבור חולדות; p < 0.0001 עבור עכברים), דבר התומך בתקפות השקלול של מדידות דו-צדדיות בניתוח הביומטרי הראשי.
בסיכום, ממצאים אלו מדגימים כי מתן חוזר של TGF-β2 תת-לחלביונית מניע ביעילות צמיחה אחורית של העין ושינוי רפרקטיבי מיופי תואם בשני מודלי המכרסמים (איור 3 ואיור משלים 1).
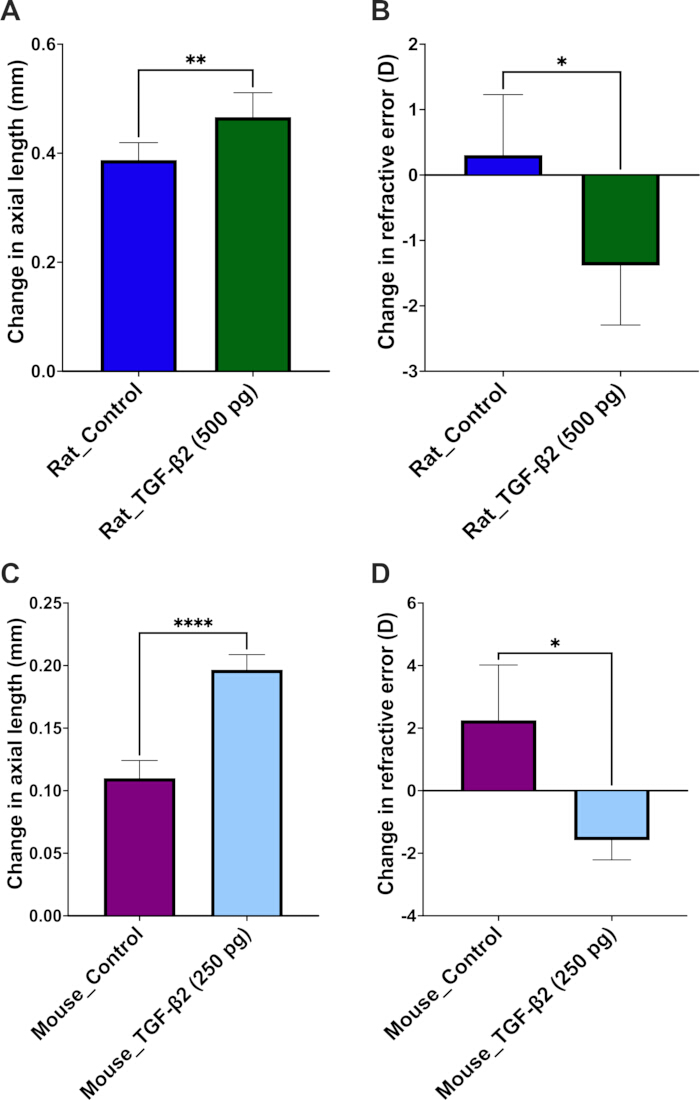
איור 3: תיקוף ראשוני של TGF-β2 השפעות על התארכות צירית ועל שגיאה רפרקטיבית בקבוצות נבדקים נפרדות של חולדות ועכברים. (Aשינוי באורך הציר בעכברים, שחושב כהפרש בין מצב הבסיס לנקודת הסיום הסופית בשבוע 3 בעיניים שקיבלו TGF- תת-לחמיהβ2 (500 pg לעין שניתנו באופן רצפי בימים 0, 7 ו-14) או ביקורת vehicle. (Bשינוי בשגיאת השבירה באותן עיני חולדה, המעיד על הסטה מיופית משמעותית בקבוצת ה-TGF-βהקבוצה שטופלה ב-2 בהשוואה לקבוצת הביקורת שקיבלה את חומר הנשאי (vehicle). (C) שינוי באורך הציר בעכברים (קוהורט אימות ראשוני בלתי תלוי), שחושב כהפרש בין נקודת הבסיס לנקודת הסיום בשבוע 3 בעיניים שקיבלו TGF- תת-לחמיתיβ2 (250 pg לעין שניתנו בימים 0, 7 ו-14) או ביקורת נשאי (vehicle control). (Dשינוי בשגיאת השבירה באותן עיני עכבר, המגלה תזוזה דיופטרית שלילית תואמת תחת תנאי TGF- אופטימלייםβ2 השראה. הנתונים מוצגים כממוצע ± סטיות תקן (N = 5 בעלי חיים לקבוצה, המייצגים 10 עיניים לקבוצה). מובהקות סטטיסטית הוערכה בקפידה באמצעות מבחן t לשני זנבות למדגמים לא מזווגים ת-בדיקות; *p < 0.05, **p < 0.01, ****p < 0.0001 לעומת קבוצת ביקורת הנשאי (vehicle control) התואמת. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
מתן TGF-β2 תת-לחמית מעלה את ביטוי ה-MMP2 בסקלרה במהלך התקדמות של מיופיה ניסויית
כדי להעריך את עיצוב הת 조직 המשני לאורך הציר הרטינו-סקלרלי, נבחן ביטוי של matrix metalloproteinase 2 (MMP2) בחתכי סקלרה לאחר מתן תת-לחמי של TGF-β2 (איור 4). ניתוח אימונופלואורסצנציה כמותי של חתכי עיניים אחוריים במודל של חולדה הדגים עלייה משמעותית ברמות חלבון MMP2 בתוך הסטרומה של הסקלרה בעיניים שטופלו ב-TGF-β2 (500 pg/eye) ביום 21 בהשוואה לבקרי vehicle (p < 0.0001; איור 4A, B).
אות פלואורסצנציה בולט של MMP2 איתר לאורך כל המטריקס של הלובנה (scleral matrix) שמתחת לאפית הרשת (RPE) ושכבות הכוריואיד, מה שמאשר שחלו שינויים במטריקס התאי (ECM) הקשורה ל-MMP2 במעטפת העין החיצונית במהלך התפתחות מיופיה ניסיונית. שינויים מבניים אלו בלובנה הובילו לבדיקה מעמיקה יותר של שינויים מולקולריים במעלה הזרימה ברשת הסמוכה.
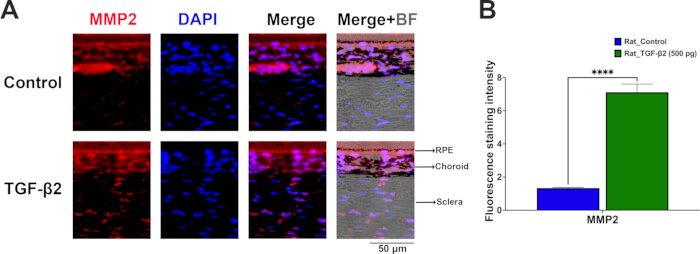
איור 4: מתן TGF-β2 תת-לחמיעתי מעלה את ביטוי MMP2 בסקלרה של חולדה. (A) תמונות מייצגות של אימונופלואורסנציה בחתכים רוחביים של החלק האחורי של העין המראות ביטוי MMP2 בסקלרה (באדום) בחולדות קבוצת ביקורת (vehicle) וחולדות שטופלו ב-TGF-β2 (500 pg/eye) ביום 21. גרעיני התאים נצבעו עם DAPI (בכחול). שכבת רקע בשדה בהיר (Merge+BF) ממסגרת את הגבולות האנטומיים של ה-RPE, הכורואיד והסקלרה. סרגל קנה מידה = 50 µm. (B) ניתוח כמותי של עוצמת הצביעה הפלואורסצנטית המאשר עלייה משמעותית בביטוי MMP2 בסקלרה בעיניהם של חולדות שטופלו ב-TGF-β2. הנתונים מוצגים כממוצע ± SD (N = 3 חזרות ביולוגיות עצמאיות לכל קבוצה, עין אחת לכל חיה). מובהקות סטטיסטית הוערכה באמצעות unpaired two-tailed t-test; ****p < 0.0001 לעומת קבוצת הביקורת. קיצורים: RPE, retinal pigment epithelium; BF, brightfield. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
השראת TGF-β2 מעלה את הביטוי של MMP2 וחלבונים הקשורים לאינפלאמסום ברשתית של חולדה ועכבר
כדי לחקור את השינויים המולקולריים במורד המסלול המושרים על ידי הזרקות תת-לחמיות חוזרות, בוצעו צביעות אימונופלואורסצנציה של חתכים עיניים אחוריים מחולדות Brown Norway ומעכברי C57BL/6 ביום 21 (איור 5A–D). כל ההערכות בוצעו על חתכים סגיטליים של הרשתית, אשר יושרו באופן קפדני לראש עצב הראייה כדי להבטיח אוריינטציה מרחבית עקבית. ניתוח כמותי העלה כי מתן שבועי של TGF-β2 שינה באופן משמעותי פרופילי ביטוי של חלבונים ספציפיים לאורך שכבות הרשתית בשני המינים בהשוואה לבקרי veículo (איור 5E,F).
במודל החולדה, מתן של 500 pg/eye של TGF-β2 הוביל לעלייה מובהקת ברמות ה-TGF-β2 ברשתית (p < 0.0001; איור 5A,E). השמיעוץ (upregulation) הזה לווה בביטוי מוגבר של matrix metalloproteinase 2 (MMP2) (p < 0.0001; איור 5B,E), המעיד על רהמודילינג פעיל של המטריקס החוץ-תאי. יתר מכך, טיפול ב-TGF-β2 הפעיל את קסקדת הדלקת ברשתית, כפי שעולה מהשמיעוץ של חיישן האינפלאמזום NLRP3 (p < 0.0001; איור 5C,E) ושל הציטוקין הפרו-דלקתי IL-1β (p < 0.0001; איור 5D,E).
באופן דומה, עכברים שטופלו ב-250 pg/eye של TGF-β2 הראו מגמות עלייה עקביות בסמנים ביולוגיים אלו (איור 5F). ביטויי ה-TGF-β2 (p < 0.01; איור 5A,F) וה-MMP2 (p < 0.001; איור 5B,F) ברשתית היו מוגברים באופן משמעותי. נתיב האינפלאמסום הופעל גם הוא ברשתית העכבר, עם עליות משמעותיות בביטוי של NLRP3 (p < 0.01; איור 5C,F) ועלייה מובהקת בביטוי של IL-1β (p < 0.0001; איור 5D,F) בהשוואה לרמות בסיס שאינן ניתנות לגילוי כמעט לחלוטין בקבוצת הביקורת.
במבט כולל, ממצאים אלו מדגימים כי מתן תת-לחמיה (subconjunctival) של TGF-β2 מקדם גורמי רה-ארגון של המטריקס המתווכים על ידי MMP2 ברשתית, ומפעיל את נתיב האינפלאסום NLRP3/IL-1β ברשתית האחורית של שני מיני המכרסמים.
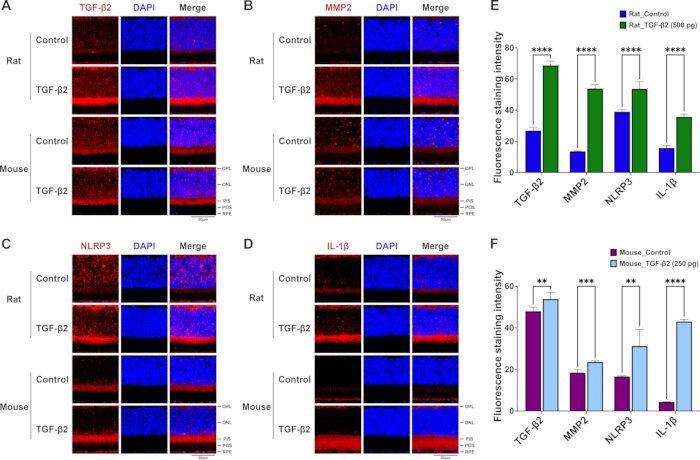
איור 5הזרקות חוזרות של TGF-β תת-לחמיתβמתן 2 מעלה את הביטוי של MMP2 וחלבונים הקשורים לאינפלאמסום ברשתית האחורית של חולדות ועכברים. (א–דתמונות אימונופלורסצנציה מייצגות של חתכים סיגיטליים של הרשתית מקבוצת הביקורת ומקבוצת TGF-βקבוצות מטופלות ב-2 בחולדות (פאנלים עליונים) ובעכברים (פאנלים תחתונים), שצבעו עבור (A-TGF (גורם גדילה טרנספורמטיבי)β2, (B) MMP2, (פחמן) NLRP3, ו(ד') IL-1β (אדום), כאשר הגרעינים נצבעו בצביעה נגדית באמצעות DAPI (כחול). סרגל קנה מידה = 50 µmהשדות המייצגים מציגים באופן סלקטיבי את השינויים בשכבות הרשתית החיצוניות, ומדגישים ביטוי חלבוני בולט הנמתח משכבת הפלקספורם החיצונית (OPL) ועד למכלול אפיתל הרשתית הפיגמנטי (RPE) הבזאלי.הכימות של עוצמת צביעה פלואורסצנטית עבור TGF-β2, MMP2, NLRP3, ו-IL-1β ברטינות של חולדות מקבוצת הביקורת וב-TGF-βקבוצה שטופלה ב-2 (500 pg). (Fכימות עתי של עוצמת צביעה פלואורסצנטית עבור TGF-β2, MMP2, NLRP3, ו-IL-1β ברשתיות של עכברים מקבוצת הביקורת ומקבוצת ה-TGF-βקבוצה שטופלה ב-2 (250 pg). הנתונים מוצגים כממוצע ± SD (N = 3 חזרות ביולוגיות עצמאיות לקבוצה, עין אחת לכל בעל חיים). מובהקות סטטיסטית הוערכה בקפידה באמצעות מבחן t לשני זנבות לא מזווגים t-בדיקות; **p < 0.01, ***p < 0.001, ****p < 0.0001 לעומת קבוצת ביקורת הנשאי (vehicle-control) המתאימה. קיצורים: OPL, השכבה הפלקסיפורמית החיצונית; ONL, השכבה הגרעינית החיצונית; PIS, המקטעים הפנימיים של הפוטורספטורים; POS, המקטעים החיצוניים של הפוטורספטורים; RPE, אפיתל הרשתית הפיגמנטי. אנא לחץ כאן להצגת גרסה מוגדלת של איור זה.
איור משלים 1: סימטריה בין-עינית והערכה של איחוד נתונים בילטרלי לאחר מתן TGF-β2 תת-לחמיה. (A) ניתוח השוואתי של שינויים באורך האקסיאלי בין עיניים שמאליות (OS, n = 5) ועיניים ימניות (OD, n = 5) בחולדות שקיבלו בקרת vehicle או TGF-β2 בילטרלי תת-לחמיות (500 pg/eye). (B) השוואה בין-עינית תואמת בין עיניים שמאליות (OS, n = 5) ועיניים ימניות (OD, n = 5) בעכברים תחת בקרת vehicle או טיפול בילטרלי ב-TGF-β2 (250 pg/eye). בדיקות סטטיסטיות אישרו כי אין הבדל מובהק בין עיניים OS ו-OD בתוך אותה קבוצת טיפול, מה שמעיד על כך שאיחוד מדידות בילטרלי אינו יוצר הטיה בין-עינית. במקביל, הן עיניים OS והן עיניים OD בבעלי חיים שטופלו ב-TGF-β2 הראו התארכות אקסיאלית מובהקת ביחס לבקרי ה-vehicle המתאימים. הנתונים מוצגים כממוצע ± SD (N = 5 בעלי חיים לקבוצה, המייצגים 5 עיניים OS ו-5 עיניים OD לקבוצה). מובהות סטטיסטית הערכה באמצעות two-way repeated-measures ANOVA ולאחריה Sidak’s post hoc test; *p < 0.05, ****p < 0.0001 מול בקרת ה-vehicle התואמת. קיצורים: OS, oculus sinister (עין שמאלית); OD, oculus dexter (עין ימנית). אנא לחץ כאן להורדת הקובץ.
איור משלים 2: הערכת בטיחות של השלמות המבנית של הרשתית והתפקוד האלקטרופיזיולוגי לאחר מתן TGF-β2 תת-לחמיתי. (A) חתכים שגוריים מייצגים של הרשתית שנצבעו בהמטוקסילין ואאוזין (H&E) מעכברי בקרה ומעכברים שטופלו ב-TGF-β2 (במינון של 250 pg/eye) ומחולדות שטופלו ב-TGF-β2 (במינון של 500 pg/eye) ביום ה-21, המדגימים שימור של ארכיטקטורת שכבות הרשתית בין המינים (N = 3 חזרות ביולוגיות עצמאיות לכל קבוצה). סרגי קנה מידה = 20 µm. (B) גלי אלקטרו-רטינוגרפיה (ERG) סקוטופיים מייצגים שהוקלטו מעכברים ביום ה-21, בהשוואה בין עיני בקרה שקיבלו vehicle (קו אפור) לעיניים שטופלו ב-TGF-β2 (קו אדום). דינמיקת תגובה דומה של גלי a ו-b מאשרת שימור של התגובה לאור ברשתית ובטיחות אלקטרופיזיולוגית (N = 3 עכברים לקבוצה, המייצגים 6 עיניים לקבוצה). קיצורים: GCL, שכבת תאי הגנגליון; INL, השכבה הגרעינית הפנימית; ONL, השכבה הגרעינית החיצונית. אנא לחץ כאן להורדת קובץ זה.
דיון
A notable finding in the study is the non-linear, inverted U-shaped dose-response profile elicited by TGF-β2 in the mouse cohort, where the lowest administered dose (250 pg/eye) induced the most prominent axial elongation (Figure 2B). This biphasic phenomenon is characteristic of many potent cytokine signaling pathways, including the TGF-β superfamily29,30. Excessively high concentrations of exogenous TGF-β2 may lead to receptor saturation or trigger intracellular negative feedback loops—such as the upregulation of inhibitory SMAD family member 7 (Smad7) or receptor-mediated endocytosis—thereby attenuating downstream biological responses31,32. The immunofluorescence data further support this pharmacological window; while the 250 pg dose in mice (and 500 pg in rats) resulted in a moderate elevation in retinal TGF-β2 retention, it simultaneously triggered a robust downstream inflammatory cascade (Figure 5F). This suggests that the optimized low-dose threshold resides within a highly sensitive physiological window, maximizing targeted tissue efficacy while avoiding ligand-induced desensitization or localized suppression33. Therefore, these findings highlight the necessity of rigorous dose titration when establishing reproducible rodent models of chemical-induced myopia.
Compared with traditional form-deprivation myopia (FDM) or hyperopic defocus lens-induced myopia (LIM) models—which require customized hardware and are prone to lens displacement, grooming-induced detachment, and corneal complications—the subconjunctival protocol offers direct pharmacological control and minimal equipment costs13,34. Consistent with prior work showing that periocular delivery modulates scleral and retinal TGF-β signaling35, these data demonstrate posterior-segment biological responses following anterior subconjunctival TGF-β2 administration (Figure 4 and Figure 5). This efficient posterior targeting is attributed to the unique ocular scale and fluid dynamics of small rodents. Given the compact axial length of rodent eyes (~3 mm in mice and ~6 mm in rats), subconjunctival administration bathes a relatively large proportion of the episcleral plane. Driven by high transscleral permeability and the anatomical continuity of the sub-Tenon space, the injected formulation may diffuse across the sclera and choroid toward the posterior pole. Crucially, this route is associated with biological effects in posterior ocular tissues while avoiding the severe risks of globe perforation and optic nerve injury inherent to deep posterior sub-Tenon or intravitreal injections in small rodents. This approach avoids the mechanical and behavioral confounds of head-mounted lenses13,36, as well as the well-documented risks of retinal detachment and endophthalmitis associated with intravitreal injection37,38. Furthermore, partitioning the biometric measurements into two brief sessions improves upon conventional single-session paradigms. Prolonged anesthetic exposure frequently causes ocular disruptions—such as anesthetic cataracts in mice and spontaneous palpebral closure in rats—which compromise the accuracy of refractive and axial measurements39,40. By separating the refractive error (Days –1 and 20) and axial length (Days 0 and 21) assessments, the protocol is designed to minimize potential cumulative ocular stress and maintain consistent imaging conditions, which may help mitigate intra-experimental variability. To further eliminate potential confounding variables arising from systemic cross-contamination—such as systemic vascular absorption or lymphatic transport affecting non-target tissue—as well as contralateral sympathetic responses, a strictly between-subject design was implemented. By administering bilateral vehicle control or bilateral active rhTGF-β2 within individual animals, this paradigm prevents interocular contamination while ensuring robust pharmacological evaluation. Consistently, separate biometric analyses of the paired left and right eyes confirmed high inter-ocular symmetry, validating that bilateral data pooling did not introduce statistical or physiological bias across treatment cohorts (Supplementary Figure 1).
This rodent model effectively recapitulates the TGF-β2–driven inflammatory and matrix-remodeling axis previously established in studies by the authors in tree shrews and Brown Norway rats21,41. Previous investigations by the authors showed that exogenous TGF-β or TGF-β2 amplified intraocular inflammation—specifically via NF-κB and IL-1β activation—while upregulating MMP2 expression, depleting scleral collagen I, and driving axial elongation42,43. Conversely, dampening complement and inflammasome activity via complement decay-accelerating factor (CD55) suppressed both localized inflammation and myopia progression41,44. Similar chronic inflammatory signatures, marked by elevated MMP2 activation and subsequent collagen I loss, are also evident in classical form-deprivation models and in patients with pathological high myopia42,43,45,46. Importantly, rather than functioning as an isolated or universal primary inducer operating uniformly across all tissues, TGF-β (specifically the TGF-β2 isoform) acts as a context-dependent signaling bridge. It links early-stage retinal/RPE inflammatory signaling—specifically via NLRP3 inflammasome and complement activation—to downstream scleral extracellular matrix (ECM) execution21,41. Recognizing this spatiotemporal transition resolves apparent literature inconsistencies regarding TGF-β expression, as its dynamics shift between early local inflammatory amplification in the retina/RPE and late MMP-mediated matrix degradation in the sclera47,48. Specifically, while the structural execution of scleral ECM degradation ultimately dictates physical eye elongation (Figure 4), the molecular findings highlight the outer retina and RPE as the primary upstream signaling origin (Figure 5). Here, while the present study exclusively utilized quantitative immunofluorescence (IF) to map the in situ spatial distribution and laminar upregulation of these markers, the overall gene and protein dynamics (via RT-qPCR and Western blot, respectively) of this retinal phosphorylated nuclear factor kappa B (p-NF-κB)/IL-1β/tumor necrosis factor-alpha (TNF-α)/NLRP3 cascade under identical TGF-β2 induction paradigms have been independently established in the previous studies by the authors46,49. Subconjunctival TGF-β2 activates the NLRP3/IL-1β–MMP2 cascade within the retina/RPE, which propagates across the retino-choroidal-scleral axis to drive downstream scleral MMP2 expression and matrix remodeling. These parallels strongly support the central role of low-grade inflammation and MMP-mediated remodeling of the scleral extracellular matrix (ECM) in accelerated eye growth.
Despite these procedural advantages, several limitations of the present protocol warrant consideration. First, as a purely pharmacological model driven by exogenous cytokine delivery, this approach bypasses the optical defocus and retina-to-sclera light signal transduction pathways characteristic of traditional form-deprivation myopia (FDM) or lens-induced myopia (LIM) models16,50. Consequently, while highly suitable for targeting downstream biochemical cascades—specifically the inflammatory-MMP2 remodeling axis—it is complementary to, rather than a replacement for, models investigating upstream visual processing or optical manipulations51. Second, although subconjunctival injection avoids systemic toxicity and intravitreal risks, the requirement for repeated micro-injections (once weekly for 3 weeks) introduces transient localized mechanical perturbation and brief anesthesia exposure, which could subtly influence ocular surface homeostasis if not rigorously executed38,52. Achieving reproducible induction of experimental myopia via this route relies heavily on precise technical execution during subconjunctival delivery. The primary technical determinant of success is the correct shallow bevel insertion beneath the palpebral conjunctiva to establish a localized, well-circumscribed submucosal bleb (chemosis). Verification via immediate transillumination ensures that fluid remains within the tissue plane, preventing inadvertent scleral perforation, deep orbital extravasation, or microvascular laceration. To prevent post-injection fluid reflux or active leakage—a common failure mode that compromises effective pharmacological dosing—the micro-needle should be held in situ for 5 s post-delivery before slow, steady withdrawal under visual control. In cases where immediate reflux, insufficient bleb height, or inadvertent tissue hemorrhage occurs upon withdrawal, animals should be documented and excluded according to pre-specified criteria to avoid confounding variability. Adherence to these strict technical benchmarks guarantees high-fidelity, targeted posterior drug retention while minimizing ocular surface trauma. Furthermore, while the absolute refractive status (e.g., -1.58 D in mice and -1.38 D in rats) in rodent models may appear modest relative to their high baseline dioptric power, the net myopic shifts relative to vehicle controls are substantial (+3.83 D in mice and +1.69 D in rats; both p < 0.05) and strictly concordant with structural axial elongation and downstream scleral MMP2 upregulation across both species. Importantly, safety and physiological tolerability evaluations confirmed the non-cytotoxic nature of this low-dose subconjunctival administration paradigm. Histological cross-sections (H&E) revealed well-preserved retinal layer architecture across both mice and rats, while scotopic electroretinography (ERG) at Day 21 demonstrated intact a-wave and b-wave responses without implicit time delays or amplitude depression (Supplementary Figure 2), confirming that localized TGF-β2 delivery induces targeted axial elongation without causing structural retinopathy or electrophysiological impairment. Third, the endpoint evaluations at Week 3 capture acute-to-subacute inflammatory responses and matrix remodeling; long-term studies are needed to determine whether these phenotypic changes persist post-treatment or exhibit recovery dynamics following washout41,53. Finally, while direct pharmacokinetic and ocular tissue penetration analyses of exogenous TGF-β2 were beyond the scope of this model validation study, the robust and consistent biometric shifts (axial elongation and refractive error change), alongside the specific retinal/RPE molecular activations established in the previous studies by authors46,49, support effective biological action in posterior ocular structures. Future studies incorporating further protein expression profiling (e.g., Western blotting), RT-qPCR, or fluorescently tagged TGF-β2 tracking will further clarify its precise tissue distribution and clearance kinetics. Recognizing these boundaries will guide researchers in selecting this model for appropriate therapeutic screening and mechanistic validation.
By demonstrating that subconjunctival TGF-β2 activates the NLRP3/IL-1β–MMP2 axis within the outer retina and retinal pigment epithelium (RPE) of both Brown Norway rats and C57BL/6 mice, the protocol provides a pharmacologically defined framework that validates these inflammatory and matrix-remodeling pathways across rodent species. Consequently, the TGF-β2–induced model serves as a reliable platform for standardizing the induction of axial elongation, dissecting retino-scleral signaling cascades, and screening preclinical interventions targeting TGF-β2, complement components, the inflammasome, or MMP2.
גילויים
למחברים אין גילויים או ניגודי עניינים להצהיר עליהם הרלוונטיים למחקר זה. כלי שפה מבוססי בינה מלאכותית שימשו אך ורק לעריכת דקדוק ושיפור תחביר השפה האנגלית במהלך הכנת כתב היד. לא נעשה שימוש בכלי בינה מלאכותית גנרטיביים באיסוף נתונים, עיבוד תמונות, ניתוח כמותי או בניית איורים.
תודות
הניסויים והניתוח של הנתונים בוצעו חלקית באמצעות מתקני הליבה לחקר רפואי, מكتب המחקר & פיתוח, באוניברסיטת הרפואה של סין, טאיצ'ונג, טאיוואן, ר.ס.ח. המחברים מודים בלב שלם למרכז הלאומי לדגמי חיים (NCB, NIAR, טאיוואן) ול-BioLASCO Taiwan Co., Ltd. על התמיכה הטכנית יוצאת הדופן בשירותי רבייה לפי חוזה ו Bezok animal. בנוסף, המבנה הסכמתי וההליכים המיקרו-جراתיים המופיעים באיור 1 תוכננו ונבנו באופן מותאם אישית באמצעות נכסים וקטוריים באיכות גבוהה מ-Mind the Graph (mindthegraph.com, רישיון פרימיום) והורכבו ועוצבו באופן מקצועי באמצעות Affinity Designer (Serif Europe Ltd.). מימון המחקר ניתן חלקית על ידי המועצה הלאומית למדע וטכנולוגיה, טאיוואן, ר.ס.ח. (NSTC-112-2314-B-039-029; 115-2320-B-039-056), בית החולים באוניברסיטת הרפואה של סין, טאיצ'ונג, טאיוואן (DMR-114-091; DMR-115-117), ואוניברסיטת הרפואה של סין, טאיצ'ונג, טאיוואן (CMU114-MF-78; CMU-114-ASIA-10). לממנים לא הייתה כל עמדה בעיצוב המחקר, איסוף וניתוח הנתונים, החלטה לפרסום או בהכנה של המנוקד. לספונסר או לארגון המממן לא הייתה כל עמדה בעיצוב או בإجر של מחקר זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| פוטורפרקטור אינפרא-אדום אוטומטי | StriaTech GmbH (Tüבינגן, גרמניה) | ST-PR.01 | עם הגדרות קבועות (presets) ספציפיות לממיני עכברים/חולדות |
| תמיסת מלחים מאוזנת (BSS) | Alcon Laboratories, Inc. (Fort Worth, USA) | לא רלוונטי | תמיסת שטיפה תוך-עינית סטרילית |
| אלבומין מסרום בקר (BSA) | Sigma-Aldrich (St. Louis, USA) | A3059 | אבקה ליופיליזית, 0.1% שבר נפחי (fraction V) |
| חולדות בראון נורווגיה (BN) | BioLASCO Taiwan Co., Ltd. ו/או המרכז הלאומי למודלים ביולוגיים (National Center for Biomodels) | חולדות נורווגיות חומות (Brown Norway Rats) | |
| עכברי C57BL/6 (B6) | BioLASCO Taiwan Co., Ltd. ו-ו/או המרכז הלאומי למודלים ביולוגיים (National Center for Biomodels) | מרכז בנק הביולוגי הלאומי (NCB) פירוט בעלי חיים סוג בעל החיים: עכבר (Mouse) זן: C57BL/6 מקור: Japan SLC מאפיינים: - צבע פרווה: שחור - תכונות: זן שגור למטרות מחקר, בעל תגובה חיסונית חזקה, נפוץ במחקרי סרטן, נוירולוגיה ומחלות מטבוליות. מטרת השימוש: משמש כדגם בסיס למחקרים ביו-רפואיים, להקמת דגמי מחלות, ולהעברת גנים. הנחיות לאספקה: 1. הגשת בקשה באמצעות המערכת המקוונת של NCB. 2. אישור של ועדת אתיקה לניסויים בבעלי חיים (IACUC). 3. תיאום מועד השהייה וההובלה. תנאי גידול: - טמפרטורה: 23±2°C - לחות: 50%±10% - מחזור תאורה: 12 שעות אור / 12 שעות חושך - מזון ומים: מזון סטנדרטי למעבדה ומים מזוקקים בגישה חופשית.&nid=3&עמוד=0&סוג=1 | |
| תמיסת DAPI (1 מ"ג/מ"ל) | Thermo Scientific (Thermo Fisher Scientific, Waltham, USA) | 62248 | נעשה שימוש בדילול עבודה של 1:500 עבור אימונופלואורסצנציה. |
| אתנול מוחלט (≥99.5%) | J.T.Baker (Avantor Performance Materials, Radnor, USA) | לא רלוונטי | בדרגת ריאגנט, 75% לשטיפה, 20%–100% להתייבשות |
| מאיר Fiber-Lite (150W, צוואר גמיש כפול) | Stoelting Co. (Wood Dale, USA) | לא רלוונטי | מקור אור בעוצמה גבוהה |
| מיקרו-פינצטה בעלת קצה דק | Stephens Instruments (Lexington, USA) | S5-1375 | ישר, משונן, עם פין מנחה |
| ג'ל עיני Ginpol | Winston Medical Supply Co., Ltd. (טאינאן, טייוואן) | מכיוון שלא סופק טקסט למקור, אין תוכן לתרגום. אנא ספק את הטקסט באנגלית שברצונך לתרגם לעברית. | קרבומר 0.2%, הגנה על הקרנית |
| גליצרין (ביולוגיה מולקולרית, ≥99.0%) | Sigma-Aldrich (St. Louis, USA) | G5516 | בדרגת ריאגנט, מטריצה פעילה בריכוז 50% |
| נוגדן משני עיז שנגד IgG של ארנב (H+L), Alexa Fluor Plus 555 | Invitrogen (Thermo Fisher Scientific, Waltham, USA) | A32732 | בשימוש בדילול עבודה של 1:800 עבור אימונופלואורסצנציה. |
| מערכת אלקטרו-רטינוגרם ניידת לרב-מינים (HMSERG) | OcuScience (הנדרסון, ארה"ב) | דגם 2000 (HMsERG-2000), מערכת ERG של פלאש בשדה מלא למכרסמים עם תוכנת ERGView. | |
| הארטמן′מקבע Davidson (Davidson's Fixative) | Sigma-Aldrich (סנט לואיס, ארה"ב) | H0290 | תערובת קיבוע מהירה לגאומטריה עינית |
| מתמר אולטרסאונד בתדר גבוה | ASUSTeK Computer Inc. (טייפה, טייוואן) | LU710LH | נייד, תדר של 16 MHz |
| מחט למיקרו-הזרקה (33-G) | Hamilton Company (Reno, USA) | 7803-05 | סגנון חוד 4, זווית שיפוע רדודה |
| מזרק למיקרו-הזרקה (10 µL) | Hamilton Company (Reno, USA) | 80014 (#1701) | מזרק מיקרו-ליטר אטום לגזים |
| תמיסה עינית Mydrin-P | Santen Pharmaceutical Co., Ltd. (אוסקה, יפן) | לא רלוונטי | 0.5% טרופיקמיד / 0.5% פנילפרין |
| סרום עיזים נורמלי | Jackson ImmunoResearch Laboratories, Inc. (West Grove, USA) | 005-000-121 | משמש כתמיסת חסימה בריכוז של 10% עבור אימונופלואורסצנציה. |
| תוכנה לרכישת נתונים מפוטורפרקטור (Photorefractor) | StriaTech GmbH (Tüבינגן, גרמניה) | לא רלוונטי | עיבוד אוטומטי של שווה-כדור ממוצע (Mean Spherical Equivalent) |
| נוגדן מונוקלונלי ארנב נגד IL1 beta (HL1421) | GeneTex, Inc. (Irvine, USA) | GTX636887 | נעשה בו שימוש בדילול עבודה של 1:500 עבור אימונופלואורסצנציה. |
| נוגדן פוליקלונלי ארנב נגד MMP2 | GeneTex, Inc. (Irvine, USA) | GTX104577 | נעשה בו שימוש בדילול עבודה של 1:500 עבור אימונופלואורסצנציה. |
| נוגדן פוליקלונלי של ארנב נגד NLRP3 | Abcam (Cambridge, UK) | ab214185 | בשימוש בדילול עבודה של 1:400 עבור אימונופלואורסצנציה. |
| נוגדן פוליקלונלי ארנב נגד TGF-beta 2 | AbboMax, Inc. (סן חוזה, ארה"ב) | 500-3784 | נעשה בו שימוש בדילול עבודה של 1:250 עבור אימונופלואורסצנציה. |
| TGF- אנושי רקומביננטיβ1 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-21 | אבקה ליאופיליזית, בדרגת טוהר גבוהה |
| TGF- recombinant humanβ2 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-35 | אבקה ליופיליזית, בדרגת טוהר גבוהה |
| TGF-ב אנושי רקומביננטיβ3 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-36 | אבקה ליופיליזית, בדרגת טוהר גבוהה |
| ג'ל אולטרסאונד סטרילי Aquasonic 100 | Parker Laboratories, Inc. (פיירפילד, ארה"ב) | לא רלוונטי | מטריצת צימוד אקוסטית סטנדרטית |
| תוכנה לדימות באולטרסאונד | ASUSTeK Computer Inc. (טייפה, טייוואן) | לא רלוונטי | להדמיה חיה ב-B-scan ולמדידות בעזרת קליפרים |
מקורות
- Holden BA, et al. Myopia: a growing global problem with sight-threatening complications. Community eye health. 2015;28(90):35.
- Holden BA, et al. Global prevalence of myopia and high myopia and temporal trends from 2000 through 2050. Ophthalmology. 2016;123(5):1036-42.
- McMonnies CW. An examination of the relation between intraocular pressure, fundal stretching, and myopic pathology. Clinical and Experimental Optometry. 2016;99(2):113-9.
- Fledelius HC. Myopia and significant visual impairment: global aspects [Presentation]. Presented at: 7th International Conference on Myopia; Taipei, Taiwan; 1998.
- Park SC, Liebmann JM, Ritch R. Glaucoma in myopia. Pathologic Myopia: Springer; 2013. p. 283-92.
- Gale J, Ikuno Y. Ii. B. Myopic Vitreopathy. Vitreous: In Health and Disease: Springer; 2014. p. 113-29.
- Saw SM, Gazzard G, Shih-Yen EC, Chua WH. Myopia and associated pathological complications. Ophthalmic and Physiological Optics. 2005;25(5):381-91.
- Tkatchenko TV, Shen Y, Tkatchenko AV. Mouse Experimental Myopia Has Features of Primate Myopia. Investigative Ophthalmology & Visual Science. 2010;51(3):1297-303.
- Morgan IG, Ashby RS, Nickla DL. Form deprivation and lens-induced myopia: are they different? Ophthalmic Physiol Opt. 2013;33(3):355-61.
- Barathi VA, Boopathi VG, Yap EP, Beuerman RW. Two models of experimental myopia in the mouse. Vision Res. 2008;48(7):904-16.
- Zhao HL, Wang RQ, Wu MQ, Jiang J. Dynamic changes of ocular biometric parameters: a modified form-deprivation myopia model of young guinea pigs. Int J Ophthalmol. 2011;4(5):484-8.
- Wu XH, et al. Unaltered retinal dopamine levels in a C57BL/6 mouse model of form-deprivation myopia. Invest Ophthalmol Vis Sci. 2015;56(2):967-77.
- Faulkner AE, Kim MK, Iuvone PM, Pardue MT. Head-mounted goggles for murine form deprivation myopia. J Neurosci Methods. 2007;161(1):96-100.
- Wang Y, Zhang Y, Tian N. Cause and Management of Suture-related Ocular Complications after Buried-suture Double-eyelid Blepharoplasty. J Plast Reconstr Aesthet Surg. 2021;74(12):3431-6.
- Pang K, Lennikov A, Yang M. Hypoxia adaptation in the cornea: Current animal models and underlying mechanisms. Animal Model Exp Med. 2021;4(4):300-10.
- Schaeffel F, Feldkaemper M. Animal models in myopia research. Clinical and Experimental Optometry. 2015;98(6):507-17.
- Harper AR, Summers JA. The dynamic sclera: extracellular matrix remodeling in normal ocular growth and myopia development. Exp Eye Res. 2015;133:100-11.
- Jobling AI, Nguyen M, Gentle A, McBrien NA. Isoform-specific changes in scleral transforming growth factor-beta expression and the regulation of collagen synthesis during myopia progression. J Biol Chem. 2004;279(18):18121-6.
- Vranka JA, Kelley MJ, Acott TS, Keller KE. Extracellular matrix in the trabecular meshwork: intraocular pressure regulation and dysregulation in glaucoma. Exp Eye Res. 2015;133:112-25.
- Tien P-T, et al. Diacerein inhibits myopia progression through lowering inflammation in retinal pigment epithelial cell. Mediators of Inflammation. 2021;2021(1):6660640.
- Ku H, et al. The role of transforming growth factor beta in myopia development. Molecular immunology. 2024;167:34-42.
- Yin X, Ge J. The role of scleral changes in the progression of myopia: a review and future directions. Clinical Ophthalmology. 2025:1699-707.
- Schippert R, Brand C, Schaeffel F, Feldkaemper MP. Changes in scleral MMP-2, TIMP-2 and TGFβ-2 mRNA expression after imposed myopic and hyperopic defocus in chickens. Experimental eye research. 2006;82(4):710-9.
- Xin J, et al. Crosstalk between myopia and inflammation: a mini review. International journal of medical sciences. 2024;21(9):1589.
- Zhang K, et al. Elevated Transforming Growth Factor-β2 in the Aqueous Humor: A Possible Explanation for High Rate of Capsular Contraction Syndrome in High Myopia. Journal of Ophthalmology. 2016;2016(1):5438676.
- Zhang M, et al. Complement and local ocular inflammatory response: Chronic immune factors in myopia. Science Progress. 2025;108(3):00368504251383046.
- Meng L, et al. Aqueous Humour Cytokines as Predictors of Axial Elongation in High Myopia: A 2-Year Longitudinal Cohort Study. Clinical & Experimental Ophthalmology. 2026;54(6):756-768.
- Miller DA, et al. Murine transforming growth factor-β2 cDNA sequence and expression in adult tissues and embryos. Molecular Endocrinology. 1989;3(7):1108-14.
- Langer JC, Henckaerts E, Orenstein J, Snoeck HW. Quantitative trait analysis reveals transforming growth factor-beta2 as a positive regulator of early hematopoietic progenitor and stem cell function. J Exp Med. 2004;199(1):5-14.
- Shinar DM, Rodan GA. Biphasic effects of transforming growth factor-beta on the production of osteoclast-like cells in mouse bone marrow cultures: the role of prostaglandins in the generation of these cells. Endocrinology. 1990;126(6):3153-8.
- Heldin CH, Moustakas A. Signaling Receptors for TGF-β Family Members. Cold Spring Harb Perspect Biol. 2016;8(8).
- Zhao B, Chen YG. Regulation of TGF-β Signal Transduction. Scientifica (Cairo). 2014;2014:874065.
- Akhurst RJ. Targeting TGF-β Signaling for Therapeutic Gain. Cold Spring Harb Perspect Biol. 2017;9(10).
- Pardue MT, Stone RA, Iuvone PM. Investigating mechanisms of myopia in mice. Exp Eye Res. 2013;114:96-105.
- Cordeiro MF, Gay JA, Khaw PT. Human Anti-Transforming Growth Factor-β2 Antibody: A New Glaucoma Anti-Scarring Agent. Investigative Ophthalmology & Visual Science. 1999;40(10):2225-34.
- Guo ZV, et al. Procedures for Behavioral Experiments in Head-Fixed Mice. PLOS ONE. 2014;9(2):e88678.
- Jager RD, Aiello LP, Patel SC, Cunningham ET, Jr. Risks of intravitreous injection: a comprehensive review. Retina. 2004;24(5):676-98.
- Lommatzsch AP, et al. Endophthalmitis als schwere Komplikation der intravitrealen Medikamentengabe. Klin Monbl Augenheilkd. 2013;230(11):1130-4.
- Li XT, Qin Y, Zhao JY, Zhang JS. Acute lens opacity induced by different kinds of anesthetic drugs in mice. Int J Ophthalmol. 2019;12(6):904-8.
- Tkatchenko TV, Tkatchenko AV. Ketamine-xylazine anesthesia causes hyperopic refractive shift in mice. J Neurosci Methods. 2010;193(1):67-71.
- Lin S-C, et al. The Function of Transforming Growth Factor 2 in Facilitating Inflammas ome Activation to Enhance the Development of Myopia via Complement Sys tem. Cells. 2025;14(16):1295.
- Wei CC, et al. Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression. EBioMedicine. 2018;28:274-86.
- Wei CC, et al. Corrigendum to "Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression" [EBioMedicine 28 (2018) 274-286]. EBioMedicine. 2019;41:717-8.
- Lin HJ, et al. Role of Chronic Inflammation in Myopia Progression: Clinical Evidence and Experimental Validation. EBioMedicine. 2016;10:269-81.
- Lin HJ, et al. Sclera-related gene polymorphisms in high myopia. Mol Vis. 2009;15:1655-63.
- Lin CF, et al. Harnessing Lactiplantibacillus plantarum EP21 and its membrane vesicles to inhibit myopia development. Gut Microbes. 2025;17(1):2534677.
- Chou Y-L, et al. Complement decay-accelerating factor inhibits inflammation-induced myopia development. Molecular Immunology. 2024;171:47-55.
- Ku H, et al. Myopia development in tree shrew is associated with chronic inflammatory reactions. Current Issues in Molecular Biology. 2022;44(9):4303-13.
- Chou Y-L, et al. Vitamin D3 Reshapes Gut Microbiota and Metabolite Profiles in a Rat Model of Inflammation-Induced Myopia. Biomolecules. 2026;16(7):939.
- Wallman J, Winawer J. Homeostasis of eye growth and the question of myopia. Neuron. 2004;43(4):447-68.
- Morgan IG, et al. IMI Risk Factors for Myopia. Investigative Ophthalmology & Visual Science. 2021;62(5).
- Wildsoet C, et al. IMI-interventions for controlling myopia onset and progression report. Investigative Ophthalmology and Visual Science. 2019;60(3):M106-M31.
- Rada JAS, Shelton S, Norton TT. The sclera and myopia. Experimental eye research. 2006;82(2):185-200.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב