פרוטוקול זה מדגים ויזואלית את השקיעה של מרכיבי דופן התא ליגנין ופקטין בחתכים רוחביים של גבעולי אלפאס (Medicago sativa L.). המטרה היא לזהות רקמות ספציפיות בגבעול שניתן יהיה להכווין אליהן פיתוח של זני אלפאס חדשים בעלי מאפייני עיכול רצויים של הגבעול.
מאמר שיטה
דגירה In vitro עם נוזל קריא (Rumen Fluid) וצביעה היסטולוגית של רכיבי דופן תא נבחרים בגבעולים של תלתן (Medicago sativa L.)
במאמר זה
סיכום
תקציר
הצטברות של רכיבי דופן התא ככל שהצמחים גדלים מגבילה את התזונה מהמספוא עבור רuminants. בפרט, שקיעת ליגנין ברקמות הצמח מעכבת את פירוק הפחמימות של דופן התא, תאית (cellulose) והמיצלולוז (hemicellulose), ובכך מפחיתה את כמות האנרגיה הזמינה מהמספוא. עם זאת, רכיב הפקטין של דופן התא, הניתן לעיכול גבוה, זמין בקלות לפירוק. מידע על שקיעת ליגנין ופקטין בסוגים שונים של תאי גבעול עשוי לספק תובנות מכניסטיות לגבי הגורמים העומדים בבסיס השונות בעיכול הגבעול בין זני אלפאלופה. דגירה In vitro של חתכי גבעול בנוזל קיבה מדמה את התהליכים שמרכיבי הגבעול עוברים בקיבה. בשילוב עם צביעה היסטולוגית ומיקרוסקופיה, שיטה זו מאפשרת ויזואליזציה של שינויים בפירוק הרקמה לאורך זמן ואת מיקומם של הליגנין והפקטין בגבעול. צבע Wiesner מגיב עם יחידות אלדהיד של גואיסיל (G) בליגנין וצובע אותן בוורוד פוקסיה. באופן דומה, ruthenium red מקיים אינטראקציה עם קבוצות הקרבוקסיל של הפקטין, וצובע את הפקטין בגבעול בגוונים הנעים בין ורוד לכתום וחום. פרוטוקול זה מתאר את עיכול חתכי גבעול של אלפאלופה לאחר חשיפה למיקרובים של הקיבה, ולאחריו צביעה לוויזואליזציה של תבניות ליגנין ופקטין בדפנות התאים. ניתן להשתמש בשיטה זו כדי לזהות רקמות גבעול שבהן ליגנין ופקטין נוכחים או חסרים, דבר המקל על השוואות בין זני אלפאלופה.
מבוא
דופן תא עוטפת כל תא צמחי. תאית (cellulose), המיצלולוז (hemicellulose), ליגנין ופקטין הם מרכיבים של דופן התא והם תורמים לסיב הצמחי, חלק הכרחי בתזונתו של בעל מע反ר (ruminant). בעוד שפקטינים הם פוליסכרידים בני עיכול גבוה (מסיסים)1, ליגנין הוא פולימר שאינו ניתן לעיכול המגביל את פירוק הסיבים2. לכן, ליגנין מפחית את יכולת העיכול של הצמח ובסופו של דבר מקטין את האנרגיה הזמינה לבעל המע反ר מהמספוא. עם זאת, ליגנין תומך בתפקודים פיזיולוגיים חשובים של הצמח, כגון הובלת מים ברחבי הצמח באמצעות חיזוק אלמנטים של טרכאות (tracheid elements)3. עבודות קודמות הראו כי שינויים בסיבי הגבעול המפחיתים ליגנין או מגבילים פקטין עשויים לשפר את יכולת העיכול של הגבעול ואת הערך התזונתי של המספוא4. לפיכך, פרוטוקול זה מתמקד בשני מרכיבי דופן התא הללו. ריכוזים כוללים של ליגנין ופקטין בדופן תאי הגבעול אינם מספקים מידע מספיק כדי להסביר את המנגנונים העומדים בבסיס יכולת העיכול של סיבי הגבעול5. דגירה In vitro עם נוזל קיבלה (rumen fluid) וצביעה היסטולוגית יכולות לספק תובנות ברמה התאית על ידי ויזואליזציה של הבדלים במרכיבי דופן התא בין צמחים בעלי יכולת עיכול שונה של סיבי הגבעול4,6. בפרוטוקול הנוכחי, אלפאלפא (Medicago sativa L.), קטנית מספוא רב-שנתית נפוצה, משמשת כמין מודל להדגמת דפוסי ליגנין ופקטין ברקמות הגבעול, המכילות יותר ליגנין אך פחות פקטין מאשר העלים.
In vitro inkובציה עם נוזל קיבלה (rumen fluid) מדמה את עיכול העשב בקיבתו של בעל מעי רשת, ומאפשרת לבחון את השפעות האנטומיה של העשב על העיכול. על ידי יצירת תנאים במבחנה הדומים לאלו הקיימים בקיבלה, ניתן להוציא בנקודות זמן שונות חתכים רוחביים של הגבעול המודבקים למסליילי זכוכית, כדי להעריך את מידת פירוק הרקמה בעקבות החשיפה לנוזל הקיבלה6. שיטה זו מספקת גישה פשוטה, מהירה וזולה יחסית להדמיית המבנים האנטומיים של גבעולי אלפאלפה7 ולבחינת האופן שבו סוגי תאים המכילים רכיבי דופן תא שונים משתנים ככל שהגבעול מעוכל.
צביעה היסטולוגית של חתכים רוחביים של הגבעול מאפשרת ויזואליזציה של רכיבי הדופן התאית. פלורוגלוצינול וחומצה כלורית (HCl) משולבים ליצירת צביעת Wiesner, המדגישה רקמות גבעול המכילות יחידות ליגנין עשירות בגואיאציל8 על ידי תגובה עם מונומרים של G C6C3 aldehyde (coniferaldehyde)9. ליגנין מורכב ממספר תת-יחידות מונומריות; עם זאת, לאורך מאמר זה, המונח "ליגנין" מתייחס אך ורק למונומר מסוג G-unit, שכן זהו המונומר המגיב לצביעת Wiesner10 ולכן הוא זה המיוצג ויזואלית באמצעות פרוטוקול זה. רקמות מסוימות, כגון צינורות xylem, הן תמיד מולגננות6. אחרת, השקעת ליגנין ברקמות גבעול של אלפאס (lucerne) מתחילה ברגע שהצמיחה המשנית (קמביאלית) נפתחת, וזה חופף להפסקת ההתארכות של מפרקי הגבעול6. Ruthenium red נקשר לחומרים פקטיים, המכילים קבוצות קרבוקסיל שלעתים נמצאות באסטריפיקציה וחולקות כמה שרשראות צד11. קבוצות הקרבוקסיל של פקטינים הנמצאים בלאמלה האמצעית ובדפנות התא הראשוניות מגיבות עם ruthenium red11. פקטין מעורב בהתארכות תאים ולכן הוא נוכח בתאים במהלך צמיחה ראשונית. לאורך כתב היד, המונח "פקטין" מתייחס באופן כללי למערך הפקטינים שעשויים להיות נוכחים. שילוב של צביעה היסטולוגית עם דגירה של רומן in vitro מקל על תצפית במיקומם של רכיבי הדופן התאית בגבעול ומדגיש כיצד סוגי תאים שונים משתנים במהלך עיכול ברומן. בסופו של דבר, ניתן להשתמש בפרוטוקול זה כדי לזהות תאי גבעול המכילים ליגנין ופקטין ולאפיין דפוסים בין זני אלפאס וזמני דגירה שונים.
פרוטוקול
מחקר זה נערך בהתאם להנחיות המוסדיות לניסויים בבעלי חיים (IACUC 2301-40689B).
1. סימון מבחנות הדגימה
- הכנה וסימון של מבחנות דגימה לאינקובציה, אחסון וצביעה
- סמנו מראש חמש סדרות נפרדות של מבחנות צנטריפוגה קוניות חד-פעמיות עם פקק הברגה בנפח 50 mL עבור כל דגימה. הוסיפו לכל מבחנה את מזהה הדגימה ואת זמן האינקובציה עבור השימושים המתוארים להלן.
- סמנו את מבחנות ההמתנה לפני האינקובציה והוסיפו 35 mL של מים אולטרה-טהורים.
- סמנו את מבחנות האינקובציה לשימוש בסעיפים 3 ו-4. ארגנו את המבחנות במעמדים נפרדים לפי זמן האינקובציה (0, 4, 8, 24, 48, או 96 h).
הערה: השתמשו בטוש קבוע בדרגת תעשייה כדי למנוע מהסימונים להימחק באמבט המים. - סמנו את מבחנות האחסון לאחר האינקובציה והוסיפו 35 mL של תערובת 50:50 של 100% glycerol ומים אולטרה-טהורים. השתמשו במבחנות אלו לאחסון חתכים רוחביים שעברו עיכול על סליידים עד לצביעה.
- סמנו את מבחנות קדם-הצביעה והוסיפו 35 mL של תערובת 50:50 של ethanol 200-proof ומים אולטרה-טהורים. השתמשו במבחנות אלו להוצאת glycerol מהחתכים הרוחביים לפני הצביעה.
- סמנו את מבחנות ההידרציה והוסיפו 35 mL של מים אולטרה-טהורים.
2. חיתוך גבעול בחתך רוחב והצמדתו לשקופיות
- באמצעות פינצטה, בחרו מקטע גבעול אחד בכל פעם מהגבעולים מדגם והוציאו את מרכז המקטע.
הערה: השתמשו בארבעה גבעולים לכל דגימה כחזרות טכניות עבור כל חזרה ביולוגית. בחרו את ארבעת הגבעולים באופן אקראי מכל הגבעולים האפשריים לכל דגימה. השתמשו בסט נוסף של גבעולי סטנדרט כביקורת עבור כל סבבי האינקובציה. - גזרו שני מלבנים של בידוד קצף פוליסטירן נוקשה מוקצף, כל אחד באורך של כ-2.5 cm ובעובי של 0.6 cm. גזרו חריץ קטן לאורך כל פיסה כך שמפרק גבעול יתאים בדיוק בין שתי פיסות הקצף.
- הניחו את "סנדוויץ'" הגבעול על השולחן של מיקרוטום הזזה המסוגל להפיק חתכים בעובי 100 μm. בעזרת מכחול עדין, הניחו טיפה של מים על הגבעול ועל להב המיקרוטום כדי להקל על ביצוע חיתוך נקי.
- חתכו חתכים רוחביים של הגבעול בעובי 100 μm. השתמשו במכחול כדי להעביר כל חתך רוחבי לכלי פטרי מסומן מראש המכיל מים אולטרה-טהורים לאחסון זמני, והסירו כל שארית קצף מהכלי.
הערה: החליפו את להב המיקרוטום אם הקצף נקרע, שכן קרע עשוי להעיד על להב קהה. - סמנו ידנית שתי זכוכיות סטנדרטיות בגודל 25 mm × 75 mm עבור כל דגימה בכל נקודת זמן של אינקובציה (2 צביעות × 6 נקודות זמן = 12 זכוכיות לדגימה עבור כל אחת מהחזרות הביולוגיות). כללו בכל תווית את מזהה הדגימה, זמן האינקובציה והצבע.
- גזרו חתיכה של סרט דביק דו-צדדי ברוחב 2 mm ואורך 2.5 cm. מקמו את הצד הקצר של הסרט במרחק של 0.5 cm מהחלק התחתון של הזכוכית, כאשר הצד הדביק פונה כלפי מטה, ולחצו בחוזקה על צד נייר השעווה של הסרט בעודכם לובשים כפפות כדי להבטיח הצמדה.
הערה: בצעו שלב זה על משטח שטוח כדי למנוע שבירה של זכוכיות המיקרוסקופ. - השתמשו במיקרוסקופ דיסקציה כדי לכוון את כל החתכים הרוחביים לאותו כיוון. הסירו את נייר השעווה מהסרט הדו-צדדי, ובשמירה על הכיוון של החתכים הרוחביים, העבירו אותם לסרט שעל הזכוכית המסומנת מראש בעזרת מכחול עדין שהורטב. שמרו על החתכים הרוחביים לחים מעט.
- הניחו את נייר השעווה מעל החתכים הרוחביים וגלגלו עליו קלות את המכחול כדי להצמיד את החתכים הרוחביים בחוזקה לסרט הדו-צדדי. הסירו את נייר השעווה והניחו את הזכוכית המוכנה המכילה ארבעה חתכים רוחביים לתוך מבחנה השמירה המסומנת מראש שתוארה בשלב 1.1.2, תוך וידוא שהמים האולטרה-טהורים מכסים את החתכים הרוחביים המורכבים.
- עבור צביעה הן ב-ruthenium red והן ב-Wiesner stain, הניחו שתי זכוכיות גב-אל-גב בכל מבחנת שמירה כאשר הסרט הדו-צדדי פונה החוצה.
הערה: לאחר הרכבת כל הזכוכיות והנחתן במבחנות המכילות מים אולטרה-טהורים, אחסנו את הזכוכיות למשך הלילה בטמפרטורת החדר במידת הצורך.
3. הכנה לדגירה in vitro של חתכי רוחב של הגבעול
- השתמשו במבחנות צנטריפוגה חד-פעמיות עם מכסה הברגה בנפח 50 mL שהוכנו לדגירה (ראו 1.1.3). קבצו את כל מבחנות הדגימות עבור כל פרק זמן דגירה על גבי רैक פלסטיק בודד.
- השתמשו במאזני אנליזה עם דיוק של ארבעה ספרות אחרי הנקודה כדי לשקול 0.2 g של סטנדרט גבעול תירס גרוס ב-1 mm על נייר שקילה, והעבירו בזהירות את החומר לכל מבחנת דגירה, למעט המבחנות של 0 h, המשמשות כביקורת ללא דגירה. סגרו את המבחנות והניחו אותן בצד עד לשימוש.
הערה: סטנדרט גבעול התירס מספק אנרגיה לתמיכה במיקרוביים של הרוםן במהלך הדגירה, מכיוון שמסת הביומה של חתכי הרוחב של הגבעול אינה מספיקה כדי לשמור על פעילות מיקרוביאלית. - מלאו אמבט מים במחזוריות בכמות מים מספיקה והביאו אותה לשיווי משקל בטמפרטורה של 39 °C לפני תחילת הדגירה. כווןנו את עומק המים כך שיכסו את סימון ה-35 mL במבחנות ה-50 mL, והשתמשו במאוורר במידת הצורך כדי לשמור על סירקולציה אחידה של המים ועל הטמפרטורה.
- הכנת באפר מקדוגאל (McDougall’s buffer) עבור תמיסת ההחדרה
- הכינו את באפר מקדוגאל לא יותר מיומיים לפני תחילת הדגירות.
הערה: ערבבו את באפר מקדוגאל עם נוזל רומן ביחס של 4:1 להכנת תמיסת ההחדרה. התאימו את נפח הבאפר למספר הדגימות, והכינו מספיק תמיסת החדרה כדי לספק 30 mL לכל מבחנה. - מדדו 1,600 mL של מים אולטרה-טהורים. העבירו 1 L לבקבוק ארלנמאייר שטוח בנפח 3 L ושמרו 600 mL להעברה ושטיפת ריאגנטים.
- הניחו מגנט שקיעה בבקבוק הארלנמאייר והציבו את הבקבוק על פלטת ערבוב.
- הניחו משפך פלסטיק בבקבוק הארלנמאייר. הוסיפו 15.7 g נתרן ביקרבונט (NaHCO₃), 5.9 g נתרן פוספט דיבסיק אנידרוס (Na₂HPO₄), 0.91 g אשלגן כלוריד (KCl), 0.75 g נתרן כלוריד (NaCl), 0.19 g מגנזיום סולפט heptahydrate (MgSO₄·7H₂O), ו-0.06 g סידן כלוריד דיהידרט (CaCl₂), תוך הוספת ריאגנט אחד בכל פעם והמתנה להמסה מלאה של כל ריאגנט לפני הוספת הבא אחריו. השתמשו בחלקים מ-600 mL של המים האולטרה-טהורים ששמרו כדי לשטוף את המשפך לאחר כל הוספה.
- לאחר הוספת סידן כלוריד דיהידרט, הכניסו מפיץ CO₂ כדי להקל על ההמסה ובצעו ספארגציה (sparge) לתמיסה. ברגע שהתמיסה תהיה צלולה, המשיכו בספארגציה למשך 10–15 min נוספים.
- סגרו את הבקבוק היטב ואבטחו את הפקק באמצעות סרט הדבקה, כיוון שחימום הבאפר עלול להעלות את הלחץ בתוך המכל.
- אחסנו את התמיסה בטמפרטורה של 20 °C למשך עד יומיים. הניחו את התמיסה באמבט מים של 39 °C ביום שלפני השימוש, או הניחו אותה ישירות באמבט מים של 39 °C אם תהיה בשימוש למחרת.
- הכינו את באפר מקדוגאל לא יותר מיומיים לפני תחילת הדגירות.
4. אינקובציה In vitro של חתכים רוחביים של הגבעול
- ביום האינקובציה, מקריבים 47 mL של מים ו-4 mL של 1 N NaOH לתוך כלי ביקר בנפח 100 mL במכססה, ומוסיפים 0.625 g של cysteine-HCl. בכלי ביקר שני בנפח 100 mL, מוסיפים 0.625 g של sodium sulfide ל-47 mL של מים, ושומרים על שני התמיסות נפרדות עד להכנת תמיסת ההקלעה.
- ממלאים תרמוס מבודד במים חמים כדי ליצור סביבה חמה להעברת מיקרואורגניזמים מהרומן מהפרה למעבדה. מכינים דלי בנפח חמישה גאלון להעברת המים החמים מהתרמוס.
- נוסעים לרפת כדי לאסוף נוזל רומן מהפרה עם קנולה שהוקצתה לניסוי על ידי הנהלת הרפת.
הערה: יש לאסוף את נוזל הרומן בערך באותה שעה ביום ומאותה פרה לאורך כל הניסוי כדי למזער שונות. יש לתאם עם הנהלת הרפת כדי להקדים ולהודיע מתי תהיו ברפת לאיסוף נוזל הרומן. - מזהים את הפרה הניסויית ולובישים ציוד הגנה אישי מתאים, כולל חלוק מעבדה, הגנה על העיניים, כיסויי נעליים וכפפות עד לאורך הכתפיים.
הערה: הגבילו את הפרוצדורות בשלבים 4.4–4.8 לאנשי צוות המורשים תחת פרוטוקול ה-IACUC הרלוונטי. - מעבירים את המים החמים מהתרמוס לדלי בנפח חמישה גאלון. מכינים שתי שכבות של גזה בדרגה 50 (בד גבינה) לסינון חומר הרומן.
- איסוף נוזל רומן מהפרה עם קנולה
- פותחים בזהירות את הקנולה ומניחים את הפקק בדלי בנפח חמישה גאלון עם המים החמים כדי למנוע זיהום של הפקק. בעזרת יד עם כפפה, מסירים מספיק חומר מהרומן כדי להגיע לממשק המוצק-נוזל של הרומן.
- במרגע ההגעה לממשק המוצק-נוזל, אוספים מספר חפניות של חומר וסוחטים אותו דרך שתי שכבות של גזה בדרגה 50, שכל אחת מהן היא בקירוב ריבוע של 45 cm, לתוך תרמוס עם פקק הברגה שחומם מראש. משליכים את החומר השהוי לאחר סחיטת נוזל הרומן דרך הגזה.
- חוזרים על שלב 4.6.2 עד שמתקבלים 1 L של נוזל רומן בתרמוס עבור כל קבוצה של 60 מבחנות הקלעה, תוך התאמת הנפח לפי הצורך בהתבסס על מספר הדגימות המיועדות לאינקובציה.
הערה: לפרות עם קנולה יש מגבלות ספציפיות על כמות נוזל הרומן שניתן להוציא בשבוע נתון. תקשרו עם מנהל הרפת כדי להבטיח שכמות נוזל הרומן שנשלפה אינה עולה על המגבלה עבור הפרה.
- לאחר איסוף מספיק נוזל רומן, סוגרים את התרמוס היטב כדי לשמר את טמפרטורתו. מחזירים את הקנולה ומשתמשים במים החמים בדלי בנפח חמישה גאלון לצורך ניקיון.
- משליכים כיסויי נעליים, כפפות וגזה מלוכלכים למכל הפסולת המתאים בעת עזיבת הרפת. חוזרים למעבדה בהקדם האפשרי כדי לשמר את טמפרטורת נוזל הרומן ואת התנאים האנוקסיים.
- עם החזרה למעבדה, מערבבים את שתי תמיסות חומרי החיסור (ראו 4.1) במכססה ומערבבים אותן להכנת תמיססת החיסור.
- מניחים כלי ביקר מזכוכית בנפח של לפחות 2 L המכיל מגנט ערבוב גדול על פלטת ערבוב מחוממת המוגדרת ל-<30 °C, ומניחים דיפוזר CO₂ מעל הנוזל. מוסיפים 1,600 mL של McDougall’s buffer ומערבבים באיטיות מבלי לאפשר לדיפוזר ה-CO₂ לבוא במגע עם הנוזל.
הערה: ניתן להשתמש בכלי ביקר מפוליפרופילן בטמפרטורה נמוכה זו. השתמשו ב-CO₂ כדי לדחוק את ה-O₂ ולסייע בשמירה על תנאים אנוקסיים. - מרפדים משפך גדול בשתי שכבות של בד גבינה בדרגה 50 ומניחים אותו מעל משורה בנפח 2 L. מסננים 400 mL של נוזל רומן ומוסיפים אותם ל-McDougall's buffer (ראו 3.4.7) להכנת תמיססת ההקלעה.
- מוסיפים 80 mL מתמיססת החיסור (ראו 4.9) לתמיססת ההקלעה ומערבבים באיטיות. מונעים מהדיפוזר של ה-CO₂ לבוא במגע עם הנוזל.
- במכססה, מסירים את הפקקים ממבחנות האינקובציה ומארגנים אותן בתוך רקים נפרדים לפי זמן האינקובציה. פותחים את פקקי מבחנות ההמתנה של טרום-האינקובציה כהכנה להעברת השקופיות (ראו 1.1.2).
- בוחרים באופן אקראי מבחנת המתנה אחת של טרום-אינקובציה בכל פעם ומשתמשים בפינצטה כדי להעביר את השקופיות הזכוכית המורכבות למבחנת האינקובציה המתאימה (ראו 1.1.3). מניחים כל מבחנת אינקובציה המכילה את השקופיות המורכבות בתוך רק דגימות קטן ומניחים את מבחנת ההמתנה של טרום-האינקובציה בצד.
הערה: השתמשו בשני אנשים לביצוע שלבים 4.14–4.15. במידת האפשר, מזערימו את קירור תערובת נוזל הרומן-בופר. - שואבים 30 mL של תמיססת הקלעה לתוך מזרק של 60 mL המצויד במחט רחבה וקהה. מזלפים את התמיסה באיטיות לאורך דופן מבחנת האינקובציה, שוטפים את המבחנה ב-CO₂ למשך כ-20 s, סוגרים את המבחנה ומחזירים אותה לרק.
- מניחים את הרקים המכילים את המבחנות המוכלאות באמבט מים בטמפרטורה של 39 °C. מניעים את המבחנות בעדינות לפחות פעם אחת ביום ומחליפים את מיקומי הרקים מדי יום כדי למזער חימום לא אחיד.
הערה: היווצרות בועות גז במבחנות מעידה על תסיסה פעילה. - בסיום כל תקופת אינקובציה, מוציאים את הרק המתאים מאמבט המים. פותחים מבחנה אחת בכל פעם, מוציאים כל שקופית ושוטפים בעדינות מוצקים ותמיססת הקלעה שאריות בעזרת ultrapure water.
- מניחים את השקופיות השטופות בתוך מבחנות האחסון שלאחר-האינקובציה המכילות את תערובת הגליצרול-מים המתוארת בשלב 1.1.4.
5. צביעת חתך רוחבי עבור ליגנין
- אם השקופיות אוחסנו בתמיסת גליצרין-מים ביחס של 50:50, העבירו את שתי השקופיות המכילות את חיתוכי הרוחב המורכבים למבחנות שטיפה לפני צביעה המכילות את תמיסת האתנול-מים ultrapure (ראו סעיף 1.1.5). אחסנו את המבחנות למשך לילה במקרר כדי להסיר את הגליצרין לפני הצביעה.
- הכינו תמיסת פלורוגלוצינול (PG) בריכוז של 3% על ידי המסה של 0.3 g של PG ב-10 mL של אתנול מוחלט בבקרחון ארלנמאייר בנפח של 25 mL העטוף בנייר אלומיניום כדי להגן על הרכיב הפוטו-סנסטיבי מפני אור. סגרו את הבקרחון בפקק וסמנו אותו בשם התמיסה, תאריך ההכנה ושם המכין, ואחסנו אותו בטמפרטורה של 20 °C.
- הוציאו את השקופיות מהמבחנות המקוררות והעבירו אותן באופן זמני למבחנות ההידרציה המתוארות בשלב 1.1.6, המכילות 100% מי ultrapure.
הערה: שמרו על חיתוכי הרוחב הידרטיים במהלך הטיפול כדי למזער חמצון, שעלול לפגוע בחיתוכים ולהשפיע על הדימות העוקב. - הכינו את צבע ויסנר (Wiesner stain) בתוך מזהם באמצעות פיפטה, על ידי ערבוב של 50 μL של 3% PG באתנול (ראו סעיף 5.2) עם 25 μL של חומצה כלורית (HCl) בתוך כלי קיבול (beaker) בנפח של 50 mL.
הערה: התאימו את הכמויות למספר השקופיות תוך שמירה על יחס של 2:1 בין PG ל-HCl.
אזהרה: טיפול בחומצה כלורית חייב להתבצע במזהם מכיוון שהיא קורוזיבית למתכות, גורמת לכוויות חמורות בעור ולנזקי עיניים, ועלולה לגרום לגירוי בדרכי הנשימה. הימנעו משאיפת אדים או תרסיסים, לבשו כפפות מגן מתאימות, ביגוד, הגנה לעיניים ולהגנה על הפנים, ושטפו היטב עור חשוף לאחר הטיפול. - הוציאו שקופית אחת מהמבחנה וספגו בעדינות את הזכוכית מסביב לסרט הדבק הדו-צדדי באמצעות נייר סופג בעל סיב nisk-lint כדי למנוע מהצבע לזלוג מהסרט. הניחו את השקופית על מגש פלסטיק קטן והשתמשו בפיפטה כדי להניח מספר טיפות של צבע ויסנר מעל חיתוכי הרוחב.
- הפעילו טיימר ל-12 min וכסו את השקופיות בנייר אלומיניום להגנה מאור. בדקו את חיתוכי הרוחב במהלך הצביעה והניפו שוב את הצבע לפי הצורך כדי למנוע התייבשות.
הערה: מנעו את התייבשות חיתוכי הרוחב מכיוון שחמצון עלול לפגוע ברקמה ולהשפיע על הדימות העוקב. - לאחר 12 min, הסירו בעדינות את עודפי צבע ויסנר באמצעות נייר סופג בעל סיב nisk-lint. שטפו את הרקמה לפני ההרכבה כדי למזער את חשיפת עדשת היעד של המיקרוסקופ לאדי HCl קורוזיביים.
- הניחו 1–2 טיפות של תמיסת גליצרין-מי ultrapure בריכוז של 50% מעל כל חיתוך רוחב וכסו בזכוכית כיסוי בגודל 24 mm × 30 mm (עובי מס' 1.5). עברו מיד לניתוח מיקרוסקופי ולדימות.
הערה: בצעו את רכישת התמונות בתוך 6–8 h מכיוון שצביעת ויסנר רגישה לזמן ועשויה להפוך לצהובה ולהתפשט מחיתוך הרוחב עם הזמן.
6. צביעת חתך רוחב לפקטין
- יש לבצע את שלב 5.1 כדי להסיר את תערובת הגליצרין-מים אולטרה-טהורים מהשקופיות המאוחסנות לפני הצביעה.
- הכינו תמיסת ruthenium red בריכוז 0.02% על ידי המסה של 0.02 g של ruthenium red ב-100 mL של מים אולטרה-טהורים בתוך בקבוק Erlenmeyer בנפח 125 mL העטוף בנייר אלומיניום כדי להגן על הרכיב הרגיש לאור מפני חשיפה. יש לסגור את הבקבוק בפקק ולסמנו בשם התמיסה, תאריך ההכנה ושם המכין, ולאחסנו בטמפרטורה של 20 °C.
- הוציאו את השקופיות מהמבחנות עם אתנול-מים אולטרה-טהורים שנמצאות בקירור, והעבירו את השקופיות המסומנות כראוי המכילות חתכים מורכבים למבחנות המכילות 100% מים אולטרה-טהורים (ראו 1.1.6) להמתנה זמנית.
הערה: יש להקפיד על אמצעי הזהירות להידרציה המתוארים בשלב 5.3. - הוציאו שקופית אחת מהמים האולטרה-טהורים באמצעות פינצטה וספגו את המים מסביב לסרט בעזרת נייר סופג דל סיבים כדי למנוע מהצבע לזרום על הזכוכית. הניחו את השקופית על מגש פלסטיק קטן.
- טפטפו מספר טיפות של תמיסת ruthenium red (ראו 6.2) כדי לכסות באופן אחיד את חתכי הרוחב. כסו את השקופיות בנייר אלומיניום למשך 10 min כדי להגן עליהן מהור, ולאחר מכן שטפו בעדינות את הצבע מהשקופית בעזרת מים אולטרה-טהורים למשך 2 min.
- ספגו את עודפי המים מהשקופית וטפטפו 1–2 טיפות של תערובת 50% גליצרין-מים אולטרה-טהורים על כל חתך רוחב. כסו את חתכי הרוחב עם זכוכית כיסוי בגודל 24 mm × 30 mm (עובי No. 1.5) והמשיכו לאנליזה מיקרוסקופית ולדימוג.
הערה: יש לבצע את האנליזה המיקרוסקופית באותו היום לקבלת תוצאות אופטימליות.
7. דימוי בשדה בהיר
- בחנו את חתכי הרוחב תחת תאורת שדה בהיר באמצעות מיקרוסקופ בהגדלות של 10×, 20× ו-40×. ראו טבלה 1 עבור פרמטרים והגדרות לרכישת תמונות.
תוצאות
השימוש במבחנות צנטריפוגה לסימולציה של תנאי הקיר (rumen) אפשר עיכול in vitro מהיר וזול יחסית של חתכים רוחביים מגבעול Medicago sativa. באמצעות מיקרוטום, הוכנו חתכים רוחביים של גבעולי M. sativa בעובי 100 μm (איור 1A). החתכים הרוחביים של הגבעול הודבקו לשקופיות זכוכית באמצעות סרט הדבקה דו-צדדי (איור 1B) והוטבלו בתמיסת אינוקולציה של נוזל קיר למשך תקופות דגירה שנעו בין 4 h ל-96 h (איור 1C). עבור הדגירה in vitro, שימשו מבחנות צנטריפוגה חד-פעמיות עם פקק בנפח 50 mL ככלי דגירה, ואליהן הוספו 0.2 g של תשתית גבעולי תירס טחונים בגודל 1 mm כדי לתחזק את מיקרואורגניזמי הקיר לאורך כל תקופת הדגירה. המבחנות הודגרו במקלח מים ששומר על טמפרטורה של 39 °C (איור 1D). תסיסה פעילה של מיקרואורגניזמי הקיר אומתה ויזואלית על ידי היווצרות בועות גז בתמיסת האינוקולציה. החומרים הדרושים לפרוטוקול זה נגישים בדרך כלל במעבדות כימיה רטובה. הסרט הדו-צדדי לא מנע את התפרקות הרקמה במהלך החשיפה לנוזל הקיר, אך שימר את חלקי הגבעול שנותרו לאחר העיכול, מה שאפשר צביעה וויזואליזציה מיקרוסקופית לאחר מכן.
חתכי רוחב של הגבעול שלא עברו דגירה in vitro (0 h) אפשרו ויזואליזציה של רכיבי דופן התא הראשוניים ברחבי רקמות גבעול שונות. חתכי רוחב שנצבעו בצבע ויסנר (Wiesner stain) זיהו רקמות המציגות צביעה הקשורה לליגנין (Figure 2A–E), בעוד שחתכי רוחב שנצבעו ברותניום אדום (ruthenium red) הדגישו רקמות המציגות צביעה הקשורה לפקטין (Figure 3A–E). בחתכים שנצבעו בצבע ויסנר, סיבי פלומיס ראשוני בוגרים הראו צביעה בצבע פוקסיה (Figure 2B–E). צינורות xylem ו-xylem בין-צרורים הראו גם הם צביעה בצבע פוקסיה (Figure 2B–D). צביעה ברותניום אדום נצפתה באפידרמיס, בקולנכימה, בכלורנכימה, בפלומיס משני (Figure 3B–E) ובליבה (Figure 3B–D). חלק מה-xylem בין-צרורים וסיבי פלומיס ראשוני נצבעו גם הם ברותניום אדום (Figure 3B–E). חתכי רוחב של הגבעול השלם הודגמו על ידי תפירה של רשת 5 × 5 של תמונות שנרכשו בהגדלה של 10× (Figure 2A ו-Figure 3A). תמונות נוספות של אזור אחד בחתך הרוחב של הגבעול נרכשו בהגדלה של 10× (Figure 2B ו-Figure 3B), 20× (Figure 2C ו-Figure 3C), ו-40× מעל (Figure 2D ו-Figure 3D) ומתחת (Figure 2E ו-Figure 3E) לקמביום הוסיקולרי.
רקמות צבועות בשיטת Wiesner של חתכים רוחביים של גבעול M. sativa היו גלויות בכל הדגראות in vitro מזמן של 0 h ועד 96 h (איור 4A–F). ב-0 h, לכל התאים יש קצוות ברורים (איור 4A). לאחר 8 h, ראיות לדגרדציה של הרקמה היו ניכרות מהטשטוש של קצוות התאים בעלי דפנות תא דקות שאינן לגיניפיות (כלומר, לא צבועות) (למשל, קולנכימה) ומהיעלמות של תאים (למשל, פלואם שני). לאחר 24 h, המבנה התלת-ממדי הספירלי של צינורות העץ (xylem) הפך לגלוי יותר ככל שהרקמות מסביב דגרו (איור 4D). מעבר ל-24 h, תאים שאינם צבועים דגרו והיעלמו בהדרגה (איור 4D–F). ככל שרקמות אלו דגרו, אובדן התמיכה האנטומית גרם לאפידרמיס שאינו צבוע לקרוס הצידה, מה שיצר מראה של סרט תאים דקים ושקופים ב-24, 48 ו-96 h (איור 4D–F).
במבחנה דגירה של .M. sativa חתכים רוחביים של הגבעול, שאחריהם בוצע צביעה ברותניום אדום, אפשרו הדמיה של צביעה הקשורה לפקטין ברקמות הגבעול לאחר 0–96 שעות של חשיפה לנוזל קרקר (איור 5A–F). בטווח של 0 עד 4 שעות, קצוות ברורים מסביב לכל התאים מעידים על כך שהם היו שלמים (איור 5A,ב)ככל שזמן האינקובציה התארך עד ל-8 שעות, רקמות בעלות דפנות תאים דקות שאינן מולגניפיות בקורטקס, כולל הקולנכימה, הכלורנכימה והפלואם המשני, איבדו בהדרגה את שלמותן המבנית, מה שהוביל לטשטוש של גבולות התאים (איור 5C). בשעות 24, 48 ו-96, חלק גדול מרקמת הקורטקס המקיפה היה חסר, בעוד שחלקים מהאפידרמיס, הזילים הבינ-פסקיולרי, הליבה והרקמות הלימטיות נותרו גלויים (איור 5D–F). אובדן המבנה האנטומי הסובב לווה בקריסה לטראלית של אזור האפידרמיס. עד לשעה ה-96, נותרה כמות מועטה משמעותית יותר של רקמה שצבעה ruthenium red בהשוואה לזמני הדגירה המוקדמים יותר (איור 5Fבאופן כללי, האובדן הדרגתי של רקמת הגבעול במהלך הדגירה לווה בירידה במספר התאים שצבעו התגלה כחיובי לרותניום אדום (ruthenium red). הפירוק וההיעלמות של תאים דקים, שאינם מלגנינים וקשורים לפקטין, היו צפויים, מאחר שפקטין מתפרק בקלות עם הזמן.
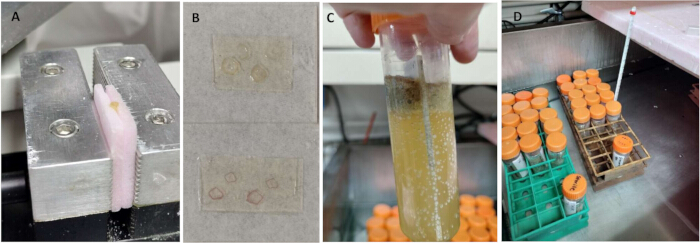
איור 1: In vitro אינקובציה של חתכים רוחביים של גבעול אלפאלפה. (A) מקטעי גבעול אלפאלפה הונחו בין שתי חתיכות של בידוד קצף פוליסטירן נוקשה והורכבו על במה נשלפת של מיקרוטום לצורך חיתוך רוחבי. (B) ארבעה חתכים רוחביים, כל אחד בעובי 100 μm, קובעו לסלייד זכוכית באמצעות סרט דביק דו-צדדי לצורך אינקובציה in vitro וצביעה היסטולוגית. (C) שני סליידי זכוכית הונחו גב אל גב, כאשר הסרט הדביק פונה החוצה, בתוך מבחנה של 50 mL המכילה 30 mL של תמיסת אינוקולציה של בופר נוזלי של קיבה (rumen fluid-buffer) ו-0.2 g של גבעול תירס טחון בגודל 1-mm. המבחנה שוטפה ב-CO₂ ונסגרה לצורך אינקובציה. בועות גז לאורך דופן המבחנה העידו על תסיסה פעילה על ידי מיקרואורגניזמים של הקיבה במהלך האינקובציה. (D) מתקני אחסון המכילים את מבחנות ה-50 mL הוחזקו באמבט מים בטמפרטורה של 39 °C לאורך כל תקופת האינקובציה. מפלס המים כיסה את תמיסת האינוקולציה אך נשאר מתחת לפתחי המבחנות, כדי למנוע חדירת מים למבחנות. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
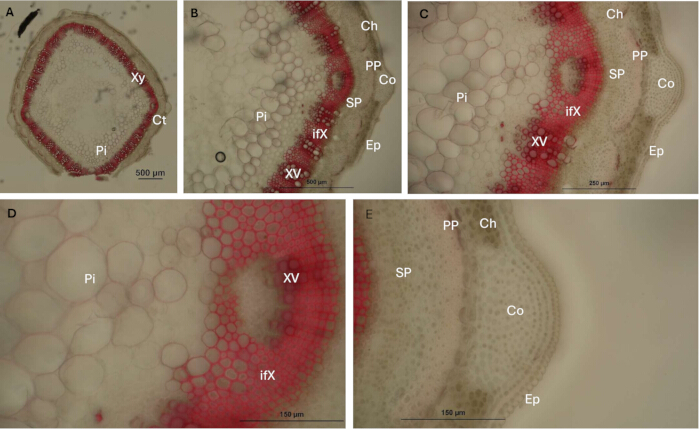
איור 2: צביעת Wiesner של רקמות גבעול אלפאלפה מעידה על התפלגות רכיבי דפנות תאים מולניפיות. (A–E) חתכים רוחביים של גבעול אלפאלפה שלא עברו עיכול (זמן דגירה = 0 h) שימשו כנקודת ייחוס ראשונית לזיהוי רקמות גבעול המראות צביעת Wiesner. צינורות xylem (XV), xylem בין-צרקי (ifX) וסיבי phloem ראשוניים בוגרים (PP) נצבעו בוורוד פוקסיה. הגדלות וסרגי קנה מידה: (A) רשת של 5 × 5 תמונות מורכבות שנרכשו בהגדלה של 10×, סרגל קנה מידה = 500 μm; (B) 10×, סרגל קנה מידה = 500 μm; (C) 20×, סרגל קנה מידה = 250 μm; (D, E) 40×, סרגלי קנה מידה = 150 μm. קיצורים: Xy = xylem; Ct = cortex; Pi = pith; Ep = epidermis; Co = collenchyma; Ch = chlorenchyma; SP = secondary phloem; XV = xylem vessels; ifX = interfascicular xylem; PP = mature primary phloem fibers. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
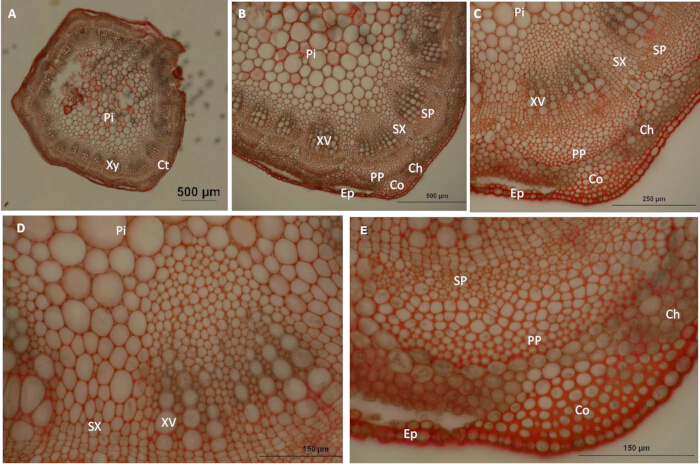
איור 3: צביעה ב-Ruthenium red של רקמות גבעול אלפפא מעידה על התפלגות הפקטין פוליסכרידים בדפנות התאים. (A–E) חתכים רוחביים של גבעול אלפפא שלא עברו עיכול (זמן דגירה = 0 h) שימשו כנקודת ייחוס ראשונית לזיהוי רקמות גבעול המראות צביעה ב-ruthenium red. האפידרמיס (Ep), קולנכימה (Co), כלורנכימה (Ch), פלונית משנית (SP) וליבה (Pi) הראו צביעה אדומה. xylem משני (SX) ופלונית ראשונית בוגרת (PP) הראו אף הם צביעה, בעוד שצינורות ה-xylem (XV) נותרו ללא צביעה יחסית. הגדלות וסרגי קנה מידה: (A) רשת של 5 × 5 תמונות מחוברות שנסרקו בהגדלה של 10×, סרגל קנה מידה = 500 μm; (B) 10×, סרגל קנה מידה = 500 μm; (C) 20×, סרגל קנה מידה = 250 μm; (D, E) 40×, סרגי קנה מידה = 150 μm. קיצורים: Xy = xylem; Ct = cortex; Pi = ליבה; Ep = אפידרמיס; Co = קולנכימה; Ch = כלורנכימה; SP = פלונית משנית; XV = צינורות xylem; SX = xylem משני; PP = פלונית ראשונית בוגרת. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
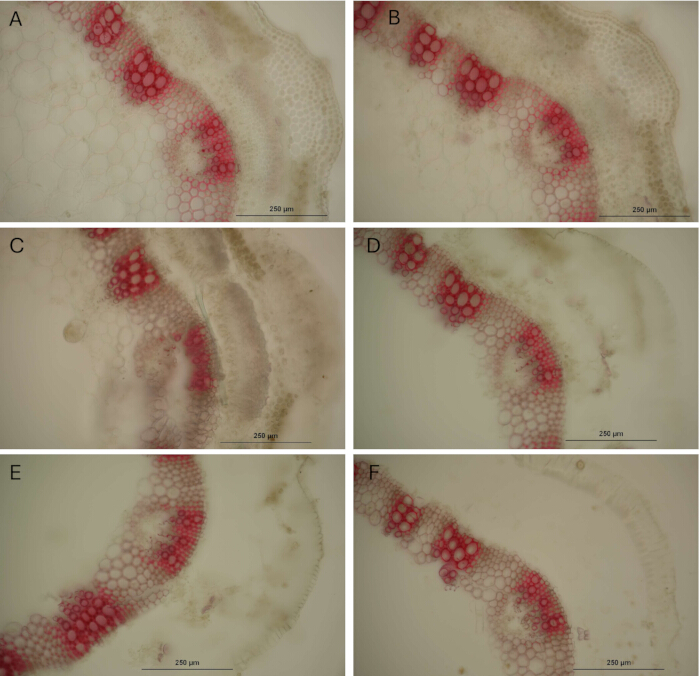
איור 4: שינויים ברקמות גבעול של אלפפא בעקבות דגירה in vitro וצביעת Wiesner. חתכים רוחביים של גבעול אלפפא מאותם מפרקים (internodes) הוכפפו לדגירה in vitro עם נוזל מעבסה למשך (A) 0 שעות, (B) 4 שעות, (C) 8 שעות, (D) 24 שעות, (E) 48 שעות, ו-(F) 96 שעות. צינורות ה-xylem (XV), ה-xylem הבין-צמיגתי (ifX), וסיבי phloem ראשוניים בוגרים (PP) שמרו על צביעת Wiesner לאורך תקופות הדגירה. צביעה חלשה של ה-ifX נצפתה ברקמת גבעול לא בוגרת. עם הגברת זמן הדגירה, הרקמות מסביב איבדו בהדרגה את השלמות המבנית שלהן, מה שהפך את המבנים הכליים הצבועים שנותרו لبולטים יותר ויותר. סרגי קנה מידה = 250 μm. אנא לחץ כאן כדי לצפות בגרסה מוגדלת של איור זה.
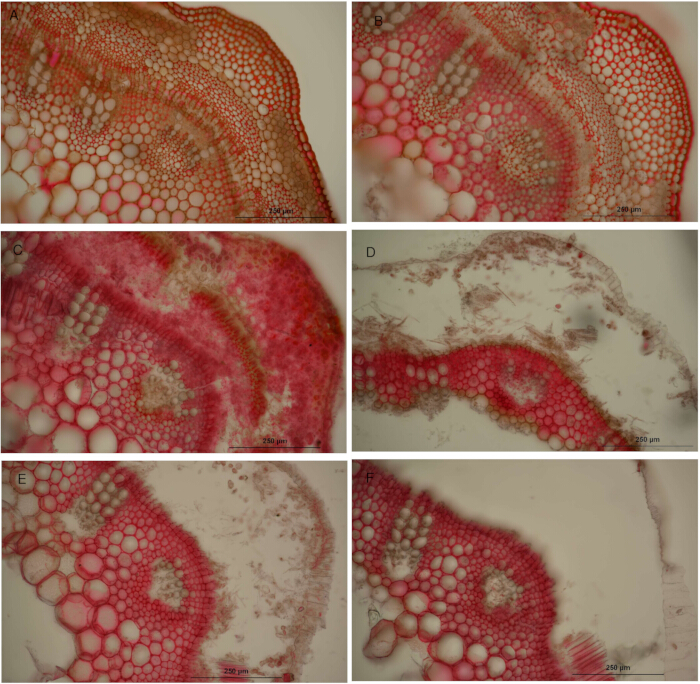
איור 5: שינויים ברקמות גבעול אלפאפה לאחר דגירה in vitro וצביעה ברותניום אדום. חתכים רוחביים של גבעול אלפאפה מאותם מפרקים הוכנסו לדגירה in vitro עם נוזל קרשה למשך (A) 0 שעות, (B) 4 שעות, (C) 8 שעות, (D) 24 שעות, (E) 48 שעות, ו-(F) 96 שעות. צביעה ברותניום אדום נצפתה ברקמות גבעול מרובות, בעוד שצינורות הlylem (XV) נותרו ללא צבע יחסית. עם העליית זמן הדגירה, נצפו אובדן הדרגתי של מבנה הרקמה ושל הצביעה ברותניום אדום. חלקים מצינורות הlylem, ה-interfascicular xylem (ifX) והאזור האפידרמלי (Ep) נותרו גלויים בזמני דגירה מאוחרים יותר. סרגי קנה מידה = 250 μm. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
| פרמטר | סביבת העבודה |
| מיקוד מהיר (Fast Focus) | 2000 × 1328 |
| איכות (לכידה) | 2000 × 1328 |
| מצב צבע | צבע RGB |
| עומק ביטים | 8 ביטים לערוץ |
| עומק צבע אפקטיבי | RGB ב-24 ביט (8 ביט R + 8 ביט G + 8 ביט B) |
| הגבר | 2 |
| זמן חשיפה בהגדלה של 10x (מילישניות) | 30 |
| זמן חשיפה (במילישניות) בהגדלה של 20x | 50 |
| זמן חשיפה (מילי-שניות) בהגדלה של 150x | 150 |
טבלה 1: הגדרות מיקרוסקופ ומצלמה לצילום. הגדרות מיקרוסקופ, מצלמה ורכישת תמונה ששימשו לצילום בשדה בהיר באמצעות מיקרוסקופ אנכי המצויד במצלמה דיגיטלית צבעונית ותוכנת דימוי.
דיון
חומר גלם של אלפאלפה ששימש במחקר הנוכחי כלל שיבוטים מחמישה קווי אלפאלפה. שני קווים ניסיוניים נבחרו לאחר שני מחזורי ברירה מנוגדת לעיכול סיבים בנייטרל דטרגנט in vitro (IVNDFD) מצמחי אם בעלי ערכי 16 h IVNDFD נמוכים ו-96 h IVNDFD נמוכים, או ערכי 16 h IVNDFD גבוהים ו-96 h IVNDFD גבוהים12. שלושה קווים מסחריים עם רקע גנטי לא ידוע נכללו אף הם במחקר, וצמחי אם נבחרו על בסיס ניתוח ספקטרוסקופיה באינפרא-אדום קרוב כדי לזהות פרטים עם (א) כמות הליגנין הגבוהה ביותר, (ב) כמות הליגנין הנמוכה ביותר, ו-(ג) רמות סיבים בנייטרל דטרגנט וסיבים באסיד דטרגנט הנמוכות ביותר. חמשת קווי האלפאלפה הועברו מחממה במאי 2021 לניסויי שדה חוזרים בשני מיקומים במינסוטה, ארה"ב. עבור שני הבצירים הראשונים והשניים של כל עונת גידול, נקטפו 10 גבעולים מכל קו אלפאלפה בשלבי הבגרות של הצמח: השלב הצמיחתי, שלב הניצן המוקדם, פריחה מוקדמת, פריחה ושלב התרמילים הירוקים. המפרק השביעי מבסיס כל גבעול נחתך והוצב במבחנה של 50 mL המכילה תערובת של 50:50 של אתנול 200-proof ומים אולטרה-טהורים לאחסון עד להדגרה של חתכי הרוחב. שיטה זו פותחה בהתבסס על עבודות שבוצעו בעבר על ידי קבוצת המעבדה בשנות ה-90, שבהן נבחר המפרק השביעי כיחידת המחקר4,6.
In vitro inkובציה עם נוזל קישקיע (rumen fluid) וצביעה היסטולוגית של גבעולי אלפאלפא שימשו להשגת תובנות לגבי דפוסי השקיעה של רכיבי דופן התא ברקמות גבעול שעברו פירוק. הדגראציות in vitro סימולטו את מידת הפירוק שעובר גבעול אלפאלפא בקישקיע, וצביעה היסטולוגית עוקבת הדגישה ליגנין ופקטין בתאים שבהם רכיבי דופן תא אלו נותרו ניתנים לזיהוי לאחר עיכול מיקרוביאלי מתוזמן. השימוש במיקרוטום חולק (sliding microtome) הבטיח עובי חתך סטנדרטי כדי למזער ארטיפקטים של חיתוך שעלולים להפריע לתוצאות13. למרות שרק ליגנין ופקטין נבחנו בפרוטוקול הנוכחי, ניתן להשתמש בצבעים חלופיים כגון toluidine blue, Astra blue ו-Direct Red 23 לצביעה היסטולוגית של רכיבים אלו ושל רכיבים אחרים של דופן התא14,15,16. בנוסף, ניתן להשתמש באור מקוטב כדי לזהות תאית (cellulose) בדפנות התא, וריאגנטים פלואורסצנטיים כגון safranin O יכולים להמחיש ליגנין17 ופוליסכרידים של דופן התא. יתרה מכך, ניתן להשתמש בנוגדנים כדי לסמן פקטינים ספציפיים18. מעבר לאלפאלפא, ניתן להחיל פרוטוקול זה על מינים אחרים. עם זאת, תגובות הצביעה עשויות להשתנות בין מינים, גנוטיפים, שלבי התפתחות ותנאים סביבתיים19.
השימוש בסרט דבק דו-צדדי בעלות נמוכה להדבקת חתכי רוחב של גבעולים לשקופיות זכוכית תואר בעבר6,20. לפני תחילת פרוטוקול אינקובציה זה in vitro, היה צורך לזהות סרט דבק דו-צדדי שיוכל לעמוד בטבילה בנוזל למשך מספר ימים ויהיה זמין לרכישה. נבחנו מספר סוגי סרטי דבק השונים בשימוש התעשייתי המיועד ובבעוביהם. בקצרה, חתיכות של סרט דבק דו-צדדי באורך של 1 אינץ' וחתכי רוחב של גבעולים הודבקו לשקופיות זכוכית והוטבלו במים למשך פרקי זמן משתנים לאורך שבוע אחד, כדי לקבוע אם הם נשארים דבוקים לשקופיות. חלק מסרטי הדבק הדו-צדדיים נפרדו משקופיות הזכוכית, בעוד שאחרים הפכו למעורפלים לאחר חשיפה ממושכת לנוזל. אובדן השקיפות של הסרט הפריע למיקרוסקופיה ומנע השגת תמונות באיכות גבוהה של חתכי הרוחב של הגבעולים. סרט דבק דו-צדדי מויניל הניב את התוצאות הטובות ביותר מבין הדבקים שנבחנו. הסרט שנעשה בו שימוש בניסויים המקוריים נרכש בשנות ה-90 ונותר יעיל; עם זאת, לא ניתן היה להשיג את אותו המוצר עבור ניסויים מאוחרים יותר. לפיכך, יש לבחון את הסרט שנבחר לפני השימוש כדי להבטיח שגם הסרט וגם חתכי הרוחב יישארו דבוקים לאורך כל תקופת האינקובציה. על הסרט להישאר שקוף כדי לאפשר השגת תמונות באיכות גבוהה.
חלק האינקובציה in vitro של הפרוטוקול כלל מספר שלבים רגישים לזמן שדרשו תכנון ותיאום קפדניים. הזמן הכולל הנדרש להליך האינקובציה in vitro עשוי להשתנות בהתאם לגודל הניסוי. לדוגמה, כדי להפיק סט נתונים רחב של חתכים רוחביים של גבעולים, ארבעה גבעולי אלפאס (alfalfa) ייחודיים הוצמדו לכל שקופית עבור כל שילוב של דגימה × מרווח זמן אינקובציה in vitro × צבע. עם 16 דגימות, שישה מרווחי אינקובציה ושני סוגי צבע, נדרשו סך הכל 768 חתכים רוחביים של גבעולים עבור כל סבב אינקובציה in vitro. נדרשו כ-8 h להכנת 768 החתכים הרוחביים, אותם ניתן היה לאחסן למשך הלילה בצלחות פטרי המכילות מים אולטרה-טהורים ולהצמידם למשקוף למחרת. לפני ההצמדה, נדרשה תיוג של 192 שקופיות זכוכית ו-96 מבחנות צנטריפוגה (50 mL). הצמדת החתכים הרוחביים דרשה 8 h נוספים מכיוון שהחתכים סודרו באופן עקבי על פני מרווחי האינקובציה והצבעים כדי להקל על ההשוואות בין רקמות הגבעול. גישה זו דרשה זמן רב יותר מאשר הצמדה אקראית של החתכים הרוחביים. השקופיות המוצמדות אוחסרו למשך הלילה במים אולטרה-טהורים לפני תחילת האינקובציה in vitro למחרת. בזמן שהוכנו והוצמדו חתכי גבעולי האלפאס, נדרשה גם הכנה של בופר מקדוגאל (McDougall’s buffer). ניתן היה להכין את הבופר לא יותר מ-2 ימים לפני תחילת האינקובציה in vitro, והוא הצריך חימום ל-39 °C לפני ה接種 (inoculation) של החתכים הרוחביים המוצמדים. לכן, תכנון והכנה קפדניים היו הכרחיים להשלמה מוצלחת של הפרוטוקול.
צביעת Wiesner משמשת בדרך כלל להדמיה של מבנים הקשורים לליגנין ברקמות צמחים. למרות ששיטת צביעה זו פשוטה יחסית21 וספציפית במידה סבירה22, היא צובעת קבוצות קצה של cinnamaldehyde הקשורות ליחידות ליגנין מסוג guaiacyl (G)13. בצמחים מכסיתיים דו-שבתיים כגון אלפאפה, יחידות G ו-syringyl (S) הן המרכיבים העיקריים של פולימר הליגנין, אם כי נוכחות של תתי-יחידות בעלות טבעת H קיימת גם היא. לכן, צביעת Wiesner עלולה להמעיט בערך של סך הליגנין בגבעול מכיוון שהיא אינה מגיבה עם ליגנין S. יחידות G ו-S עשויות להיות נוכחות גם בחylem interfascicular ובסיבי phloem ראשוניים (כלומר, רקמות sclerenchyma); לפיכך, אף על פי שיחידות S עשויות שלא להגיב לצביעת Wiesner, צביעה של יחידות G יכולה להעיד על נוכחות של מבנים הקשורים לליגנין ברקמות אלו. צביעת Mäule עשויה לשמש להדמיית יחידות S ולספק ייצוג מלא יותר של יחידות הליגנין בגבעול13. שונות בעוצמת הצביעה של פקטין ב-ruthenium red עשויה להתרחש גם היא, בהתאם למצב האסטריפיקציה או דה-אסטריפיקציה של חומצה פקטית23. הצביעה יכולה לנוע מגוון צהוב-כתום ועד לגוון אדום בהיר. מכיוון ש-ruthenium red יכולה להגיב עם מספר פחמימות, שימוש בצביעה זו עלול להוביל להערכת חסר של הפקטין ברקמות11. מכיוון שפרופורציית הליגנין עולה עם התבגרות גבעול האלפאפה, הליגנין עשוי גם הוא להפריע לצביעת הפקטין בגבעולים מבוגרים יותר. הבחנה חזותית בין גוונים שונים של צבע נתון עשויה להיות קשה; עם זאת, טכנולוגיות לניתוח תמונה עשויות לסייע בהסרה של מגבלה זו.
בעקבות דגירה in vitro עם נוזל מעי (rumen fluid) וצביעה היסטולוגית, ניתן להדמות חתכי גבעול תחת מיקרוסקופ ולרכוש תמונות לצורך ניתוח מאוחר יותר. מכיוון שצביעת Wiesner דוהה תוך 24 שעות9, יש להשלים את הניתוח המיקרוסקופי בשדה בהיר (brightfield) של גבעולים שנצבעו לליגנין באותו היום של הצביעה, באופן אידיאלי בתוך 6–8 שעות, כדי להבטיח צבע אחיד בין התמונות. צביעת ruthenium red שומרת על עצימותה לאורך זמן; לכן, הדמיה באותו היום פחות קריטית. עם זאת, תמונות שנצבעו ב-ruthenium red נרכשו גם הן בתוך 6–8 שעות למען העקביות. התמונות נרכשו באמצעות מצלמה מיקרוסקופית צבעונית דיגיטלית ברזולוציה גבוהה ובהגדרה גבוהה, המצוידת בחיישן תמונה CMOS בפורמט גדול. נעשה שימוש באותם הגדרות חשיפה, הגבר אנלוגי, עומק ביטים, איכות תמונה ומיקוד כדי להבטיח השוותיות בין התמונות ולמזער שונות הנובעת מהבדלים בהגדרות הרכישה. זמן החשיפה הותאם להגדלה (10×, 20×, ו-40×) כדי למנוע חשיפת יתר או חשיפה חסרה ולהפיק תמונות באיכות גבוהה. לפיכך, יש לבצע השוואות בין תמונות שנרכשו באותה הגדלה כדי למזער את השונות הקשורה להגדרות חשיפה שונות. הגדרות ההדמיה עשויות לדרוש התאמה בהתאם למיקרוסקופ ולמצלמה שבהם נעשה שימוש (טבלה 1). טכניקות מיקרוסקופיה אחרות, כולל מיקרוסקופיית אלקטרונים סורקת 6,20 ומיקרוסקופיית פלואורסצנציה14,15,17, שימשו אף הן להדמיית רכיבי דופן התא, אם כי בפרוטוקול הנוכחי נעשה שימוש במיקרוסקופיה בשדה בהיר.
פרוטוקול זה הניב מערך נתונים גדול של תמונות חתך רוחב של גבעולים (>15,000), אשר ניתן לנצל כדי להרחיב את המידע האיכותי שהופק בפרוטוקול זה באמצעות צביעה היסטולוגית לכיוון ניתוח כמותי באמצעות טכנולוגיות למידת מכונה. צינורות עיבוד (pipelines) יעילים לניתוח תמונות יכולים להפוך לאוטומטיים ולהאיץ את חילוץ הנתונים הכמותיים מהתמונות. שיתוף פעולה עם מדעני מחשב יכול לסייע בפיתוח כלים לעיבוד מקדימה של תמונות, להסרת רעשים חיצוניים ולחילוץ מאפיינים רלוונטיים לצורך בחינת השערות מרובות. גישות של למידת מכונה דורשות מערכי נתונים מתאימים לאימון ולבדיקה בגודל מספיק כדי להבטיח ביצועים חסונים (robust) של המודל. ניתן לנתח מערכי נתונים קטנים יותר באמצעות גישות פשוטות יותר לניתוח תמונות, כגון מדידה ידנית של תכונות רלוונטיות באמצעות תוכנה לניתוח תמונות כגון ImageJ24 או באמצעות תוכנה לניתוח תמונות הנלווית למיקרוסקופ25. לפיכך, התחשבות בשימוש המתוכנן של התמונות בשלבים הבאים יכולה לשפר את היעילות בקביעת סוג ומספר התמונות שיש לרכוש, כמו גם את גישת הניתוח העוקבת.
גילויים
המחברים מצהירים כי המחקר נערך ללא כל מערכות יחסים מסחריות או פיננסיות שעלולות להיחשב כניגוד עניינים פוטנציאלי. אזכור של שמות מסחריים או מוצרים מסחריים בפרסום זה נועד אך ורק למטרת מתן מידע ספציפי ואינו מרמז על המלצה או תמיכה מצד משרד החקלאות של ארה"ב (U.S. Department of Agriculture). ה-USDA הוא ספק ומעסיק המעניק שוויון הזדמנויות. כל הניסויים בוצעו בהתאם לחוקים הנוכחיים של ארצות הברית, המדינה שבה הם נערכו.
תודות
המחברים מודים ל-R. Ted Jeo על תובנותיו בנוגע לעבודות קודמות רלוונטיות. תודה למרכז הדימוג של אוניברסיטת מינסוטה - טווין סיטיז על מתן גישה לתוכנות רכישת וניתוח תמונות מיקרוסקופ לצורך הכנת התמונות לפרסום. עבודה זו נתמכה על ידי משרד החקלאות של ארצות הברית – שירות המחקר החקלאי [062-21500-001-000D] והסכם שיתוף פעולה ללא סיוע (מס' 58-5062-2-016).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| נייר אלומינום | Boardwalk | 7106BW | 18 אינץ' × 1,000 רגל; משמש להגנה של תמיסות צביעה רגישות לאור מפני אור |
| קלציום כלוריד דיהידראט, מינימום 99% | Sigma Life Science | C7902-500G | מספר CAS 10035-04-8; ריאגנט עבור McDougall’בופר s |
| תוכנת מצלמה | Nikon | NIS-Elements AR 5.42.04 | תוכנת דימות ב-64 סיביות המשמשת לרכישת תמונות ולניתוחן |
| גז פחמן דו-חמצני | Matheson | UN1013 | בדרגת שימוש כללית; משמש לשמירה על תנאים אנוקסיים במהלך ההכנה והאינקובציה |
| מקלחת מים עם סירקולטור | דיוק | — | אמבט מים מחזיר עם בקרת טמפרטורה המשמש לשמירה על דגימות ב- 39 °C |
| תקן לגבעולי תירס | אוניברסיטת מינסוטה | לא ניתן לספק תרגום כיוון שלא הוזן טקסט מקור. נא להזין את הטקסט באנגלית שברצונך לתרגם. | נקצר בסתיו 2023 בסנט פול, מינסוטה, ארה"ב; נטחן לגודל של 1 מ"מ ושימש כתשתית מיקרוביאלית |
| זכוכית כיסוי | Thermo Scientific | 3419 | 24 מ"מ × 30 מ"מ, עובי מס' 1.5, 1 אונקיה |
| מצלמת מיקרוסקופ Digital Sight 10 צבעונית עם חיישן תמונה CMOS בפורמט רחב FX | Nikon | MQA20000 | מצלמת צבע דיגיטלית המשמשת לרכישת תמונות מיקרוסקופיות בשדה בהיר (brightfield) |
| מיקרוסקופ דיסקשן (מיקרוסקופ להבדילה) | Nikon | SMZ18 | מיקרוסקופ סטריאו המשמש להכוון ומיקום של חתכי רוחב של גבעולים |
| סרט דביק דו-צדדי | סרט הדבקה דו-צדדי מויניל למשרד של SelloTape | 4270 | 2 ממ"׳ × 53 מ'; משמש לקיבוע חתכי רוחב של גבעול לשיםות זכוכית |
| מאזנ דיגיטלי | וְ | GH-202 | מאזניים אנליטיים עם רזולוציה של ארבע ספרות אחרי הנקודה |
| בקבוק ארלנמייר (125 מ"ל) | Kimax | 25600 | בקראי 125 מ"ל; תואם לפקק מס' 5 |
| בקבוק ארלנמייר (25 מ"ל) | Pyrex | 4980 | בקבוקון בנפח 25 מ"ל; תואם פקק מס' 0 |
| אתנול (200 proof) | Fisher Scientific | 04-355-720 | אתנול מוחלט המשמש להכנת תמיסות צביעה ולשטיפות טרום-צביעה |
| בידוד קצף פוליסטירן קשיח מוקצף (XPS) | Owens Corning | 1407788 | 1 אינץ' × 2 רגל × לוח קצף בעובי 2 רגל, R-5, 15 PSI; משמש לתמיכה במפרקי הגבעול במהלך חיתוך נתחים |
| פינצטה | Fisher Scientific | 10-316A | פינצטות מעבדה המשמשות לטיפול במקטעי גבעול, זכוכיות מיקרוסקופ וחתכים מורכבים |
| זכוכית למשטחי דגימה | FisherBrand | 125503 | 25 מ"מ × 75 מ"מ × 1 מ"מ; משמש להרכבת חתכים רוחביים של הגבעול |
| בקבוע עגול (6 ליטר) | Pyrex | CLS43205L-4EA | בקבוק זכוכית בנפח 6 ליטר המשמש להכנה או לטיפול בנפחים גדולים של תמיסות |
| גליצרין, נוזל בדרגת מעבדה | Fisher Science Education | 525342C | מספר CAS 56-81-5; גליצרול המשמש בתמיסות קיבוע ואחסון |
| בד גזה כפול, דרגה 50 | חנות JINIOHEE | B0FL27KXRN | 100% כותנה, מולבנת בלבן; משמשת לסינון חומר מהקימע (rumen) ונוזל קימע |
| משיח מדורג (10 מ"ל) | Pyrex | 700024 | משורה של 10 מ"ל המשמשת למדידת נפחי נוזלים |
| חומצה הידרוכלורית | Fisher | A1445-500 | מספר CAS 7647-01-0; משמש עם פלורוגלוצינול להכנת צבע ויסנר (Wiesner stain) |
| טוש פרמננטי תעשייתי חזק במיוחד | Sharpie | 13601 | כתף דקה; משמשת לסימון מבחנות דגירה בסימונים עמידים למים |
| L-cysteine hydrochloride hydrate | Sigma-Aldrich | C121800-10G | מספר CAS 345909-32-2; חומר מחזר המשמש להכנת תמיסת האינקובציה |
| נייר סופג דל-סיבים | Kimberly-Clark | 34155 | 4.5 אינץ' × 8.5 אינץ'; משמש לספיגת שאריות נוזלים מהשקופיות ללא השארת סיבים |
| להב מיקרוטום בעל פרופיל נמוך | Leica 819 | 63065-LP | להב חלופי בעל פרופיל נמוך המשמש להכנת חתכים רוחביים אחידים של גבעול |
| מגנזיום סולפט הפטהידראט | Fisher Chemical | M80-500 | מספר CAS 10034-99-8; ריאגנט עבור McDougall’בופר s |
| מגנט לערבוב | Fisher Scientific | 03-411-783 | 76 מ"מ × 12 מ"מ; משמש לערבוב בופר ותמיסוֹת הדבקה |
| תוויות לכתובות למשלוח בדואר | Avery | 5167 | 1/2 אינץ' × 1 3/4 אינץ'; משמש לזיהוי דגימות ושלשויות |
| מברשת צבע | לואו-קורנל | — | סדרה 7000, מספר 3 עגולה; מברשת עדינה המשמשת להעברה ולמניפולציה של חתכי רוחב של גבעול |
| צלוחיות פטרי עם מכסים | כלי מעבדה של Becton Dickinson | 81731119 | 60 מ"מ × 15 מ"מ; משמש לאחסון זמני של חתכי רוחב של גבעול במים אולטרה-טהורים |
| פלורוגלוצינול, 1,3,5-טריהידרוקסיבנזן | Sigma-Aldrich | P3502-25G | מספר CAS 108-73-6; ריאגנט המשמש להכנת צבע ויסנר (Wiesner stain) |
| פיפטה (100 μL) | Gilson | P 1000; 767547M | פיפט עם נפח מתכוונן המשמש לחלוקת תמיסות צביעה |
| משפך פלסטיק רב-שימושי | Nalgene | 10-437-23E | 150 מ"מ; משמש להעברת ריאגנטים ולסינון |
| ביקר פוליפרופילן (4 ליטר) | Nalgene | 1201-4000 | ביקר בנפח 4 ליטר העמיד לכימיקלים, המשמש להכנה ולערבוב של תמיסות הַחְדָּרָה (inoculation) |
| אשלגן כלוריד | Fisher Chemical | P217-500 | מספר CAS 7447-40-7; ריאגנט עבור McDougall’בופר s |
| סכיני גילוח | פרסונה | 66-0089 | בעובי 0.009 אינץ'; משמש לקיצור ידני של חומרי גבעול |
| רותניום אדום, רותניום אוקסיכלוריד מאמוני | סיגמא | R-2751 | מספר CAS 11103-72-3; צבע היסטולוגי המשמש להדגשת חומרים פקטיים |
| מספריים | Fiskars | 1063071 | מספריים רב-תכליתיים המשמשים לחיתוך סרט הדבקה, קצף וחומרים מתכלים אחרים |
| מבחנות צנטריפוגה קוניות עם פקק הברגה (50 מ"ל) | Corning | 430828 | פוליפרופילן, לא פירוגני; משמש להחזקת דגימות, אינקובציה, שטיפה ואחסון |
| מיקרוטום סלדג' (Sledge microtome) | Leica | 2000R | מיקרוטום להחלקה/מזחלה המשמש להכנת 100 μm-חתכים רוחביים עבים של הגבעול |
| נתרן ביקרבונט, בדרגת ACS | Fisher Chemical | S233-3 | מספר CAS 144-55-8; ריאגנט עבור McDougall’בופר s |
| נתרן כלוריד | Fisher Chemical | — | מספר CAS 7647-14-5; ריאגנט עבור McDougall’בופר s |
| נתרן הידרוקסיד | Fisher Chemical | S318-500 | מספר CAS 1310-73-2; משמש להכנת תמיסת החמצון |
| נתרן פוספט דו-בסיסי אנידרי (Na2HPO4) | Sigma Aldrich | S-9763 | CAS 7558-79-4 |
| סודיום סולפיד ללא מים (anhydrate), בדרגת ACS, מינימום 98.0% | Oakwood Chemicals | 245960 | מספר CAS 1313-84-4; חומר מחזר המשמש להכנת תמיסת האינקובציה |
| כף מעבדה מסוג Spoonula | Fisher Scientific | 14-375-10 | שפכטל מעבדה המשמש להעברת ריאגנטים באבקה |
| פלטת ערבוב | ThermolyneK של Sybron | 7200 | פלטת ערבוב מגנטית המשמשת לערבוב של תמיסות בופר ותמיסות הדבקה |
| מזרק (60 מ"ל) עם מחט רחבה | Monoject | 935401028 | מזרק של 60 מ"ל עם מחט רחבת קוטר המשמש להזרקת תמיסת ההוצאה (inoculation solution) |
| מתקני מבחנות | Thermo Scientific | 14-809-44 | מעמדים המשמשים לארגון ותמיכה במבחנות דגירה של 50 מ"ל |
| מדחום | FisherBrand | 13201663 | מדחום מעבדה המשמש לאימות טמפרטורת התמיסה ואמבט המים |
| מיקרוסקופ אנכי | Nikon | Eclipse Ni | מיקרוסקופ שדה בהיר (Brightfield) זקוף המשמש להדמיה וויזואליזציה של חתכי רוחב צבועים של גבעול |
| משאבת עזר | Little Giant Pump Co. | 502203 | דגם 2E-38N; 115 VAC, 60 Hz, 1.7 A; משמש להזרמת מים ולשמירה על טמפרטורת אמבט אחידה |
| נייר שקילה | VWR Scientific Products | 12578-165 | נייר שקילה חד-פעמי המשמש לשקילה ולהעברה של ריאגנטים מוצקים ומצע גבעולי תירס |
מקורות
- Cosgrove DJ. Growth of the plant cell wall. Nature Reviews Molecular Cell Biology. 2005;6(11):850-861.
- Moore KJ, Jung H-JG. Lignin and fiber digestion. Journal of Range Management. 2001;54(4):420-430.
- Barros J, Serk H, Granlund I, Pesquet E. The cell biology of lignification in higher plants. Annals of Botany. 2015;115(7):1053-1074.
- Jung HG, Engels FM. Alfalfa stem tissues: cell wall deposition, composition, and degradability. Crop Science. 2002;42(2):524-534.
- Jung HG, Lamb JFS. Stem morphological and cell wall traits associated with divergent in vitro neutral detergent fiber digestibility in alfalfa clones. Crop Science. 2006;46(5):2054-2061.
- Engels FM, Jung HG. Alfalfa stem tissues: cell-wall development and lignification. Annals of Botany. 1998;82(5):561-568.
- Akin DE. Section to slide technique for study of forage anatomy and digestion. Crop Science. 1982;22(2):444-446.
- Jung HG, Deetz DA. Cell wall lignification and degradability. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:315-346.
- Blaschek L, et al. Cellular and genetic regulation of coniferaldehyde incorporation in lignin of herbaceous and woody plants by quantitative Wiesner staining. Frontiers in Plant Science. 2020;11:109.
- Blaschek L, et al. Different combinations of laccase paralogs nonredundantly control the amount and composition of lignin in specific cell types and cell wall layers in Arabidopsis. The Plant Cell. 2023;35(2):889-909.
- Nevins DJ. Analysis of forage cell wall polysaccharides. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:105-132.
- Xu Z, Heuschele DJ, Lamb JFS, Jung H-JG, Samac DA. Improved forage quality in alfalfa (Medicago sativa L.) via selection for increased stem fiber digestibility. Agronomy. 2023;13(3):770.
- Pradhan Mitra P, Loqué D. Histochemical staining of Arabidopsis thaliana secondary cell wall elements. Journal of Visualized Experiments. 2014;(87):51381.
- De Micco V, Aronne G. Combined histochemistry and autofluorescence for identifying lignin distribution in cell walls. Biotechnic & Histochemistry. 2007;82(4–5):209-216.
- Kraus JE, et al. Astra Blue and Basic Fuchsin double staining of plant materials. Biotechnic & Histochemistry. 1998;73(5):235-243.
- Ursache R, Andersen TG, Marhavý P, Geldner N. A protocol for combining fluorescent proteins with histological stains for diverse cell wall components. The Plant Journal. 2018;93(2):399-412.
- Baldacci-Cresp F, et al. A rapid and quantitative safranin-based fluorescent microscopy method to evaluate cell wall lignification. The Plant Journal. 2020;102(5):1074-1089.
- Casero PJ, Knox JP. The monoclonal antibody JIM5 indicates patterns of pectin deposition in relation to pit fields at the plasma-membrane-face of tomato pericarp cell walls. Protoplasma. 1995;188(1-2):133-137.
- Pesquet E, Cesarino I, Kajita S, Pawlowski K. Physiological roles of lignins – tuning cell wall hygroscopy and biomechanics. New Phytologist. 2025;248(6):2674-2706.
- Jung HG, Engels FM. Alfalfa stem tissues: rate and extent of cell-wall thinning during ruminal degradation. NJAS: Wageningen Journal of Life Sciences. 2001;49(1):3-13.
- Yeung EC. A beginner’s guide to the study of plant structure. Tested Studies for Laboratory Teaching. 1998;19:125-142.
- Jensen, W.A. Botanical Histochemistry: Principles and Practice. Freeman W.H. & Co. San Francisco, CA. (1962).
- Ruzin, SE. Plant Microtechnique and Microscopy. Oxford University Press; New York, NY; 1999.
- Gronwald JW, Bucciarelli B. Comparison of stem morphology and anatomy of two alfalfa clonal lines exhibiting divergent cell wall composition. Journal of the Science of Food and Agriculture. 2013;93(11):2858-2863.
- Dai R, et al. Overexpression MsJAR1 gene increased lateral branches and plant height in alfalfa (Medicago sativa L.). Scientific Reports. 2025;15(1):16956.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב