פרוטוקול זה מציג שיטה ליצירת אורגנואידים כלי דם באמצעות תאי גזע פלוריפוטנטיים מושראים של בני אדם.
מאמר שיטה
פרוטוקול מיוטב ליצירת אורגנואידים וסקולריים מתאי גזע אנושיים רב-עצורים מושריים
במאמר זה
סיכום
תקציר
אורגנואידים וסקולריים המופקים מתאי גזע פלוריפוטנטיים אנושיים (hPSCs) התגלו כמודלים תלת-ממדיים עוצמתיים לחקר התפתחות כלי דם, מנגנוני מחלות ותגובות לתרופות. פרוטוקולים נוכחיים לאורגנואידים וסקולריים מאפשרים יצירה של רשתות אנדותל-פריציט המארגנות את עצמן; עם זאת, שונות בין סדרות (batch-to-batch variability), יצירה לא עקבית של אורגנואידים וכיסוי פריציטים לא מספק עלולים לפגוע בחזרתיות ובסקביליות. מחקר זה מציג פרוטוקול אופטימלי ליצירת אורגנואידים וסקולריים מתאי גזע פלוריפוטנטיים אנושיים מושריים (hiPSCs) עם שיפור בחזרתיות ובעקביות המבנית. שינויים מרכזיים כוללים תנאים מזוקקים ליצירת גופי Embryoid, ריכוזים ותזמון אופטימליים של גורמי גדילה במהלך השראת המזודרם והספציפיקציה הוסקולרית, ותנאי תרבית תלת-ממדיים משופרים המעודדים גיוס פריציטים חסון ואינטראקציות בין אנדותל לפריציטים. האורגנואידים האופטימליים מראים רשתות אנדותל חיוביות ל-CD31 בעלות הסתעפות גבוהה, העטופות בעקביות על ידי פריציטים חיוביים ל-PDGFR-β, עם שונות מופחתת משמעותית בין סדרות בהשוואה לפרוטוקול המקורי. סרטוני הדרכה מפורטים, שלב אחר שלב, מסופקים ליצירת האורגנואידים, אפיון באמצעות אימונופלורסנציה של דגימות שלמות (whole-mount) והערכת בקרת איכות. שיטה אופטימלית זו מאפשרת ייצור סקבילי של אורגנואידים וסקולריים באיכות גבוהה המתאימים לחקר אינטראקציות בין תאים וסקולריים, מידול מחלות וסריקת תרכובות, ובכך היא מפחיתה את החסם הטכני עבור מעבדות השואפות לאמץ מערכת מודל זו.
מבוא
אורגנואידים תלת-ממדיים (3D) הפכו לכלים רב עוצמה למידול התפתחות איברים ומחלות אנושיות in vitro, והם מציעים ביומימיקרי מבני ורלוונטיות פתופיזיולוגית עדיפה בהשוואה למודלים קונבנציונליים של תרביות תאים דו-ממדיות1,2. בשנים האחרונות, אורגנואידים המופקים מתאי גזע פלוריפוטנטיים אנושיים (hPSC) הוקמו בהצלחה עבור סוגי רקמות מרובים, כולל המעי3, המוח4,5, הכליה6, הכבד7,8, והרשתית9. עם זאת, אתגר מרכזי במחקרים מבוססי אורגנואידים הוא וסקולריזציה (היווצרות כלי דם) לא מספקת במהלך תרבית ארוכת טווח, מה שעלול להוביל להיפוקסיה ולנמק, ובכך לעכב את התרחבותם והבידול של האורגנואידים10,11. כדי להתגבר על מגבלה זו, הוצגו אסטרטגיות שונות של תרבית משולבת (co-culture), כולל שילוב של תאי אנדותל או תאי גזע מזנכימליים כדי לעודד יצירת רשת כלי דם12,13. עם זאת, תרביות דו-ממדיות קונבנציונליות ומודלים של בעלי חיים אינם משחזרים באופן מלא את הביולוגיה הווסקולרית האנושית, בעוד שגישות של תרבית משולבת מוסיפות מורכבות ניסויית נוספת14. לפיכך, אורגנואידים וסקולריים המסוגלים לבצע וסקולריזציה אוטונומית מציעים חלופה מבטיחה ורלוונטית לבני אדם15.
היווצרות רשתות כלי דם כוללת הן וסקולוגנזה (vasculogenesis) והן אנגיוגנזה (angiogenesis), המנוהלות באמצעות אינטראקציות בין תאים אנדותליאליים לתאי דופן (mural cells), כגון פריציטים ותאי שריר חלק כליים, והן מווסתות באופן הדוק על ידי מספר מולקולות סיגנלינג, כולל VEGF (vascular endothelial growth factor), TGF-β (transforming growth factor-β), PDGF (platelet-derived growth factor) ואנגיופואיטינים16. בשנת 2019, Wimmer ועמיתיו ביססו שיטה להפקה של אורגנואידים של כלי דם תלת-ממדיים בעלי הרכבה עצמית ישירות מ-hPSCs17,18. מערכת זו מייצרת בו-זמנית תאים אנדותליאליים ופריציטים, מה שמוביל לרשתות מיקרו-וסקולריות עם היווצרות לומן (lumen) וכיסוי של קרום בסיס. בהתבסס על פלטפורמה זו, נעשה שימוש באורגנואידים וסקולריים כדי למדל וסקולופתיה סוכרתית תחת גירוי של גלוקוז גבוה וציטוקינים פרו-דלקתיים (TNF-α ו-IL-6); אורגנואידים אלו משחזרים את העיבוי של קרום הבסיס, סימן היכר של פתולוגיה מיקרו-וסקולרית סוכרתית17. בנוסף, מודל זה שימש למחקר של מחלות וסקולריות תורשתיות וכפלטפורמה לסריקת רעילות וסקולרית19. לאחרונה, מספר מחקרים מונחי-שיטה ביקשו לאופטימיזציה של הפקת אורגנואידים וסקולריים. לדוגמה, התקדמות בריצוף RNA של תא בודד (single-cell RNA sequencing) זיהתה גורמים רגולטוריים מרכזיים, כגון MECOM ו-LEF1, ובכך סיפקה מסגרת מולקולרית לאפיון ואופטימיזציה של היווצרות אורגנואידים וסקולריים אנושיים. בנוסף, Xu וחב' הציגו בארות מיקרוסקופיות (microwells) כדי להקל על היווצרות הומוגנית של גופי עובר (embryoid bodies) ושילבו את תערובת ה-CEPT לשיפור חיוניות התאים, ובכך הפחיתו ביעילות את השונות בין סדרות ייצור20.
על מנת לשפר את ההומוגניות, השחזוריות והתפוקה של יצירת אורגנואידים כלי דם, הפרוטוקול המקורי שתואר על ידי Wimmer et al.17,18 עבר אופטימיזציה שיטתית כדי לטפל בכמה מגבלות מרכזיות. ראשית, הפרוטוקול המקורי משתמש באגרגציה טבעית בצלחות בעלות הידבקות נמוכה ליצירת גופי Embryoid, מה שעלול להוביל לשונות ניכרת בין סדרות בגודל האגרגטים, וכתוצאה מכך, ליעילות דיפרנציאציה הטרוגנית. בפרוטוקול שעבר אופטימיזציה, Polyvinyl alcohol (PVA) משולב עם ניעור אורביטלי במהלך יצירת האגרגטים כדי לקדם אגרגציה תאית אחידה ולשפר את העקביות בגודל גופי ה-Embryoid. שנית, הפרוטוקול המקורי משתמש בהחלפה מלאה של המדדיום במהלך שלב יצירת רשת כלי הדם, דבר שעלול לגרום לתנודות משמעותיות בריכוזי גורמי גדילה ולפגוע בניבּוּת כלי דם (vascular sprouting) מתמשכת ובגיוס פריציטים. בניגוד לכך, הפרוטוקול שעבר אופטימיזציה שומר על שליש מהמדדיום המותנה (conditioned medium) בכל החלפת מדדיום, כדי לשמר גורמים פרו-אנגיוגניים אנדוגניים ולהייצב את סביבת התרבית. שלישית, הפרוטוקול המקורי דורש העברות מרובות של צלחות במהלך בידוד והבשלת האורגנואידים, מה שמגביר את דרישות הטיפול ואת הסיכון לאובדן אורגנואידים. הפרוטוקול שעבר אופטימיזציה עוקף שלבים אלו על ידי העברה של אורגנואידים מבודדים באופן פרטני לבארים של צלחות 96-בארים בעלות הידבקות נמוכה, ובכך מפשט את ההליך ומגדיל את התפוקה. במקרה זה, פרוטוקול אופטימלי זה מספק נהלים מפורטים שלב אחר שלב ונקודות בקרה קריטיות לאיכות, כדי להנמיך את החסום הטכני לאימוץ מערכת מודל זו ולהקל על יישום רחב יותר של אורגנואידים כלי דם במחקרי התפתחות כלי דם, מנגנוני מחלות וסריקת תרופות בתפוקה גבוהה.
פרוטוקול
השימוש בתאי hPSCs במחקר זה אושר על ידי הוועדה לאתיקה ביו-רפואית של אוניברסיטת אנהוי (BECAHU_2026-010).
1. תחזוקה של תאי גזע פלוריפוטנטיים מושריים של בני אדם
הערה: יש לתחזק תאי גזע פלוריפוטנטיים מושגעיים מהם הופקו מבני אדם (hiPSCs) בתנאים ללא תאי מאכיל (feeder-free). יש לבצע את כל הפרוצדורות במCבטיחות ביולוגית Class II תוך שימוש בטכניקה אספטית.
- הכנת פלטות תרבית מצופות במטריצת קרום בסיס
- הוצא מבחנה של מטריצת קרום בסיס מ-−20 °C והפשר אותה ב-4 °C למשך לילה, בערך 12–16 שעות. הימנע ממחזורי הקפאה והפשרה חוזרים.
- ערבב היטב את מטריצת קרום הבסיס המופשרת תחת תנאים סטריליים וחלק אותה לאליקוואוטים לשימוש חד-פעמי (למשל, 1 mL לכל מבחנה). אחסן את האליקוואוטים ב-−20 °C למשך עד שנתיים.
הערה: שמור על מטריצת קרום הבסיס, הפפיטות, הטיפים והמבחנות קרים במהלך הטיפול כדי למנוע התמצקות מוקדמת. הימנע מהחדרת בועות אוויר. - הפשר את אליקוואוט מטריצת קרום הבסיס הדרוש על קרח. דלל את מטריצת קרום הבסיס ביחס של 1:200 ב-DMEM שקוילל מראש (5 µL של מטריצת קרום בסיס לכל 1 mL של DMEM; ריכוז סופי, בערך 5 µg/mL).
- ערבב את התמיסה בעדינות באמצעות פפיטה עד שלא יישארו חלקיקים גלויים.
- הוסף 0.5 mL של מטריצת קרום בסיס מדוללת לכל באער של פלטה בעלת 12 באערים. הטה וסובב בעדינות את הפלטה כדי לצפות את כל פני השטח התחתונים.
- דגור את הפלטה המצופה ב-37 °C באינקובטור עם 5% CO₂ למשך לפחות שעתיים או ב-4 °C למשך לילה.
הערה: אחסן פלטות מצופות ואטומות ב-4 °C למשך 1–2 שבועות. הבא את הפלטה לטמפרטורת החדר ושאב את תמיסת הציפוי מיד לפני השימוש.
- הפשרת hiPSCs
- הוצא מבחנה קריובית של hiPSCs קפואים מחנקן נוזלי והנח אותה מיד באמבט מים ב-37 °C. נער בעדינות את המבחנה והוצא אותה תוך דקה אחת, כאשר נותרו רק מספר גבישי קרח קטנים.
הערה: הימנע מחשיפה ממושכת לדימתיל סולפוקסיד (DMSO) ב-37 °C ומהפשרה חלקית, שכן שניהם עלולים להפחית את חיוניות התאים. - חטא את החלק החיצוני של המבחנה הקריובית עם אתנול 70% ופתח אותה בתוך מCבט ביולוגי.
- העבר לאט את תרחיף התאים בטיפות למבחנה קונית של 15 mL המכילה 3 mL של מצע תחזוקה מוגדר כימית ל-hPSC שחומם מראש, או מצע תחזוקה מוגדר כימית שווה ערך. ערבב בעדינות במהלך ההעברה כדי לדלל את ה-DMSO בהדרגה ולמזער עקה אוסמוטית.
- צנטריפוג את התאים ב-300 × g למשך 3 דקות בטמפרטורת החדר (22–24 °C) באמצעות רוטור עם דליים נעים (swinging-bucket).
- שאב בזהירות את הנוזל העליון מבלי להפריע למשקע התאים. השהה בעדינות את המשקע ב-1 mL של מצע תחזוקה מוגדר כימית ל-hPSC שחומם מראש.
הערה: השתמש בפפיטת P1000 ופפיט בעדינות 2–3 פעמים כדי למזער גזירה מכנית והיווצרות בועות.
- הוצא מבחנה קריובית של hiPSCs קפואים מחנקן נוזלי והנח אותה מיד באמבט מים ב-37 °C. נער בעדינות את המבחנה והוצא אותה תוך דקה אחת, כאשר נותרו רק מספר גבישי קרח קטנים.
- זריעה ותרבית של hiPSCs
- הוצא את פלטת 12 הבאערים המצופה מראש מהאינקובטור ושאב את תמיסת הציפוי. אל תשטוף את הבאערים.
- זרוע בערך 1 × 10⁵–2 × 10⁵ תאים חיוניים לכל באער לצורך התאוששות שגרתית לאחר הפשרה. התאם את הצפיפות בהתאם לקו ה-hiPSC ולדרישות הניסוי.
- הזרק את תרחיף התאים לאט לאורך הדופן של כל באער מבלי לגעת במשטח המצופה עם טיפ הפפיטה.
- הוסף Y-27632 לריכוז סופי של 5 µM כדי לקדם את הישרדות התאים והיצמדותם לאחר ההפשרה.
הערה: השתמש ב-Y-27632 רק במצע הזריעה הראשוני. החלף אותו במצע תחזוקה מוגדר כימית ל-hPSC ללא Y-27632 למחרת. - דגור את התאים ב-37 °C עם 5% CO₂ ולחות רוויה.
- בחן את היצמדות התאים והמורפולוגיה שלהם לאחר כ-16–24 שעות. שאב את המצע והחלף אותו במצע תחזוקה מוגדר כימית ל-hPSC טרי שחומם מראש וללא Y-27632.
- החלף את המצע מדי יום או מדי יומיים עד שהתאים יגיעו לכ-70%–80% התמלאות (confluency) לצורך מעבר (passaging) או דיפרנציאציה.
הערה: בחן את התרביות מדי יום. השתמש במושבות בעלות גבולות הדוקים ומוגדרים היטב, יחס גרעין-ציטופלזמה גבוה ודיפרנציאציה ספונטנית מינימלית.
2. יצירה ודיפרנציאציה של אגרגטים של hiPSC
הערה: תחזקו hiPSCs בתנאים ללא תאי מאכיל (feeder-free) במצע תחזוקה מוגדר כימית ל-hPSC על צלחות מצופות במטריקס של קרום הבסיס (basement membrane matrix). בצעו מעבר (Passage) לתאים כל 4–5 ימים באמצעות 0.02% EDTA. השתמשו בתרביות בעלות צפיפות זריעה וגודל מושבה מתאימים ועם מינימום התמיינות ספונטנית כדי למקסם את יעילות ההתמיינות הווסקולרית.
- הכנת תרחיף תאים בודדים
- שאבו את מצע התחזוקה המוגדר כימית עבור hPSC ושטפו את תאי ה-hiPSC ב-0.5 מ"ל של DMEM לכל באר בלוח בעל 6 בארות.
- שאבו את ה-DMEM והוסיפו 0.5 מ"ל של EDTA בריכוז 0.02% לכל באר. הדגירו בטמפרטורת החדר למשך 2–4 דקות ועקבו אחר התאים עד אשר יתחילו להפוך לעגולים.
- נתקו את התאים באמצעות פיפט P1000. בצעו פיפוט עדין 2–3 פעמים כדי לפרק את הצבירים לתלים של תאים בודדים.
- שחלו את התאים ב-5 מ"ל של מצע תחזוקה מוגדר כימית ל-hPSC והעבירו את התוךליית לפיפטה קונית של 15 מ"ל.
- ערבב 10 µL של תרחיף התאים עם 10 µL של תמיסת Trypan blue בריכוז 0.1%. טענו 10 µL של התערובת אל תוך תא ספירה וקבעו את מספר התאים החיים.
- חשבו את נפח תרחיף התאים הדרוש כדי לקבל 5 × 10⁵ תאים חיים לכל באר.
- סובב את התאים בצנטריפוגה במהירות של 300 × ג במשך 5 דקות בטמפרטורת החדר (22–23 °Cשאבו את הנוזל העליון (supernatant).
- ששוב את התאים במצע תחזוקה טרי ומוגדר כימית ל-hPSC המכיל 50 µM Y-27632 בנפח של 3 מ"ל לכל באר.
- היווצרות אגרגטים
- הוסיפו 3 מ"ל מת сусפנסיית התאים לכל באר בלוח 6 באערים בעל היצמדות נמוכה (low-attachment 6-well plate). הוסיפו PVA עד לריכוז סופי של 0.25%.
- הניחו את הפלטה על ניעור מסלולית (orbital shaker) במהירות של 50 סבובים לדקה (rpm) והדגרימו ב- 37 °C למשך יום אחד.
- אשרו את היווצרותם של אגרגטים בעל גבולות חלקים ובקוטר של כ-50–100 µm או יותר לפני שממשיכים.
- הערה: יש לבצע אופטימיזציה של תקופת האגרגציה עבור קווי hiPSC בודדים. יש להאריך את הדגירה ל-2–3 ימים במידת הצורך כדי להשיג אגרגטים בגודל הרצוי.
- השראת ברחמון (Mesoderm induction)
- ביום 0, העבירו את האגרגטים למבחנה קונית בנפח 15 מ"ל באמצעות פיפטה חד-פעמית סטרילית בנפח 10 מ"ל. שמרו את פלטת ההצמדה הנמוכה (low-attachment plate) המקורית לצורך זריעה מחדש.
- אפשרו לצברים לשקוע בכוח הכבידה למשך כ-15–20 דקות.
- הערה: יש לטפל בצבירים בעדינות ולהשתמש בשיקוע בכוח הכבידה במקום בצנטריפוגה כדי לצמצם נזק מכני.
- שאבו בזהירות את הנוזל העליון (supernatant) לאחר שהצבירים שקעו.
- השביה מחדש את הצברים ב-3 מ"ל למבב של מצע N2B27 בתוספת של 12 µM CHIR99021 ו-30 ננוגרם/מ"ל BMP-4.
- העבירו את הצבירים חזרה לפלטה בעלת היצמדות נמוכה (low-attachment plate) והדגרירו ב- 37 °C.
- העבירו את הצברים בעדינות באמצעות פיפטה P1000 פעם ביום, כדי לצמצם התמזגות מופרזת של הצברים. המשיכו באינדוקציית המזודרמה למשך 3 ימים.
- השראת שושלת כלי דם
- ביום ה-3, העבירו את הצבירים למבחנה קונוית של 15 מ"ל והניחו להם לשקוע בכוח הכבידה. שמרו את פלטת 6 הבארות המקורית.
- שאבו בזהירות את העילאי לאחר שהצברים שקעו.
- שחזרו את התלחיות (aggregates) ב-3 מ"ל למבחנה של מצע N2B27 המועשר ב-100 נג/מ"ל VEGF-A ו- 2 µM פורסקולין (forskolin).
- העבירו את האגרגטים בחזרה לפלטה בעלת 6 בארות עם הידבקות נמוכה (low-attachment 6-well plate) דגרו למשך יומיים נוספים.
3. יצירה של רשתות כלי דם ואורגנואידים
- הכנה של מטריצת קולגן I–קרום הבסיס (basement membrane matrix)
- אספו את האגרגטים שנוצרו בפלטה אחת בעלת 6 בארות לצורך השקה בפלטה אחת בעלת 12 בארות. השתמשו בכ-40–60 אגרגטים לכל בארה.
- הכינו תערובת מספקת של מטריצת קולגן I–קרום הבסיס כדי להוסיף שתי שכבות של 0.5 mL לכל בארה בפלטה בעלת 12 הבארות.
- הכינו 12 mL של מטריצה עבור פלטה אחת בעלת 12 בארות. שמרו את כל הרכיבים על קרח, הכינו את התערובת מיד לפני השימוש, והימנעו מהחדרת בועות אוויר.
- הוסיפו 0.5 mL של מטריצה לכל בארה בפלטה בעלת 12 הבארות. סובבו בעדינות את הפלטה כדי לפזר את המטריצה באופן אחיד.
- דגרו את הפלטה ב-37 °C למשך 2 שעות כדי לאפשר לשכבת המטריצה הראשונה להתמצק.
- השקה של האגרגטים
- העבירו את האגרגטים למבחנה קונית של 15 mL באמצעות פפיטה חד-פעמית סטרילית של 10 mL והמתינו עד ש ישקעו בכוח הכבידה.
- שאבו את העליון (supernatant) ושטפו את האגרגטים פעמיים עם 1 mL של מצע N2B27. הסירו כמה שיותר מצע שאריות לאחר השטיפה האחרונה.
- הכינו תערובת רעננה של מטריצת קולגן I–קרום הבסיס ושמרו אותה על קרח.
- סספנדו מחדש את האגרגטים השטופים בעדינות בתוך המטריצה שהוכנה טרי.
- הוציאו מהמדגרה את הפלטה בעלת 12 הבארות המכילה את השכבה הראשונה הממוצקת.
- הוסיפו 0.5 mL מהמטריצה המכילה את האגרגטים לכל בארה.
- נערו בעדינות את הפלטה למשך לא יותר מ-1 דקה כדי לפזר את האגרגטים באופן אחיד.
- דגרו מיד את הפלטה ב-37 °C למשך 2 שעות כדי לאפשר לשכבה השנייה להתמצק.
- השראה של ניבוב כלי דם (vascular sprouting)
- חממו מראש מצע N2B27 המועשר ב-15% FBS, 100 ng/mL VEGF-A ו-100 ng/mL FGF-2 לטמפרטורה של 37 °C.
- הוסיפו את המצע המועשר שחומם מראש לכל בארה כדי להשריע דיפרנציאציה וסקולרית.
- עקבו אחר התרביות לאיתור ניבוב כלי דם במהלך 1–3 הימים הבאים.
- הערה: חממו את המצע ל-37 °C לפני הוספתו לתרביות כדי לצמצם את דה-סטביליזציה של מטריצת הג'ל.
- החלפת מצע ותחזוקת התרבית
- בצעו את החלפת המצע הראשונה 3 ימים לאחר ההשקה.
- החליפו את המצע מדי יומיים לאחר מכן, תוך שימוש במצע N2B27 רענן המכיל 15% FBS, 100 ng/mL VEGF-A ו-100 ng/mL FGF-2.
- שמרו שליש מהמצע המותנה (conditioned medium) בכל החלפת מצע, והחליפו את שני השלישים הנותרים במצע מועשר רענן.
- המשיכו לבידוד אורגנואידים וסקולריים ביום 10.
4. הקמת אורגנואידים וסקולריים והכנה לצביעה
- בידוד של רשתות כלי דם בודדות
- החדירו את הקצה המעוגל של שפתולה (spatula) סטרילית לאורך דופן הבאר ונתקו בעדינות את מטריצת הג'ל מהתחתית.
- המשיכו להניע את השפתולה מדופן הבאר לעבר המרכז עד שכל מטריצת הג'ל תצוף בחופשיות.
- השתמשו בשתי מחטים סטריליות כדי להוציא רשתות כלי דם בודדות מהג'ל. הסירו כמה שיותר ממטריצת העודפים מבלי לפגוע ברשת כלי הדם.
- תרבית של אורגנואידים מבודדים
- העבירו כל אורגנואיד מבודד ישירות לבאר בודדת בלוח 96-בארים בעל היצמדות נמוכה (low-attachment) באמצעות פיפטה סטרילית חד-פעמית.
- הוסיפו 100 µL של מצע N2B27 המועשר ב-15% FBS, 100 ng/mL VEGF-A, ו-100 ng/mL FGF-2 לכל באר.
- הדגרימו את האורגנואידים למשך 5 ימים נוספים והחליפו את המצע המועשר מדי יום.
- וודאו כי האורגנואידים מראים מורפולוגיה עגולה ומעטפת מלאה עד היום ה-5 של ההבשלה.
- קיבוע של אורגנואידים של כלי דם
- העבירו אורגנואידים בשלים מורפולוגית לתוך מבחנות מיקרוצנטריפוגה בנפח 2 mL. עבדו לא יותר מכ-60 אורגנואידים למבחנה.
- שאבו בזהירות את המצע והוסיפו 4% paraformaldehyde (PFA) ב-PBS.
- קבעו את האורגנואידים בטמפרטורת החדר למשך 1 h.
זהירות: PFA רעיל וחשוד כחומר מסרטן. טיפול ב-PFA יתבצע במכסה מסיס כימיים תוך써 wearing ציוד מגן אישי מתאים. - שאבו את ה-PFA והחליפו אותו ב-PBS.
נקודת עצירה: ניתן לשמור אורגנואידי כלי דם מקובעים ב-PBS בטמפרטורה של 4 °C למשך עד חודש אחד.
5. צביעה ודימוי קונפוקאלי של אורגנואידים כלי דם
- חסימה (Blocking) וחדירות (Permeabilization)
- הוסיפו 2 mL של תמיסת חסימה לכל מבחנה המכילה אורגנואידים וסקולריים מקובעים.
- הציבו את המבחנות בצורה אנכית על שייקר אורביטלי והדגרימו עם ערבוב בטמפרטורת החדר למשך 2 שעות כדי לחסום ולהגביר את החדירות של האורגנואידים.
- דגירה עם נוגדן ראשוני
- שאבו את תמיסת החסימה והוסיפו 50–100 µL של נוגדן ראשוני המדולל 1:100 בתמיסת חסימה.
- הציבו את המבחנות במצב זקוף על שייקר והדגרימו עם ערבוב ב-4 °C למשך לילה.
- שטיפה ודגירה עם נוגדן שני
- שטפו את הדגימות שלוש פעמים עם PBST למשך 10–15 דקות לכל שטיפה. ערבבו את המבחנות המונחות אנכית במהלך כל שטיפה.
- הוסיפו נוגדן שני פלורסצנטי המדולל 1:300 בתמיסת חסימה.
- הדגרימו את הדגימות בטמפרטורת החדר למשך 2 שעות.
- צביעה נגדית של הגרעין ושטיפה סופית
- שטפו את הדגימות פעמיים עם PBST למשך 10–15 דקות לכל שטיפה.
- הוסיפו תמיסת Hoechst המדוללת 1:5,000 ב-PBS והדגרימו בטמפרטורת החדר למשך 10–15 דקות.
- שטפו את הדגימות עם PBS למשך 10–15 דקות.
- דימות קונפוקאלי
- העבירו את האורגנואידים הצבועים לצלוחיות לדימות קונפוקאלי.
- רכשו תמונות קונפוקאליות תוך שימוש בפרמטרי דימות עקביים בכל הקבוצות הניסיוניות.
- ניתוח תמונה כמותי של אורגנואידים וסקולריים
הערה: בצעו ניתוח תמונה כמותי באמצעות Fiji/ImageJ ו-AngioTool. שמרו על הגדרות רכישת מיקרוסקופ זהות בכל הקבוצות הניסיוניות.- מדידת קוטר אגרגאטים
- רכשו תמונות בשדה בהיר (bright-field) של אגרגאטים של hiPSC ביום 0 באמצעות מיקרוסקופ הפוך עם סרגל כיול. צלמו אגרגאטים מופרדים היטב וכללו סרגל קנה מידה.
- ייבאו כל תמונה ל-Fiji/ImageJ. שרטטו קו לאורך סרגל קנה המידה באמצעות כלי ה-Straight Line ובחרו Analyze > Set Scale.
- הזינו את המרחק והיחידה הידועים (למשל, 100 µm) ובחרו Global כדי להחיל את הכיול על כל התמונות בסשן.
- שרטטו קו לאורך הקוטר הרחב ביותר של כל אגרגאט באמצעות כלי ה-Straight Line. בחרו Analyze > Measure או לחצו Ctrl+M ורשמו את הקוטר ב-µm.
- מדדו לפחות 30 אגרגאטים לכל סדרה.
- עבור אגרגאטים שאינם כדוריים, תחמו כל אגרגאט באמצעות כלי הבחירה Oval או Polygon. בחרו Analyze > Set Measurements > Feret's diameter ורשמו את המדידה.
- ייצאו את המדידות מטבלת התוצאות (Results) ורכזו את הנתונים בגיליון אלקטרוני.
- חשבו את הממוצע, סטיית התקן (SD) ומקדם השונות (CV) לפי הנוסחה CV = SD/mean × 100% עבור כל סדרה.
- מדידת קוטר אורגנואידים
- רכשו תמונות בשדה בהיר של אורגנואידים וסקולריים בוגרים ביום 15 באמצעות מיקרוסקופ הפוך עם סרגל כיול. כללו סרגל קנה מידה בכל תמונה.
- ייבאו כל תמונה ל-Fiji/ImageJ וכיילו את קנה המידה כפי שמתואר בשלב זה.
- שרטטו קו לאורך הקוטר הרחב ביותר של כל אורגנואיד באמצעות כלי ה-Straight Line. בחרו Analyze > Measure או לחצו Ctrl+M ורשמו את הקוטר ב-µm.
- מדדו לפחות 30 אורגנואידים לכל סדרה.
- עבור אורגנואידים בעלי צורה לא סדירה, מדדו את הקוטרים הארוך והקצר ביותר וחשבו את הממוצע שלהם, או קבעו את קוטר Feret כפי שמתואר בשלב 5.6.1.6.
- ייצאו את המדידות וחשבו את הממוצע, ה-SD וה-CV עבור כל סדרה.
- כימות של שטח וסקולרי חיובי ל-CD31
- רכשו תמונות z-stack קונפוקאליות של אורגנואידים שלמים (whole-mount) מהיום ה-15 הצבועים ל-CD31. השתמשו בעוצמת לייזר, הגבר (gain), offset והגדרות pinhole זהות עבור כל הדגימות.
- ייצרו השצאות בעוצמה מקסימלית (MIPs) מה-z-stacks באמצעות תוכנת המיקרוסקופ או Fiji/ImageJ.
- החילו סף עוצמה (intensity threshold) כדי להפריד את הרשת הוסקולרית החיובית ל-CD31 תוך ה exclusion של אות הרקע.
- בחרו Process > Noise > Remove Outliers והשתמשו ברדיוס של 2–5 פיקסלים כדי להסיר ארטיפקטים קטנים. בחרו Process > Binary > Fill Holes כדי למלא חללים קטנים בתוך הרשת הוסקולרית.
- בחרו Analyze > Set Measurements והפעילו את Area ו- Area fraction. בחרו Analyze > Measure כדי לקבוע את השטח הוסקולרי.
- חשבו את השטח הוסקולרי החיובי ל-CD31 כאחוז מהשטח הכולל של האורגנואיד.
- נתחו לפחות שלושה אורגנואידים לכל סדרה משלוש סדרות עצמאיות. ייצאו את המדידות לניתוח סטטיסטי.
- כימות של כיסוי פריסייטים (pericytes) חיוביים ל-PDGFR-β
- רכשו תמונות z-stack קונפוקאליות של אורגנואידים שלמים מהיום ה-15 הצבועים ל-CD31 ו-PDGFR-β. ייצרו MIPs מה-z-stacks.
- ייבאו את ה-MIPs של CD31 ו-PDGFR-β ל-Fiji/ImageJ ואששו את יישור התמונות.
- החילו סף (threshold) על ערוץ CD31 כדי לייצר מסיכה בינארית המגדירה את הרשת הוסקולרית.
- החילו סף על ערוץ PDGFR-β באמצעות אותה גישת סגמנטציה כדי לייצר מסיכה בינארית של אות הפריסייטים.
- בחרו Process > Image Calculator והחילו את פעולת ה- AND על המסיכות של CD31 ו-PDGFR-β כדי לזהות פיקסלים חופפים.
- מדדו את השטח של האות החופף.
- חשבו את כיסוי הפריסייטים כ- (שטח חיובי ל-PDGFR-β בתוך כלי דם חיוביים ל-CD31 / סך השטח הוסקולרי החיובי ל-CD31) × 100%.
- נתחו לפחות שלושה אורגנואידים לכל סדרה משלוש סדרות עצמאיות. ייצאו את המדידות לניתוח סטטיסטי.
- ניתוח מדד הת branching באמצעות AngioTool
- רכשו תמונות z-stack קונפוקאליות של אורגנואידים שלמים מהיום ה-15 הצבועים ל-CD31. ייצרו MIPs מה-z-stacks.
- הפעילו את AngioTool וטענו את תמונת ה-MIP.
- הגדירו את קוטר כלי הדם בהתאם לקוטר כלי הדם הטיפוסי שנצפה בתמונות.
- כוון את סף העוצמה כדי להפריד את הרשת הוסקולרית תוך ה exclusion של אות הרקע. הגדירו את גודל כלי הדם המינימלי כדי להסיר ארטיפקטים קטנים.
- הריצו את הניתוח ורשמו את שטח כלי הדם, צפיפות כלי הדם, אורך כולל של כלי דם, מספר צומתים ומדד הת branching.
- אששו את תמונת הפלט על ידי אישור שמרשת כלי הדם תוחמה בצהוב, השלד הוסקולרי מוצג באדום ונקודות הפיצול מסומנות בנקודות כחולות.
- ייצאו את התוצאות הכמותיות מ-AngioTool.
- נתחו לפחות שלושה שדות ראייה לכל סדרה משלוש סדרות עצמאיות ורכזו את הנתונים לניתוח סטטיסטי.
- מדידת קוטר אגרגאטים
6. אנליזה כמותית של PCR בזמן אמת (real-time PCR) של אורגנואידים וסקולריים
הערה: יש לבצע את כל תהליכי בידוד ה-RNA וההליכים הבאים בתנאים נקיים מ-RNase.
- הפקת RNA
- אסוף 5–10 אורגנואידים כלי דם בוגרים מיום 15 לתוך מבחנה למיקרוצנטריפוגה של 1.5 mL נטולת RNase. הסר את שאריות המצע לחלוטין.
הערה: כאשר הדבר נחוץ, אחת את מספר אורגנואידים כדי להשיג כמות RNA מספקת. - הוסף 350 µL של לysis buffer (בופר ליזיס) מועשר ב-1% β-mercaptoethanol.
- בצע פיפטינג של הדגימות 10–15 פעמים עד שהאורגנואידים יעברו ליזיס מלא.
- העבר את הליזט לעמודת ספין להסרת DNA גנומי הממוקמת במבחנת איסוף. צנטריפוגה במהירות של 11,000 × g למשך 30 s בטמפרטורת החדר.
- השלך את העמודה ושמור את הנוזל שעבר (flow-through).
- הוסף לנשפש נפח שווה של אתנול 70%, כ-350 µL, וערוב היטב באמצעות פיפטינג.
- העבר עד 700 µL מהתערובת לעמודת ספין ל-RNA הממוקמת במבחנת איסוף. צנטריפוגה במהירות של 11,000 × g למשך 30 s והשלך את הנוזל שעבר.
- הוסף 350 µL של wash buffer 1 (בופר שטיפה 1) לעמודה. צנטריפוגה במהירות של 11,000 × g למשך 30 s והשלך את הנוזל שעבר.
- הכן תערובת DNase I על ידי ערבוב של 10 µL של DNase I עם 70 µL של בופר עיכור DNase לכל דגימה.
- הוסף 80 µL מתערובת ה-DNase I ישירות לממברנת העמודה והדגר בטמפרטורת החדר למשך 15 min.
- הוסף 350 µL של wash buffer 1 לעמודה. צנטריפוגה במהירות של 11,000 × g למשך 30 s והשלך את הנוזל שעבר.
- הוסף 500 µL של wash buffer 2 (בופר שטיפה 2) לעמודה. צנטריפוגה במהירות של 11,000 × g למשך 30 s והשלך את הנוזל שעבר.
- חזור על השטיפה עם 500 µL של wash buffer 2.
- צנטריפוגה את העמודה הריקה במהירות של 11,000 × g למשך 2 min לייבוש הממברנה.
- העבר את העמודה למבחנה למיקרוצנטריפוגה רעננה של 1.5 mL נטולת RNase. הוסף 30–50 µL של מים נטולי RNase ישירות לממברנה והדגר בטמפרטורת החדר למשך 1 min.
- צנטריפוגה במהירות של 11,000 × g למשך 1 min כדי לאלות את ה-RNA. שמור את ה-RNA בטמפרטורה של −80 °C עד לשימוש.
הערה: העריך את ריכוז ה-RNA ואת טוהרו באמצעות ספקטרופוטומטריה. השתמש ביחס A260/A280 של 1.8–2.1 כטווח מקובל.
- אסוף 5–10 אורגנואידים כלי דם בוגרים מיום 15 לתוך מבחנה למיקרוצנטריפוגה של 1.5 mL נטולת RNase. הסר את שאריות המצע לחלוטין.
- סינתזת cDNA
- הכן את תערובת תגובת השעתוק ההפוך על קרח.
- ערבב 600 ng של RNA כולל עם 4 µL של RT master mix המכיל reverse transcriptase, בופר, dNTPs ופריימרים אקראיים. הוסף מים נטולי RNase עד לנפח סופי של 20 µL.
- הדגר את התגובה בטמפרטורה של 37 °C למשך 15 min, ולאחר מכן ב-85 °C למשך 5 s.
- שמור את ה-cDNA שהתקבל בטמפרטורה של −20 °C עד לשימוש.
- qPCR כמותי בזמן אמת
- הכן 9 µL של qPCR master mix לכל תגובה על ידי ערבוב של 5 µL של 2× SYBR Green master mix, 3 µL של מים נטולי RNase, ו-1 µL של פריימרים קדמיים ואחוריים מעורבבים מראש בריכוז של 10 µM לכל אחד.
- חלק 9 µL של master mix לכל באר בפלטת qPCR של 96 באערים.
- הוסף 1 µL של cDNA לכל באר כדי להגיע לנפח תגובה סופי של 10 µL.
- אטום את הפלטה בעזרת סרט דביק אופטי (optical adhesive film) וצנטריפוגה במהירות של 1,000 × g למשך 1 min.
- בצע דנטורציה ראשונית ב-95 °C למשך 30 s.
- בצע 40 מחזורי הגברה של 95 °C למשך 5 s ואחריהם 60 °C למשך 30 s.
- בצע אנליזת עקומת התכה (melt-curve analysis) כדי לאשש את ספציפיות האמפליקון.
הערה: הרץ כל דגימה בכפולה או בשלישייה. - חשב ביטוי יחסי של הגן מטרה באמצעות שיטת 2−ΔΔCt. נרמל את ערכי ה-Ct לגן בית (housekeeping gene) כגון GAPDH, וכוייל את הביטוי אל מול דגימות hiPSC לא מובחנות.
7. ניתוח סטטיסטי
- הצג נתונים כמותיים כערך ממוצע ± סטיית תקן (SD) משלושה שחזורים ביולוגיים עצמאיים לפחות (n ≥ 3) לכל תנאי.
- יש להתייחס לכל סבב (batch) עצמאי כשכפול ביולוגי אחד עבור מדידות קוטר האגרגטים והאורגנואידים, ולחשב ממוצע של 30 המבנים האינדיבידואליים שנמדדו בתוך כל סבב כדי לקבל ערך ממוצע אחד לרמת הסבב.
- מדידות של שטח כלי דם ממוצע, כיסוי פריציטים ומדד הסתעפות ממספר אורגנואידים או שדות בתוך כל סבב (batch), כדי לקבל ערך יחיד ברמת הסבב, ושימוש בערכים אלו ברמת הסבב לצורך השוואות סטטיסטיות.
- השוו את הפרוטוקול המותאם (optimized protocol) לפרוטוקול Wimmer המקורי באמצעות מבחן t של Student דו-זנבי למדגמים בלתי זוגיים. t-בדיקה.
- הגדירו מובהקות סטטיסטית כ- p < 0.05. ציין את רמות המובהקות כ- p < 0.05, p < 0.01, ו- p < 0.001, לפי העניין.
- בצע את כל הבדיקות הסטטיסטיות באמצעות תוכנה לניתוח סטטיסטי גרסה 10.
תוצאות
הפרוטוקול האופטימלי המתואר כאן מאפשר יצירה של אורגנואידים כלי דם בוגרים מ-hiPSCs תוך כ-15 ימים באמצעות אסטרטגיית דיפרנציאציה מדורגת (איור 1A). בקצרה, אגרגטים של hiPSC נוצרו בלוחיות בעלות היצמדות נמוכה (low-attachment) בתוספת 0.25% PVA על מנער אורביטלי (יום 1-). השראה של מזודרם הותחלה ביום 0 באמצעות CHIR99021 (12 µM) ו-BMP-4 (30 ng/mL) למשך 3 ימים, ולאחריהם מפרט של שורת כלי דם עם VEGF-A (100 ng/mL) ופורסקולין (2 µM) למשך יומיים (ימים 3–5). ביום 5, האגרגטים הוטמעו במטריצת קולגן I וממברנת בסיס וגודלו במצע N2B27 בתוספת VEGF-A (100 ng/mL), FGF-2 (100 ng/mL) ו-15% FBS כדי לעודד ניבצויות של כלי דם. ביום 10, רשתות כלי דם בודדות בודדו מהג'לים והועברו ללוחיות 96-באר בעלות היצמדות נמוכה, כאשר אורגנואיד אחד לכל באר, להמשך הבשלה. עד יום 15, התקבלו אורגנואידים כלי דם בוגרים בעלי מורפולוגיה עגולה ומעטוף מלא (איור 1B).
כדי לאשר את הזהות הווסקולרית של התאים המובחלים, בוצע צביעה אימונופלואורסצנטית של דגימה שלמה (whole-mount) עבור הסמן האנדותליאלי CD31, יחד עם צביעת נגד גרעינית ב-Hoechst. מיקרוסקופיה קונפוקלית חשפה רשתות אנדותליאליות נרחבות חיוביות ל-CD31 היוצרות מבנים צינוריים מסועפים. שחזור תלת-ממדי של תמונות z-stack הדגים עוד יותר את מורכבות הרשתות הווסקולריות בתוך האורגנואידים (איור 1C). יעילות הביחול נבחנה גם באמצעות אנליזת quantitative real-time PCR של גנים ספציפיים לשושלת הווסקולרית. ביטוי הסמנים האנדותליאליים CD31 ו-CDH5 והסמן הפריציטי PDGFR-β עלה באופן מובהק באורגנואידים ביום 15 בהשוואה ל-hiPSCs לא מובחלים. לעומת זאת, ביטוי סמני הפלוריפוטנציות OCT4, SOX2 ו-NANOG ירד באופן ניכר, מה שמאשר ביחול מוצלח לעבר השושלת הווסקולרית (איור 1D). צביעה משותפת ל-CD31 ו-PDGFR-β הראתה כי פריציטים חיוביים ל-PDGFR-β היו קשורים באופן הדוק לצינורות האנדותליאליים החיוביים ל-CD31 ועטפו אותם, מה שמעיד על היווצרות מבנים וסקולריים עם כיסוי פריציטי (איור 1E). יחד, תוצאות אלו מדגימות כי הפרוטוקול המותאם מייצר באופן מהימן אורגנואידים וסקולריים הכוללים הן תאים אנדותליאליים והן פריציטים בתוך רשת וסקולרית תלת-ממדית מורכבת.
כדי להעריך באופן שיטתי את השיפורים שהושגו באמצעות הפרוטוקול המיועל, בוצעו ניתוחים מורפומטריים כמותיים להשוואה בין אורגנואידים שנוצרו באמצעות הפרוטוקול המקורי של Wimmer לבין אלו שנוצרו באמצעות הפרוטוקול המיועל במספר סדרות (batches) בלתי תלויות. מיקרוסקופיית שדה בהיר חשפה הבדלים מורפולוגיים ניכרים בין שני הפרוטוקולים לאורך תהליך הדיפרנציאציה. בעוד שהפרוטוקול המקורי הניב אגרגטים ואורגנואידים בגדלים הטרוגניים ובצורות לא סדירות בשלבים מרובים, הפרוטוקול המיועל הניב אגרגטים אחידים באופן עקבי עם גבולות חלקים החל מיום 0, אשר התפתחו לאחר מכן לאורגנואידים וסקולריים בוגרים, עגולים יותר ובגודל אחיד עד יום 15 (איור 2A).
ניתוח כמותי של קוטר האגרגטים ביום 0 אישר כי הפרוטוקול המותאם הגבשיה אגרגטים אחידים באופן מובהק יותר (120.3 ± 5.4 µm, CV = 4.47%; 30 אגרגטים שנמדדו לכל סדרה; n = 3 סדרות עצמאיות) מאשר הפרוטוקול המקורי (112.2 ± 34.7 µm, CV = 30.93%; n = 3 סדרות עצמאיות; t = 6.159, df = 4, p = 0.004; איור 2B). שיפור זה באחידות נשמר עד לסוף תהליך הדיפרנציאציה. אורגנואידים ביום 15 שהופקו באמצעות הפרוטוקול המותאם הראו שונות מופחתת משמעותית בגודל (670.8 ± 63.5 µm, CV = 9.47%; 30 אורגנואידים שנמדדו לכל סדרה; n = 3 סדרות עצמאיות) בהשוואה לאלו שהופקו באמצעות הפרוטוקול המקורי (615.4 ± 270.9 µm, CV = 44.0%; n = 3 סדרות עצמאיות; t = 8.430, df = 4, p = 0.001; איור 2C).
בשלב הבא נבחנה היצירה של רשת כלי דם על ידי כימות הכיסוי האנדותליאלי החיובי ל-CD31 והכיסוי של פריציטים החיוביים ל-PDGFR-β. בשלוש סדרות עצמאיות, הפרוטוקול המיועל הניב כיסוי אנדותליאלי גדול באופן מובהק מהפרוטוקול המקורי (40.1 ± 2.9% לעומת 28.0 ± 7.0%; t = 2.856, df = 4, p = 0.05; איור 2D). גם כיסוי הפריציטים היה גדול באופן מובהק עם הפרוטוקול המיועל (36.2 ± 2.5% לעומת 17.5 ± 5.2%; t = 6.636, df = 4, p = 0.003) (איור 2E). ניתוח מדד ההסתעפות באמצעות AngioTool הראה בנוסף כי אורגנואידים שנוצרו באמצעות הפרוטוקול המיועל יצרו רשתות כלי דם מורכבות יותר (50.2 ± 3.8 לעומת 24.1 ± 6.9 points/mm2; t = 6.163, df = 4, p = 0.004; איור 2F). לבסוף, יעילות ההיווצרות הכללית של האורגנואידים הוערכה כאחוז האגרגטים הראשוניים שהתפתחו לאורגנואידים וסקולריים בוגרים עד ליום 15. בשלוש סדרות עצמאיות, הפרוטוקול המיועל השיג יעילות היווצרות גבוהה באופן מובהק (64.3 ± 3.8%; n = 3) מהפרוטוקול המקורי (41.3 ± 10.8%; n = 3; t = 3.433, df = 4, p = 0.03), מה שמתכתב עם עלייה של פי 1.6 בקירוב ביבול האורגנואידים (60–67 לעומת 29–50 אורגנואידים ל-1 × 10⁶ תאים התחלתיים; איור 2G). הפרוטוקול המיועל הפחית באופן משמעותי גם את השונות בין סדרות (SD, 3.8% לעומת 10.8%), מה שמעיד על שיפור בדחייתיות (reproducibility).
התוצאות הכמותיות של הפרוטוקולים המקוריים והאופטימליים, כולל קוטר האגרגטים והאורגנואידים, תנובת האורגנואידים ויעילות ההיווצרות, שטח כלי הדם, כיסוי פריציטים, מדד הסבסוב (branching index), שיעור הכשל ושונות בין סדרות, מסוכמות בטבלה 1. הרכבי המצעים והתמיסות של המטריקס ששימשו לתחזוקת hiPSC ולהבחנה של אורגנואידים כלי דם מפורטים בטבלה 2, והרכב תמיסת החסימה (blocking buffer) ששימשה לצביעת אימונופלורסצנציה של דגימות שלמות מופיע בטבלה 3. רצפי הפרימרים ששימשו לאנליזת qPCR כמותית מפורטים בטבלה 4. ריכוזי העבודה ותנאי ההכנה עבור الريאגנטים המרכזיים ששימשו במהלך יצירת האורגנואידים של כלי הדם ואפיון שלהם מפורטים בטבלה נלווית 1.
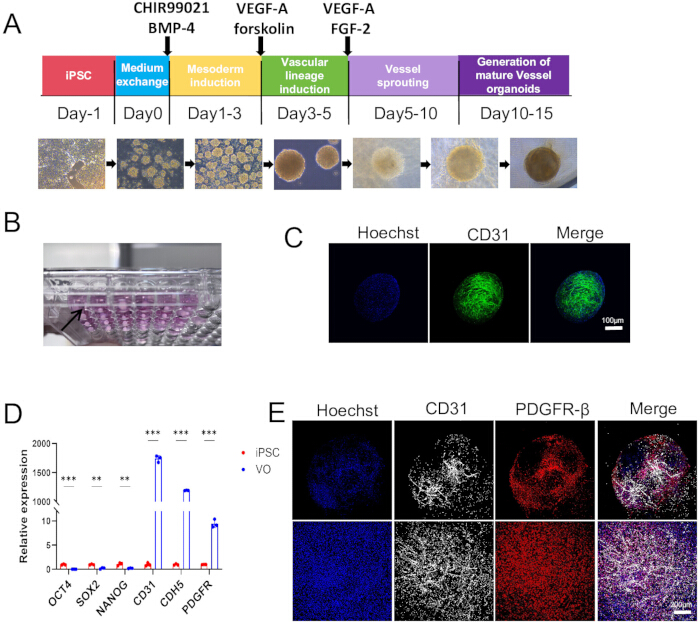
איור 1: ייצור ואפיון של אורגנוידים וסקולריים המופקים מתאי גזע פלוריפוטנטיים מושריים אנושיים. (A) ייצוג סכמטי של פרוטוקול הדיפרנציאציה השלבי של אורגנוידים וסקולריים. אגרגטים של hiPSC עוברים אינדוקציה למזודרם באמצעות CHIR99021 ו-BMP-4, לאחר מכן אינדוקציה לשושלת וסקולרית באמצעות VEGF-A ו-forskolin, ניצות וסקולריות בנוכחות VEGF-A ו-FGF-2, והבשלה עוקבת לאורגנוידים וסקולריים. תמונות מייצגות בשדה בהיר ממחישות שינויים מורפולוגיים במהלך הדיפרנציאציה מיום 1- ליום 15. (B) תמונה מאקרוסקופית מייצגת של אורגנוידים וסקולריים בוגרים שגודלו באופן אינדיבידואלי בלוחית 96-בארים. (C) תמונות קונפוקאליות מייצגות של אורגנויד וסקולרי ביום 15 שנצבע עבור CD31 (ירוק) ונצבע בסימון נגדי עם Hoechst (כחול), המראות את הרשת האנדותליילית בתוך האורגנויד. סרגל קנה מידה = 100 µm. (D) ניתוח Quantitative real-time PCR של סמני פלוריפוטנטיות OCT4, SOX2 ו-NANOG ושל סמני השושלת הוסקולרית CD31, CDH5 ו-PDGFR-β באורגנוידים וסקולריים (VO) ביום 15 בהשוואה ל-hiPSCs לא מובחנים. נתונים מוצגים כממוצע ± SD משלושה ניסויים עצמאיים. מובהקות סטטיסטית נקבעה באמצעות מבחן Student's t-test דו-זנבי ללא צימוד. (E) תמונות אימונופלורסצנציה מייצגות של דגימה שלמה (whole-mount) של אורגנויד וסקולרי ביום 15 שנצבע עבור CD31 (לבן), PDGFR-β (אדום) ו-Hoechst (כחול), המדגימות את הקשר בין פריציטים חיוביים ל-PDGFR-β לרשתות אנדותלייליות חיוביות ל-CD31. סרגל קנה מידה = 200 µm. נא ללחוץ כאן לצפייה בגרסה גדולה יותר של איור זה.
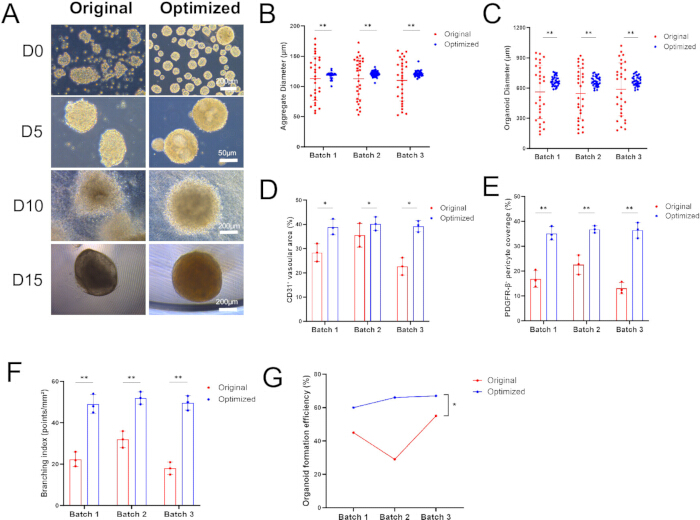
איור 2: השוואה כמותית של אורגנואידים וסקולריים שנוצרו באמצעות פרוטוקול Wimmer המקורי והפרוטוקול האופטימלי. (A) תמונות מייצגות בשדה בהיר המראות את המורפולוגיה של אגרגטים ואורגנואידים וסקולריים שנוצרו באמצעות הפרוטוקולים המקורי והאופטימלי ביום 0 (D0), יום 5 (D5), יום 10 (D10), ויום 15 (D15). סריגי קנה מידה = 200 µm (D0), 50 µm (D5), 200 µm (D10), ו-200 µm (D15). (B) כימות של קוטר האגרגטים ביום 0 בשלוש סדרות עצמאיות. שלושים אגרגטים נמדדו לכל סדרה ולכל תנאי, והתוצאות חושבו כממוצע לקבלת ממוצע ברמת הסדרה. (C) כימות של קוטר האורגנואידים ביום 15 בשלוש סדרות עצמאיות. שלושים אורגנואידים נמדדו לכל סדרה ולכל תנאי, והמדידות חושבו כממוצע לקבלת ממוצע ברמת הסדרה. (D) כימות של שטח וסקולרי חיובי ל-CD31 באורגנואידים שנוצרו באמצעות הפרוטוקולים המקורי והאופטימלי בשלוש סדרות עצמאיות. (E) כימות של כיסוי פריציטים חיובי ל-PDGFR-β בשלוש סדרות עצמאיות. (F) כימות של מדד ההסתעפות הוסקולרית באמצעות AngioTool בשלוש סדרות עצמאיות. (G) יעילות יצירת אורגנואידים בשלוש סדרות עצמאיות, שחושבה כאחוז האגרגטים הראשוניים שהתפתחו לאורגנואידים וסקולריים בוגרים עד יום 15. הנתונים מוצגים כממוצע ± SD של שלושה ממוצעים עצמאיים ברמת הסדרה (n = 3 סדרות עצמאיות לכל תנאי). מובהקות סטטיסטית נקבעה באמצעות מבחן t של Student דו-זנבי למדגמים לא מזווגים על ממוצעים ברמת הסדרה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
טבלה 1: השוואה כמותית של יצירת אורגנואידים של כלי דם באמצעות פרוטוקול Wimmer המקורי לעומת הפרוטוקול האופטימלי. השוואה של קוטר האגרגט ושונות הגודל ביום 0, קוטר האורגנואיד ושונות הגודל ביום 15, תנובת האורגנואידים, יעילות היווצרות האורגנואידים, שטח כלי דם חיובי ל-CD31, כיסוי פריציטים חיובי ל-PDGFR-β, מדד הסתעפות של כלי דם, שיעור כישלונות ושונות בין סדרות. הערכים מוצגים כממוצע ± SD במידת הרלוונטיות. מדידות של האגרגטים והאורגנואידים התקבלו מ-30 מבנים לכל סדרה לאורך שלוש סדרות עצמאיות לכל תנאי. מדידות של שטח כלי דם, כיסוי פריציטים והסתעפות התקבלו מלפחות שלושה אורגנואידים או שדות לכל סדרה לאורך שלוש סדרות עצמאיות. קיצורים: CV = מקדם השונות; SD = סטיית תקן. אנא לחצו כאן להורדת טבלה זו.
טבלה 2: הכנת מצעים ותמיסות מטריקס לתחזוקת hiPSC וגזירת אורגנואידים וסקולריים. הרכב והכנה של מצע תחזוקת hPSC מוגדר כימית (PGM1), תמיסת ציפוי מטריקס של קרום הבסיס, תמיסת שטיפה למעבר תאים עם 0.02% EDTA, מצע בסיס N2B27, מצע גזירה מלא N2B27, ותמיסת קולגן I המשמשים לתחזוקת hiPSC, גזירה, יצירת רשת וסקולרית ותרבית אורגנואידים. תנאי אחסון ודרישות הכנה מופיעים במקומות הרלוונטיים. קיצורים: DMEM = Dulbecco's modified Eagle medium; EDTA = ethylenediaminetetraacetic acid; FBS = fetal bovine serum; FGF-2 = fibroblast growth factor 2; hiPSC = human induced pluripotent stem cell; NEAA = non-essential amino acids; PGM1 = Pluripotency Growth Master 1; VEGF-A = vascular endothelial growth factor A. אנא לחצו כאן להורדת טבלה זו.
טבלה 3: הכנת תמיסת חסימה לצביעת אימונופלואורסצנציה של אורגנואידים כלי דם בשיטת whole-mount. הרכב ותנאי אחסון של תמיסת החסימה והחדירה (permeabilization) המשמשת לצביעת אימונופלואורסצנציה בשיטת whole-mount. קיצורים: BSA = bovine serum albumin; FBS = fetal bovine serum; PBS = phosphate-buffered saline. אנא לחצו כאן להורדת טבלה זו.
טבלה 4: רצפי הפריימרים ששימשו לניתוח qPCR כמותי. רצפי פריימרים קדימה (Forward) ואחורה (Reverse) שימשו להערכת הביטוי של סממני השושלת הווסקולרית CD31, CDH5 ו-PDGFR-β; סממני הפלוריפוטנציות OCT4, SOX2 ו-NANOG; והגן של בית השמש (housekeeping gene) GAPDH. רצפי הפריימרים מוצגים בכיוון 5′→3′. קיצורים: qPCR = quantitative real-time PCR. אנא לחצו כאן להורדת טבלה זו.
טבלה נלווית 1: ריכוזי עבודה ותנאי הכנה עבור ריאגנטים מרכזיים המשמשים ביצירה ובאפיון של אורגנואידים וסקולריים. ריכוזי עבודה, מהלולים ותנאי הכנה או אחסון עבור Y-27632, CHIR99021, BMP-4, VEGF-A, forskolin, FGF-2, PVA, מדללי נוגדנים ראשוניים ושניוניים, תמיסת עבודה של Hoechst, תמיסת שטיפה PBST ומקבע PFA 4%. ריאגנטים אלו משמשים במהלך התאוששות ואגרגציה של hiPSC, השראה של שוכן מזודרם ושוכן וסקולרי, יצירת רשת וסקולרית, צביעת אימונופלורסנציה של mount-whole וקיבוע של אורגנואידים. קיצורים: BMP-4 = bone morphogenetic protein 4; FGF-2 = fibroblast growth factor 2; PFA = paraformaldehyde; PVA = polyvinyl alcohol; PBST = phosphate-buffered saline המכיל Tween 20; VEGF-A = va אנא לחץ כאן להורדת טבלה זו.
דיון
הפרוטוקול האופטימלי המתואר כאן מציג מספר שיפורים מרכזיים במערכת הבידול של אורגנואידים וסקולריים שבוששה במקור על ידי Wimmer et al.18, במטרה לשפר את ההומוגניות, השחזוריות והשלמות המבנית של יצירת האורגנואידים הוסקולריים. בהשוואה לפרוטוקול המקורי, השיטה האופטימלית מספקת שיפורים משמעותיים בהיבטים הבאים. ראשית, אופטימיזציה של תנאי היווצרות האגרגטים משפרת באופן משמעותי את ההומוגניות של הגופים העובריים (embryoid bodies). הפרוטוקול המקורי השתמש באגרגציה טבעית בלוחיות 6-well בעלות הידבקות נמוכה ליצירת אגרגטים של hiPSC, עם זריעה של 2 × 10⁵ תאים לבאר עבור שורת NC8 או 5 × 10⁵ תאים לבאר עבור שורת H9, תוך הסתמכות על כוח הכבידה להנעת אגרגציית התאים. גישה זו נשענת במידה רבה על בקרה אמפירית של צפיפות הזריעה וזמן האינקובציה, מה שמוביל לשונות בגודל האגרגטים בין סדרות שונות. בפרוטוקול האופטימלי, תוך שימוש בלוחיות 6-well בעלות הידבקות נמוכה לאגרגציה, הוכנסו שלושה שינויים לשיפור אחידות האגרגטים: (1) זריעה של 5 × 10⁵ תאים לבאר כדי לספק מספר תאים מספיק לאגרגציה יציבה; (2) הוספת 0.25% polyvinyl alcohol (PVA) להפחתת הידבקות לא ספציפית של תאים לתשתית ולקידום אגרגציה הומוטיפית של תא-תא; ו-(3) אינקובציה של הלוחיות על שייקר אורביטלי ב-37 °C כדי להקל על פיזור תאים אחיד ואגרגציה סינכרונית באמצעות ערבול עדין ומתמיד. שינויים אלה היו קשורים להפקת אגרגטים בעלי מורפולוגיה כדורית סדירה יותר וגבולות חלקים יותר, ובכך סיפקו חומר התחלה הומוגני יותר להשראת מזודרם ובידול וסקולרי עוקבים (איור 2A,B).
אם האגרגטים קטנים או שבירים מדי, או אם גבולותיהם אינם חלקים, יש לוודא תחילה את חיוניות התאים לפני הזריעה, שכן בריאות תאים ירודה היא סיבה נפוצה לאגרגציה לא יעילה. עבור שורות hiPSC בעלות יכולת אגרגציה נמוכה, הגבירו את צפיפות הזריעה ל-1 × 10⁶ תאים לבאר או האריכו את תקופת הדגירה מיום אחד ל-2–3 ימים. לעומת זאת, אגרגטים גדולים מדי נובעים בדרך כלל מהיתוך של מספר אגרגטים. הגבירו את תדירות השאיבה העדינה (pipetting) במהלך תקופת הדגירה כדי למזער את התאייחדות האגרגטים. שמירה על גודל אגרגט אחיד בשלב ראשוני זה היא קריטית, מכיוון שהטרוגניות בגודל קשורה ישירות לשונות ביעילות הדיפרנציאציה הווסקולרית.
שנית, אופטימיזציה של אסטרטגיית החלפת המצע שומרת טוב יותר על סביבת התרבית במהלך התמיינות כלי דם. בשלב היווצרות רשת כלי הדם, הפרוטוקול שומר על שליש מהמצע המותנה (conditioned medium) בכל החלפת מצע ומחליף את שני השלישים הנותרים במצע התמיינות מלא N2B27 טרי המכיל את אותם תוספים. לעומת זאת, הפרוטוקול המקורי השתמש בהחלפה מלאה של המצע. מכיוון ש-VEGF-A ו-FGF-2 אינם יציבים בתנאי תרבית ב-37 °C, החלפה מלאה של המצע עלולה לגרום לתנודות משמעותיות בריכוזי גורמי הגדילה, מה שעלול לפגוע בשמירה על פרוליפרציה של תאי אנדותל ובניבוב כלי דם (vascular sprouting). שימור חלק מהמצע המותנה שומר על גורמים פרו-אנגיוגניים המופרשים על ידי התאים ועל רכיבים חוץ-תאיים, תוך מזעור שינויים פתאומיים בסביבת התרבית. אסטרטגיה זו הייתה קשורה להיווצרות חזקה יותר של רשת כלי דם ולכיסוי רב יותר של פריציטים (איור 2D,E).
אם מטריצת הג'ל הופכת לבלתי יציבה או קורסת לאחר הוספת המצע, יש לוודא תחילה כי המצע חומם מראש באופן יסודי ל-37 °C, שכן מצע קר עלול לגרום להתכווצות הג'ל. בנוסף, יש לאמת את הפולימריזציה של הקולגן על ידי וידוא ש-pH של תמיסת collagen I הוא בקירוב 7.4 וכי המנות של collagen I ומטריצת ממבנה הבסיס (basement membrane matrix) יוצרות ג'לים יציבים. אם המטריצה נותרת שבירה או אינה מתגבשת, יש להשתמש במנה חדשה של basement membrane matrix או collagen I ולהדגיר את הג'ל למשך 2 h מלאים ב-37 °C לפני הוספת המצע. במידת הצורך, יש להאריך את תקופת הפולימריזציה עד ל-3 h.
שלישית, פישוט תהליכי הבידוד וההבשלה של האורגנואידים הווסקולריים משפר את התפוקה ואת העקביות. בפרוטוקול המקורי, רשתות כלי דם שגודלו בפלטות של 12 בארות עד ליום ה-10 הועברו באופן פרטני לפלטות של 6 בארות בעלות הידבקות נמוכה ליום אחד של תרבית (יום 11), ולאחר מכן הועברו לפלטות של 96 בארות בעלות הידבקות נמוכה במיוחד להמשך תרבית עד ליום ה-15. שני שלבי העברה אלו מגבירים את המורכבות התפעולית ואת הסיכון לאובדן אורגנואידים. הפרוטוקול המיועל מציג שלושה פישוטים חשובים: (1) העברה של אורגנואידים מבודדים ישירות לפלטות של 96 בארות בעלות הידבקות נמוכה במיוחד, כאשר אורגנואיד אחד בכל בארה, ובכך מבוטל שלב הביניים של תרבית ב-6 בארות ומופחצים הטיפול והנזק המכני; (2) גידול של אורגנואיד אחד לכל בארה כדי למנוע התמזגות במהלך תרבית בסספנזיה ולשמור על העצמאות של כל אורגנואיד; ו-(3) ביצוע החלפות מדיום יומיות למשך 5 ימים כדי לספק אספקה רציפה של חומרי הזנה וגורמי גדילה, מה שמאפשר לאורגנואידים להבשיל למבנים עגולים ועטופים באופן מלא. שינויים אלו מפשטים את תרבית האורגנואידים, משפרים את התפוקה ומקלים על יישומים עתידיים של סריקת תרופות בתפוקה גבוהה.
כדי למזער את אובדן האורגנואידים במהלך הבידוד, ודאו שמטריצת קולגן I וממברנת הבסיס (basement membrane) הופרדה לחלוטין מהתחתית של הבאר לפני החיתוך. העבירו בעדינות שפכטל סטרילי לאורך תחתית הבאר מהדף לכיוון המרכז עד שכל הג'ל צף באופן חופשי. בעת העברה של אורגנואידים מבודדים, השתמשו בפיפטית חד-פעמית סטרילית במקום בקצה פיפטה P1000 כדי להפחית מאמץ מכני ולמזער גזירה של האורגנואידים. אם האורגנואידים מתפרקים במהלך הטיפול, העריכו מחדש את איכות הדיפרנציאציה, כולל חיוניות תאי המוצא והפעילות של גורמי גדילה מרכזיים כגון VEGF-A ו-FGF-2. אם אורגנואידים מתמזגים במהלך תרבית סספנסיה, הפרידו אותם בעדינות באמצעות שני קצות פיפטה P200. עם זאת, גידול של אורגנואידים בודדים, אחד בכל באר, החל משלב הבשלה הוא הגישה היעילה ביותר למניעת מיזוג.
רביעית, איחוד של מערכת מצע התרבית מפשט את הפרוטוקול ומפחית שונות בין סדרות (batch-to-batch variation). הפרוטוקול המקורי השתמש במצע N2B27 במהלך השראת המזודרם עם CHIR99021 ו-BMP-4 ובמהלך השראת השושלה הווסקולרית עם VEGF-A ופורסקולין, אך עבר למצע תרבית של תאי המטופויזס נטול סרום המכיל FBS, VEGF-A ו-FGF-2 במהלך היווצרות הרשת הווסקולרית. לעומת זאת, הפרוטוקול המיטבי משתמש במצע דיפרנציאציה מלא N2B27 המועשיר ב-15% FBS, VEGF-A ו-FGF-2 לאורך כל שלבי היווצרות הרשת הווסקולרית והבשלת האורגנואידים העוקבת, ובכך שומר על אותה פורמולציית בסיס של N2B27. אסטרטגיה מאוחדת זו מפחיתה משתנים נוספים הקשורים להחלפת מצעי תרבית ומפשטת את הכנת הריאגנטים. השימוש בתוספי B27 ו-N2 מוגדרים במצע N2B27 עשוי לתרום אף הוא לשיפור העקביות בין סדרות, אם כי התרומה היחסית של שינוי זה, בנפרד משאר שינויי הפרוטוקול, לא בודקה ניסויית בנפרד במחקר הנוכחי. יעילות הפרוטוקול המיטבי נתמכה על ידי עלייה בביטוי של סממני שושלה וסקולרית וירידה בביטוי של סממני פלוריפוטנטיות באורגנואידים ביום 15 (איור 1D). בנוסף, צביעת אימונופלואורסצנציה של דגימות שלמות (whole-mount) חשפה רשתות אנדותליאליות נרחבות של CD31+ ופריציטים של PDGFR-β+ הקשורים אליהן מקרוב, מה שמאשר את היווצרותן של מבנים וסקולריים עם כיסוי של תאי קיר (mural cells) (איור 1C,E). PDGFR-β הוא סמן מוכר ומקובל לפריציטים באורגנואידים וסקולריים אנושיים, כפי שהוכח במחקרים קודמים21.
אם הנבטות כלי הדם (vascular sprouting) דלה או אם נוצרים אגרגטים גדולים ובלתי מובחנים ללא רשתות אנדותליאליות, ייתכן שהסיבה לכך היא השראה לא מספקת של המזודרם. יש לוודא ש-CHIR99021 ו-BMP-4 פעילים ונעשה בהם שימוש בריכוזים הנכונים. גיוס דל של פריציטים, המתבטא בנוכחות דלילה של תאי PDGFR-β+ המקיפים צינורות אנדותליים CD31+, עשוי לשקף פעילות תת-אופטימלית של VEGF-A או FGF-2. בדיקת סדרות שונות של גורמי גדילה ותיקוף תפקודי של סדרות FBS לבדיקת יכולתן לתמוך ביצירת אורגנואידים של כלי דם עשויים לשפר את הכיסוי של תאי הדופן (mural cells). כדי לתקף באופן שיטתי את היעילות של ארבעת השיפורים המתודולוגיים המתוארים לעיל, בוצעו ניתוחים מורפומטריים כמותיים שהשוו בין הפרוטוקול המותאם למקור לבין הפרוטוקול המקורי של Wimmer (איור 2; טבלה 1). מיקרוסקופיה בשדה בהיר חשפה הבדלים מורפולוגיים ניכרים בין שני הפרוטוקולים לאורך תהליך הדיפרנציאציה. בעוד שהפרוטוקול המקורי הניב אגרגטים ואורגנואידים בגדלים הטרוגניים ובצורות לא סדירות בכל השלבים, הפרוטוקול המותאם ייצר בעקביות אגרגטים אחידים עם גבולות חלקים החל מהיום ה-0. אגרגטים אלו התפתחו בהמשך לאורגנואידים של כלי דם בוגרים, עגולים יותר ובגודל אחיד יותר, עד ליום ה-15 (איור 2A).
ניתוח כמותי אישר כי הפרוטוקול האופטימלי ייצר אגרגטים אחידים באופן משמעותי יותר ביום 0 (120.3 ± 5.4 µm, CV = 4.47%, n = 3 סדרות עצמאיות) מאשר הפרוטוקול המקורי (112.2 ± 34.7 µm, CV = 30.93%, n = 3 סדרות עצמאיות; איור 2B). שיפור זה באחידות נשמר עד לסיום שלב הדיפרנציאציה, שכן אורגנואידים ביום 15 שיוצרו באמצעות הפרוטוקול האופטימלי הראו גם הם שונות מופחתת משמעותית בגודל (איור 2C). ממצאים אלו מרמזים כי שילוב של אגרגציה בסיוע PVA עם ניעור אורביטלי מפחית את ההטרוגניות בגודל האגרגטים בהשוואה לפרוטוקול המקורי, ובכך מניב חומר מוצא הומוגני יותר להשראת מזודרם ולדיפרנציאציה וסקולרית בהמשך. עם זאת, מכיוון שהפרוטוקול האופטימלי כולל מספר שינויים סימולטניים, התרומה הספציפית של כל שינוי בודד לשיפורים שנצפו לא הופרדה ניסוית במחקר הנוכחי.
הפרוטוקול המותאם שיפר באופן משמעותי גם את היווצרות הרשת הכלילית, והגדיל את הכיסוי האנדותליאלי של CD31+ (40.1 ± 2.9% לעומת 28.0 ± 7.0%; t = 2.856, df = 4, p = 0.05; איור 2D) ואת כיסוי הפריסייטים של PDGFR-β+ (36.2 ± 2.5% לעומת 17.5 ± 5.2%; t = 6.636, df = 4, p = 0.003; איור 2E). ניתוח מדד ההסתעפות באמצעות AngioTool הדגים עוד כי הפרוטוקול המותאם ייצר רשתות כליליות מורכבות יותר (50.2 ± 3.8 לעומת 24.1 ± 6.9 points/mm2; t = 6.163, df = 4, p = 0.004; איור 2F). שיפורים אלו עשויים לנבוע משני גורמים משלימים. ראשית, אגרגטים הומוגניים מספקים תנאי פתיחה עקביים יותר להצמחת כלי דם. שנית, השארת שליש מהמדיום המותנה עשויה לסייע בשמירה על גורמים פרו-אנגיוגניים מתוספים, תוך שימור גורמים המופרשים על ידי התאים שעשויים לתמוך בנדידת פריסייטים ובהתחברותם לצינורות אנדותליאליים.
בסופו של דבר, הפרוטוקול המיוטב הניב יעילות גבוהה פי 1.6 בקירוב של יצירת אורגנואידים (64.3 ± 3.8% לעומת 41.3 ± 10.8%; t = 3.433, df = 4, p = 0.03), המקבילה ל-60–67 אורגנואידים בוגרים לכל 1 × 10⁶ תאים התחלתיים, בהשוואה ל-29–50 אורגנואידים שהתקבלו באמצעות הפרוטוקול המקורי (איור 2G). בולט במיוחד כי הפרוטוקול המיוטב הפחית באופן משמעותי את השונות בין סדרות (batch-to-batch variability), כאשר ממוצעי הסדרות נעו בין 60.0% ל-67.0% (SD = 3.8%), בעוד שהפרוטוקול המקורי הראה שונות גבוהה יותר באופן ניכר בין הסדרות, כאשר ממוצעי הסדרות נעו בין 29.0% ל-50.0% (SD = 10.8%).
בסיכום, הנתונים הכמותיים המוצגים ב-איור 2 וב-טבלה 1 תומכים בשיפורים המערכתיים שהושגו באמצעות הפרוטוקול המיטבי בהומוגניות המקובצת, ביצירת הרשת הווסקולרית, בגיוס פריציטים, במורכבות הווסקולרית ובתנובת האורגנואידים. שיפורים אלו נותנים מענה ישיר למגבלות עיקריות של הפרוטוקול המקורי הנוגעות לשחזוריות וליכולת הרחבה (scalability).
לסיכום, הפרוטוקול האופטימלי הנוכחי פותר מגבלות מרכזיות של השיטה המקורית באמצעות ארבעה שיפורים עיקריים: אופטימיזציה של היווצרות האגרגטים, שינוי של אסטרטגיית החלפת המצע, פישוט של זרימת העבודה של בידוד והבשלת האורגנואידים, ואיחוד של מערכת מצע התרבית. יחד, שינויים אלו הופכים את יצירת האורגנואידים הכליים ליעילה, הדירה וניתנת להרחבה יותר, ובכך מספקים פלטפורמה אמינה יותר in vitro למחקרי התפתחות כלי דם, מידול מחלות ובדיקת תרופות. עם זאת, בדומה לשיטה המקורית, הפרוטוקול הנוכחי ממשיך להסתמך על רכיבים ממקור חייתי, כולל מטריקס של קרום הבסיס ו-FBS. מאמצים עתידיים עשויים לפיכך להתמקד בפיתוח מטריצות סינתטיות המוגדרות כימית ומערכות תרבית נטולות סרום, על מנת להגביר עוד יותר את הפוטנציאל התרגומי של פלטפורמה זו.
חשוב לציין כי הפרוטוקול המותאם הכניס מספר שינויים בו-זמנית — תוספת של PVA, ניעור מסלולי (orbital shaking), שימור מצע גידול מותני (conditioned-medium), זרימת עבודה יעילה יותר להבשלה ומערכת אחידה של מצע גידול — והנתונים הנוכחיים אינם קובעים איזה שינוי בודד אחראי לשיפורים שנצפו בהומוגניות האגרגטים, בכיסוי האנדותליאלי, בכיסוי הפריסייטים או ביבול האורגנואידים. המחקר הנוכחי תוכנן להערכת ההשפעה המצטברת של אופטימיזציות אלו כפרוטוקול מלא, ולא כדי לנתח את התרומה של כל רכיב בודד. ניסויי פקטוריאליים או ניסויי השמה (ablation) עתידיים יהיו דרושים כדי לקבוע את התפקיד הספציפי של כל שינוי ולשכלל את הפרוטוקול עוד יותר.
על אף מגבלות אלו, הפרוטוקול הנוכחי מהווה בסיס מעשי וניתן לשחזור ליצירת אורגנואידים וסקולריים. מספר כיוונים מתפתחים בתחום האורגנואידים הוסקולריים מציעים הזדמנויות לשיפור נוסף של הפרוטוקול ולהרחבת היישומים שלו. התקדמות אחרונה בגידולי הידרוג'ל סינתטיים וללא מקור בעלי חיים סיפקה חלופות מבטיחות למטריקס של קרום הבסיס ולקולגן I, כאשר הידרוג'לים דינמיים הראו יכולת לשפר את תהליך האנגיוגנזה ולהכווין את הדיפרנציאציה של אורגנואידים וסקולריים לעarterioles22. כמו כן, פותחה שיטה חסונה ללא מקור בעלי חיים המבוססת על תרביות "טיפה יושבת" (sitting drop) בשכבה אחת, כדי לשמור על השלמות התאית תוך שיפור השחזור והתאימות לאוטומציה23. מחקרי מולטי-אומיקה של תאים בודדים סיפקו רזולוציה חסרת תקדים של ההטרוגניות התאית במהלך התפתחות אורגנואידים של כלי דם אנושיים, וחשפו מעברים מרכזיים בגורל ובמצב התא שעשויים להנחות אופטימיזציה ממוקדת של פרוטוקולי דיפרנציאציה24. שילוב של פלטפורמות מיקרופלואידיות אפשר פיתוח של אורגנואידים וסקולריים פונקציונליים על שבב (organoids-on-chip) בעלי רשתות נימיות ניתנות לפרפוזיה, מה ששיפר את הגדילה, הבשלות והתפקוד של האורגנואידים באמצעות פרפוזיה תוך-כלית25. יתרה מכך, מערכות ייעודיות של אורגנואידים וסקולריים על שבב מתגבשות כפלטפורמות מבטיחות לסריקת תרופות ולמידול מחלות, עם יישומים פוטנציאליים ברפואה רגנרטיבית ובכירורגיה רקונסטרוקטיבית26. יחד עם פרוטוקול הדיפרנציאציה האופטימלי המוצג כאן, גישות משלימות אלו עשויות להאיץ את היישום התרגומי של אורגנואידים וסקולריים במידול מחלות ובסריקה תרפויטית.
למרות שהפרוטוקול הנוכחי תוקף באמצעות קו iPSC בודד, חוסנו של גישת הדיפרנציאציה נתמך על ידי תוצאות עקביות לאורך מספר מנות בלתי תלויות. עם זאת, הערכה של קווי iPSC ו-ESC נוספים תהיה נחוצה כדי לבסס הלאה את יכולת ההכללה שלו. התנאים המיטביים, ובמיוחד תוספת של PVA, ניעור אורביטלי ושמירה על מדיום מותנה, נועדו להתייחס להיבטים בסיסיים של תרביות אורגנואידים, כולל אחידות אגרגציה, מעבר חומרים ותמיכה פראקרינית, ולכן עשויים לספק יתרונות דומים ברקעים של קווי תאים שונים.
גילויים
המחברים מצהירים כי אין להם ניגודי עניינים פיננסיים.
תודות
עבודה זו נתמכה על ידי הקרן הלאומית למדעים טבעיים של סין (NSFC) באמצעות קרן מדענים צעירים (C) (מס' 32200655) והתוכנית הכללית (מס' 32270847). המחברים מודים גם לפלטפורמת השירותים הציבוריים של אוניברסיטת אנהוי על תמיכתה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.22 μm מסנן לראש בקבוק | Nalgene | FPE204030 | לסינון סטרילי של מצעים ובופרים |
| מבחנה קונית בנפח 15 מ"ל | SparkJade | GD0001 | סטרילי |
| מבחנה למיקרוצנטריפוגה בנפח 2 מ"ל | Eppendorf | 22363204 | סטרילי |
| 2-מרקפטואתנול (1000×) | Gibco | 21985023 | יש להשתמש במכסוף כימיים |
| Alexa Fluor 488 AffiniPure F2 פרגמנט של נוגדן חמור נגד IgG (H+L) של ארנב | תווית | Y1104 | נוגדן משני; דילול 1:300 |
| Alexa Fluor 594 AffiniPure F(ab)′)2 Fragment Donkey Anti-Goat IgG (H+L) | מסומן | Y1007 | נוגדן משני; לדלל ביחס של 1:300 |
| נוגדן Anti-CD31 | אותיות תאיים | 3528 שניות | נוגדן ראשוני; לדלל ביחס של 1:100 בבופר חסימה |
| Anti-PDGFR β נוגדן | Zenbio | 347269 | נוגדן ראשוני; לדלל ביחס של 1:100 בתמיסת חסימה |
| סופר תאים אוטומטי | Life Technologies | Countess™ II | כולל זכיות תא ספירה |
| תוסף B27 (50×) | Gibco | 17504044 | עבור מצע N2B27; הפשר בטמפרטורה של 4°Cºג', חלק למנות (aliquot) ואחסן ב- −20ºג', הימנעו מהפשרה והקפאה חוזרת |
| צנטריפוגה שולחנית | זונקיה | SC-3610 | עם רוטור בעל דליים נתירים (swinging-bucket) |
| קבינה לבטיחות ביולוגית (Class II) | Thermo Fisher | לא זמין | לא ניתן לספק תרגום כיוון שלא הוזן טקסט מקור. אנא ספק את הטקסט באנגלית המיועד לתרגום. |
| BMP4 | Proteintech | HZ-1045 | שחזר במים מזוקקים סטריליים (ddH)20 עד 100 ננוגרם/μL, חלק למכסויות (aliquot) ואחסן ב- −20 °C |
| אלבומין מסרום בקר (BSA) | Biosharp | 9048-46-8 | עבור תמיסת חסימה (blocking buffer) |
| CHIR99021 | MCE | HY-10182 | הכינו תמיסת מלאי (stock) בריכוז 10 mM ב-DMSO, ושמרו בטמפרטורה של −20ºבטמפרטורה של C למשך עד שנה אחת |
| CO2 אינקובטור | Fisher Scientific | LS-CO150 | 37 ºC, 5% CO2, מולחח |
| צלחת לדימוי קונפוקאלי | Biosharp | BS-20-GJM | לצילום לאחר צביעה |
| מיקרוסקופ קונפוקלי | LEICA | לא זמין | מצויד ב-10×, 20×, 63× עדשות אובייקטיביות ותוכנת ZEN |
| DMEM | Vivacell | C3113-0500 | עבור דילול Matrigel ותמיסת קולגן I |
| DMEM/F-12, תוסף GlutaMAX | Gibco | 10565018 | עבור דילול Matrigel ומצע N2B27 |
| EDTA (0.5 M, pH 8.0) | Invitrogen | AM9260G | דללו עם PBS לריכוז של 0.02% לצורך מעבר (passaging) |
| סרום עגל עוברי (FBS) | Gibco | 10270-106 | עבור מצע בידול מלא N2B27 (ריכוז סופי 15%) |
| FGF-2 | Novoprotein | C046 | הכינו תמיסת מקור בריכוז 1 מג/מ"ל ב-PBS סטרילי, חלק למקבצים ושמרו ב- −20ºC |
| פורסקולין | R&D Systems | 1099 | הכינו תמיסת סטוק בריכוז 10 mM ב-DMSO, ואחסנו ב- −20ºC |
| HEPES (1M) | Gibco | 15630080 | עבור תמיסת קולגן I |
| Hoechst | Beyotime | C1071S-4 | הכינו תמיסת מלאי בריכוז 1 מ"ג/מ"ל במים דה-יוניים, חלקו למנבים ושמרו בטמפרטורה של −20ºC |
| מיקרוסקופ הפוך | LEICA | DMIL LED | תצפית שגרתית על תאים |
| Matrigel (עם רמות מופחתות של גורמי גדילה) | STEEMA | BM05 | יש לשמור ב- −20ºלאחר חלוקה למנות (aliquoting), יש להימנע מההפשרה וההקפאה חוזרת; יש לטפל על קרח |
| תמיסת חומצות אמ[]ינו שאינן חיוניות עבור MEM (NEAA, 100×) | Gibco | 11140035 | עבור מצע N2B27 |
| תוסף N2 (100×) | Gibco | 17502048 | עבור מצע N2B27; אחסון ב- −20ºהגנה מאור |
| מצע נוירובסאל (Neurobasal Medium) | Gibco | 21103049 | עבור מצע N2B27 |
| מים נקיים מנוקלאז (נקיים מ-DNase/RNase) | תווית | Doo55WJ | להכנת RNA/cDNA ולביצוע qPCR |
| מנער מסלול (Orbital Shaker) | מעבדת ג'ואן | לא זמין | עבור שלבי השטיפה |
| פאראפורמלידה (תמיסה בריכוז 4%) | Servicebio | G1101 | דללו עם PBS לריכוז של 4% לצורך קיבוע; השתמשו במכסורת פטורים (fume hood) |
| פניצילין-סטרפטומייצין (100×) | Gibco | 15140122 | עבור מצע N2B27 |
| מצע PGM1 | Cellapy | A1517001 | מצע גידול להתרחבות של hiPSC; אחסון בטמפרטורה של 4 מעלותºיש להגן מאור, יציב למשך שבועיים |
| תוסף PGM1 (25×) | סל-אפי (Cellapy) | A1517101 | לשימוש עם מצע בסיס PGM1 |
| פוליויניל אלכוהול (PVA) | Sigma-Aldrich | P8136 | המסו ב-PGM1 בריכוז 0.25% (משקל/נפח) כדי לעודד אגרגציה |
| PureCol (קולגן בקר מסוג I, ריכוז 3 מ"ג/מ"ל) | Advanced BioMatrix | 5005 | עבור תערובת קולגן I-Matrigel; מנת בדיקה ליכולת פולימריזציה |
| מכשיר תרמוסייקלר ל-qPCR | Thermo Fisher | StepOnePlus™ | בעל יכולת ביצוע עקומת המסה; לזיהוי באמצעות PCR בזמן אמת |
| ערכה לשעתוק הפוך | ביולוגיה מדויקת | AG11706 | לסינתזת cDNA מ-RNA כולל; מכיל תערובת מאסטר ל-RT עם טרנסקריפטאזה הפוכה, בופר, dNTPs ופריימרים אקראיים |
| ערכה למיצוי RNA | Yeasen | 19221ES50 | לבידוד RNA כולל מאורגנואידים וסקולריים; כולל עמודי הסרה של gDNA ו-DNase I נטול RNase |
| נתרן ביקרבונט (7.5%) | Gibco | 25080094 | עבור תמיסת קולגן I |
| נתרן דאוקסיכולאט | Sigma-Aldrich | D6750 | הכן תמיסה בריכוז 1% (משקל/נפח) במים דאיוניים עבור תמיסת חסימה (blocking buffer) |
| נתרן הידרוקסיד (1.0 N) | Sigma-Aldrich | S2770 | לצורך התאמת ה-pH של תמיסת קולגן I |
| פיפטות סטריליות חד-פעמיות (10 מ"ל) | Bkmamlab | 110205007 | ארוז בנפרד, סטרילי |
| טיפי פילטר סטריליים לפיפטה (1000, 200, 20 μL) | Biozym | VT0270/VT0250/VT0220 | סטרילי, עם מסנן |
| מחט סטרילית (30 G) | לא צוין טקסט לתרגום. נא לספק את הטקסט באנגלית. | לא ניתן לספק תרגום מכיוון שלא הוזן טקסט מקור. אנא ספק את הטקסט באנגלית שברצונך לתרגם. | להשגת דיסקציה של רשתות כלי דם |
| שפכס פטריאלית סטרילי (קצה עגול) | Fisher Scientific | 21-401-5 | פלדה דלוקסת (נירוסטה) |
| תערובת מאסטר SYBR Green | ביולוגיה מדויקת | AG11733 | 2× ריכוז עבור qPCR; מכיל DNA פולימראז מסוג hot-start, באפר, dNTPs וצבע SYBR Green |
| פלטת 12 בארות שעברה טיפול לתרביות רקמה | BD Falcon | 353043 | לטבילה בג'ל ולתרביות של רשת כלי דם |
| פלטה בעלת 6 בארות שעברה טיפול לתרביות רקמה | Eppendorf | 30720113 | טיפול סטנדרטי ב-TC |
| Triton X-100 | Sigma-Aldrich | T9084 | עבור תמיסת חסימה (blocking buffer) |
| טריפאן בלו (0.4%) | Thermo Fisher | 15250061 | לספירת תאים |
| Tween 20 | Sigma-Aldrich | P7949 | עבור תמיסת שטיפה PBS-T בריכוז 0.05% |
| פלטת 6 בארות בעלת היצמדות נמוכה במיוחד (Ultra-Low Attachment) | Corning | 3471 | ליצירת אגרגטים ולדיפרנציאציה |
| פלטת 96 בארות בעלת תחתית עגולה עם היצמדות נמוכה במיוחד (Ultra-Low Attachment) | Beyotime | FULA962-6pcs | לתרבית תליה של אורגנואידים פסיקולריים (של כלי דם) |
| VEGF-A | Proteintech | HZ-1038 | הכן תמיסת מלאי בריכוז 1 מ"ג/מ"ל ב-PBS סטרילי, חלק לאליקוטים ושמור ב- −20ºC |
| אמבט מים | פארד כחול | HWS-24 | 37ºC |
| Y-27632 | MCE | HY-10071 | הכינו תמיסת מומנה (stock) בריכוז 10 mM ב-PBS סטרילי או ב-DMSO, ואחסנו ב- −20ºC; ריכוזי עבודה: 5 μM (הפשרה), 50 μM (היווצרות אגרגטים) |
מקורות
- Lancaster MA, Knoblich JA. Organogenesis in a dish: modeling development and disease using organoid technologies. Science. 2014;345:1247125.
- Clevers H. Modeling development and disease with organoids. Cell. 2016;165:1586-1597.
- Spence JR, et al. Directed differentiation of human pluripotent stem cells into intestinal tissue in vitro. Nature. 2011;470:105-109.
- Lancaster MA, et al. Cerebral organoids model human brain development and microcephaly. Nature. 2013;501:373-379.
- Quadrato G, et al. Cell diversity and network dynamics in photosensitive human brain organoids. Nature. 2017;545:48-53.
- Takasato M, et al. Kidney organoids from human iPS cells contain multiple lineages and model human nephrogenesis. Nature. 2015;526:564-568.
- Takebe T, et al. Vascularized and functional human liver from an iPSC-derived organ bud transplant. Nature. 2013;499:481-484.
- Huch M, et al. Long-term culture of genome-stable bipotent stem cells from adult human liver. Cell. 2015;160:299-312.
- Nakano T, et al. Self-formation of optic cups and storable stratified neural retina from human ESCs. Cell Stem Cell. 2012;10:771-785.
- Mansour AA, et al. An in vivo model of functional and vascularized human brain organoids. Nat Biotechnol. 2018;36:432-441.
- Ham O, et al. Blood vessel formation in cerebral organoids formed from human embryonic stem cells. Biochem Biophys Res Commun. 2020;521:84-90.
- Sun XY, et al. Generation of vascularized brain organoids to study neurovascular interactions. eLife. 2022;11:e76707.
- Grebenyuk S, Ranga A. Engineering organoid vascularization. Front Bioeng Biotechnol. 2019;7:39.
- Parikh M, Pierce GN. Considerations for choosing an optimal animal model of cardiovascular disease. Can J Physiol Pharmacol. 2024;102:75-85.
- Krug A, et al. Three-dimensional spheroid models for cardiovascular biology and pathology. Mechanobiol Med. 2025;3:100144.
- Carmeliet P. Angiogenesis in health and disease. Nat Med. 2003;9:653-660.
- Wimmer RA, et al. Human blood vessel organoids as a model of diabetic vasculopathy. Nature. 2019;565:505-510.
- Wimmer RA, et al. Generation of blood vessel organoids from human pluripotent stem cells. Nat Protoc. 2019;14:3082-3100.
- Naderi-Meshkin H, et al. Vascular organoids: unveiling advantages, applications, challenges, and disease modelling strategies. Stem Cell Res Ther. 2023;14:292.
- Xu C, et al. Vascular organoid generation from human-induced pluripotent stem cells. J Vis Exp. 2024;214:e67125.
- Frenz-Wiessner S, et al. Generation of complex bone marrow organoids from human induced pluripotent stem cells. Nat Methods. 2024;21:868-881.
- Sun D, et al. Matrix viscoelasticity controls differentiation of human blood vessel organoids into arterioles and promotes neovascularization in myocardial infarction. Adv Mater. 2025;37:e2410802.
- Hoffmann A, et al. Animal-origin-free method for generating blood vessel organoids. Sci Rep. 2026;16:12096.
- Nikolova MT, et al. Fate and state transitions during human blood vessel organoid development. Cell. 2025;188:3329-3348.e31.
- Quintard C, et al. A microfluidic platform integrating functional vascularized organoids-on-chip. Nat Commun. 2024;15:1452.
- Sun L, Wang P, Lin X, Qiu Y. Microfluidic vascular organoids-on-chips: a promising platform for advancing plastic and reconstructive surgery. Chinese Journal of Plastic and Reconstructive Surgery. 2025.