מחקר זה מזהה חמישה סמנים ביולוגיים הקשורים ל-cuproptosis ול-ferroptosis בקוﻻיטיס כיבית באמצעות למידת מכונה משולבת, רצף RNA של תא בודד ואימות ניסויי, ובכך מספק תובנות לאבחנה קלינית ואימונותרפיה ממוקדת.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר מחקר
מיקוד בפרופטוזיס (Ferroptosis) וקופרופטוזיס (Cuproptosis) בקוलाइट כיבית: ממצאים מביו-אינפורמטיקה מקיפה ותיקוף ניסויי
במאמר זה
סיכום
תקציר
קולייטיס כיבית (UC) היא הפרעה מעיית כרונית עם פתוגנזה שאינה מוגדרת במלואה, ושיעורי שכיחות ואשפוז עולים במדינות מתועשות חדשות. ב-UC, מוות מוגבר של תאי אפיתל המעי משבש את מחסום הרירית ומעורר תגובות דלקתיות. פרופטוזיס (Ferroptosis) וקופרופטוזיס (Cuproptosis) הן שתי צורות של מוות תאי מתוכנן שתוארו לאחרונה. רוב המחקרים על UC בחנו תהליכים אלו בנפרד; עם זאת, תפקידם המשולב בהתקדמות ה-UC נותר לא מאופיין מספיק. כדי לחקור את תפקידם הסינרגי בפתוגנזה של UC, השתמשנו בגישה מדורגת הכוללת פרופיל טרנסקריפטומי רחב היקף לזיהוי מטרות מועמדות, ולאחריה תיקוף במודלים in vitro. גנים בעלי ביטוי שונה (DEGs) הושוו לגנים הקשורים לפרופטוזיס (FRGs) ולגנים הקשורים לקופרופטוזיס (CRGs). המטרות החופפות תועדפו באמצעות קונסנזוס של אלגוריתמי למידת מכונה ואנליזת רשת של ביטוי גנים משותף משוקלל (WGCNA). חמישה סמנים ביולוגיים — LCN2, IDO1, CXCL2, NOS2, ו-CD274 — הראו עלייה משמעותית בביטוי ב-UC. אנליזה של תאים בודדים אפיינה את ביטוים בסוגי תאים שונים, כאשר LCN2 ו-NOS2 היו מועשירים בעיקר בתאי אפיתל. הרלוונטיות המכניסטית של סמנים אלו הוערכה בהמשך באמצעות בדיקות in vitro. טיפול במעכבי פרופטוזיס או קופרופטוזיס הקל על דלקת הקשורה ל-UC ושינה את ביטוי הסמנים הביולוגיים במודלים של תאי Caco-2. ממצאים אלו מזהים חמישה סמנים ביולוגיים הקשורים להתקדמות UC ומספקים ראיות ניסיוניות התומכות בפוטנציאל יישומם באבחון קליני ובהתערבות טיפולית.
מבוא
קוליטיס כיבית (UC) היא מחלה דלקתית של המעי המתאפיינת בהישנות, והיא קשורה לנטל גלובלי הולך וגדל ולעלויות טיפול משמעותיות לטווח ארוך1,2. למרות שטיפולים באמינוסליצילטים, קורטיקוסטרואידים, תרופות ביולוגיות וטיפולים במולקולות קטנות הרחיבו את אפשרויות הטיפול, השגת רמיסיה עמידה נותרה מאתגרת עבור מטופלים רבים3,4. צורך קליני לא מסופק זה מדגיש את החשיבות של זיהוי סממנים מולקולריים ניתנים לשחזור ומנגנונים ניתנים לטיפול שעשויים לתמוך באבחנה מוקדמת יותר ובטיפול מונחה-מנגנון5.
פרופטוזיס (Ferroptosis) היא צורה של מוות תאי מווסת התלוי בברזל, המונעת על ידי פריקסדציה של ליפידים, דלדול של גלוטתיון ופגיעה בפעילות של GPX46. רמות מוגברות של ברזל ומלונדיאלדהיד ב-UC עולות בקנה אחד עם פגיעה אפיתליאלית פרופטוטית, בעוד שהפעלה ניסיונית של ציר ה-SLC7A11–GSH–GPX4 או עיכוב ישיר של פרופטוזיס יכולים להגן על מחסום המעי7,8.
קופרופטוזיס (Cuproptosis), שתואר בשנת 2022, מופעל כאשר נחושת נקשרת לחלבונים מיטוכונדריאליים שעברו ליפויליזציה, מה שמוביל לצבירת חלבונים ולעקה פרוטאו-טוקסית9. מכיוון שהמעי ממלא תפקיד מרכזי בטיפול בנחושת, שיבוש של מסלול זה עשוי להגביר פגיעה אפיתלית חמצונית ודלקתית ב-UC10.
פרופטוזיס (Ferroptosis) וקופרופטוזיס (cuproptosis) עשויים להתלכד דרך חוסר איזון של יוני מתכות, מטבוליזם מיטוכונדריאלי, דלדול גלוטתיון ועקה חמצונית11. עם זאת, השאלה האם קשר הדדי זה מייצר חתימה מולקולרית הניתנת לשחזור ב-UC והאם חתימה כזו מגיבה לעיכוב ספציפי למסלול, נותרה לא פתורה.
השערת המחקר הייתה כי הפרה של הדיאלוג (crosstalk) בין פרופטוזיס (ferroptosis) לקופרופטוזיס (cuproptosis) ב-UC מתכנסת לחתימה של סמנים ביולוגיים הניתנים לשחזור, שניתן לתת להם עדיפות במערכי נתונים טרנסקריפטומיים של תאים בודדים ושל אוכלוסיות תאים (bulk), ולהפחית אותם באמצעות עיכוב ספציפי למסלול במודל של פגיעה באפיתל המעי. בהתאם לכך, שולבו ביו-אינפורמטיקה של מספר קוהורטות, למידת מכונה, ניתוח תאים בודדים וניסויים ממוקדים בתאי Caco-2 כדי לזהות ולהעריך תפקודית סממנים ביולוגיים מועמדים (איור 1).
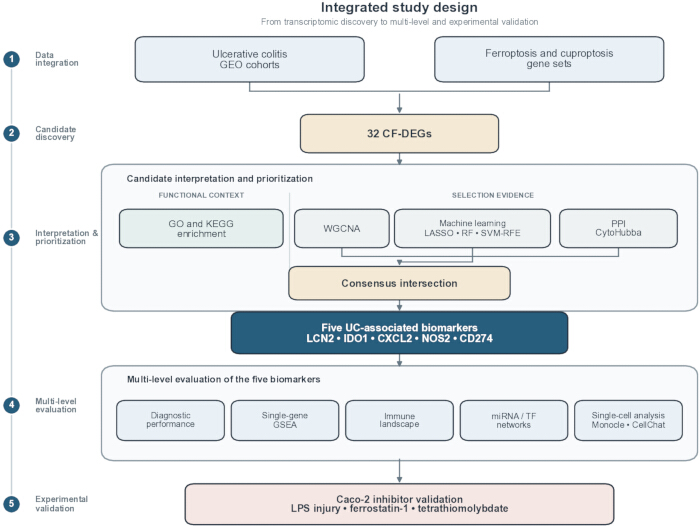
איור 1: זרימת עבודת המחקר. זרימת עבודה משולבת לסריקה טרנסקריפטומית של מספר קוהורטות, תיעדוף סמנים ביולוגיים מבוסס רשתות ולמידת מכונה, לוקליזציה של תא בודד ותיקוף מבוסס מעכבים בתאי Caco-2. UC: colitis ulcerative; GEO: Gene Expression Omnibus; WGCNA: weighted gene co-expression network analysis; PPI: protein–protein interaction; ROC: receiver operating characteristic; GSEA: gene set enrichment analysis. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
מחקר זה השתמש במערכי נתונים הזמינים לציבור ובקווי תאים אנושיים הזמינים מסחרית. לא היו מעורבים משתתפים אנושיים, רקמות אנושיות שנאספו לאחרונה או בעלי חולחול; לפיכך, לא נדרש אישור מוועדת אתיקה מוסדית. כלי המחקר, התוכנות והמשאבים המקוונים ששימשו בפרוטוקול מפורטים בטבלת החומרים.
1. עיבוד נתונים לניתוח ביטוי דיפרנציאלי
כדי לבסס את קבוצות הגילוי והתיקוף הטרנסקריפטומיות, בוצע חיפוש במאגר הנתונים Gene Expression Omnibus (GEO) באמצעות המונח “ulcerative colitis”. ארבעה סטים של נתונים — GSE87466, GSE92415, GSE107499 and GSE75214 — שימשו כסט האימון, בעוד ש-GSE47908 נשמר לתיקוף חיצוני. סטי נתוני האימון נורמלו ועברו תיקון אפקטים של אצוות (batch-correction) באמצעות ComBat בתוכנת Sangerbox 3.0, בעוד שסט נתוני התיקוף עובד באופן עצמאי.
סה"כ 583 גנים הקשורים לפרופטוזיס (FRGs) הופקו מ-FerrDB והושלמו בגנים שדווחו בספרות המקצועית כדי להפחית הטיות הנובעות ממקור יחיד12סט של 96 גנים הקשורים לקופרופטוזיס (CRGs) נערך מתוך מחקרים שפורסמו12,13,14ביטוי דיפרנציאלי נותח באמצעות limma עם ספי thresholds של |log₂ שינוי מכפלה > 1 ובתיקון Benjamini–Hochberg P < 0.05. תרשימי אבחון של נורמליזציה, תיקון אפקט של סדרות (batch correction), ביטוי דיפרנציאלי והקבצה מוצגים ב- איור משלים 1הרכב הדגימות, הפלטפורמות והקצבת הקוהורטות מפורטים ב- טבלה נלווית 1.
2. זיהוי של CF-DEGs ב-UC
ניתוח מתאם פירסון בוצע תוך שימוש בסף של |r| > 0.5 ו- P < 0.05 כדי לזהות FRGs ו- CRGs בעלי ביטוי משותף. קבוצת הגנים שהתקבלה הועברה לחיתוך עם הגנים בעלי ביטוי דיפרנציאלי (DEGs) כדי לזהות גנים בעלי ביטוי דיפרנציאלי המבטאים ביטוי משותף של קופרופטוזיס-פרופטוזיס (CF-DEGs).
3. אנליזת העשרה
ניתוחי העשרה של Gene Ontology (GO) ו-Kyoto Encyclopedia of Genes and Genomes (KEGG) בוצעו באמצעות clusterProfiler והפלטפורמה Bioinformatics.com.cn. ערך P < 0.05 המתוקנן לפי Benjamini–Hochberg שימש כסף המובהקות. תרשימי העשרה מוצגים ב-איור משלים 2.
4. ניתוח רשת ביטוי משותף שקולה של גנים (WGCNA)
המבנה המודולרי העומד בבסיס פרופילי ביטוי הגנים נותח באמצעות ניתוח רשת ביטוי גנים משותף משוקלל (WGCNA). דגימות חריגות זוהו והוצאו באמצעות קיבוב היררכי בשילוב עם הפונקציה goodSamplesGenes. לאחר מכן נקבע ערך סף רך (β) מתאים כדי לספק את קריטריון הטופולוגיה חסרת הקנה (scale-free topology) לבניית הרשת.
נתוני הביטוי המעובדים שימשו לבניית מטריצת חפיפה טופולוגית (TOM) לצורך ניתוח ביטוי גנים משותף (co-expression). באמצעות גישת חיתוך עץ דינמי, גנים בעלי דפוסי ביטוי עקביים מאוד אורגנו למודולי גנים, כאשר כל מודול הכיל לפחות 100 גנים. קשרים בין גנים ייצגיים של המודולים (MEs) לבין פנוטיפים נותחו כדי לזהות מודולים הקשורים לתהליך המחלה ולהפיק את קבוצות הגנים התואמות. אבחון סינון של WGCNA מוצג ב-איור משלים 3.
5. בחירת סמנים ביולוגיים
כדי לתעדף מועמדים להמשך מעקב ניסיוני, הוחלו במקביל שלושה אלגוריתמים של למידת מכונה15. רגרסיית LASSO (Least absolute shrinkage and selection operator) שימשה לבחירת תכונות, יער אקראי (random forest) עם ntree = 500 שימש לדירוג חשיבות הגנים, ושיטת SVM-RFE (support vector machine–recursive feature elimination) שימשה לזיהוי תת-קבוצת התכונות עם שגיאת האימות הצולב (cross-validation error) הנמוכה ביותר. אבחוני סריקה מלאים מוצגים באיור משלים 5.
חשיבות הגנים הוערכה על פי התרומה של גנים בודדים לדיוק הסיווג, וגנים שדורגו גבוה נאספו כדי ליצור סט גנים ראשוני16. אלגוריתם ה-SVM-RFE ביצע סינון מאפיינים ואופטימיזציה של המודל באמצעות השמטה איטרטיבית של מאפיינים, מה שאיפשר זיהוי של תת-קבוצת המאפיינים האופטימלית לסיווג17. גנים המשותפים לשלושת האלגוריתמים נחשבו כביומרקרים מועמדים שזוהו באמצעות למידה חישובית.
ה-CF-DEGs שימשו לבניית רשת אינטראקציית חלבון-חלבון (PPI), ו-CytoHubba שימשה לדירוג צומת-ליבה. החיתוך בין מודולי WGCNA מרכזיים, שלושת הפלטים של למידת המכונה ומערכת הליבה של ה-PPI הגדיר חמישה סממנים ביולוגיים מועמדים משולבים: LCN2, IDO1, CXCL2, NOS2 ו-CD274. גנים אלה סווגו כמועמדים אבחנאיים הקשורים ל-UC. ניסויי עיכוב המשך סיווגו את LCN2, IDO1, CXCL2 ו-NOS2 כסממנים המגיבים לעיכוב פרוטוזיס, ואת CD274 כסממן המגיב לעיכוב קופרוטוזיס. גנים אלה לא נחשבו לווסתים שמע (upstream regulators) מוכחים של אף אחת מהמסלולים.
6. פיתוח מודל חיזוי והערכה רב-שיטתית
כדי להעריך את פוטנציאל התרגום הקליני של חתימת הגנים שזוהתה, נבנה נומוגרמה באמצעות חבילת rms להערכת הביצועים האבחנתיים. ביצועי המודל הוערכו באמצעות עקומת כיול, מבחן Hosmer–Lemeshow (HL) ומדד ההתאמה של Harrell (C-index).
כיול המודל הוערך באמצעות מבחן HL וטעות מוחלטת ממוצעת (MAE). ערך P > 0.05 ו-MAE < 0.1 נקבעו כספי שערים להתאמה ומדויקות קבילה של המודל, בהתאמה. עקומות מאפיין תגובה (ROC) הופקו, והשטח תחת העקומה (AUC) חושב כדי להעריך את הביצועים הניבויים של הנומוגרמה עבור UC. מאגר נתונים בלתי תלוי שימש להערכת היכולת של המודל להכללה ויציבותו.
7. ניתוח העשרה של קבוצות גנים (GSEA)
בסט האימון, בוצע ניתוח מתאם של Spearman בין כל סמן ביולוגי לבין כל שאר הגנים. תוצאות המתאם דורגו כדי להפיק סט גנים מסודר. ניתוח העשרה של סט גנים (GSEA) בוצע באמצעות סט הגנים c2.cp.kegg_medicus.v2025.1.Hs.symbols ממאגר החתימות המולקולריות (MSigDB) כייחוס. מסלולים ביולוגיים עם P < 0.05 נחשבו להעשירה באופן מובהק.
8. ניתוח נוף חסוני
נעשה שימוש בכלי CIBERSORT ובמטריצת החתימה LM22 לביצוע אנליזת דקונבולוציה (deconvolution) של נתוני הביטוי ולהערכת הפרופורציות של 22 תתי-סוגים של תאי חיסון. לאחר מכן בוצע אנליזת מתאם ספירמן (Spearman correlation) כדי להעריך קשרים בין חמשת הסמנים הביולוגיים לבין תתי-הסוגים של תאי החיסון.
9. ניתוח רשת רגולטורית
מידע על ויסות של גורמי שעתוק (TF) ומיקרו-RNA (miRNA) הקשורים לגנים הופק ממאגרי המידע המשולבים ChEA3 ו-TarBase 9.0 באמצעות פלטפורמת NetworkAnalyst. MiRNAs הקשורים לפחות לשני צמתים נכללו ברשת הוויסות.
10. ריצוף RNA מתאיים בודדים (Single-cell RNA-seq)
בוצעו אינטגרציה למאגרי הנתונים של תאים בודדים של UC, GSE116222, הכולל שלושה דגימות בריאות ושלוש דגימות UC, ו-GSE214695, הכולל שש דגימות בריאות ושש דגימות UC. תאים נשמרו כאשר הם הכילו 200–5,000 גנים מזוהים, >1,000 מזהים מולקולריים ייחודיים (unique molecular identifiers), < 30% תמלילי מיטוכונדריה, < 3% תמלילי המוגלובין, ו-< 50% תמלילי ריבוסומים. לצורך נורמליזציה נעשה שימוש בפונקציה NormalizeData, ולצורך תיקון אפקט של סדרות (batch correction) לפני צבירה (clustering) ואנוטציה נעשה שימוש ב-Harmony.
לאחר הסינון, הנתונים נורמלו באמצעות פונקציית NormalizeData. נעשה שימוש ב-Harmony כדי למזער השפעות אלוף (batch effects) בין הדגימות. קירוב ומסגור של סבך אחיד (UMAP) והטמעה סטוכסטית של שכנים מפוצלים לפי התפלגות t (t-SNE) שימשו להפחתת ממדיים ולצבירה של תאים (cell clustering) על מנת לאפיין מבנים מקומיים וגלובליים בתוך אוכלוסיית התאים. בסך הכל 31,712 תאים באיכות גבוהה נשמרו להמשך הניתוח. סוגי התאים סווגו בהתאם לגנים מסמנים (marker genes) קנוניים של התאים.
ניתוח pseudotime בוצע באמצעות Monocle 2 כדי לבחון שינויים במצבים של תאי אפיתל ותאי מיאלואיד מרקמות UC. נבחנו מסלולי התפתחות של תאים והבדלים בין קבוצות, ותבניות ביטוי של סמנים ביולוגיים לאורך מסלול ה-pseudotime הוצגו באופן ויזואלי.
נעשה שימוש ב-CellChat כדי להעריך תקשורת בין תאים בין תתי-אוכלוסיות של תאי אפיתל ותאי מיאלואיד. דפוסי ביטוי ספציפיים לתתי-אוכלוסיות שולבו כדי להסיק הסתברויות לאינטראקציה ומסלולי איתות מרכזיים בין תאי אפיתל לתאי מיאלואיד, וכדי לאפיין את רשתות הבקרה הבין-תאיות הפוטנציאליות שלהם.
11. ניסויי תאים
תאי אדנוקרצינומה של המעי הגס Caco-2 אנושיים תורבדו במדיום Dulbecco’s modified Eagle המכיל 10% fetal bovine serum, 100 U/mL penicillin ו-100 µg/mL streptomycin בטמפרטורה של 37 °C וב-5% CO₂. תאי Caco-2 נבחרו כמודל שכבה אפיתליאלית אחת (monolayer) הניתן לשחזור עבור בדיקות של מחסום מעי ופגיעה דלקתית; עם זאת, מקורם הממאיר מגביל הכללה ישירה לאפיתליום של מעי הגס שאינו ממאיר. מידע על מספר המעברים (passage) לא היה זמין ברשומות הניסויים שנשמרו.
מודל של פגיעה דלקתית in vitro הוקם על ידי חשיפת תאים ל-1 µg/mL lipopolysaccharide (LPS) למשך 24 h. התאים חולקו לקבוצת ביקורת שקיבלה dimethyl sulfoxide (הנושא), קבוצת LPS בלבד, קבוצת LPS + 4 µM ferrostatin-1, או קבוצת LPS + 40 µM tetrathiomolybdate, עם ריכוזי ממס סופיים תואמים. קבוצת ה-LPS בלבד שימשה כביקורת חיובית לפגיעה/מודל לצורך השוואות של הצלה באמצעות מעכבים.
- חיוניות תאיים
נבדקה חיוניות התאים באמצעות בדיקת חיוניות תאים בהתאם להוראות היצרן. לאחר דגירה ב- 37 °C במשך כשעתיים, נמדדה הבליעה באורך גל של 450 ננומטר באמצעות קורא מיקרופלטה. - מדידת MDA ו-Fe²⁺ רמות
מאלונדיאלדהיד (MDA) וברזל (Fe) תוך-תאיים2⁺ את הרמות נמדו באמצעות ערכות הבדיקה המתאימות, בהתאם להוראות היצרן. כמות החלבון הכוללת נקבעה באמצעות בדיקת חומצה ביצינכונינית (BCA), וכל קריאה נורמלה לתכולת החלבון של הדגימה המתאימה. - בדיקת גשושית פלורסצנטית ליון נחושת
לאחר הסרת מצע התרבית, Cu2⁺נוסף גשש פלואורסצנטי ספציפי בריכוז סופי של 1 µM והודגרו למשך 30 דקות ב- 37 °Cהתמונות הופקו באופן מיידי ללא שטיפה באמצעות מיקרוסקופ פלואורסצנציה הפוך באורכי גל של עירור ופליטה של 510 ו-578 ננומטר, בהתאמה. הגדרות הרכישה נותרו קבועות בכל הקבוצות, וסרגל קנה המידה של התמונה כולל כיול של 50 µm. - RT-qPCR
בוצלה בידוד של RNA כולל באמצעות ריאגנט למיצוי RNA המבוסס על פנול-גואנידיניום. DNA משלים סונתז מ- 1 µg של RNA באמצעות ערכה לסינתזה של DNA משלים לגדיל ראשון, ובמטרה לבצע real-time PCR נעשה שימוש בריאגנטים מבוססי SYBR Green. כל תגובה בוצעה בשלוש חזרות טכניות. רצפי הפריימרים מופיעים ב- טבלה משלימה 2, ומישור השפעות היחסי של ה-mRNA חושב באמצעות שיטת ה-2^-ΔΔCt⁻ΔΔCt שיטה.
12. ניתוח סטטיסטי
נורמליות והומוגניות של השונות הוערכו באמצעות מבחני Shapiro–Wilk ו-Levene המבוסס על החציונים, בהתאמה. נתונים שעמדו בשתי ההנחות נותחו באמצעות t-test דו-זנבי למדגמים בלתי תלויים או ניתוח שונות חד-גורמי (one-way ANOVA), ולאחריו מבחן Tukey’s honestly significant difference. כאשר אחת מההנחות לא התקיימה, נעשה שימוש ב-Welch’s t-test או בניתוח שונות של Welch, ולאחריו השוואות Games–Howell.
התוצאות מוצגות כממוצע ± סטיית תקן. מספר החזרות ביולוגיות בפועל, ערכי P מדויקים דו-צדדיים ובדיקות הנחות מדווחים בטבלה משלימה 3. גיליון המקור של איור 13 בארכיון מכיל פחות חזרות של בקרה עבור פאנלים A (n = 4), C (n = 4), ו-F (n = 2), בעוד שכל שילובי הפאנל/קבוצה האחרים מכילים n = 6.
ניתוחים חישוביים בוצעו באמצעות R וספריות העבודה limma, WGCNA, clusterProfiler, glmnet, randomForest, e1071, pROC, rms, Seurat v4, Harmony, Monocle 2, CellChat, ו-Cytoscape/CytoHubba. משאבים מקוונים שנעשה בהם שימוש כללו את FerrDB, GEO, STRING, ChEA3, TarBase 9.0, NetworkAnalyst, CIBERSORT/LM22, MSigDB, Bioinformatics.com.cn, ו-Sangerbox 3.0.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
זיהוי ואנוטציה פונקציונלית של גנים המבטאים ביטוי משותף של cuproptosis ו-ferroptosis
שולבו ארבעה מאגרי נתוני אימון הכוללים 421 דגימות UC ו-97 ביקורות בריאות. זוהו סך הכל 551 גנים עם ביטוי Differentially Expressed, הכוללים 362 גנים עם ביטוי מוגבר (upregulated) ו-189 גנים עם ביטוי מופחת (downregulated). ניתוח מתאמי העלה 444 גנים הקשורים ל-ferroptosis ו-cuproptosis, וחיתוך עם הגנים בעלי הביטוי השונה הניב 32 גנים בעלי ביטוי שונה המבטאים ביטוי משותף של cuproptosis ו-ferroptosis (CF-...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
מחקר זה שילב טרנסקריפטומיקה של אוכלוסיות תאים (bulk transcriptomics), למידת מכונה, ניתוח של תאים בודדים וניסויי תאים ממוקדים כדי לבחון את השפע והקשר (crosstalk) בין פרופטוזיס (ferroptosis) לקופרופטוזיס (cuproptosis) בקוﻻיטיס כיבבית (UC). חמישה מועמדים לאבחנה הקשורים ל-UC נמצאו ניתנים לשחזור הן בקבוצת הגילוי והן בקבוצת האימות, אותרו בעיקר במדורים האפיטלייאליים והמיאלואידיים, והראו ביטוי המגיב לעיכוב של מסלולים בתאי Caco-2. ממצאים אלו תומכים בזרימת עבודה מדורגת שבה תיעדוף חישובי מנחה אימות ביולוגי ממוקד, תוך הימנעות מהטענה...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
למחברים אין דבר להצהיר עליו.
תודות
עבודה זו נתמכה על ידי פרויקט מלגות Young Qihuang של המנהל הלאומי לרפואה סינית מסורתית (מענק מס' 2022256). תודה מוענית לכל חברי צוותי המחקר באוניברסיטת ליאונינג לרפואה סינית מסורתית ובבית החולים השלישי המסופח לאוניברסיטת ליאונינג לרפואה סינית מסורתית על התמיכה הטכנית והתרומה לאוצרות הנתונים ולניתוח הביואינפורמטיקה.
OpenAI Codex (OpenAI) שימש במהלך העריכה אך ורק כדי לסייע בעריכה של השפה האנגלית, בפורמט המסמך ובבדיקת איכות האיורים. כל התוכן המדעי, הניתוחים, הציטוטים וההצגה הסופית נסקרו ואומתו על ידי המחברים, הנושאים באחריות מלאה לכתב היד.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| ערכה לבדיקת חלבון BCA | Beyotime Institute of Biotechnology | P0010 | כימות חלבונים לצורך נורמליזציה. |
| Bioinformatics.com.cn | Bioinformatics.com.cn | פלטפורמה מקוונת; נגישה בשנת 2026 | פלטפורמה לניתוח ולהצגה חזותית של GO/KEGG. |
| קו תאי Caco-2 | ATCC | HTB-37 | קו תאי אדנוקרצינומה של המעי הגס והחך של בני אדם המשמש למודל של פגיעה אפיתלית. |
| ערכה לספירת תאים 8 (Cell Counting Kit-8) | GLPBio | GK10001 | בדיקת חיוניות תאים שנמדדה באורך גל של 450 ננומטר. |
| CIBERSORT עם חתימת LM22 | מפתחי CIBERSORT | LM22 | דה-קונוולוציה (Deconvolution) של 22 פракציות של תאי מערכת החיסון. |
| ChEA3 | מעבדת מעיין | פלטפורמה מקוונת; נגישה בשנת 2026 | העשרה של גורמי שעתוק וחיזוי רשתות בקרה. |
| CO2 אינקובטור | לא הוקלט | לא רלוונטי | אינקובטור לח (Humidified incubator) המשמש לתרבית ב- 37 °C ו-5% CO22. |
| נחושת<סגנון ספאן ="גודל גופן: 10.8333px;">2+ גשוש פלואורסצנטי | BIOFOUNT | CAS 98907-26-7 | נחושת תוך-תאית (Cu)2+ גילוי פלואורסצנציה. |
| Cytoscape עם CytoHubba | קונסורציום Cytoscape | הגרסה לא תועדה | ויזואליזציה של PPI ודירוג צמתי-ליבה. |
| מצע דאלבקו המשופר (Dulbecco's modified Eagle medium) | Gibco | 11965092 | מצע גידול לתאי Caco-2. |
| דימתיל סולפוקסיד | לא הוקלט | לא רלוונטי | ביקורת נשאי תרופה (Vehicle control). |
| סרום בקר עוברי | לא הוקלט | לא רלוונטי | תוסף מצע בריכוז של 10%. |
| Fe2+ ערכת בדיקה | Abcam | ab83366 | מדידת Fe תוך-תאי2+. |
| FerrDB | מפתחי FerrDB | מאגר נתונים מקוון; נגישה בשנת 2026 | מקור של גנים הקשורים לפרופטוזיס (ferroptosis). |
| Ferrostatin-1 | Sigma-Aldrich | SML0583 | מעכב פרופטוזיס; ריכוז סופי 4 µM. |
| הרמוניה | מכון ברוד/קהילה | גרסה לא תועדה | תיקון אפקטי batch ברמה התאית (Single-cell batch correction). |
| מיקרוסקופ פלואורסצנציה הפוך | Olympus | IX71 | נחושת2+ דימות פלואורסצנציה בעירור/פליטה של 510/578 ננומטר. |
| ליפופוליסכריד | לא הוקלט | לא רלוונטי | גירוי פגיעה דלקתית ב- 1 µg/mL למשך 24 שעות. |
| ערכה לבדיקת מלונדיאלדהיד | Beyotime Institute of Biotechnology | S0131S | מדידה של פירוקסידציה של ליפידים. |
| קורא מיקרו-פלטות | לא הוקלט | לא רלוונטי | מדידת בליעה באורך גל של 450 ננומטר. |
| Monocle | Bioconductor/קהילה | גרסה 2 | ניתוח פסאודו-זמן של תא בודד. |
| מאגר חתימות מולקולריות | Broad Institute | c2.cp.kegg_medicus.v2025.1.Hs | סט גנים ייחוס עבור GSEA. |
| NetworkAnalyst | מפתחי NetworkAnalyst | פלטפורמה מקוונת; נגישה לשנת 2026 | אינטגרציה של רשתות גורמי שעתוק ו-miRNA. |
| פניצילין–סטרפטומייצין | לא תועד | לא רלוונטי | 100 U/mL פניצילין ו- 100 µg/mL סטרפטומייצין. |
| R | R Foundation for Statistical Computing | גרסה לא תועדה | סביבת ניתוח ביואינפורמטית. |
| סט חבילות R | CRAN/Bioconductor | בניית חבילות שלא תועדו | סבבי עבודה של limma, WGCNA, clusterProfiler, glmnet, randomForest, e1071, pROC, ו-rms. |
| מערכת PCR בזמן אמת | לא הוקלט | לא רלוונטי | מכשיר SYBR Green RT-qPCR. |
| ערכה לסנתז גדיל ראשון של cDNA מסוג RevertAid | Thermo Fisher Scientific | K1622 | סינתזת cDNA של הגדיל הראשון מ- 1 µg RNA. |
| Sangerbox | מפתחי Sangerbox | 3.0 | נורמליזציה ותיקון אפקטים של סדרות (batch correction) באמצעות ComBat. |
| Seurat | מעבדת Satija/קהילה | גרסה 4 | בקרת איכות של תא בודד, נורמליזציה, אשכול (clustering) וויזואליזציה. |
| תוכנה לניתוח סטטיסטי | לא הוקלט | לא רלוונטי | ניתוח סטטיסטי של ניסויי התאים המקוריים. |
| אנא ספק את הטקסט באנגלית שברצונך לתרגם. | קונסורציום STRING | מאגר נתונים מקוון; נגישה בשנת 2026 | חלבון–בניית רשת אינטראקציות בין חלבונים. |
| ריאגנטים ל-PCR בזמן אמת עם SYBR Green | Takara | RR820A | PCR כמותי בזמן אמת. |
| TarBase | כלי DIANA | 9.0 | miRNA הנתמך ניסויית–אינטראקציות גנומיות. |
| טטרתיומוליבдат | Sigma-Aldrich | 323446 | קלטור נחושת; ריכוז סופי 40 µM. |
| ריאגנט TRIzol | Takara | 9108 | הפקת RNA כולל. |
מקורות
- Fu M, Wang QW, Liu YR, Chen SJ. The role of the three major intestinal barriers in ulcerative colitis in the elderly. Ageing Res Rev. 2025;108:102752. https://doi.org/10.1016/j.arr.2025.102752.
- Le Berre C, Honap S, Peyrin-Biroulet L. Ulcerative colitis. Lancet. 2023;402:571–584.
- Wangchuk P, Yeshi K, Loukas A. Ulcerative colitis: Clinical biomarkers, therapeutic targets, and emerging treatments. Trends Pharmacol Sci. 2024;45:892–903.
- Kobayashi T, et al. Ulcerative colitis (primer). Nat Rev Dis Primers. 2020;6:74. https://doi.org/10.1038/s41572-020-0205-x.
- Huang J, et al. Comprehensive analysis of cuproptosis-related genes in immune infiltration and diagnosis in ulcerative colitis. Front Immunol. 2022;13:1008146. https://doi.org/10.3389/fimmu.2022.1008146.
- Liu Y, et al. Development and experimental validation of machine learning-based disulfidptosis-related ferroptosis biomarkers in inflammatory bowel disease. Genes. 2025;16:496. https://doi.org/10.3390/genes16050496.
- Hu W, et al. HIF-1α alleviates ferroptosis in ulcerative colitis by regulation of GPX4. Cell Death Dis. 2025;16:542. https://doi.org/10.1038/s41419-025-07883-8.
- Zhao C, et al. FXR acts as a therapeutic target for ulcerative colitis via suppressing ferroptosis. Mol Med. 2025;31:258. https://doi.org/10.1186/s10020-025-01305-3.
- Tsvetkov P, et al. Copper induces cell death by targeting lipoylated TCA cycle proteins. Science. 2022;375:1254–1261.
- Liu J, et al. Unveiling the cuproptosis in colitis and colitis-related carcinogenesis: A multifaceted player and immune moderator. Research (Wash D C). 2025;8:0698. https://doi.org/10.34133/research.0698.
- Liu N, Chen M. Crosstalk between ferroptosis and cuproptosis: From mechanism to potential clinical application. Biomed Pharmacother. 2024;171:116115. https://doi.org/10.1016/j.biopha.2023.116115.
- Hao S, et al. Development of prognostic model incorporating a ferroptosis/cuproptosis-related signature and mutational landscape analysis in muscle-invasive bladder cancer. BMC Cancer. 2024;24:958. https://doi.org/10.1186/s12885-024-12716-1.
- Wang Z, et al. Exosomes secreted by macrophages upon copper ion stimulation can promote angiogenesis. Mater Sci Eng C Mater Biol Appl. 2021;123:111981. https://doi.org/10.1016/j.msec.2021.111981.
- Zou M, Zhang W, Zhu Y, Xu Y. Identification of 6 cuproptosis-related genes for active ulcerative colitis with both diagnostic and therapeutic values. Medicine (Baltimore). 2023;102:e35503. https://doi.org/10.1097/MD.0000000000035503.
- Chen W, Miao J, Chen J, Chen J. Development of machine learning models for diagnostic biomarker identification and immune cell infiltration analysis in PCOS. J Ovarian Res. 2025;18:1. https://doi.org/10.1186/s13048-024-01582-8.
- Lv JH, et al. WGCNA combined with machine learning to find potential biomarkers of liver cancer. Medicine (Baltimore). 2023;102:e36536. https://doi.org/10.1097/MD.0000000000036536.
- Wu Q, Yang C, Huang C, Lin Z. Screening key genes for intracranial aneurysm rupture using LASSO regression and the SVM-RFE algorithm. Front Med. 2025;11:1487224. https://doi.org/10.3389/fmed.2024.1487224.
- Tang D, Pu B, Liu S, Li H. Identification of cuproptosis-associated subtypes and signature genes for diagnosis and risk prediction of ulcerative colitis based on machine learning. Front Immunol. 2023;14:1142215. https://doi.org/10.3389/fimmu.2023.1142215.
- Yang C, et al. Identification of cuproptosis hub genes contributing to the immune microenvironment in ulcerative colitis using bioinformatic analysis and experimental verification. Front Immunol. 2023;14:1113385. https://doi.org/10.3389/fimmu.2023.1113385.
- Yadav SK, et al. Fecal Lcn-2 level is a sensitive biological indicator for gut dysbiosis and intestinal inflammation in multiple sclerosis. Front Immunol. 2022;13:1015372. https://doi.org/10.3389/fimmu.2022.1015372.
- Luo Q, et al. Bioinformatics analysis reveals potential crosstalk genes and molecular mechanisms between ulcerative colitis and psoriasis. Arch Dermatol Res. 2024;317:118. https://doi.org/10.1007/s00403-024-02856-1.
- Nielsen OH, et al. Rectal dialysate and fecal concentrations of neutrophil gelatinase-associated lipocalin, interleukin-8, and tumor necrosis factor-alpha in ulcerative colitis. Am J Gastroenterol. 1999;94:2923–2928.
- Sun Y, et al. Natural polyphenol rutin inhibits ferroptosis in ulcerative colitis by regulating lipid metabolism via blocking the LCN2-ALOX15 axis. Food Funct. 2025;16:7169–7186.
- Sofia MA, et al. Tryptophan metabolism through the kynurenine pathway is associated with endoscopic inflammation in ulcerative colitis. Inflamm Bowel Dis. 2018;24:1471–1480.
- Shon WJ, et al. Severity of DSS-induced colitis is reduced in Ido1-deficient mice with down-regulation of TLR-MyD88-NF-kB transcriptional networks. Sci Rep. 2015;5:17305. https://doi.org/10.1038/srep17305.
- Zeng T, et al. Indoleamine 2, 3-dioxygenase 1 enhances hepatocytes ferroptosis in acute immune hepatitis associated with excess nitrative stress. Free Radic Biol Med. 2020;152:668–679.
- Pavlidis P, et al. Interleukin-22 regulates neutrophil recruitment in ulcerative colitis and is associated with resistance to ustekinumab therapy. Nat Commun. 2022;13:5820. https://doi.org/10.1038/s41467-022-33333-3.
- Urzua U, et al. The ovarian transcriptome of reproductively aged multiparous mice: Candidate genes for ovarian cancer protection. Biomolecules. 2020;10:113. https://doi.org/10.3390/biom10010113.
- Zahn A, et al. Transcript levels of different cytokines and chemokines correlate with clinical and endoscopic activity in ulcerative colitis. BMC Gastroenterol. 2009;9:13. https://doi.org/10.1186/1471-230X-9-13.
- Yi Q, et al. Application of genomic selection and experimental techniques to predict cell death and immunotherapeutic efficacy of ferroptosis-related CXCL2 in hepatocellular carcinoma. Front Oncol. 2022;12:998736. https://doi.org/10.3389/fonc.2022.998736.
- Kolios G, Valatas V, Ward SG. Nitric oxide in inflammatory bowel disease: A universal messenger in an unsolved puzzle. Immunology. 2004;113:427–437.
- Cheng F, et al. Identification of differential intestinal mucosa transcriptomic biomarkers for ulcerative colitis by bioinformatics analysis. Dis Markers. 2020;2020:8876565. https://doi.org/10.1155/2020/8876565.
- Tratensek A, et al. Oxidative stress-related biomarkers as promising indicators of inflammatory bowel disease activity: A systematic review and meta-analysis. Redox Biol. 2024;77:103380. https://doi.org/10.1016/j.redox.2024.103380.
- Zhang JL, et al. Jatrorrhizine alleviates ulcerative colitis via regulating gut microbiota and NOS2 expression. Gut Pathog. 2022;14:41. https://doi.org/10.1186/s13099-022-00516-7.
- Li H, et al. Development of a prognostic model based on ferroptosis-related genes for colorectal cancer patients and exploration of the biological functions of NOS2 in vivo and in vitro. Front Oncol. 2023;13:1133946. https://doi.org/10.3389/fonc.2023.1133946.
- Seibt TM, Proneth B, Conrad M. Role of GPX4 in ferroptosis and its pharmacological implication. Free Radic Biol Med. 2019;133:144–152.
- Holland T, Mattner J. Intestinal eosinophils: Characterization of elusive granulocytes as anti-bacterial and immunomodulatory effector cells in colitis. Signal Transduct Target Ther. 2023;8:321. https://doi.org/10.1038/s41392-023-01588-4.
- Nguyen J, et al. Overexpression of programmed death ligand 1 in refractory inflammatory bowel disease. Hum Pathol. 2022;126:19–27.
- Shen Z, et al. Exploration of a screening model for intrahepatic cholangiocarcinoma patients prone to cuproptosis and mechanisms of the susceptibility of CD274-knockdown intrahepatic cholangiocarcinoma cells to cuproptosis. Cancer Gene Ther. 2023;30:1663–1678.
- Niu Y, et al. Platelet activation stimulates macrophages to enhance ulcerative colitis through PF4/CXCR3 signaling. Int J Mol Med. 2025;55:78. https://doi.org/10.3892/ijmm.2025.5499.
- Qu F, et al. The role of macrophage polarization in ulcerative colitis and its treatment. Microb Pathog. 2025;199:107227. https://doi.org/10.1016/j.micpath.2025.107227.
- Danne C, Skerniskyte J, Marteyn B, Sokol H. Neutrophils: From IBD to the gut microbiota. Nat Rev Gastroenterol Hepatol. 2024;21:184–197.
- Zhao Q, et al. CD4+ T cell activation and concomitant mTOR metabolic inhibition can ablate microbiota-specific memory cells and prevent colitis. Sci Immunol. 2020;5:eabc6373. https://doi.org/10.1126/sciimmunol.abc6373.
- Chen E, et al. Inflamed ulcerative colitis regions associated with MRGPRX2-mediated mast cell degranulation and cell activation modules, defining a new therapeutic target. Gastroenterology. 2021;160:1709–1724.
- Xu H, Wu C, Wang D, Wang H. Alleviating effect of Nexrutine on mucosal inflammation in mice with ulcerative colitis: Involvement of the RELA suppression. Immun Inflamm Dis. 2024;12:e1147. https://doi.org/10.1002/iid3.1147.
- Luo Y, et al. Rab27A promotes cellular apoptosis and ROS production by regulating the miRNA-124-3p/STAT3/RelA signalling pathway in ulcerative colitis. J Cell Mol Med. 2020;24:11330–11342.
- Pace F, Watnick PI. The interplay of sex steroids, the immune response, and the intestinal microbiota. Trends Microbiol. 2021;29:849–859.
- Rodriguez J, Olivares M, Delzenne NM. Implication of the gut microbiota in metabolic inflammation associated with nutritional disorders and obesity. Mol Nutr Food Res. 2021;65:e1900481. https://doi.org/10.1002/mnfr.201900481.
- Ojha R, et al. Emerging role of circulating microRNA in the diagnosis of human infectious diseases. J Cell Physiol. 2019;234:1030–1043.
- Tian Y, et al. LncRNA CDKN2B-AS1 relieved inflammation of ulcerative colitis via sponging miR-16 and miR-195. Int Immunopharmacol. 2020;88:106970. https://doi.org/10.1016/j.intimp.2020.106970.
- Kulkarni N, Pathak M, Lal G. Role of chemokine receptors and intestinal epithelial cells in the mucosal inflammation and tolerance. J Leukoc Biol. 2017;101:377–394.
- Stadnyk AW. Intestinal epithelial cells as a source of inflammatory cytokines and chemokines. Can J Gastroenterol. 2002;16:241–246.
- Xu Y, Chen N. DUOX2-mediated innate immune hyperactivation drives macrophage M1 polarization via the APP-CD74 axis in inflammatory bowel disease. Presented at: 19th Congress of the European Crohn’s and Colitis Organisation (ECCO 2026); Stockholm, Sweden; 2026. https://academic.oup.com/ecco-jcc/article/20/Supplement_1/jjaf231.232/8432779.
- Shi CL, et al. Single-nucleus transcriptome unveils the role of ferroptosis in ischemic stroke. Heliyon. 2024;10:e32727. https://doi.org/10.1016/j.heliyon.2024.e32727.
- Tu H, et al. Integrated single-cell analysis with experimental validation reveals ANXA2 as a therapeutic target for ferroptosis in inflammatory bowel disease. Am J Transl Res. 2026;18:91–111.
- Yan C, et al. Exploring the anti-ferroptosis mechanism of Kai-Xin-San against Alzheimer's disease through integrating network pharmacology, bioinformatics, and experimental validation strategy in vivo and in vitro. J Ethnopharmacol. 2024;326:117915. https://doi.org/10.1016/j.jep.2024.117915.
- Shaik JP, Ahmad A. Pharmacological mechanism of cinnamic acid in the treatment of prostate cancer by network pharmacology. Archives of Medical Reports. 2024;1(2):1–6. https://doi.org/10.26524/amr.2024.2.1.
- Nimmagadda S, Patel S, MR Vishwathika. Targeting ferroptosis: A novel therapeutic avenue in osteoarthritis and bone degeneration. Archives of Medical Reports. 2025;2(5):6–9. https://doi.org/10.26524/amr.2025.5.2.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.