שמונה שבועות של אימון על מסוע היו קשורים לשינויים תעתוקיים בלב, במחסום המעי ובקשר ל-Nlrp3, וכן לשינוי במיקרוביוטה של המעי, ובפרט לעלייה ב-Akkermansia muciniphila, בעכברים עם סוכרת.
מאמר מחקר
תרגול על מסוע קשור לשינויים במחסום המעיים וביטוי הגן Nlrp3 בלב בעכברים עם סוכרת
במאמר זה
סיכום
תקציר
מחקר זה בחן קשרים בין פעילות גופנית, ביטוי גנים הקשורים למחסום המעי, ומצב לבבי Nlrp3 ביטוי גנים הקשור לאינפלמסום במודל עכברים סוכרתיים. הפרה מטבולית הושרה בעכברי C57BL/6J זכרים באמצעות תזונה עשירה בשומן בשילוב עם מינון נמוך של streptozotocin, ולאחריה 8 שבועות של אימון על מסוע (5° שיפוע, 12 מ'/דקה, 20–50 דקות/יום, 5 ימים/שבוע). בהשוואה לעכברי סוכרת שאינם פעילים, עכברים שעברו אימון הראו רמות נמוכות יותר של גלוקוז בצום, עמידות לאינסולין ורמות ליפידים בסרום, לצד רמות גבוהות יותר של קולוני... אוקלודין ביטוי mRNA (ביטוי יחסי: 0.38) ± 0.04 בעכברים סוכרתיים לעומת 0.79 ± 0.05 בעכברים שעברו אימון, P < 0.001), תפוקה לבבית נמוכה יותר Nlrp3, IL-1βTNF- ,α, Col1a1, ו- Tgfb1 ביטוי mRNA, ויחס Bax/Bcl-2 נמוך יותר של mRNA (3.06 ± 0.19 לעומת 1.48 ± 0.10, P < (0.001). ניתוח qPCR של דגימות צואה עבור שישה טקסונים נבחרים הראה כי פעילות גופנית הייתה קשורה לעלייה בשפע היחסי של *Akkermansia muciniphila* (0.31 ± 0.04 עד 0.84 ± 0.07) ו- Lactobacillus (0.48 ± 0.05 עד 1.01 ± 0.07) ופחיתה Escherichia coli (3.84 ± 0.33 עד 1.68 ± 0.13, P < 0.01). בעכברים שעברו אימון, .A. muciniphila השכיחות נמצאה במתאם שלילי עם מדדי לבביים Nlrp3 ביטוי mRNA (R = −0.81, P (= 0.0046). ממצאים מתאמיים אלה מעידים על קשרים בין פעילות גופנית, שינויים שעתוקיים בלב ובמעי, וטקסונומיות נבחרות של מיקרוביוטת המעי בעכברים עם סוכרת, אך אינם מבססים קשרי סיבתיות. כל הממצאים המולקולריים מוגבלים לשינויים ברמת ה-mRNA ואינם מדגימים את תפקוד מחסום המעי, הפעלת אינפלמסום, פיברוזיס של השריר הלבבי, אפופטוזיס או השפעות תפקודיות אחרות או השפעות ברמת החלבון.
מבוא
סוכרת (Diabetes mellitus) היא איום גובר על הבריאות העולמית, וסיבוכים לבביים כתוצאה מסוכרת נותרים מצבים חמורים עם טיפולים ספציפיים מוגבלים1,2,3,4. אימון גופני יכול לשפר את התפקוד הלבבי במודלים של בעלי חיים עם סוכרת5,6, אך המכניזמים הבסיסיים, ובמיוחד אלו המערבים את מיקרוביוטת המעי ואת מחסום המעי, עדיין אינם מובנים במלואם.
מיקרוביוטת המעי מווסתת את חילוף החומרים ואת החסינות של המארח7. בסוכרת, דיסביוזיס במעי ופגיעה בשלמות המחסום עלולים להגביר את התעתוק של ליפופוליסכריד (LPS), לקדם דלקת המתווכת על ידי TLR4, ולהחמיר פגיעה בשריר הלב8,9. נטל דלקתי זה, שמקורו במעי, עשוי לתרום להתקדמות של סיבוכי סוכרת, כולל תפקוד לקוי של הלב. חיידקים מועילים כגון Akkermansia ו-Faecalibacterium עשויים להיות מופחתים, בעוד שחיידקים כגון E. coli עשויים להתרבות10,11. שינויים מיקרוביאליים אלו עשויים לתרום לדלקת מקומית במעי ולהנדוטוקסמיה מערכתית, ובכך להשפיע פוטנציאלית על איברים מרוחקים, כולל הלב. האינפלאמסום NLRP3 הוא מתווך חשוב של דלקת לבבית בפתולוגיה לבבית סוכרתית, והפעלה שלו עשויה להיות מווסתת על ידי מטאבוליטים של מיקרוביוטת המעי12,13. לתוצרי מיקרוביום מסוימים, ובמיוחד לחומצות שומן קצרות שרשרת ול-LPS, יש השפעות מנוגדות על ההכשרה (priming) וההרכבה של NLRP3, מה שמרמז על קשר פוטנציאלי בין הסביבה המיקרוביאלית במעי לבין המצב הדלקתי של שריר הלב.
פעילות גופנית עשויה לשנות את מיקרוביוטת המעי ולשפר את תפקוד מחסום המעי14,15, אך הקשרים בין פעילות גופנית, ביטוי גנים הקשורים למחסום המעי, וביטוי גנים הקשורים לאינפלאסום NLRP3 בלב במודלים של סוכרת נותרו לא מובנים במלואם. אפיתל המעי משמש כממשק בין מיקרובים בלומנליים למחזור הדם המערכתי, ולכן עשוי לתרום לקשרים בין שינויים במיקרוביוטת המעי לבין תגובות דלקתיות בלב. עם זאת, עדיין חסרות ראיות ניסייניות ישירות המבססות קשר סיבתי בין שינויים במחסום המעי המושרים על ידי פעילות גופנית, הפעלת אינפלאסום NLRP3 והגנה לבבית במודלים של סוכרת.
לפיכך, ההשערה הייתה שתרגול על הליכון יהיה קשור לשינויים תעתוקיים בלב, לשינויים בטקסונים נבחרים של מיקרוביוטת המעי, לשימור של ביטוי גנים הקשורים למחסום המעי, ולהפחתה בביטוי גנים הקשורים לאינפלאסום NLRP3 בלב בעכברים סוכרתיים. מודל של עכבר סוכרתי הוקם באמצעות תזונה עשירה בשומן בשילוב עם מינון נמוך של streptozotocin, ולאחריו התערבות של תרגול על הליכון למשך 8 שבועות. ההערכות כללו פרמטרים מטבוליים, ביטוי mRNA של Occludin במעי הגס, ביטוי גנים הקשורים לאינפלאסום NLRP3 בלב, וסממני ביטוי גנים דלקתיים, פיברוטיים ואפופטוטיים. טקסונים נבחרים של מיקרוביוטת המעי נספרו גם הם כדי להעריך שינויים במיקרוביוטת המעי הקשורים לפעילות גופנית. ניתוחי קורלציה שימשו לבחינת קשרים בין טקסונים נבחרים של מיקרוביוטת המעי, ביטוי גנים הקשורים למחסום המעי וסממנים תעתוקיים בלב. ניתוחים אלו תוכננו כדי לזהות קשרים ולא כדי לבסס מנגנון סיבתי של מחסום-מעי-NLRP3.
פרוטוקול
כל הפרוצדורות בבעלי חיים בוצעו במתקן לבעלי חיים המוכר על ידי ארגון בינלאומי להסמכת טיפול בחייAnimals מעבדה. הפרוטוקול נסקר ואושר על ידי הוועדה המוסדית לטיפול ושימוש בבעלי חיים של המתקן (IACUC; מספר אישור: VS212500103). הניסויים נערכו במתקן חיצוני מאושר, מכיוון שבמוסד הבית לא היה מתקן מורשה לבעלי חיים עבור מודל ספציפי זה.
הקמה של מודל עכבר סוכרתי
עכברי C57BL/6J זכרים (בגיל 8 שבועות, בדרגת נטולי פתוגנים ספציפיים, משקל גוף 20–22 g) הועמדו לאקלימטציה למשך שבוע אחד בתנאים מבוקרים (22 ± 2 °C, 50 ± 10% לחות יחסית, מחזור אור/חושך של 12 שעות) עם גישה חופשית למזון סטנדרטי ולמים.
לאחר תקופת אקלימטציה, הוקצו העכברים באופן אקראי באמצעות טבלת מספרים אקראיים לקבוצת ביקורת נורמלית (Control, n = 10) או לקבוצת השראה של סוכרת. הפרוצדורות הניסיוניות ומדידות התוצאות בוצעו על ידי חוקרים שלא היו מודעים להקצאת הקבוצות (blinded). בעלי החיים שוכנו בארבעה לכל כלוב, בכלובי פוליקרבונט סטנדרטיים עם מצע מועשר, תחת תנאים נקיים מפתוגנים ספציפיים (specific-pathogen-free). נעשה שימוש בעכברים זכרים בלבד כדי למזער שונות פוטנציאלית הקשורה למחזורי הבעולת, ומכיוון שדגם התזונה עתירת השומן/STZ הניב פנוטיפים מטבוליים עקביים יותר בזכרים.
עכברים שעברו השראת סוכרת הוכזנו בתזונה עשירה בשומן (60% kcal משומן) למשך 4 שבועות, ולאחריהם ניתנו זריקות תוך-peritoneal של streptozotocin (STZ; 30 mg/kg למשקל גוף) למשך 5 ימים רצופים. ה-STZ הומס באופן מיידי בבופר ציטראט 0.1 mol/L (pH 4.5), נשמר ממרחב אור, והוזרק תוך 15 דקות מההכנה. עכברי ביקורת קיבלו נפחים שווי ערך של בופר ציטראט. שבוע לאחר הזריקה האחרונה, נמדדה רמת גלוקוז בדם בצום (FBG) מדגימת דם מקצה הזנב לאחר צום של 6 שעות. עכברים עם FBG ≥ 11.1 mmol/L נחשבו לסוכרתיים. עכברים אלו הוכזנו בתזונה עשירה בשומן למשך 4 שבועות נוספים כדי לאפשר התפתחות של שינויים בביטוי גנים הקשורים לסוכרת.
בסך הכל 35 עכברים עברו השראת מודל, מתוכם 28 עמדו בקריטריון לסוכרת. משקל הגוף וצריכת המזון נוטרו מדי שבוע אך לא שימשו כקריטריוני החרגה. אף בעל חיים לא מת או הוחרג במהלך שלבי המידול או ההתערבות. העכברים שבהם המודל הושרה בהצלחה חולקו באופן אקראי לקבוצת סוכרת (DM, n = 10) ולקבוצת התערבות של פעילות גופנית (DM+Ex, n = 10). גודל המדגם הסופי היה n = 10 לכל קבוצה בכל הניתוחים, כאשר כל עכבר בודד שימש כיחידה ניסויית.
התערבות באמצעות אימון על מסוע
עכברים בקבוצת DM+Ex ביצעו ריצה על מסוע בשיפוע של 5° ובמהירות של 12 m/min, 5 ימים בשבוע למשך 8 שבועות. כל מפגשי האימון נערכו בין השעות 9:00 ל-11:00 בבוקר. לפני ההתערבות, העכברים הותאמו לריצה על המסוע במשך 3 ימים במהירות של 6 m/min למשך 5 min/day בשיפוע של 0°. כל מפגש אימון כלל חימום של 5 min במהירות של 6 m/min ושחרור של 5 min במהירות של 6 m/min. נעשה שימוש בדחיפות קלה כדי לעודד את הריצה, ולא נעשה שימוש בגירוי חשמלי.
משכי הריצה היומיים היו 20 min בשבוע 1, 25 min בשבוע 2, 30 min בשבוע 3, 35 min בשבוע 4, 40 min בשבוע 5, 45 min בשבוע 6, ו-50 min בשבועות 7–8. עכברי ביקורת ועכברי DM הונחו על מסועים נייחים למשכי זמן מקבילים כדי לבקר השפעות של טיפול וחשיפה לסביבה. קריטריון החרגה שהוגדר מראש היה אי-השלמה של יותר מ-80% ממפגשי האימון שהוכתבו. אף בעל חיים לא ענה על קריטריון זה; כל בעלי החיים השלימו את מפגשי האימון שהוכתבו, ולא נצפו אירועים חריגים.
איסוף דגימות
שלוש עשרה שעות לאחר מפגש האימון האחרון, העכברים הורעבו למשך 6 h והורדמו באמצעות שאיפת isoflurane (השראה של 3% ותחזוקה של 1.5–2% ב-100% O₂ בקצב של 1 L/min). כ-500 µL של דם נאספו מהמקלעת הורידית הרטרו-אורביטלית, הושארו להקרשה בטמפרטורת החדר למשך 30 min, וסובבו בצנטריפוגה במהירות של 3,000 × g למשך 15 min בטמפרטורה של 4 °C. הסרום שהתקבל נשמר ב-−80 °C.
העכברים הורדמו עמוק ולאחר מכן הומתו באמצעות פריקה של חוליי הצוואר. הלבבות הוצאו במהירות ונשטפו ב-PBS (phosphate-buffered saline) קר מאוד. רקמה מהחדר השמאלי בודדה; חלק אחד הוקפא במהירות בחנקן נוזלי ואוחסן ב-−80 °C לצורך הפקת RNA, והרקמה שנותרה קובעה ב-4% פראפורמאלדהיד. נדגמה רקמה באורך של כ-1 cm מהחלק הדיסטלי של המעי הגס, נשטפה ב-PBS, הוקפאה במהירות ואוחסנה ב-−80 °C. דגימות צואה טריות נאספו ישירות מהרקטום בין השעות 9:00 ל-10:00 בבוקר כדי למזער זיהום מהכלוב, הועברו למבחנות סטריליות ואוחסנו ב-−80 °C בתוך 15 min מהאיסוף.
מדידות ביוכימיות של סרום
את ה-FBG מדדו באמצעות מערכת למדידת גלוקוז בדם. את רמת האינסולין בסרום קבעו באמצעות סמיקה אימונולוגית למסורב אנזימטי (ELISA), ואת הכולסטרול הכולל והטריגליצרידים מדדו באמצעות אנליזה ביוכימית אוטומטית. את ההתנגדות לאינסולין חישבו באמצעות מודל הערכה הומיאוסטטי: HOMA-IR = FBG (mmol/L) × insulin (mIU/L)/22.5.
מיצוי RNA ו-PCR כמותי בזמן אמת מרקמת שריר הלב
כ-30 mg של רקמה מהחדר השמאלי הומגנו בריאגנט להפקת RNA מבוסס פנול-גואנידיניום, ו-RNA כולל הופק בהתאם לפרוטוקול של הריאגנט. ריכוז ה-RNA וטוהרו נבדקו באופן ספקטרופוטומטרי, כאשר יחס A260/A280 של 1.8–2.0 נחשב למקובל. RNA כולל (1 µg) עבר תמלול הפוך ל-DNA משלים (cDNA).
PCR כמותי (qPCR) בוצע בתערובת תגובה בנפח של 20 µL שהכילה master mix ל-qPCR עם קשירה פלואורסצנטית של DNA, 0.4 µmol/L מכל אחד מהפריימרים הקדמי והאחורי, ו-2 µL של תבנית cDNA. תנאי ההגברה היו 95 °C למשך 30 s, ולאחריהם 40 מחזורים של 95 °C למשך 5 s ו-60 °C למשך 34 s. ניתוח עקומת המסה (Melt-curve analysis) בוצע בטווח של 65–95 °C כדי לאמת את סגוליות ההגברה. כל התגובות בוצעו בשכפול, ונכללו בקרות ללא תבנית (no-template) וללא שעתוק הפוך (no-reverse-transcription). יעילות ההגברה לכל זוגות הפריימרים הייתה בטווח של 90–105%. הפריימרים עבור Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3, ו- Gapdh מפורטים ב-Table 1. ביטוי גנים יחסי חושב באמצעות שיטת 2−ΔΔCt והוצג כשינוי מכפלה (fold change) ביחס לקבוצת הביקורת (Control).
מיצוי DNA של מיקרוביוטת צואה וכבידור כמותי באמצעות qPCR
DNA מיקרוביאלי כולל הופק מדגימות צואה באמצעות פרוטוקול להפקת DNA מצואה. השפעיות היחסיות של שישה טקסונים בקטריאליים נבחרים—*Faecalibacterium prausnitzii*, *Akkermansia muciniphila*, Lactobacillus סוג, Bifidobacterium סוג, Escherichia coliו- Desulfovibrio הסוג (genus)—נקבעו באמצעות qPCR תוך שימוש בפריימרים ספציפיים לטקסון המפורטים ב- טבלה 1פריימרים אוניברסליים של 16S rRNA חיידקי שימשו כייחוס לשכיפות החיידקים הכוללת.
שפעיות יחסית חושבה באמצעות שיטת 2−ΔΔCt, כאשר ה-16S rRNA בקטריאלי כולל שימש כרפרנס, והתוצאות נורמלו לקבוצת הביקורת (Control). עקומות סטנדרט הופקו עבור כל מטרה באמצעות דילולים סדרתיים של DNA פלסמידי בריכוזים ידועים כדי לאמת את יעילות ההגברה. כל התגובות בוצעו בשכפול עם ניתוח עקומת התבססות (melt-curve). מכיוון שמינים בקטריאליים נבדלים במספר העותקים של גן ה-16S rRNA, התוצאות דווחו כשפעיות יחסית לפי 2−ΔΔCt ולא כמספרי עותקים מוחלטים.
הערכת ביטוי Occludin במועון
כ-30 mg של רקמה קולונית עובדו להפקת RNA כולל ולסינתזת cDNA כפי שתיאר לעיל. ביטוי mRNA של Occludin נמדד באמצעות qPCR בעזרת הפריימרים הבאים: forward, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; reverse, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Gapdh שימש כביקורת פנימית, והביטוי היחסי חושב באמצעות שיטת 2−ΔΔCt.
ניתוח סטטיסטי
נתונים הוצגו כממוצע ± סטיית תקן (SD). נבדקה נורמליות באמצעות מבחן Shapiro-Wilk, והומוגניות של השונות נבדקה באמצעות מבחן Levene. נתונים בין-קבוצתיים שעמדו בהנחות הפרמטריות נותחו באמצעות ניתוח שונות חד-כיווני (ANOVA), ולאחריו מבחן Tukey's honestly significant difference (HSD) להשוואות זוגיות post hoc. השוואות בין שתי קבוצות בוצעו באמצעות מבחן t-test של Student דו-זנבי ללא צימוד.
בדיקת מתאם דרגות של ספירמן (Spearman's rank correlation) שימשה להערכת הקשרים בין משתנים. עבור מפת החום של המתאמים, חושבו מתאמי ספירמן חלקיים תוך בקרה על הקבוצה הניסיונית. ערכי P תוקנו עבור השוואות מרובות באמצעות הליך שיעור התגליות המדוייות (FDR) של Benjamini-Hochberg, וערך P מתוקנן ל-FDR של < 0.05 נחשב למשמעותי מבחינה סטטיסטית. גודלי אפקט (Cohen's f עבור ANOVA ו-r עבור מתאמים) ומרווחי סמך של 95% עבור הבדלי ממוצעים מרכזיים דווחו במידת הרלוונטיות. כל הניתוחים הסטטיסטיים בוצעו באמצעות תוכנה לחישוב סטטיסטי (גרסה 4.2.0).
תוצאות
פעילות גופנית על מסע treadmill הייתה קשורה לשיפור של הפרעות מטבוליות בעכברים סוכרתיים
בהשוואה לקבוצת הביקורת (Control), עכברים סוכרתיים הראו רמות גבוהות באופן מובהק של גלוקוז בדם בצום (18.23 ± 0.61 לעומת 6.03 ± 0.21 mmol/L, P < 0.001), אינסולין בנסיוב (16.30 ± 1.04 לעומת 8.23 ± 0.38 mIU/L, P < 0.001), HOMA-IR (13.19 ± 1.18 לעומת 2.21 ± 0.17, P < 0.001), כולסטרול כולל (4.62 ± 0.23 לעומת 2.01 ± 0.09 mmol/L, P < 0.001), וטריגליצרידים (2.12 ± 0.15 לעומת 0.80 ± 0.08 mmol/L, P < 0.001). בעקבות התערבות של 8 שבועות של אימון על מסוע, פרמטרים אלו ירדו ל-12.03 ± 0.63 mmol/L, 10.61 ± 0.71 mIU/L, 5.69 ± 0.67, 3.09 ± 0.24 mmol/L, ו-1.20 ± 0.14 mmol/L, בהתאמה, בהשוואה לעכברים סוכרתיים (P < 0.01 או P < 0.001); עם זאת, רוב הערכים נותרו גבוהים מאלו של קבוצת הביקורת (איור 1A–E). מבחן ANOVA חד-כיווני הראה השפעות קבוצתיות מובהקות עבור כל הפרמטרים (כולם F(2,27) > 25.0, P < 0.001).
אימון גופני היה קשור לביטוי גבוה יותר של mRNA של Occludin במעי הגס ולביטוי נמוך יותר של גנים הקשורים לאינפלאמסומה בלב
בעכברים סוכרתיים, ביטוי mRNA של Occludin במעי הגס היה נמוך בכ-62% בהשוואה לקבוצת הביקורת (0.38 ± 0.04 לעומת 1.00 ± 0.06, P < 0.001). במקביל, ביטוי mRNA של Nlrp3, Il1b ו-Tnfa בלב עלה פי 5.6, 6.5 ו-5.1 מערכי הביקורת, בהתאמה (כולם P < 0.001). לאחר התערבות של פעילות גופנית, ביטוי mRNA של Occludin עלה ל-0.79 ± 0.05 (P < 0.001 לעומת עכברים סוכרתיים), בעוד שביטוי mRNA של Nlrp3, Il1b ו-Tnfa ירד ל-2.30 ± 0.21, 2.66 ± 0.25 ו-2.14 ± 0.17, בהתאמה (כולם P < 0.001 לעומת עכברים סוכרתיים; איור 2A–D).
פעילות גופנית הייתה קשורה לביטוי גנים נמוך יותר הקשור לפיברוזיס ואפופטוזיס של השריר הלבבי
בקבצה הסוכרת נצפתה עלייה בביטוי הלבבי של הגנים הקשורים לפיברוזיס Col1a1 (פי 4.46 ± 0.29, P < 0.001) ו-Tgfb1 (פי 4.17 ± 0.24, P < 0.001), יחד עם יחס mRNA גבוה יותר של Bax/Bcl2 (3.06 ± 0.19, P < 0.001) בהשוואה לקבוצת הביקורת. בעקבות אימון גופני, הביטוי של mRNA עבור Col1a1 ו-Tgfb1 ירד ל-2.02 ± 0.16 ו-1.92 ± 0.16, בהתאמה (שניו P < 0.001 לעומת עכברים סוכרתיים), ויחס ה-mRNA של Bax/Bcl2 ירד ל-1.48 ± 0.10 (P < 0.001 לעומת עכברים סוכרתיים; איור 3A–C).
פעילות גופנית הייתה קשורה לשינויים בטקסונים נבחרים של מיקרוביוטת המעי בעכברים סוכרתיים
בהשוואה לקבוצת הביקורת, עכברים סוכרתיים הראו שפעיות יחסיות נמוכות משמעותית של ארבעה טקסונים חיידקיים נבחרים: F. prausnitzii (0.25 ± 0.03 לעומת 1.01 ± 0.07), A. muciniphila (0.31 ± 0.04 לעומת 1.00 ± 0.06), Lactobacillus (0.48 ± 0.05 לעומת 0.99 ± 0.04), ו-Bifidobacterium (0.56 ± 0.06 לעומת 1.00 ± 0.06; כלל ה-<P < 0.001). לעומת זאת, השפעיות היחסיות של E. coli (3.84 ± 0.33 לעומת 0.99 ± 0.08) ו-Desulfovibrio (3.07 ± 0.26 לעומת 0.99 ± 0.07) היו גבוהות משמעותית (שניהם P < 0.001). התערבות באמצעות פעילות גופנית הייתה קשורה לשפעיות יחסיות גבוהות משמעותית של F. prausnitzii, A. muciniphila, Lactobacillus, ו-Bifidobacterium (P < 0.01 או P < 0.001), כאשר A. muciniphila הגיע ל-0.84 ± 0.07. במקביל, השפעיות היחסיות של E. coli ו-Desulfovibrio ירדו ל-1.68 ± 0.13 ו-1.52 ± 0.08, בהתאמה (שניהם P < 0.001 לעומת עכברים סוכרתיים; איור 4A–F).
שינויים מיקרוביאליים נבחרים נמצאו במתאם עם ביטוי גנים בלב ובמעי הגס
ניתוח מתאם של Spearman בוצע כדי להעריך קשרי גומלין בין השכיחות היחסית של טקסונים מיקרוביאליים נבחרים לבין סממני ביטוי גנים ברקמות לב ומעי גס (איור 5A). השכיחות היחסית של A. muciniphila נמצאה במתאם שלילי עם mRNA של Nlrp3 בלב (R = −0.81, P = 0.0046) ועם mRNA של Tnfa (R = −0.80, P = 0.0054). השכיחות היחסית של E. coli נמצאה במתאם חיובי עם ביטוי mRNA של Occludin במעי הגס (R = 0.66, P = 0.036; איור 5B–D). ממצאים אלו הראו קשרי גומלין בין טקסונים מיקרוביאליים נבחרים במעי לבין סממנים תעתוקיים בלב ובמעי הגס, אך לא ביססו קשרים סיבתיים.
זמינות נתונים:
מערכי הנתונים שהופקו ו/או נותחו במהלך מחקר זה זמינים מהמחבר המקבל בהתאם לבקשה סבירה.
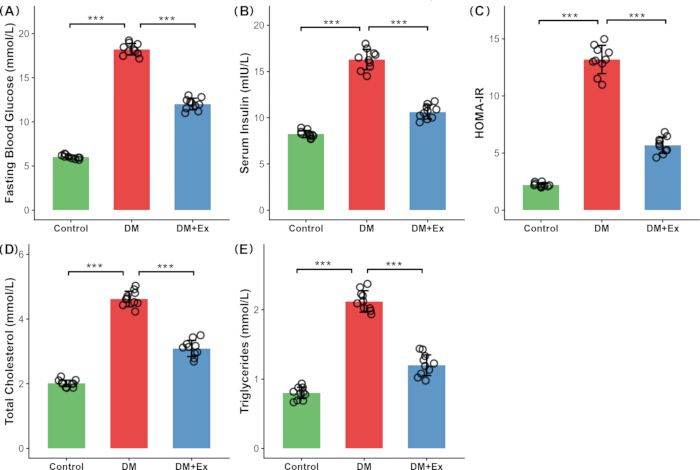
איור 1: השפעות של אימון על מסילה על פרמטרים מטבוליים בעכברים סוכרתיים. (A) גלוקוז בדם בצום. (B) אינסולין בנסיוב. (C) HOMA-IR. (D) כולסטרול כולל. (E) טריגליצרידים בקבוצות ה-Control, ה-DM וה-DM+Ex. הנתונים מוצגים כממוצע ± SD (n = 10 לכל קבוצה), כאשר נקודות נתונים אינדיבידואליות מוצגות על כל עמודה. השוואות בין הקבוצות בוצעו באמצעות one-way ANOVA ולאחריו מבחן post hoc של Tukey. *P < 0.05, **P < 0.01, ***P < 0.001; ns = לא מובהק. קיצורים: DM = מודל לסוכרת; Ex = פעילות גופנית; HOMA-IR = homeostatic model assessment of insulin resistance; SD = סטיית תקן. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
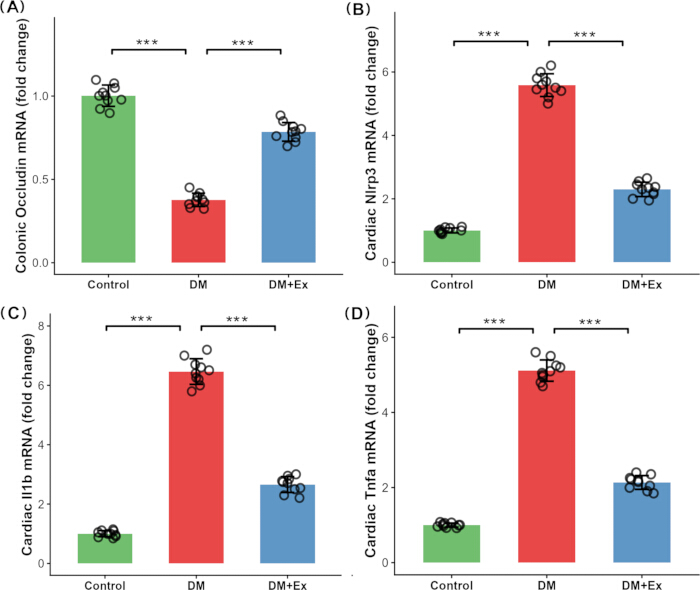
איור 2: השפעות של אימון על מסילה על ביטוי גנים הקשורים למחסום המעי ולאינפלמסום בלב בעכברים סוכרתיים. (A) ביטוי mRNA יחסי של Occludin במעי הגס. (B) ביטוי mRNA יחסי של Nlrp3 בלב. (C) ביטוי mRNA יחסי של Il1b בלב. (D) ביטוי mRNA יחסי של Tnfa בלב. ביטוי הגנים נורמל ל-Gapdh והוצג כשינוי במכפלה (fold change) ביחס לקבוצת הביקורת. הנתונים מוצגים כממוצע ± SD (n = 10 לכל קבוצה). *P < 0.05, **P < 0.01, ***P < 0.001. קיצורים: IL-1β = interleukin-1β; TNF-α = tumor necrosis factor-α; SD = סטיית תקן. נא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
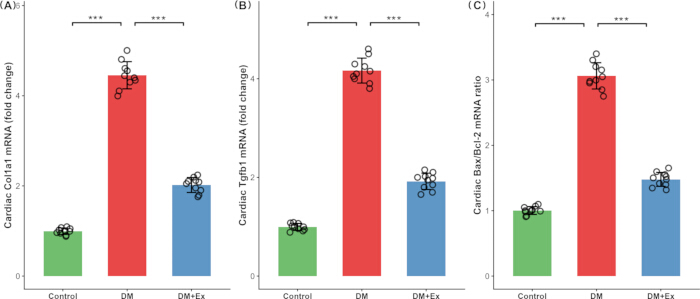
איור 3: השפעות של אימון על מסילה על ביטוי גנים הקשורים לפיברוזיס של השריר הלבבי ועל ביטוי גנים הקשורים לאפופטוזיס בעכברים סוכרתיים. (A) ביטוי mRNA יחסי של Col1a1 בלב. (B) ביטוי mRNA יחסי של Tgfb1 בלב. (C) יחס Bax/Bcl2 של mRNA. ביטוי הגנים נורמל ל-Gapdh והוצג כשינוי הפי (fold change) ביחס לקבוצת הביקורת (Control). יחס ה-Bax/Bcl2 חושב מערכי ביטוי mRNA יחסיים. הנתונים מוצגים כממוצע ± SD (n = 10 לקבוצה), כאשר נקודות נתונים אינדיבידואליות מוצגות על כל עמודה. *P < 0.05, **P < 0.01, ***P < 0.001. קיצורים: Col1a1 = collagen type I alpha 1; Tgfb1 = transforming growth factor-β1; Bax = BCL2-associated X protein; Bcl2 = B-cell lymphoma 2; SD = standard deviation. אנא לחצו כאן להצגת גרסה מוגדלת של איור זה.
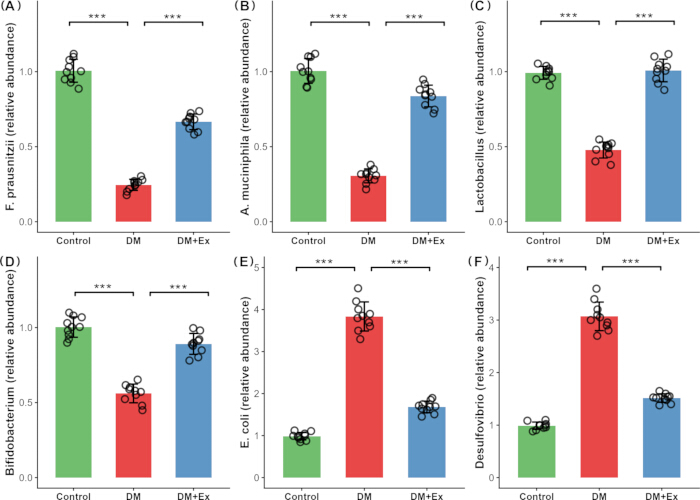
איור 4: השפעות של אימון על מסוע על השפעיות היחסיות של טקסוני מיקרוביוטת מעי נבחרים בעכברים סוכרתיים. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. השפעיות היחסיות נקבעו באמצעות qPCR תוך שימוש במטרות 16S rRNA ספציפיות לטקסון ביחס ל-16S rRNA בקטריאלי כולל ונורמלו לקבוצת הביקורת. הנתונים מוצגים כממוצע ± SD (n = 10 לכל קבוצה). *P < 0.05, **P < 0.01, ***P < 0.001. קיצור: SD = סטיית תקן. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
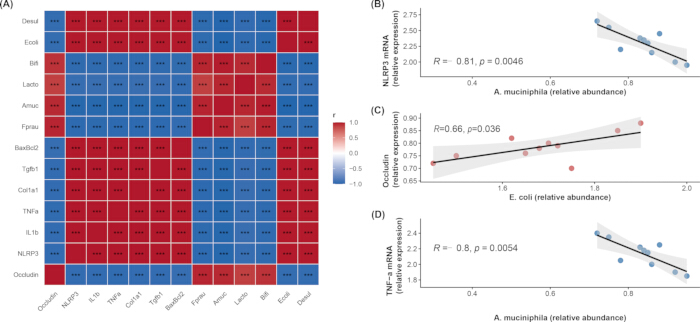
איור 5: ניתוח מתאם בין טקסונים מיקרוביאליים נבחרים במעי לבין פרמטרים של ביטוי גנים בלב ובמעי הגס. (A) מפת חום המציגה את מקדמי המתאם של Spearman בין טקסונים בקטריאליים נבחרים לבין mRNA של Occludin במעי הגס, mRNA של Nlrp3, Il1b, ו- Tnfa בלב, mRNA של Col1a1 ו- Tgfb1, ויחס ה-mRNA של Bax/Bcl2. המתאמים חושבו באמצעות נתונים מכל שלוש הקבוצות (n = 30) כמתאמי Spearman חלקיים תוך בקרה על הקבוצה הניסויית. סקאלת הצבעים נעה מכחול למתאמים שליליים ועד אדום למתאמים חיוביים. כוכביות בתוך מפת החום מציינות מובהקות לאחר תיקון FDR (*P < 0.05, **P < 0.01, ***P < 0.001). (B) מתאם בין השפעיות היחסית של A. muciniphila לבין ביטוי mRNA של Nlrp3 בלב בתוך קבוצת DM+Ex. (C) מתאם בין השפעיות היחסית של E. coli לבין ביטוי mRNA של Occludin במעי הגס בתוך קבוצת DM+Ex. (D) מתאם בין השפעיות היחסית של A. muciniphila לבין ביטוי mRNA של Tnfa בלב בתוך קבוצת DM+Ex. כל נקודה מייצגת עכבר בודד. קווי רגרסיה לינארית ומרווחי סמך של 95% מוצגים לצורכי ויזואליזציה. קיצורים: DM = מודל לסוכרת; Ex = פעילות גופנית; FDR = שיעור גילוי שגוי. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
| Gene/Microbial | Forward Primer | Reverse Primer |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Total bacteria (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
טבלה 1: רצפי הפריימרים ששימשו ל-PCR כמותי בזמן אמת.
דיון
במחקר הנוכחי, נעשה שימוש במודל עכבר סוכרתי שהושרה על ידי תזונה עשירה בשומן בשילוב עם מינון נמוך של STZ, כדי להעריך שינויים מטבוליים, מעיים, לבביים ומיקרוביאליים הקשורים לפעילות גופנית. שמונה שבועות של אימון על מסילה היו קשורים לשיפור במדדים מטבוליים, לביטוי גבוה יותר של mRNA של Occludin במעי הגס, לביטוי נמוך יותר של גנים הקשורים לאינפלאמזום Nlrp3 בלב, ולביטוי נמוך יותר של גנים הקשורים לדלקת, פיברוזיס ואפופטוזיס במיוקרד. פעילות גופנית הייתה קשורה גם לשינויים בשכיחות היחסית של טקסונומיות מיקרוביאליות נבחרות במעי. יחד, ממצאים אלו מרמזים כי שינויים תעתוקיים בלב הקשורים לפעילות גופנית עשויים להיות קשורים לשינויים בביטוי של גנים הקשורים למחסום המעי ולטקסונומיות מיקרוביאליות נבחרות במעי, אם כי קשר סיבתי לא הוכח.
כמצופה במודל הסוכרת, העכברים פיתחו הפרעות מטבוליות בולטות, כולל היפרגליקמיה, היפראינסולינמיה, עמידות לאינסולין ודיסליפידמיה, באופן התואם את הפרדיגמה הפתולוגית המקובלת16,17. משטר האימונים שנמשך 8 שבועות היה קשור להפחתות של כ-34% ברמות הגלוקוז בצום ו-57% במדד HOMA-IR, דבר המעיד על שיפור חלקי בעמידות לאינסולין. ברמת השריר השרירי (myocardial), האימון היה קשור להפחתות של 40%–60% בביטוי של סמני mRNA פרו-דלקתיים (Tnfa, Il1b), פרו-פיברוטיים (Tgfb1, Col1a1) וסמנים הקשורים לאפופטוזיס (Bax/Bcl2), בדומה למחקרים קודמים שקישרו בין פעילות אירובית להפעלת AMPK ועיכוב של NF-κB18,19. עם זאת, אף אחד מהפרמטרים הללו לא חזר לרמות של קבוצת הביקורת (Control), מה שמעיד כי ההתערבות שנמשכה 8 שבועות לא הייתה מספיקה כדי לנרמל את הפנוטיפ התעתוקי המזוהה עם סוכרת, דבר שעשוי להיות קשור להשפעות מתמשכות של זיכרון גליקמי (glycemic memory)20.
ביטוי mRNA של Occludin במעי הגס היה נמוך בכ-62% בעכברים סוכרתיים, מה שמרמז על ירידה בביטוי של גנים הקשורים למחסום המעי. במקביל, ביטוי mRNA של Nlrp3, Il1b ו-Tnfa בלב עלה פי 5.6, 6.5 ו-5.1, בהתאמה. האינפלאמזום NLRP3 הוא חיישן חשוב של מערכת החיסון המולדת והוא מעורב בפתולוגיה לבבית סוכרתית. היפרגליקמיה יכולה להגביר את ביטוי הגן Nlrp3 בשריר הלב באמצעות מיני חמצן רדיקליים (ROS) ונתיבי חלבון המקיים אינטראקציה עם תיורדוקסין (TXNIP), עם השפעות עוקבות על סיגנלינג דלקתי הקשור ל-IL-1β ו-IL-1821,22. טרנסלוקציה סיסטמית מוגברת של ליפופוליסכריד (LPS) כתוצאה מהפרעה במחסום המעי תוארה גם היא כגירוי שורה ראשונה (upstream) להפעלה ראשונית (priming) של NLRP323. LPS יכול להגביר את ביטוי Nlrp3 ו-pro-Il1b דרך ציר הסיגנלינג TLR4/MyD88/NF-κB, ובכך לספק את האות הראשון הנדרש להפעלת האינפלאמזום24. במודל הסוכרת הנוכחי, נצפתה שכיפות יחסיit מוגברת של E. coli, לצד ביטוי mRNA מופחת של Occludin במעי הגס וביטוי מוגבר של גנים הקשורים לאינפלאמזום בלב. שינויים מקבילים אלו עקביים עם נתיב דלקתי אפשרי הקשור למעי, אך אינם מוכיחים טרנסלוקציה מוגברת של LPS או מנגנון סיבתי של מעי-לב.
התערבות באמצעות פעילות גופנית הייתה קשורה לעלייה בביטוי mRNA של Occludin במעי הגס לכ-79% מערכו בקבוצת הביקורת, בעוד שביטוי mRNA של Nlrp3, Il1b ו-Tnfa בלב ירד לכ-2.3, 2.7 ו-2.1 מפסים מערכיהם בקבוצת הביקורת, בהתאמה. ממצאים אלו מצביעים על קשר בין ביטוי גבוה יותר של גנים הקשורים למחסום המעי לבין ביטוי נמוך יותר של גנים דלקתיים בלב לאחר פעילות גופנית. מחקרים קודמים הציעו כי פעילות גופנית עשויה לתמוך בתפקוד מחסום המעי באמצעות הגברת ייצור המוקוס, ויסות של חלבוני צומת מהודק (tight junction) ושיפור הפרפוזיה במעי25,26,27,28. עם זאת, הנתונים הנוכחיים הגבילו את המדידות ל-mRNA ולכן לא אישרו מנגנונים תפקודיים אלו.
ניתוח ממוקד של מיקרוביוטת המעי הראה כי פעילות גופנית הייתה קשורה לה reversal חלקי של שינויים הקשורי לסוכרת בשפעיות היחסיות של טקסונים נבחרים, ובמיוחד עלייה ב-A. muciniphila וירידה ב-E. coli. שינויים הדדיים אלו עולים בקנה אחד עם קשרים שתוארו בעבר בין טקסונים אלו לבין תחזוקת מחסום ותהליכים הקשורים לאנדוטוקסינים29,30,31. עם זאת, מכיוון שרק טקסונים נבחרים נמדדו כמותית, יש לפרש את הממצאים כשינויים הקשורים לפעילות גופנית בשפעיות היחסיות של חיידקים ספציפיים, ולא כעיצוב מחדש מקיף של מיקרוביוטת המעי.
ניתוח קורלציה זיהה בנוסף קשרים בין טקסונים מיקרוביאליים נבחרים למסמנים תעתוקיים. בתוך קבוצת התערבות הפעילות הגופנית, שפע של A. muciniphila נמצא במתאם שלילי עם ביטוי mRNA של Nlrp3 (R = −0.81, P = 0.0046) ו-Tnfa (R = −0.80, P = 0.0054) בלב. לעומת זאת, שפע של E. coli נמצא במתאם חיובי עם ביטוי mRNA של Occludin במעי הגס (R = 0.66, P = 0.036; איור 5C). הקשר החיובי בין E. coli ל-mRNA של Occludin היה מנוגד להיפותזה הראשונית ומצביע על כך שהקשר בין טקסונים מיקרוביאליים נבחרים במעי לבין ביטוי גנים הקשורים למחסום המעי לא הוסבר על ידי מודל ליניארי פשוט. קורלציות אלו היו עקביות עם קשרים בין פעילות גופנית, טקסונים מיקרוביאליים נבחרים ומסמנים תעתוקיים של המארח, אך לא ביססו סיבתיות. ראיות קודמות המראות כי דלדול של A. muciniphila עלול להגביר את חדירות המעי ואנדוטוקסמיה מטבולית32, יחד עם ראיות המקשרות את NLRP3 לפתולוגיה לבבית סוכרתית33, מספקות הקשר ביולוגי לקשרים אלו. עם זאת, המחקר הנוכחי לא הדגים באופן ישיר כי עלייה ב-A. muciniphila שיפרה את תפקוד מחסום הריר, הפחיתה את התעתוק של LPS או הנמיכה דלקת לבבית המתווכת על ידי TLR4/NLRP3.
למחקר זה היו מספר מגבלות. ראשית, נעשה שימוש ב-qPCR ממוקד של 16S rRNA כדי לכמת שישה טקסונים חיידקיים מייצגים, במקום ריצוף 16S amplicon או ריצוף מטאגנומי. כתוצאה מכך, לא הושגה הערכה מקיפה של מבנה קהילת המיקרוביום במעי ויכולתה התפקודית, ולא ניתן היה להעריך שינויים רחבים יותר בקהילה או מסלולים תפקודיים. לפיכך, הממצאים תוארו כשינויים בשכיחות היחסית של טקסונים נבחרים ולא כעיצוב מחדש של מיקרוביוטת המעי. שנית, רמות LPS במחזור הדם, ריכוזי SCFA בפלזמה וחדירות המעי לא נמדדו באופן ישיר, ובכך הוגבלה הפרשנות המכניסטית. שלישית, המחקר התבסס בעיקר על נתוני ביטוי של mRNA. לא בוצעה ולידציה תפקודית או ברמת החלבון לשלמות המחסום, להפעלת האינפלאמסום, לפיברוזיס ולאפופטוזיס. בהתאם לכך, המסקנות הוגבלו לשינויים תעתוקיים ולא ביססו השפעות תפקודיות או השפעות ברמת החלבון. רביעית, נבדקה רק עוצמה ומסך זמן של תרגול אחד, מה שהגביל את המסקנות בנוגע למרשם פעילות גופנית אופטימלי עבור שינויים תעתוקיים בלב הקשורים לסוכרת. חמישית, נבדקו עכברים זכרים בלבד, וייתכן שהממצאים אינם ניתנים להכללה על נקבות. שישית, היעדרה של קבוצת ביקורת בריאה שעסקה בפעילות גופנית הגבילה את היכולת להבחין בין תגובות ספציפיות לסוכרת לבין ההשפעות הפיזיולוגיות של פעילות גופנית. שביעית, לא בוצעו בדיקות אקו-לב או היסטופתולוגיה של הלב; לכן, המודל תואר כמודל של עכבר סוכרתי ולא כמודל מאושר של קרדיומיופתיה סוכרתית, וכל הממצאים הקרדיאליים הוגבלו לשינויים תעתוקיים. לבסוף, ייתכן שחלק מהמתאמים שנצפו שיקפו הפרדה בין קבוצות ולא קשרים ביולוגיים בתוך הקבוצות, אם כי נעשה שימוש בניתוח מתאם חלקי תוך בקרה על הקבוצה כדי להפחית חשש זה.
לסיכום, 8 שבועות של אימון על מסילה היו קשורים לשיפור מטבולי ולשינויים תעתוקיים בלב ובמעי הגס בעכברים עם סוכרת. שינויים אלו התרחשו לצד שינויים בשפע היחסי של טקסונים מיקרוביאליים נבחרים במעי, ובמיוחד עלייה ב- A. muciniphila וירידה ב- E. coli. ההקשרים שנצפו תומכים בבדיקה מעמיקה יותר של הקשרים בין פעילות גופנית, טקסונים מיקרוביאליים נבחרים במעי, ביטוי גנים הקשורים למחסום המעי ותעתוק הקשור לאינפלאסום בלב. מחקרים עתידיים שישלבו פרופיל מיקרוביום רחב יותר, כימות של SCFA, בדיקות חדירות מעי, ותיקוף ברמת החלבון או ברמה ההיסטולוגית, יהיו נחוצים כדי לבחון את המנגנונים המוצעים ולבסס סיבתיות. מחקרי התערבות נוספים באמצעות השתלת מיקרוביוטה צואית, תוסף של A. muciniphila, או עיכוב של NLRP3 יהיו נחוצים כדי לקבוע אם ההקשרים שנצפו משקפים מסלולים סיבתיים.
גילויים
המחברים מצהירים כי אין ניגודי עניינים כספיים או מערכות יחסים אישיות שעלולות היו להיראות כמשפיעות על העבודה המדווחת במאמר זה. לא נעשה שימוש בכלי AI בהכנת כתב יד זה או באיורים.
תרומות מחברים:
H.H. ו-G.Z. הגו ועיצבו את המחקר. H.H., G.Z. ו-Y.X. ביצעו את ניסויי בעלי החיים ואת איסוף הדגימות. H.H. ו-G.Z. ביצעו את ניסויי הביולוגיה המולקולרית ואספו את הנתונים. H.H. ו-Y.X. ביצעו את הניתוח הסטטיסטי. H.H. כתב את טיוטת כתב היד. H.W. ערך באופן ביקורתי את כתב היד עבור תוכן אינטלקטואלי חשוב. כל המחברים קראו ואישרו את כתב היד הסופי
תודות
מחקר זה לא קיבל מענק ספציפי מסוכנויות מימון במגזר הציבורי, המסחרי או ללא מטרות רווח.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מכשיר מדידת סוכר Accu-Chek וסרטי בדיקה | Roche | Accu-Chek Active | משמש למדידת סוכר בדם בצום |
| מנתח ביוכימי אוטומטי | Hitachi | 7180 | משמש למדידות ביוכימיות של סרום |
| עכברי C57BL/6J (זכרים, 8 שבועות) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | בעלי חיים ניסייים המשמשים להקמת מודל עכבר סוכרתי |
| בופר ציטראט (0.1 mol/L, pH 4.5) | Sigma-Aldrich | C8532 | משמש להכנת תמיסת streptozotocin |
| ערכה לבדיקת ELISA לאינסולין של עכבר | Wuhan HuaMei Biotech | CSB-E05070m | משמשת למדידת אינסולין בסרום |
| תזונה עשירה בשומן (60% kcal משומן) | Research Diets | D12492 | משמשת להשראה ותחזוקה של המודל הסוכרתי |
| Isoflurane | RWD Life Science | R510-22-10 | משמש להרדמה בשאיפה |
| מיקרו-צנטריפוגה | Eppendorf | 5424 R | משמשת לסנטריפוגציה של דגימות |
| ספקטרופוטומטר NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | משמש להערכת ריכוז וטוהר של RNA |
| Paraformaldehyde (4%, ב-PBS) | Servicebio | G1101 | משמש לקיבוע דגימות רקמה |
| סליין בבופר פוספט (PBS) | Servicebio | G0002 | משמש לשטיפה והזרמה של דגימות רקמה |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | משמש ל-qPCR כמותי בזמן אמת |
| PrimeScript RT Reagent Kit (ל-qPCR) | TaKaRa (Takara Bio) | RR037A | משמש לתעתוק הפוך של RNA ל-cDNA |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | משמש למיצוי DNA מיקרוביאלי מדגימות צואה |
| תוכנת R | R Foundation | 4.2.0 | משמשת לניתוח סטטיסטי |
| מערכת Real-time PCR (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | משמשת להגברה וגילוי ב-qPCR כמותי בזמן אמת |
| Streptozotocin (STZ) | Sigma-Aldrich | S0130 | משמש בשילוב עם תזונה עשירה בשומן להשראת מודל עכבר סוכרתי |
| ערכה למדידת כולסטרול כולל (TC) | Nanjing Jiancheng Bioengineering Institute | A111-1 | משמשת למדידת כולסטרול כולל בסרום |
| מסילה (ממוטרת, עם בקרת שיפוע) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | משמשת להתערבות של אימון על מסילה |
| ערכה למדידת טריגליצרידים (TG) | Nanjing Jiancheng Bioengineering Institute | A110-1 | משמשת למדידת טריגליצרידים בסרום |
| ריאגנט TRIzol | Invitrogen (Thermo Fisher) | 15596018 | משמש למיצוי RNA כולל מדגימות רקמה |
מקורות
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.