פרוטוקול זה מתאר ניתוח של אורך חיים מבוסס מיקרופלואידיקה באמצעות מיקרוסקופיית time-lapse של גמטות של Saccharomyces cerevisiae שהושגו מתאי קדם צעירים או זקנים.
מאמר שיטה
בדיסה מבוססת מיקרופלואידיקה לגילוי גורמי התחדשות גמטוגנית ב-Saccharomyces cerevisiae
במאמר זה
סיכום
תקציר
Saccharomyces cerevisiae מזדקן באופן הדרגתי באמצעות חלוקות תא אסימטריות, כאשר נזקים הקשורים לגיל נשמרים בתא האם בעוד שנוצרים תאי בת צעירים. גמטוגנזה (יצירת תאי מין) מאפסת לחלוטין את תוחלת החיים הרפליקטיבית של תאים מזדקנים, ובכך מחזירה את שעון ההזדקנות לאחור עבור הדור הבא. למרות שההצערה הגמטוגנית בשמרים תוארה בעבר, היו חסרות טכניקות לכימות של איפוס תוחלת החיים הרפליקטיבית בתפוקה גבוהה. שיטות קודמות לכימות הצערה לאחר גמטוגנזה היו מוגבלות לגישות בעלות תפוקה נמוכה ועתירות עבודה, שהסתמכו על מיקרו-מניפולציה ידנית חוזרת של תאים בודדים. כאן, אנו מתארים בפירוט בדיקת מיקרוסקופיה מבוססת מיקרופלואידיקה בתפוקה גבוהה, המאפשרת אפיון סיסטמטי של הגורמים הדרושים להצערה גמטוגנית ב-S. cerevisiae. שיטה זו מנצלת שני שינויים גנטיים אינרטיים המאפשרים הערכה של תוחלת החיים הרפליקטיבית של גמטות באמצעות מיקרופלואידיקה. לאחר מיון לפי גיל ופירוק טטראדות, גמטות סטריליות באופן מותנה נטענות למכשירי דימוי מבוססי מיקרופלואידיקה ומזוהות באמצעות סמן ספציפי לגמטות. דימוי Time-lapse לטווח ארוך מאפשר מעקב והשוואה מהימנים של תוחלת החיים הרפליקטיבית של גמטות שנגזרו מתאי מקור צעירים ומזדקנים. כאן, אנו מספקים פרוטוקול שלב-אחר-שלב המאפשר כימות סיסטמטי של תוחלת החיים של גמטות וזיהוי בתפוקה גבוהה של גורמים מולקולריים המתווכים הצערה תאית גמטוגנית ב-S. cerevisiae.
מבוא
Saccharomyces cerevisiae תאים מזדקנים באופן רפליקטיבי במהלך המיטוזה על ידי חלוקה אסימטרית, שבה נשאר נזק הקשור לגיל בתא האם בעוד שנוצרים תאי בת צעירים1,2,3,4. לכן, תוחלת החיים הרפליקטיבית של השמרים מוגבלת, והיא מוגדרת כמספר תאי הבת שתא אם נתון מייצר לפני חלוקתו הסופית, שאחריה חלה נסיגה (senescence) ובסופו של דבר מוות. באופן מרשים, אם תא S. cerevisiae מזדקן משלים גמטוגנזה, תוחלת החיים הרפליקטיבית של כל הגמטות שנוצרו מתאפסת לחלוטין, מה שהופך אותן לבלתי ניתנות להבחנה מגמטות שנגזרו מתאי קדם צעירים5,6,7,8,9 (איור 1A). מאז הגילוי הראשוני של התחדשות גמטוגנית בשמרים, זוהו מספר גורמים חשובים המסלקים נזק הקשור לגיל במהלך הגמטוגנזה, אך היעדרה של טכנולוגיה בעלת תפוקה גבוהה (high-throughput) הפך את חקירת ההשפעה של נתיבים אלה על תוחלת החיים של הגמטות למאתגרת6. כימות תוחלת החיים הרפליקטיבית של גמטות הסתמך היסטורית על דירוג ידני של חלוקות תאים באמצעות מיקרוסקופ מיקרו-דיסקציה פלואורסצנטי, שבו תוחלת החיים הרפליקטיבית של הגמטות מדורגת במשך מספר ימים על ידי ספירה רציפה והסרה ידנית של תאי הבת שנוצרו7. למרות שניתן לנתח את תוחלת החיים הרפליקטיבית של גמטות בטכניקה זו, אופייה העמוס וגוזל הזמן הובילו ליישום שולי בתחום במהלך העשור האחרון10,11. העובדה שלא הוכח שנתיבים מולקולריים ספציפיים תורמים ישירות להתחדשות גמטוגנית מאז גילויה הראשוני7 מדגישה את מגבלות הטכניקה הנוכחית ואת הצורך במבחן אוטומטי ובעל תפוקה גבוהה.
בשנים האחרונות, גישות חדשות המבוססות על מיקרופלואידיקה החליפו את הכמות של תוחלת החיים הרפליקטיבית באמצעות מיקרו-מניפולציה, ובכך ביטלו את הצורך בהפרדה ידנית של תאי בת12. מלכודות שונות תוכננו כדי ללכוד ולשמר תאי אם בתאי דימוי, תוך זרימה קבועה של מצע טרי לאורך כל תוחלת החיים הרפליקטיבית שלהם, מה שגורם לשטיפה של תאי בת שנוצרו לאחרונה. מקביליות של מספר תאי דימוי מאפשרת בנוסף קבלת נתונים על תוחלת החיים הרפליקטיבית של מאות תאים על רקעים גנטיים שונים לאורך מספר ימים בניסוי בודד13,14,15,16,17,18,19. בעוד שגישות המבוססות על מיקרופלואידיקה אלו מועדפות כעת עבור תאי שמרים הפלואידיים הגדלים באופן וגטטיבי, יישום טכניקה זו למדידת תוחלת החיים הרפליקטיבית של גמטות שמרים לא דווח עד כה.
שלושה מכשולים טכניים וביולוגיים מרכזיים מעכבים את הערכת תוחלת החיים השכפולית של גמטות S. cerevisiae באמצעות התקנים מיקרופלואידיים. ראשית, במהלך הגמטוגנזה, תא שמר דיפלואידי עובר שתי חלוקות מייוטיות ויוצר טטרדה דחוסה המכילה ארבע גמטות הפלואידיות עם הפרדה של 2:2 של שני סוגי ההזדווגות, MATa ו-MATα (איור 1A). לכן, בעת טעינת גמטות MATa ו-MATα לתוך התקנים מיקרופלואידיים, פרומונים של הזדווגות המופרשים יגרמו לתגובת הזדווגות בתאים סמוכים, מה שיוביל לעצירת גדילה, מורפולוגיות תא לא תקינות וסתימה של ההתקנים המיקרופלואידיים. שנית, ארבע הגמטות בתוך אסכוס הטטרדה אינן נפרדות באופן טבעי במהלך הנבטה. לכן, ללא הפרדה ידנית, רק טטרדות שלמות יכולות להילכד בתאי מיקרופלואידיקה. שימור מופחת במלכודות של טטרדות שאינן מופרדות וחוסר היכולת לבודד את החלוקות האינדיבידואליות של ארבע הגמטות שעדיין מחוברות הופכים את הערכת תוחלת החיים השכפולית של כל גמטה בודדת לבלתי אפשרית. שלישית, אם טטרדות מופרדות לגמטות בודדות לפני הטעינה להתקנים מיקרופלואידיים, הן קטנות משמעותית מתאים הגדלים באופן וגטטיבי ואינן נלכדות במלכודות סטנדרטיות (איור 2A–C).
כדי להתגבר על מגבלות אלו, Spiri et al. 20269 שילבו מודיפיקציות גנטיות אינרטיות, הפרדת טטרדות וצמיחת גמטות, יחד עם מרקר ספציפי לגמטות, כדי לאפשר כימות בתושבה גבוהה של תוחלת חיים רפליקטיבית של גמטות ואפיון של גורמים הדרושים להשבחה גמטוגנית ב-S. cerevisiae (איור 1B–F). ראשית, כדי למנוע הזדווגות לאחר נביטה מבלי להפריע להכלאות גנטיות סטנדרטיות, הונדס אלל סטרילי מותנה (איור 3A). שנית, כדי להפריד טטרדות לגמטות בודדות, שולב טיפול ב-Zymolyase, המחליש את דופן הנבג החיצונית, עם מניפולציה מכנית. שלישית, כדי לאפשר זיהוי יעיל של גמטות, גם לאחר ההפרדה והצמיחה הקצרה הנדרשת לשימוש במלכודים מיקרופלואידיים סטנדרטיים, הוכנס רפורטר פלורסצנטי ספציפי לגמטות, בעל זמן מחצית חיים ארוך שנשמר בתא. באמצעות גישה זו, ניתן לבודד גמטות בודדות שנגזרות מתאי קדם צעירים ומזדקנים שמומנו בעבר, ולהטעינן למכשירים מיקרופלואידיים לביצוע דימוי רציף של Time-lapse לאורך 72 h, מה שמאפשר ניתוח כמותי והשוואה של תוחלת חיים רפליקטיבית של גמטות מתאי קדם צעירים ומזדקנים9. הפרוטוקול המפורט המתואר כאן משפר משמעותית את ההיתכנות ואת התפוקה של ניתוח תוחלת חיים של גמטות הן בתאי קדם מזדקנים והן בתאי קדם צעירים, ומאפשר זיהוי ישיר של המסלולים המולקולריים המתווכים השבחה תאית במהלך הגמטוגנזה.
פרוטוקול
רשימה מפורטת של הריאגנטים והציוד ששימשו בפרוטוקול זה מופיעה בטבלת החומרים.
1. הזדקנות רפליקטיבית של תאי מייסד
הערה: כל הניסויים המשתמשים בפרוטוקול שלהלן מבוצעים בתאי S. cerevisiae דיפלואידיים מרקע זן SK1 הכוללים את הרקע הגנטי המינימלי הבא: pPMA2-PMA2-eGFP, ste5::NATR-pTet07.1-STE5, pRNR2-TetR-TUP1, pTetO7.1-TetR, flo8Δ, amn1D368V. עבור כל התרביות המודגות בבקבוקי זכוכית, נפח התרבית לא יעלה על 1/5 מנפח הבקבוק כדי להבטיח אוורור תקין.
- הפשיר תאי דיפלואיד על צלחות גליצרול עם תמצית שמרים ופפטון (YP), דגירה ב- 30 °C במהלך הלילה. העבר תאי דיפלואיד לצלחות YP dextrose (YPD), דגור ב- 30 °C (>8 שעות).
- העבירו תרביות של תאי דיפלואיד שהופשרו זה עתה ל-5 מ"ל של מצע YPD נוזלי (2% דקסטרוז). נערנו את התרביות (300 סל"ד) בטמפרטורת החדר למשך לילה (>12 שעות).
- יש לדלל מחדש את תרבית הסטרטר עד לצפיפות אופטית באורך גל של 600 ננומטר (OD600) = 0.2 ב-30 מ"ל YPD (2% דקסטרוז). נער את התרביות (300 סל"ד) ב- 30 °C במשך 3–4 שעות, עד שהתרביות מגיעות לצפיפות OD600 = 0.6–1.
- וודאו שאתם מתחילים עם מספיק תרבית כדי להגיע ל-OD של 16600 יחידות של תאים לסימון לכל גנוטיפ. העבר 2 x 8 OD600 יחידות תאים עבור כל גנוטיפ לתוך מבחנה קונית של 50 מ"ל.
- מומלץ: לפצל 16 OD600 יחידות לשתי דגימות (8 OD600 (יחידות לכל אחד) להקמה של שתי תרביות תאי מייסד עצמאיות עבור כל גנוטיפ. לאחר מיון לפי גיל (שלב 2.16), שלבו את התאים המזדקנים משתי תרביות תאי המייסד כדי להגדיל את התפוקה הכוללת של תאים מזדקנים.
- סבבו במערך צנטריפוגה מבחנה קונית של 50 מ"ל למשך 2 דקות במהירות של 1,900 x g ג' ולמסך את הנוזל העליון. יש להשעות מחדש את המשקע ב-20 מ"ל של תמיסת סליין חוצבת פוספט (PBS) (pH 8).
- חזור על שלב 1.6 פעמיים נוספות, לסך הכל שלושה שטיפות ב-PBS (pH 8). הכן תמיסת ביוטין בריכוז של 8 מג/מ"ל (500 μL נדרש לכל 8 OD600 יחידות של תאים).
- שקלו ביוטין (4 מ"ג לדגימה) והמיסו את האבקה לחלוטין ב-PBS (pH 8) עד להגעה לריכוז סופי של 8 מ"ג/מ"ל (500 μL דרוש לדגימה). לאחר השטיפה השלישית, השהו מחדש את התאים ב-1 מ"ל PBS (pH 8).
- הפצה 500 μL של תרחיף התאים לשני מבחנות צנטריפוגה בעלות הידבקות נמוכה, תוך חלוקה של ה-2 x 8 OD הראשוניים600 יחידות. הוסף 500 μL תמיסת ביוטין (8 mg/mL) לכל מבחנת צנטריפוגה, לנפח כולל של 1 mL (איור 1B).
- אטמו את המכסה באמצעות פראפילם (parafilm) ובצעו ערבוב במכשיר וורטקס למשך דקה אחת. תאים מזדקנים רגישים למאמץ מכני; זוהי הפעם האחרונה שבה התאים יעוברו בוורטקס. מהשלב הזה ואילך, יש להחזיר את משקעי התאים לתליה על ידי פיפוט עדין למעלה ולמטה.
- העבירו את מבחנות הצנטריפוגה למעמד סיבוב (rotating rack) והדגירו למשך 30 דקות ב- 4 °Cסבב במ centri-fuge למשך 2 דקות במהירות של 1,900 x g. גלאחר מכן, שאיף את העלייה. השהה מחדש את המשקע ב-1 מ"ל PBS (pH 8 + 100 mM גליצין) כדי לנטרל כימית את עודפי הביוטין.
- חזור על שלב 1.11 שלוש פעמים נוספות, לסך הכל 3 שטיפות עם PBS (pH 8 + 100 mM glycine). השהה מחדש את התאים ב-1 מ"ל YPD (2% dextrose).
- סבבו בצנטריפוגה למשך 2 דקות ב-1,900 x ג ולשאוב את הנוזל העליון באמצעות פיפטה. הכין 50 מ"ל YPD (דקסטרוז 2%) + אמפיסילין (100 µg/mLתרביות בבקבוקים של 500 מ"ל עבור כל דגימה המסומנת בביוטין.
- שחזר את התאים המסומנים בביוטין ב-1 מ"ל YPD (2% דקסטרוז) והוסף אותם לבקבוק בנפח 500 מ"ל. מדוד את הצפיפות האופטית (OD600) של תרבית המייסדים כדי להעריך את מספר הדורות למחרת.
- נער את תרביות המקור (300 סב"ד) ב- 30 °C במהלך הלילה (16–18 שעות) כדי להשיג הזדקנות רפליקטיבית (איור 1B). הדבר יוביל לכ-6–7 חלוקות של כל תא מייסד המסומן בביוטין.
2. בידוד תאי מייסד מזדקנים
הערה: יש לאחסן PBS (pH 7.4) + BSA (5 g/L) בטמפרטורה של 4 °C ולהרכיבם על קרח במהלך הניסוי.
בעת דילול חוזר של משקעי תאים, ודאו שהם תלוים (resuspended) ומעורבבים באופן מלא כדי למנוע סתימה של העמודה ולמקסם את יעילות המיון. כדי להגביר את טוהר אוכלוסיית התאים המזדקנים, מבצעים שני מייונים רצופים על ידי העברת התמצית (eluate) מעמודת המיון הראשונה לעמודת מיון שנייה רעננה. הליך זה מניב אוכלוסיות של תאים מזדקנים עם זיהום מינימלי של תאים צעירים (טוהר של 90–98%). תאים מזדקנים רגישים למאמץ מכני; יש לתלות את משקעי התאים על ידי פיפטינג עדין מעלה ומטה באמצעות פיפטה סרולוגית.
- לאחר 16–18 שעות דגירה, רשמו את הצפיפות האופטית (OD600) של כל תרבית מייסדת. חשבו את מספר הדורות המשוער (גיל ממוצע = log2(OD600End / OD600Start)).
- סבבו כל תרבית בצנטריפוגה למשך 2 דקות ב-1,900 x g באנבוקוניים של 50 mL ושפכו את הנוזל העליון. השביו את המשקע ב-20 mL PBS (pH 7.4 + BSA (5 g/L)) באמצעות שאיבה והזרקה חוזרת (pipetting) בעזרת פיפט סרולוגי של 25 mL.
- חזרו על שלב 2.2 פעם אחת. ערבבו את מבחנת תרחיף ה-Anti-Biotin MicroBeads על ידי היפוך. בעזרת טיפ קטום, הוסיפו 100 μL של Anti-Biotin MicroBeads לתרחיף התאים.
- ערבבו על ידי היפוך. דגרו ב-4 °C למשך 15 דקות. דגרו על מעמד מסתובב או הפכו את המבחנה לפחות 3–4 פעמים בכל 5 דקות (איור 1C).
- הכינו את המעמד המגנטי של QuadroMACS, את העמודות ואת מסנני טרום-ההפרדה (30 µm). הניחו מיכל מתחת לעמודה לאיסוף כל הפסולת הזורמת דרכה.
- הכינו (Prime) כל מסנן/עמודה עם 3 mL של PBS (pH 7.4 + BSA (5 g/L)). סמנו שני אנבוקוניים של 15 mL עבור כל עמודה ותנאי (אחד עבור "אלואט תאים מזדקנים" ואחד עבור "זרימה דרך של תאים צעירים").
- סבבו את תרחיפי התאים בצנטריפוגה למשך 2 דקות ב-1,900 x g ושפכו את הנוזל העליון. השביו את המשקע ב-20 mL PBS (pH 7.4 + BSA (5 g/L)) ובצעו סבוב נוסף בצנטריפוגה.
הערה: שלב זה חשוב להסרת עודפי Anti-Biotin MicroBeads חופשיים, שאלמלא כן היו רוויים את העמודה. - השביו לחלוטין את משקע התאים ב-5 mL PBS (pH 7.4 + BSA (5 g/L)) והעבירו לעמודת המיון הראשונה (איור 1C). סמנו את העמודות לפי הגנוטיפ שהועבר לצורך מעקב.
- אספו את הזרימה הראשונה שעברה דרך העמודה לאנבוקוניים של 15 mL המסומנים כ"זרימה דרך של תאים צעירים". החליפו את האנבוקוניים של 15 mL במיכל לפסולת ברגע שתרחיף התאים סיים לעבור דרך העמודה.
- אחדו את שני תרחיפי הזרימה של התאים הצעירים מאותו הגנוטיפ לאנבוקוניים אחד של 15 mL. דללו 250 μL של תרחיף הזרימה המאוחד של התאים הצעירים עם 9.75 mL PBS (pH 7.4 + BSA (5 g/L)) באנבוקוניים חדש של 15 mL. הניחו בצד תוך סימון כ"תאים צעירים מדוללים" לשלבים הבאים.
- שטפו כל עמודה 4 פעמים עם 3 mL PBS (pH 7.4 + BSA (5 g/L)). בשטיפה הראשונה, העבירו 3 mL של PBS (pH 7.4 + BSA (5 g/L)) חזרה לאנבוקוניים של 50 mL שהכיל את תרחיף התאים. העבירו לעמודה המתאימה כדי להעביר כל תא שנותר לעמודה. שטפו את העמודה 3 פעמים עם 3 mL טריים של PBS (pH 7.4) + BSA (5 g/L).
- הכינו עמודות חדשות ומסנני טרום-הפרדה (30 µm) למיון שני. הכינו (Prime) כל מסנן/עמודה עם 3 mL של PBS (pH 7.4 + BSA (5 g/L)).
- הסירו את העמודה הראשונה מהמגנט והחזיקו אותה מעל העמודה השנייה לצורך המיון השני. הוסיפו 5 mL של PBS (pH 7.4 + BSA (5 g/L)) לעמודה הראשונה ודחפו באופן קבוע (בעדינות אך בנחישות) בעזרת הבוכנה המסופקת כדי להוציא (elute) את התאים המזדקנים.
- העבירו את התאים המזדקנים ששוחררו לעמודה השנייה. סמנו את העמודות לפי הגנוטיפ שהועבר לצורך מעקב.
- שטפו כל עמודה 3 פעמים עם 3 mL PBS (pH 7.4) + BSA (5 g/L). הסירו את העמודה מהמגנט והניחו אותה באנבוקוניים של 15 mL המסומן כאלואט תאים מזדקנים. הוסיפו 5 mL של PBS (pH 7.4) + BSA (5 g/L) לעמודות ודחפו באופן קבוע (בעדינות אך בנחישות) בעזרת הבוכנה המסופקת כדי להוציא את התאים המזדקנים.
- אחדו שני אלואטים משתי תרביות מייסדות בלתי תלויות של אותו הגנוטיפ כדי להגדיל את התפוקה הכוללת של תאים מזדקנים (ראו שלב 1.5).
3. סימון פלואורסצנטי של צלקות ניצנים וביוטין
הערה: כאשר התאים מסומנים בצבעים פלואורסצנטיים, יש להגן עליהם מאור במהלך הדגירה. מצע להשראת גמטוגנזה מותנה מתקבל על ידי סטריליזציה באמצעות סינון של תרבית להשראת גמטוגנזה במצע סטנדרטי להשראת גמטוגנזה, 5 h לאחר השראת הגמטוגנזה. יש לאחסן את המצע המותנה להשראת גמטוגנזה כשהוא אטום עם parafilm בטמפרטורה של 4 °C.
- סבב במערך צנטריפוגה את תרחיף התאים המשולב של התאים המזדקנים והצעירים המדוללים למשך 2 min במהירות של 1,900 x g ושפוך את הנוזל העליון (supernatant). השהה מחדש את התאים ב-12 mL PBS (pH 7).
- חזור על שלב 3.1 פעמיים, ובפעם השנייה השהה מחדש את התאים ב-4 mL PBS (pH 7). הוסף לכל מבחנה 4 μL של wheat germ agglutinin מסומן פלואורסצנטית (1 µg/mL) ו-4 μL של streptavidin מסומן פלואורסצנטית (1 µg/mL) (איור 1C).
- דגור למשך 15 min בחושך בטמפרטורת החדר. הפוך את המבחנות 3–4 פעמים בכל 5 min. סבב את התאים בצנטריפוגה למשך 2 min במהירות של 1,900 x g, ולאחר מכן שפוך את הנוזל העליון.
- השהה מחדש ב-12 mL מצע להשראת גמטוגנזה (gametogenesis-inducing media). חזור על שטיפת הצנטריפוגה וההשהה מחדש שלוש פעמים; לאחר השטיפה האחרונה, השהה מחדש את התאים ב-2 mL של מצע להשראת גמטוגנזה מותנה (conditioned) המכיל ampicillin (100 µg/mL).
4. השראת גמטוגנזה וניתוח מיון גיל
זהירות: פורמאלדהיד הוא חומר רעיל ומגרה; יש לטפל בו במנדף כימי תוך לבישת ציוד מגן אישי (PPE) מתאים.
- מדוד את הצפיפות (OD600) של תרחיף התאים שנקיסו מחדש (משלב 3.4). דלל את התרביות ל-OD600 של 0.8 באמצעות מצע מותנה להשראת גמטוגנזה המכיל ampicillin (100 µg/mL), ולאחר מכן העבר לבקבוק זכוכית.
הערה: הנפח תלוי בתפוקה הכוללת של התאים המזדקנים; נפח תרבית סופי של 10 mL מספיק ליישומים המשכיים. - העבר מנות (aliquots) של 135 μl של תרבית טרום-גמטוגנית מדוללת למבחנות צנטריפוגה של 1.5 mL המכילות 15 μl formaldehyde (37%). סובב והדגר בטמפרטורת החדר למשך 15 דקות. אחסן ב-4 °C.
- נער את התרביות (300 rpm) ב-30 °C למשך 24 שעות כדי להשלים את הגמטוגנזה (איור 1C).
נקודת עצירה: ניתן לבצע דימוי של תאים מקובעים ב-formaldehyde בכל זמן נוח. עם זאת, מומלץ לוודא את יעילות המיון של התאים המזדקנים לפני המשך הפרוטוקול. ניתן לאחסן תאים למשך עד 48 שעות במצע קיבוע של formaldehyde ב-4 °C. לאחסון לטווח ארוך, החלף את התמיסה המכילה formaldehyde ב-sorbitol (1.2 M) ואחסן ב-20 °C-. - לפני הדימוי, צנטריפוג תאים מקובעים ב-formaldehyde למשך 2 דקות ב-1,900 x g. שאב את העלייה (supernatant) למכל פסולת ייעודי ל-formaldehyde.
- קיס מחדש ב-20 μL של sorbitol (1.2 M). הוסף 3.3 μL של תרחיף התאים לזכוכית רהיטה סטנדרטית והנח כיסוי זכוכית (coverslip) של 22 x 22 mm.
- רכוש z-stack הכולל את מלוא נפח התאים בערוצי DAPI, mCherry, FITC ו-differential interference contrast (DIC) כדי להעריך את מספר צלקות הנביטה, סימון הביוטין ו-Pma2-GFP (איור 1C ו-איור 4A; מוצגים בצבעי מגנטה, צהוב וציאן, בהתאמה).
- המשך לרכוש נתונים של לפחות 50 תאים לכל תנאי.
5. ניתוח תמונות להערכת יעילות סימון הביוטין ומספר צלקות הניצנים
נקודת עצירה: ניתן לבצע ניתוח תמונות כדי לאמת את הפרדת הגילים בכל נקודה נוחה. עם זאת, מומלץ לאמת את יעילות המיון לפני ההמשך בשאר הפרוטוקול.
הערה: תמונות נספרות באמצעות מאקרואים מותאמים אישית של Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m) בחצי-אוטומטיה20,21. הערות ספציפיות לגבי קלטי המאקרו מצוינות בכותרת של כל מאקרו ויש להתאימן לנתוני הקלט האישיים.
- פתחו את Fiji/ImageJ. גררו ושחררו את המקרו Manual ROI Selection and TIFF Export (Supplementary File 1) אל תוך Fiji/ImageJ כדי לפתוח אותו.
- לחצו על Run בחלון המקרו. בחרו את תיקיות הקלט והפלט לפי ההנחיות ולחצו על OK.
- שרטטו מלבן סביב התאים הרלוונטיים והוסיפו כל מלבן למנהל אזורי העניין (ROI manager) באופן ידני או באמצעות קיצור הדרך t. כללו את התא כולו בתוך המלבן והשאירו שוליים של בערך קוטר תא אחד בכל צד.
- לאחר שכל ה-ROI הוספו למנהל ה-ROI מהתמונה הראשונה, לחצו על OK בחלון ההודעה: Action Required (all ROI selected and saved to ROI manager (t)?) (Supplementary Figure 1). כל ה-ROI שנבחרו ייגזרו ויישמרו באופן אוטומטי. התמונה הבאה בתיקיית הקלט תיפתח באופן אוטומטי.
- חזרו על שלבים 5.3–5.4 עבור כל התמונות בתיקיית הקלט. המקרו ייעצר לאחר שיעבור על כל התמונות בתיקיית הקלט. גררו ושחררו את המקרו Single-Cell 3D and Z Projection (Supplementary File 2) אל תוך Fiji/ImageJ כדי לפתוח אותו.
- התאימו את המרווח בין הפרוסות (slice spacing) בפקודה 3D Project… במידת הצורך. לחצו על Run בחלון המקרו. בחרו את תיקיות הקלט והפלט לפי ההנחיות ולחצו על OK.
הערה: המקרו ירוץ באופן אוטומטי, ללא צורך בקלט מהמשתמש. המקרו ייעצר לאחר שיעבור על כל התמונות בתיקייה. - העבירו את כל התמונות ששמן מתחיל ב-Y_projection… לתיקיית קלט חדשה לצורך ספירה. גררו ושחררו את המקרו Manual Budscar and Biotin Annotation (Supplementary File 3) אל תוך Fiji/ImageJ כדי לפתוח אותו.
- לחצו על Run בחלון המקרו. בחרו את תיקיות הקלט והפלט לפי ההנחיות ולחצו על OK. ספרו את צלקות הניצנים (bud scars) על ידי סיבוב התא בתלת-ממד.
הערה: כל מבנה דמוי טבעת חיובי ל-DAPI ו-mCherry נספר כצלקת ניצן אחת, אלא אם הם חופפים ומייצגים את אותו אירוע של צלקת ניצן. הסימן המעגלי הגדול והמלא שחיובי לביוטין (mCherry) על כל תא מרגע לידתו אינו נספר במספר צלקות הניצנים הכולל (Figure 4A). - לחצו על OK בחלון ההודעה: Action Required (Number of bud scars?). בחרו את מספר צלקות הניצנים שנספרו בחלון ההודעה, ואז לחצו על OK (Supplementary Figure 2).
- קבעו האם התא מסומן בביוטין על ידי בחינת אות ה-mCherry. אם תא היה נוכח במהלך סימון הביוטין, התא כולו יהיה חיובי ל-mCherry (Figure 4A).
- לחצו על OK בחלון ההודעה: Action Required (Biotin label: No = 0/ Yes = 1?). בחרו 0 אם לתא אין סימון ביוטין ו-1 אם לתא יש סימון ביוטין. בחלון ההודעה Other, לחצו על OK (Supplementary Figure 3).
- התוצאות יירשמו באופן אוטומטי בחלון ה-Log ויישמרו כקובץ .txt בתיקיית הפלט. אין לסגור את חלון ה-Log במהלך הספירה.
- התמונה הבאה תיפתח באופן אוטומטי. חזרו על שלבים 5.9–5.13 עבור כל התמונות בתיקיית הקלט. המקרו ייעצר לאחר שיעבור על כל התמונות בתיקיית הקלט.
6. הערכת יעילות הגמטוגנזה וניתוח גיל הטטראדים
הערה: חשוב לאמת מחדש את הפרדת הגיל של הטטראדות (tetrads) כדי לשלול דלדול ספציפי של תאים מזדקנים במהלך הגמטוגנזה. השתמש באותו צינור ניתוח כפי שבוצע עבור תאים טרום-גמטוגניים המתואר בשלב 5 (ניתוח תמונות להערכת יעילות סימון הביוטין ומספר צלקות הניצנים), עם ההבדל שבתנאים פוסט-גמטוגניים נגזזות ומשמשות לניתוח רק טטראדות, שכן רק גמטות בתוך טטראדות ישרידו את הטיפול ב-Zymolyase ובכך יתרמו לאוכלוסיית הגמטות. התמונות מכומתות באמצעות מאקרואים חצי-אוטומטיים מותאמים אישית של Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21. הערות ספציפיות על קלטי המאקרו מצוינות בכותרת של כל מאקרו ויש להתאימן לנתוני הקלט האינדיבידואליים.
נקודת עצירה: ניתן לבצע את ספירת יעילות הספורולציה לאחר הכנת הפרדת הנבגים, על ידי הפרשת מנה (aliquot) של 100 μl מהתרבית הראשונית לשפופרת צנטריפוגה לצורך ספירה.
- חשבו את יעילות הספורולציה על ידי קביעת מספר המונאדות, הדיאדות והטטראדות עבור 300 תאים מכל תרבית באמצעות מיקרוסקופ אור.
- לאחר 24 h במצע המשרה גמטוגנזה, העבירו מנבוב (aliquot) של 135 μL מתרבית לאחר גמטוגנזה מדוללת (משלב 4.3) למבחנות המכילות 15 μL של פורמאלדהיד (37%).
- סובבו והדגירו בטמפרטורת החדר למשך 15 min. אחסנו ב-4 °C.
נקודת עצירה: אם בוצע מיון לפי גיל עבור תאים טרום-גמטוגניים, ניתן לבצע הדמיה של טטראדות מקובעות בפורמאלדהיד בכל זמן נוח. ניתן לאחסן תאים למשך עד 48 h במצע קיבוע של פורמאלדהיד ב-4 °C. לאחסון לטווח ארוך, החליפו את התמיסה המכילה פורמאלדהיד בסורביטול (1.2 M) ואחסנו ב-20 °C- . - לפני ההדמיה, סבבו בצנטריפוגה תאים מקובעים בפורמאלדהיד למשך 2 min במהירות של 1,900 x g. שאבו את העליון (supernatant) למכל ייעודי לפסולת פורמאלדהיד.
- השעיו שוב (Resuspend) ב-20 μL של סורביטול (1.2 M). הוסיפו 3.3 μL של תרחיף תאים לזכוכית כיסוי סטנדרטית והניחו מכסה זכוכית של 22 x 22 mm.
- השיגו z-stack הכולל את כל נפח התאים בערוצי DAPI, mCherry, FITC ו-DIC כדי להעריך את מספר צלקות הניצות (bud scars), סימון הביוטין ו-PMA2-GFP (איור 1D ו-איור 4A; מוצגים במגנטה, צהוב וציאן, בהתאמה).
- המשיכו ברכישת תמונות עבור לפחות 50 טטראדות לכל תנאי.
נקודת עצירה: אם בוצע מיון לפי גיל עבור תאים טרום-גמטוגניים, ניתן לבצע ניתוח של יעילות סימון הביוטין ומספר צלקות הניצות בטטראדות בכל זמן נוח. - נתחו את יעילות סימון הביוטין ומספר צלקות הניצות של טטראדות לאחר גמטוגנזה כפי שמתואר בשלב 5.
7. הפרדת טטרדות לגמטות בודדות
הערה: לאחר טיפול ב-Zymolyase, התאים הופכים לדביקים מאוד; יש לנקוט זהירות בעת השהייה מחדש של משקעי התאים כדי למנוע שאיבה או איבוד שלהם. יש להכין מצע YPD (2% dextrose) + ampicillin (100 µg/mL) טרי ומסונן לסטריליזציה ביום הניסוי כדי להסיר שאריות או משקעים לא רצויים.
זהירות: β-mercaptoethanol הוא חומר רעיל ונדיף; יש לטפל בו במנדף תחת ציוד מגן אישי (PPE) מתאים.
- לאחר 24 שעות במצע המשרה גמטוגנזה, העבירו את התרביות (משלב 4.3) למבחנות קוניות של 15 mL. סנטריפיקו למשך 2 דקות ב-1,900 x g ושפכו את העילוי.
- סספנדו מחדש ב-900 μl של H2O דה-יוני sterile והעבירו למבחנות 1.5 mL בעלות הידבקות נמוכה. הוסיפו 100 μL של Zymolyase (1 mg/mL).
- בתוך מ㖘ולא, הוסיפו 2 μL של β-mercaptoethanol. אטמו את המבחנות באמצעות פאראפילם, העבירו למעמד מסתובב, והדגירו למשך 3 שעות ב-30 °C (איור 1D).
- לאחר 3 שעות הדגרה, העבירו את הסספנסיה למבחנה קונית של 15 mL. השתמשו בפ pipette בזהירות: התאים דביקים מאוד. סנטריפיקו את הדגימות למשך 2 דקות ב-1,900 x g. שאבו את העילוי לחלוטין ובזהירות, תוך הימנעות מהמשקע הדביק, ולאחר מכן סספנדו מחדש ב-1 mL של H2O דה-יוני sterile.
- חזרו על שלב 7.4 פעם אחת. בצעו סוניקציה לדגימות באמצעות סוניקטור ידני (איור 1D). בצעו סוניקציה לדגימות למשך 20 שניות ב-1 פולס/שנייה וב-50% duty cycle. הניחו את הדגימות על קרח למשך דקה אחת בין כל מחזור סוניקציה.
- שטפו את הסוניקטור עם אתנול 70% בין דגימה לדגימה. חזרו על תהליך הסוניקציה המתואר בשלב 7.5 חמש פעמים נוספות, לסך הכל שישה מחזורי סוניקציה.
- אמתו את הפרדת הטטרדים באמצעות מיקרוסקופ אור (איור 3B). הוסיפו 1 mL של YPD (2% dextrose) + ampicillin (100 µg/mL) (סטריליזציה בסינון ביום הניסוי) לכל דגימה.
- דללו מחדש עד OD600 = 0.8 עם YPD (2% dextrose) + ampicillin (100 µg/mL). הנפח תלוי בתפוקה הכוללת של התאים המופרדים.
הערה: הנפח המקסימלי הוא 12 mL במידה ונעשה שימוש במבחנות קוניות של 15 mL. - סננו את התרביות דרך מסנן טרום-הפרדה לתוך מבחנה קונית נקייה של 15 mL. העבירו למעמד מסתובב, הדגירו ב-30 °C למשך 3 שעות לפני הטענה למכשירים מיקרופלואידיים (איור 1D).
8. הכנת התקן המיקרופלואידי
הערה: סעיף זה מתאר את הגדרת המכשירים המיקרופלואידיים (איור 2A–C) בהתאם להמלצות היצרן, תוך שימוש במיקרוסקופ פלואורסצנציה הפוך עם תא בקרת סביבה. השתמש ב-70% Ethanol לסטריליזציה של אזור העבודה, המספריים, הצינוריות והכפפות לאורך תהליך ההגדרה כדי להפחית את הסיכון להחדרת זיהומים. כדי להפחית את הסיכון להצטברות תאים וחסימות במהלך הניסוי, מתווסף Pluronic F-127 למצע הגידול. המס 5 g של אבקת Pluronic F-127 (בריכוז 10 g/L) ב-500 mL של מצע YPD (עם 2% dextrose) יום אחד לפני הניסוי, הוסף ampicillin (בריכוז 100 µg/mL), ובצע סטריליזציה על ידי סינון 1–2 שעות לפני השימוש. ודא שלא נותרו בועות אוויר במזרקי המצע ובצינוריות במהלך הגדרת המכשיר המיקרופלואידי.
- המס 5 גרם אבקת Pluronic F-127 (בריכוז של 10 גרם/ליטר) ב-500 מ"ל של מצע YPD (עם 2% דקסטרוז). הכן את התמיסה יום אחד לפני הניסוי והשאר אותה להתמוסס למשך הלילה. ביום הניסוי, הוסף אמפיסילין (100 µg/mLל-YPD (2% דקסטרוז), Pluronic F-127 (10 גרם/ליטר).
- בצע סטריליזציה באמצעות סינון ל-YPD (2% דקסטרוז) + אמפיסילין (100 µg/mL) + Pluronic F-127 (10 גרם/ליטר). יש להמתין 1–2 שעות לפני טעינת משאבות המדיום כדי להסיר בועות אוויר שהוכנסו במהלך הסינון.
- בדקו את ההתקן המיקרופלואידי לאיתור נזקים, כגון סדקים בזכוכית הכיסוי. אטמו את פתחי הכניסה להטענת תאים באמצעות פינים מוצקים מפלדת אל-חלד (איור 2A,D,E).
הערה: יש להיזהר שלא להחדיר פיני פלדת אל-חלד מוצקים עמוק מדי לתוך פתחי טעינת התאים, שכן הדבר עלול להקשות על הוצאתם במהלך טעינת התאים. - חתוך את הצינור עבור יציאת המדיום באורך הדרוש לחיבור בין פתח יציאת המדיום לבין מכל איסוף הפסולת, תוך השארת רזרבה של צינור (slack) למען תנועת הבמה במהלך ההדמיה (איור 2A,G).
- חברו פינים חלולים מפלדת אל-חלד לצינוריות יציאת המדיום. חברו את הפינים החלולים מפלדת אל-חלד ואת הצינוריות לפתחי יציאת המדיום (איור 2D–Fהוסף שמן לעדשת המיקרוסקופ ולזכוכית הכיסוי שעל המכשיר המיקרופלואידי.
- התקן את ההתקן המיקרופלואידי על המיקרוסקופ (איור 2G). מצא את מישור המוקד של יחידות הדימות ובדוק את שלמות מבני ה-U-trap העשויים פולידימيثילסילוקסן (PDMS) (איור 2C).
- חברו צינור ישירות מפתח יציאת המצע אל תוך מיכל פסולת (איור 2G). הדבק את צינור יציאת המצע לבמה של המיקרוסקופ (איור 2G, סרט הדבקה ירוק).
- יש לוודא שצינור יציאת המצע נמצא גבוה משמעותית מהתחתית של מיכל הפסולת, כדי למנוע טבילה של הצינור במצע הפסולת שיצטבר במהלך הניסוי, דבר שעלול ליצור לחץ חוזר.
- קצץ את צינור יציאת המדיום במידת הצורך. חתוך את צינור כניסת המדיום לאורך הדרוש לחיבור בין פתח כניסת המדיום למזרקי המדיום המונחים על המיקרו-משאבות. השאר רזרבה של צינור למען תנועת הבמה במהלך הדימוי.
- חברו פינים חלולים מפלדת אל-חלד לצינור כניסת המצע. פתחו את אריזת המזרק בנפח 20 מ"ל והוציאו ממנו את כל האוויר.
- קח 20 מ"ל של YPD (2% דקסטרוז) + אמפיסילין (100 µg/mL) + Pluronic F-127 (10 גרם/ליטר) למזרקים של 20 מ"ל. חברו מתאם מזרק לראש מזרק המצע.
- ודאו שמתאם המזרק מהודק היטב. חברו את צינור הכניסה של המדיום למתאם מזרק המדיום. הדביקו בעזרת סרט הדבקה את הקצה השני של צינור הכניסה של המדיום למכל איסוף פסולת, כך שהפין החלול מפלדת אל-חלד פונה אל המכל.
- הוצאו בזהירות את בועות האוויר שנותרו ממזרק המצע. החזיקו את מזרק המצע במצב אנכי, כדי שבועות האוויר יעלו לכיוון ראש המזרק. הפעילו לחץ כדי לדחוף את בועות האוויר ואת המצע דרך הפסנור אל מיכל הפסולת.
- הקישו בעדינות את דופן המזרק על שולחן תוך החזקתו במצב אנכי כדי לשחרר בועות אוויר שנותרו, ולאחר מכן הפעילו לחץ שוב עד שכל בועות האוויר יסולקו. בדקו בקפידה את הצינורית ואת המזרק כדי לוודא שאין בועות אוויר שנותרו.
- התקן את מזרק המצע על המיקרו-משאבה. במקרה של שימוש במיקרו-משאבה עם מספר חריצים, חזור על הכנת המזרק המתוארת בשלבים 8.10–8.14 עבור כל מזרק נוסף, והתקן כל מזרק שהוכן על המיקרו-משאבה עד למילוי כל החריצים הרצויים. הזז את בוכנת המיקרו-משאבה קדימה עד להשקתה עם בוכנות המזרקים, ועד שהמצע יתחיל להידחף דרך הצינוריות של כל המזרקים.
- הכנס את הפינים החלולים מפלדת אל-חלד, המחוברים לצינורית ולמזרק מדיום, אל פתח כניסת המדיום של ההתקן המיקרופלואידי המותקן (איור 2Aה, ט).
- הפעל את המשאבה בקצב זרימה של 2.4 µL/min לאחר שכל המזרקים המותקנים על המיקרו-משאבה מחוברים להתקן המיקרו-פלואידי, הדבק בעזרת סרט דביק את הצינור המחובר לפתח הכניסה של המצע אל במה המיקרוסקופ (איור 2I, סרט הדבקה ירוק ברקע).
- ודאו כי קיימת רפיון בקווי הצנרת כדי לאפשר תנועת במה במהלך הדמיה. הפעילו את תא הסביבה והגדירו אותו ל- 30 °Cהפעילו את משאבות המצע למשך שעתיים לפחות לפני טעינת התאים, כדי להזרים את המצע ליחידות הדימות.
- צ 찍רו תמונות בדיקה של ה-ROI לאחר זרימת מדיה של כשעה, כדי לבחון הבדלים במישור המוקד (focal plane) בין יחידות דימוי בודדות.
- בהתאם למיקרוסקופ ולהגדלה, רכשו עבור כל תא 27 x 2 תמונות ושלושה נתחי z (z-slices) לכל מיקום עם 3–8 µm ריווח, כדי לפצות על הבדלים במישור המוקד לאורך יחידת דימות בודדת.
- יש לעצור את המשאבות שעה אחת לפני טעינת התאים כדי להפחית את הלחץ ולהקל על הטעינה.
9. טעינת גמטות למכשירי מיקרופלואידיקה
הערה: טעינת התאים עבור כל התנאים חייבת להסתיים תוך פחות מ-1 h כדי למנוע חלוקות תאים מוקדמות של הגמטות. אי ביצוע פעולה זו יוביל לדילול הגמטות על ידי תאי בת שנוצרו לאחרונה ולהערכה לא מדויקת של אורך החיים השכפולי הכולל. עבור כל תנאי וגנוטיפ, נטענות שתי יחידות דימוי כדי להשיג שני רפליקות טכניות לצורך ניתוח.
- חתוך את הצינורית להעמסת תאים באורך הדרוש לחיבור בין פתח הכניסה להעמסת תאים לבין המזרק. חבר פינים חלולים מפלדת אל-חלד לצינורית העמסת התאים. חבר מתאם מזרק לראשו של מזרק בנפח 5 mL.
- חבר את צינורית העמסת התאים למתאם המזרק במזרק ה-5 mL. לאחר 3 שעות של גדילה מחדש (שלב 7.9), בדוק אם רוב הגמטות החלו לגדול. בדוק את קיומן של גמטות מוגדלות וניצנים בוקעים באמצעות מיקרוסקופ אור.
- העבר אליקוט של 2 mL מהתנאי הראשון המיועד להעמסה לשפופרת צנטריפוגה בנפח 2 mL. עבור כל תנאי, בצע את שלבים 9.3–9.15 אחד אחד. הסר את פין פלדת האל-חלד המוצק משתי יחידות הדימות שיועמסו בתאים מתנאי ספציפי כדי לשחרר את הלחץ.
- בצע סוניקציה לאליקוטי התאים באמצעות סוניקטור ידני (חמישה פולסים בקצב של 1 פולס/שנייה ומחזור עבודה של 50%) רגע לפני השאיבה למזרק. העבר את תרחיף התאים שעבר סוניקציה דרך מסנן טרום-הפרדה (30 µm) לשפופרת צנטריפוגה חדשה בנפח 2 mL.
- העמס את תרחיף התאים למזרק ה-5 mL המוכן דרך פין פלדת האל-חלד החלול והצינורית המחוברת. פלט אוויר מהמזרק המכיל את תרחיף התאים, תוך וידוא שלא נותר אוויר במזרק ובצינורית.
- דחף את בוכנת המזרק עד שטיפה קטנה של נוזל מופיעה על פין פלדת האל-חלד החלול. הכנס את פין פלדת האל-חלד החלול לפתח הכניסה להעמסת תאים של המכשיר המיקרופלואידי.
- ודא שלא נכנס אוויר על ידי חיבור טיפת נוזל מפין פלדת האל-חלד ישירות לפתח הכניסה להעמסת התאים. השתמש במגבון מעבדה ללא סיבים מגולגל כדי לספוג נוזל עודף ממכשיר המיקרופלואידי.
- העמס את התאים ידנית על ידי הפעלת לחץ זהיר על בוכנת המזרק תוך התבוננות ביחידת הדימות ישירות במיקרוסקופ במצב תצוגה חיה (live view). הפעל לחץ על הבוכנה עד שמבני ה-PDMS U-trap מתחילים להתעוות קלות.
- שמור על לחץ רציף והמתן עד שהתאים יתחילו לזרום לאזור הדימוי. אין להפעיל לחץ מופרז, שכן הדבר עלול להוביל להעמסת יתר ו/או להיפרדות של מבני ה-PDMS מזכוכית המכסה, מה שיהפוך את יחידת הדימוי לבלתי שמישה.
- שחרר את הלחץ ברגע שהתאים מתחילים להיעמס למלכודות ועקוב אחר יעילות ההעמסה לאורך יחידת הדימוי. הפעל לחץ שוב כדי לחזור על מחזור ההעמסה עד שיילכדו תאים במספר מספיק.
- חזור על מחזור ההעמסה אם פחות מ-200 מלכודות מאוישות. ביחידות שהועמסו בצורה אופטימלית, תאים ימלאו 2/3 מהמלכודות, מה שיאזן בין העמסה מספקת לבין הסיכון להעמסת יתר, המגבירה את הסיכון לסתימה במהלך הניסוי.
- אם נעשה שימוש במשאבות משותפות עבור יחידות דימוי שונות ויחידת דימוי אחת סובלת מהעמסת יתר, יש לנתק את הצינורית של היחידה הפגועה ממשאבת המדיה כדי למנוע מהמשאבה להיעצר עקב סתימה וכדי למנוע אובדן של תנאי ניסוי נוספים (איור 2J).
- הסר את פיני פלדת האל-חלד החלולים מפתח הכניסה להעמסת תאים לאחר שהועמסו תאים במספר מספיק. החזר בזהירות ובאיטיות את פין פלדת האל-חלד המוצק לפתח הכניסה להעמסת התאים.
- הימנע מהכנסת פין פלדת האל-חלד המוצק עמוק מדי או מהר מדי לפתח ההעמסה, שכן הדבר עלול לגרום לעלייה פתאומית בלחץ ביחידת הדימוי, ולהוביל לאובדן של תאים כלואים. העמס את הערוץ השני עבור אותו תנאי, החל משלב 9.6.
- הסר את פין פלדת האל-חלד המוצק מיחידות הדימוי המיועדות להעמסה הבאה, ולאחר מכן התחל שוב משלב 9.3 כדי להעמיס את התנאי הבא. חזור על הפעולה עד שכל התנאים יועמסו.
- בעזרת תצוגה חיה במיקרוסקופ, בדוק את כל יחידות הדימוי שהועמסו, וודא שההעמסה מספקת ויציבה ואשר שהיחידה אינה סובלת מהעמסת יתר. ברגע שכל יחידות הדימוי המחוברות למיקרו-משאבה הועמסו ואושרה העמסת תאים נאותה, הפעל את המיקרו-משאבה בקצב זרימה קבוע של 2.4 µL/min.
- בדוק את המכשיר המיקרופלואידי בזהירות כדי לוודא שאין דליפות מפתחי ההעמסה שנסגרו לאחר חידוש זרימת המדיה. אם נצפתה דליפה: נתק והחזר בזהירות את פין פלדת האל-חלד המוצק.
- אם לא ניתן להפסיק את הדליפה, נתק את יחידת הדימוי הפגועה ממשאבת המדיה על ידי הסרת הצינורית ממתאם מזרק המדיה של 20 mL (איור 2J). אם יחידת הדימוי סובלת מהעמסת יתר, נתק את יחידת הדימוי ממשאבת המדיה על ידי ניתוק הצינורית ממתאם המזרק בראש מזרק המדיה של 20 mL.
10. רכישת תמונה
הערה: לאחר הפעלת המשאבות והשלמת בקרת האיכות, מזוהים הגמטות על ידי דימוי של כל שדה הראייה (אזורים המכילים תאים כלואים) עבור כל תא בערוצי FITC ובשדה בהיר (brightfield) בנקודת הזמן t0 (איור 1E ו-איור 3D,E). תנאי הדימוי תלויים במערכת הספציפית ובצורך הניסויי וניתן להתאימם בהתאם. לדוגמה, תוך שימוש בעדשה אובייקטיבית 40x, נרכשים 2 x 27 תמונות ושלושה נתחי z (z-slices) לכל מיקום במרווחים של 3–8 µm, כדי לפצות על הבדלי מישור מוקד משתנים ביחידה אחת, בערוצי FITC ובשדה בהיר. לאחר רכישת נתוני t0, מבוצע דימוי Time-lapse של אותו שדה ראייה במרווחים של 15–20 דקות למשך 72 h כדי לכסות את מלוא אורך החיים השכפולי של הגמטות (איור 3D,E). דימוי ה-Time-lapse מבוצע בערוץ DIC בלבד כדי למנוע פוטוטוקסיות מצטברת כתוצאה מדימוי חוזר בערוץ FITC.
- לאחר הפעלת המיקרו-משאבות, יש לוודא שוב את כל ה-ROIs ואת מישורי המוקד עבור כל יחידות הדימות שהוטענו. רכשו את נקודת הזמן הראשונה (t0) בערוצי ה-FITC וה-DIC עבור כל ה-ROIs כדי לזהות גמטות (GFP-positive) (איור 1D ו-איור 3C).
- לאחר רכישת t0, התחילו בדימוי time-lapse במרווחים של 15–20 min למשך 72 h בסך הכל, כאשר הרכישה מתבצעת בערוץ ה-DIC בלבד (איור 1E ו-איור 3D,E). עקבו אחר המכשיר באופן ספורדי במהלך הניסוי כדי לזהות דליפות ספונטניות. במקרה של זיהוי דליפות, נתקו את המזרק המתאים כדי למנוע כשלים רחבי היקף במשאבות או שפיכת מדיום אל תוך המיקרוסקופ.
- עם השלמת ה-timelapse, העבירו את הנתונים והמשיכו בתהליך הניקיון.
11. ניקיון
- יש לעצור את המשאבות 30 דקות לפני הניקיון, לאחר השלמת רכישת ה-time-lapse. יש להוציא את מזרקי המדיום מהמיקרו-משאבות ולכבות את המשאבות. נתק את פיני הפלדה הנירוסטה החלולים המחוברים לצינוריות ולמזרק המדיום.
- הוצא את ההתקן המיקרופלואידי מהמיקרוסקופ ונתק את כל פיני הפלדה הנירוסטה. נקה את השמן מעדשת המיקרוסקופ.
- השלך את ההתקן המיקרופלואידי ואת פיני הפלדה הנירוסטה למכלי פסולת ייעודיים. העבר את הנתונים וכבה את המיקרוסקופ.
12. ניתוח של אורך החיים הרפליקטיבי של גמטות
הערה: כדי לכמת את תוחלת החיים הרפליקטיבית של הגמטות עם סיום ניסוי time-lapse, התמונות מעובדות ותוחלת החיים הרפליקטיבית של הגמטות נספרת (איור 1F). העיבוד תלוי בהגדרות המיקרוסקופ ובצרכים. בקצרה, תמונות brightfield time-lapse מכל תנאי (אותה יחידת דימוי) מחוברות יחד ליצירת hyper-stack. במידת הצורך, ה-hyper-stack של ה-brightfield time-lapse ותמונות ה-FITC ב-t0 נחתכים ומותאמים בגודלם כך שקואורדינטות X-Y של נקודה ספציפית יהיו זהות בין התמונות. התמונות מכומתות באמצעות מאקרואים חצי-אוטומטיים מותאמים אישית של Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21. הערות ספציפיות על קלטי המאקרו רשומות בכותרת של כל מאקרו ויש להתאימן לנתוני הקלט האינדיבידואליים. תוחלת החיים הרפליקטיבית נמדדת עבור 200 תאים לכל שכפול טכני עבור כל גנוטיפ ותנאי. ספירות משני שכפולים טכניים מחוברות כדי לקבל מדידות חסונות של תוחלת החיים הרפליקטיבית. הניסוי חוזר כדי להשיג שכפול ביולוגי אינדיבידואלי.
נקודת עצירה: ניתן לבצע ניתוח תמונות להערכת תוחלת החיים השכפולית של הגמטות בכל נקודה נוחה לאחר השלמת החלק הניסויי של הפרוטוקול.
- פתחו את תמונת ה-FITC של t0 עבור יחידת מיקרופלואידיקה ספציפית. בחרו את תיקיות הקלט והפלט כפי שמתבקש ולחצו על OK.
- שרטטו מלבן סביב גמט חיובי ל-FITC שהוטען במלכודת המיקרופלואידיקה והוסיפו את המלבן למנהל ה-ROI (קיצור מקלדת t). אין לחתוך את התמונה בצמידות לתא; השאירו שוליים ברוחב של מלכודת אחת בערך מכל צד. (איור 1D, איור 3C, ו-איור משלים 4).
- המשיכו עד שכל הגמטים החיוביים ל-FITC יתווספו למנהל ה-ROI (איור משלים 5). עברו למנהל ה-ROI ובחרו את כל הנקודות. לחצו על More ולאחר מכן על Save.
- שמרו את רשימת ה-ROI בתיקיית הפלט. גררו והנחיתו את המאקרו Manual ROI Crop and TIFF Export - Open Images (קובץ משלים 4) לתוך FIJI/ImageJ כדי לפתוח אותו.
- בחרו את ה-ROI האחרון ברשימה ולחצו על Run בחלון המאקרו: Manual ROI Crop and TIFF Export - Open Images (קובץ משלים 4). בחרו את תיקיית הפלט בהתאם להנחיות כדי להפעיל את המאקרו.
- המאקרו יתחיל לשכפל ולשמור את כל ה-ROI-ים שנבחרו לתיקיית הפלט המוגדרת. המאקרו ייעצר ברגע שכל ה-ROI-ים ישוכפלו ויישמרו.
- סגרו את תמונת ה-FITC של t0. פתחו את ה-hyper stack של צילום רצף בזמן (time-lapse) בשדה בהיר (brightfield) עבור אותה יחידת מיקרופלואידיקה. אם אינו פתוח, גררו והנחיתו את המאקרו Manual ROI Crop and TIFF Export - Open Images (קובץ משלים 4) לתוך Fiji/ImageJ כדי לפתוח אותו.
- אם אינה פתוחה, גררו והנחיתו את רשימת ה-ROI השמורה מתמונת ה-FITC של t0 לתוך Fiji/ImageJ כדי לפתוח אותה. בחרו את ה-ROI האחרון ברשימה ולחצו על Run במאקרו: Manual ROI Crop and TIFF Export - Open Images (קובץ משלים 4).
- בחרו את תיקיית הפלט בהתאם להנחיות כדי להפעיל את המאקרו ולחצו על OK. המאקרו יתחיל לשכפל ולשמור את כל ה-ROI-ים שנבחרו לתיקיית הפלט המוגדרת.
- המאקרו ייעצר ברגע שכל ה-ROI-ים שנבחרו ישוכפלו ויישמרו. סגרו את ה-hyper stack של צילום רצף בזמן בשדה בהיר.
- גררו והנחיתו את המאקרו Manual GFP, RLS, and Terminal Phenotype Annotation (קובץ משלים 5) לתוך Fiji/ImageJ כדי לפתוח אותו. לחצו על Run בחלון המאקרו.
- בחרו את תיקיות הקלט והפלט כפי שמתבקש, ולאחר מכן לחצו על OK. בדקו את ה-FITC של t0 כדי לוודא שגמט (תא חיובי ל-GFP) הוטען. השוו בין תמונת ה-FITC של t0 לבין צילום הרצף בזמן בשדה בהיר של t0 כדי לוודא שאותו תא עדיין טעון בצילום הרצף בשדה בהיר של t0 (איור 3C).
- לחצו על OK בחלון ההנחיה: Action Required (GFP cell trapped Y/N?) (איור משלים 6). אם התא ב-FITC של t0 אינו חיובי ל-GFP, בחרו 0 בחלון ההנחיה.
- אם התא שנטען בצילום הרצף בשדה בהיר של t0 אינו אותו תא שנטען בתמונת ה-FITC של t0, בחרו 0 בחלון ההנחיה. אם התא ב-FITC של t0 חיובי ל-GFP והתא שנטען בצילום הרצף בשדה בהיר של t0 הוא אותו תא שנטען בתמונת ה-FITC של t0, בחרו 1 בחלון ההנחיה (איור משלים 7). לחצו על OK בחלון ההנחיה לאחר שהתקבלה החלטה לגבי תא ה-GFP.
- ספרו את אורך החיים השכפולי (replicative lifespan) על ידי הערכה של מספר תאי הבת שמופיעים מהגמט הנטען לפני שהוא מגיע לפנוטיפ סופי (מפסיק להתחלק) או נדחף מהמלכודת (הולך לאיבוד מה-ROI).
- לאחר ספירת אורך החיים השכפולי, לחצו על OK בחלון ההנחיה: Action Required (RLS of cell?) (איור משלים 8). בחלון ההנחיה, בחרו כמה חלוקות נצפו (RLS) (איור 3D,E; איור משלים 9).
- לאחר דיווח ה-RLS, לחצו על OK בחלון ההנחיה. קבעו אם התא הגיע לפנוטיפ סופי או נדחף מהמלכודת לפני שהפסיק להתחלק.
- לחצו על OK בחלון ההנחיה: Action Required (Terminal?) (איור משלים 10). בחלון ההנחיה, בחרו 0 אם התא נדחף בעודו מתחלק, לפני שנצפה פנוטיפ סופי.
- בחלון ההנחיה, בחרו 1 אם נצפה פנוטיפ סופי (איור משלים 11). בחלון ההנחיה, בחרו “?” אם הדבר אינו ברור.
- לחצו על OK בחלון ההנחיה לאחר שהתקבלה החלטה לגבי הגורל הסופי. לחצו על OK בחלון ההנחיה: Action Required (Reason?) (איור משלים 12).
- אם התא נדחף לפני שהגיע לפנוטיפ סופי, בחרו את גורל תא הדחיפה: “ejected” = תא שנדחף בעודו מתחלק; אם התא הגיע לפנוטיפ סופי בחרו את גורלי התא הסופיים: (א) ejected/done = תא שרכש מורפולוגיה סופית אך נדחף בתוך 3 h מהחלוקה האחרונה; (ב) enlarged = תא שהתרחב והפסיק להתחלק; (ג) failed division and enlarged = תא שנכשל בהפרדה במהלך החלוקה האחרונה והפסיק להתחלק; (ד) shriveled up = תא שאינו מתחלק יותר ומראה מורפולוגיה מכווצת ומקומטת (איור משלים 13); (ה) other = כל קטגוריה אחרת שאינה מתאימה לתיאורים שלעיל.
- לחצו על OK בחלון ההנחיה לאחר שהתקבלה החלטה לגבי גורל התא הסופי. תוצאות מכל ההנחיות יירשמו אוטומטית בחלון הלוג (Log) ויישמרו כקובץ .txt בתיקיית הפלט.
- אין לסגור את חלון הלוג במהלך הספירה. התמונה הבאה בתיקיית הקלט תיפתח באופן אוטומטי. חזרו על שלבים 12.12–12.22 עד שהסקריפט יעבור על כל התמונות בתיקיות הקלט.
תוצאות
הערכה של הפרדת הגיל הרפליקטיבי ויעילות הגמטוגנזה
כדי להשוות את תוחלת החיים הרפליקטיבית של גמטות מתאי קדם בגילאים שונים, יש להבטיח הפרדה מספקת בגיל וטוהר של אוכלוסיות התאים. כדי להעלות את רמת הטוהר של אוכלוסיות התאים המזדקנות המתקבלות ל-90–100%, בוצע התאם קריטי לפרוטוקול הפרדת הגיל הסטנדרטי, שבו האלוט של התאים המזדקנים ממיון ראשון מועבר שנית לעמודה חדשה למיון שני9. כדי להעריך את הטוהר והגיל של אוכלוסיות תאים זקנים וצעירים שעברו מיון כפול, מבוצע צביעה נגד צלקות ניבטון (bud scars) וביוטין, ומצולמים כ-50 תאים לכל תנאי. Wheat germ agglutinin נקשר באופן ספציפי לצלקות ניבטון, שהן מבנים דמויי טבעת עשירים בקיטין על דופן תא השמרים, כאשר אחת מהן נשארת לאחר כל אירוע ניבטון, ובכך נחשף הגיל הרפליקטיבי המדויק של התא (איור 1C ו-איור 4A)22. תמונות של תאים טרום-גמטוגניים מנותחות בהתאם למסלול ניתוח התמונות המתואר בשלב 5 של הפרוטוקול.
פרוטוקול המיון הרצף המתואר כאן מניב בעקביות אוכלוסיות תאים צעירים עם כ-3.63% בלבד של תאים ביוטיניליים וגיל רפליקטיבי ממוצע של 1.16, ואוכלוסיות תאים מזדקנים המכילות כ-96.74% תאים ביוטיניליים עם גיל רפליקטיבי ממוצע של 8.55 (איור 4B,C)9. אם רמת הטוהר של אוכלוסיית התאים המזדקנים או הצעירים, כפי שנמדדה על ידי צביעת ביוטין, היא נמוכה מ-80%, הניסוי מופסק. בניסוי אופטימלי, ההפרש בגיל הממוצע בין אוכלוסיות התאים הצעירים למזדקנים הוא לפחות 6 חלוקות; אם ההפרדה נמוכה מ-4 חלוקות, הניסוי מופסק.
יעילות הגמטוגנזה מנותחת לאחר 24 h במדיה להשראת גמטוגנזה. תחת התנאים המתוארים, 79.8% מהתאים הצעירים ו-78.89% מהתאים המזדקנים יוצרים בהצלחה טטרדות מובחנות באופן ויזואלי בגנוטיפ הביקורת (איור 4D)9. יעילות גמטוגנזה נמוכה אינה מהווה צוואר בקבוק מחמיר עבור פרוטוקול זה, אך היא תפחית את תנובת הגמטות, ובכך תהפוך את השלבים הבאים למאתגרים יותר ופחות ניתנים לשחזור. לכן, אם יעילות הגמטוגנזה נמוכה מ-30%, כמות התאים להזנה לצורך מיון תוכפל (4 x 8 OD600) כדי להבטיח תנובה גבוהה מספיק של גמטות מתאי אב מזדקנים.
אוכלוסיות טטרדות לאחר גמטוגנזה מתאי תרביות צעירים מראות באופן עקבי טוהר של 13.38% תאים ביוטיניליים וגיל רפליקטיבי ממוצע של 1.31, בעוד שאלו מתאי תרביות מזדקנים מראות טוהר של 97.34% תאים ביוטיניליים וגיל רפליקטיבי ממוצע של 8.17 (איור 4E,F)9. יש לבצע הערכות נוספות אם, בגנוטיפ ספציפי, טוהרן של אוכלוסיות טטרדות ממוינות משתנה ביותר מ-20% או אם הגיל הממוצע של טטרדות מזדקנות פוחת ביותר מ-3 חלוקות ביחס לאוכלוסיות תאים מזדקנים לפני גמטוגנזה (איור 4E,F).
לסיכום, מיון רצף של חרוזי מגנט מאפשר הפרדה יעילה של תאים לפי גיל לפני המיוזה, עם יעילות גמטוגנזה דומה הן בתאים צעירים (79.8%) והן בתאים מזדקנים (78.89%). הגיל הרפליקטיבי ורמת הטוהר של אוכלוסיות התאים נבדקים פעמיים: לפני ואחרי הגמטוגנזה. אימות חוזר של הפרדת הגיל של הטטראדים הוא חשוב כדי לשלול את האפשרות שמוטציה נתונה מפריעה לגמטוגנזה באופן תלוי-גיל, מה שמוביל להפחתה ספציפית של ריכוז התאים המזדקנים במהלך הגמטוגנזה.
הערכה של התחדשות גמטוגנית
תאי פרא (wild-type) שלפני גמטוגנזה מוינו לאוכלוסיות של תאים צעירים ותאים מזדקנים, והגמטוגנזה הונעת כפי שמתואר כאן. צלקות ניצות לכל טטרה (tetrad) נספרו כדי לקבוע את הגיל הרפליקטיבי של האוכלוסיות לפני הפרדת הגמטות ורכישת תוחלת החיים הרפליקטיבית של הגמטות (איור 5A)9. בעקבות דימות במרווחי זמן (time-lapse imaging), כימות והשוואה של תוחלת החיים הרפליקטיבית של גמטות שהגיעו מתאי קדם צעירים ומזדקנים הראו תוחלות חיים רפליקטיביות חציוניות דומות עבור גמטות שהגיעו מתאי קדם צעירים ומזדקנים (21 ו-22 חלוקות, בהתאמה; p = 0.982; איור 5B), מה שמאשר שהפרוטוקול המתואר כאן לוכד התחדשות גמטוגנית.
באמצעות גישה זו, זיהינו כי פירוק של רכיבים תאיים פגומים באמצעות אוטופגיה סלקטיבית הוא הכרחי להצערה גמטוגנית9. מסלולי אוטופגיה, המתווכים את פירוק רכיבים פגומים באמצעות הוואקואולה, דועכים עם הגיל, מה שמוביל לעלייה ברכיבים תאיים פגומים23,24. Atg11, חלבון הפיגום המרכזי של האוטופגיה הסלקטיבית הדרוש לגיוס מכונת האוטופגיה הליבתית לקולטני אוטופגיה סלקטיבית המסמנים מטעןים ספציפיים, מועלה באופן דינמי במהלך הגמטוגנזה9. כדי לבחון אם פינוי נזקים באמצעות אוטופגיה סלקטיבית הוא חשוב להצערה גמטוגנית, תאי atg11Δ טרום-גמטוגניים מוינו לאוכלוסיות תאים צעירות ומזדקנות, וגמטוגנזה הושרה בהתאם לפרוטוקול המתואר כאן. לאחר שגיל השכפול של אוכלוסיית הטטראדות אומת על ידי כימות צלקות ניצני השמרים לטטראדה (Figure 5C)9, הטטראדות הופרדו, ונמדד תוחלת חיים רפליקטיבית של הגמטות. כימות תוחלת החיים הרפליקטיבית החציונית של גמטות atg11Δ מתאי קדמונים צעירים ומזדקנים גילה כי לגמטות מתאי קדמונים מזדקנים הייתה תוחלת חיים רפליקטיבית קצרה באופן מובהק ועקבי מאשר לגמטות מתאי קדמונים צעירים של atg11Δ (Figure 5D, Rep.1, p = 2 x 10⁻⁶, Rep.2, p = 3 x 10⁻⁶ בהשוואה ל-Figure 5B)9. תוצאה זו מרמזת כי אוטופגיה סלקטיבית באמצעות Atg11 ממלאת תפקיד מכריע בהצערה מלאה של גמטות שנגזרו מתאי קדמונים מזדקנים, ומראה כי זרימת העבודה המתוארת כאן יכולה לחשוף רכיבים הדרושים לייצור גמטות מוצעערות באופן מלא.
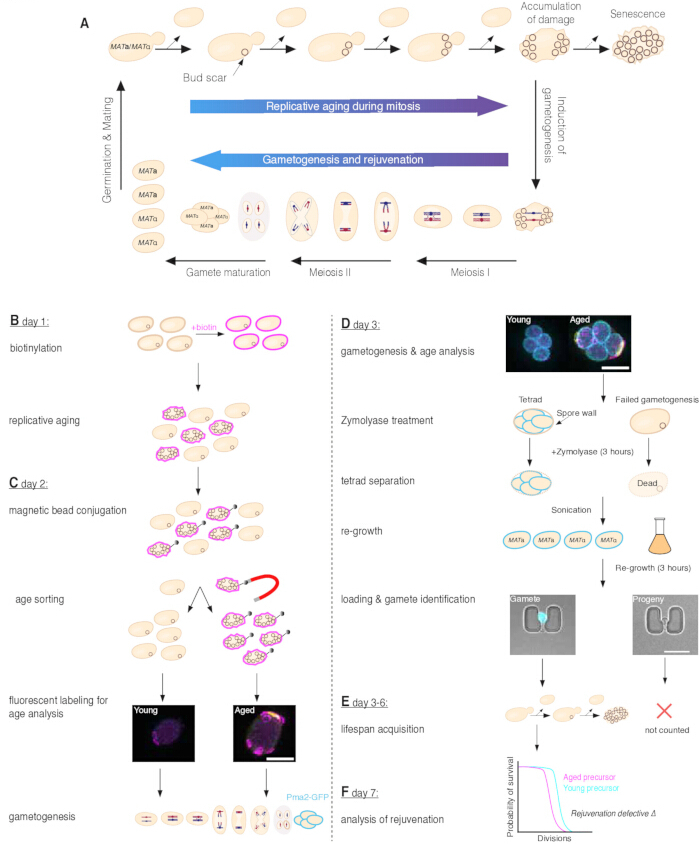
איור 1. התחדשות גמטוגנית ותהליך להערכת תוכל השכפול של גמטות. (A) במהלך גדילה וגטטיבית, שמרים ניצניים מתחלקים באופן אסימטרי. תאי בת שזה עתה נוצרו נולדים צעירים, בעוד שתאי אם צוברים באופן הדרגתי נזקים הקשורים לגיל ובסופו של דבר הופכים לסנצנטים (זקנים). הגיל השכפולי של תא שמרים בודד מסומן על ידי מספר צלקות הניצן, הנוצרות לאחר כל חלוקה ונשארות על דופן תא האם (פאנל עליון). גמטוגנזה מושרית על ידי מחסור בחומרי תזונה (חץ כלפי מטה, מימין). במהלך תהליך זה, שמרים דיפלואידיים מתחלקים באופן סימטרי, ומפיקים טטראדות המכילות ארבע גמטות הפלואידיות צעירות באופן שווה משני סוגי הזיווג. תוכל השכפול של הגמטות מאתחל לחלוטין, אפילו בגמטות שנגזרו מתאי קדמונים זקנים שכפולית (פאנל תחתון). עם הוספת חומרי תזונה, הגמטות מנבטות, חוזרות לגדילה מיטוטית, ומגבשות תאים דיפלואידיים עם זיווג של שני סוגי הזיווג (חץ כלפי מעלה, משמאל). (B) תאי מייסד (Founder cells) מסומנים בביוטין ביום 1 ומגודלים למשך הלילה במצע עשיר בטמפרטורת הגדילה האופטימלית כדי לייצר תאי מייסד זקנים שכפולית ותאי בת צעירים. (C) ביום 2, תאי מייסד המסומנים בביוטין מצומדים לחרוזי מגנט, ולאחר מכן מבוצע מיון מגנטי לפי גיל כדי להפריד בין תאי מייסד זקנים לתאי בת צעירים. לאחר מכן מוערכים הפלואורסצנציה של הביוטין ושל צלקות הניצן כדי לקבוע את יעילות המיון ולאמת את הגיל השכפולי של האוכלוסיות המופרדות. התאים מדגגרים לאחר מכן למשך הלילה במצע המשרה גמטוגנזה כדי לייצר טטראדות המבטאות Pma2-GFP. (D) ביום 3, יעילות הגמטוגנזה, סימון הביוטין וצלקות הניצן מוערכים כדי לאמת את הגמטוגנזה ואת התפלגות הגילים של האוכלוסיות. הטטראדות מטופלות ב-Zymolyase למשך 3 h כדי לעכל את דופן הנבג ולשורר תאים שלא התקדמו בתהליך הגמטוגנזה, ולאחר מכן מבוצעת הפרדה מכנית באמצעות סוניקציה. הגמטות המופרדות גדלות מחדש כדי להקל על שימורן במלכודות ה-U של המיקרופלואידיקה, ולאחר מכן הן נטענות למכשיר המיקרופלואידי. תמונות מייצגות מראות גמטה חיובית ל-Pma2-GFP (משמאל) וצאצאים של גמטה שלילית ל-Pma2-GFP (מימין) כלואים במלכודת ה-U ומודגמים במיקרוסקופ שדה בהיר ובפלואורסצנציית Pma2-GFP (ציאן). (E) תוכל השכפול של הגמטות נמדד באמצעות דימוי Time-lapse לטווח ארוך מבוסס מיקרופלואידיקה במהלך ימים 3–6 של הפרוטוקול. (F) תוצאה היפותטית לאחר ניתוח תוכל השכפול של גמטות ברקע פגום-התחדשות ביום 7 של הפרוטוקול. Scale bars = 5 µm. איור זה מותאם מ-Spiri et al.9. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
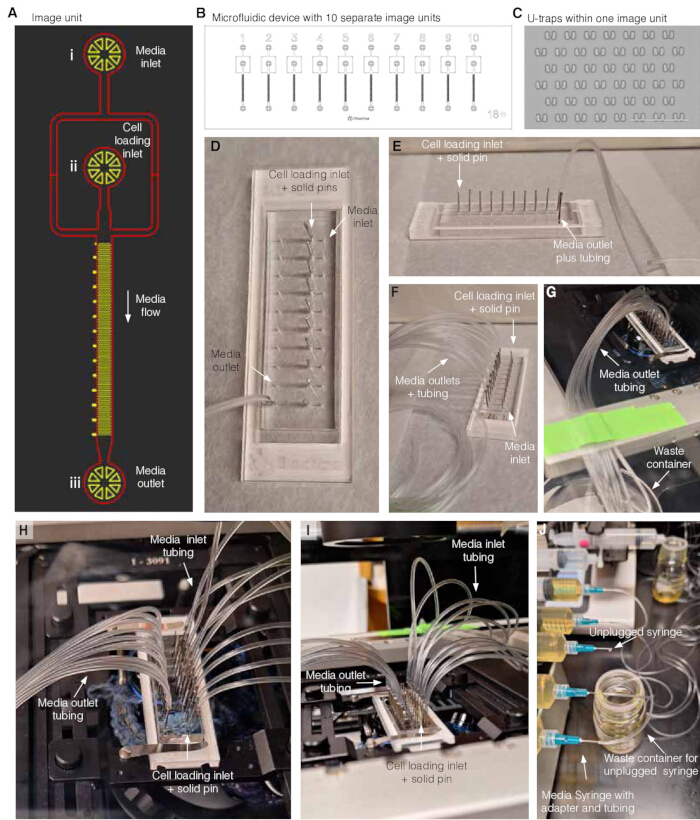
איור 2. הכנת התקן מיקרופלואידי. (A) סכימה סכמטית של יחידת דימות אחת. (i) כניסת מצע; (ii) כניסת טעינת תאים, ו-(iii) יציאת מצע. במהלך הניסוי, מצע טרי זורם מכניסת המצע (i) ליציאת המצע (iii) בעוד שכניסת טעינת התאים (ii) אטומה באמצעות פין פלדת אל-חלד מוצק. (B) סכימה סכמטית של התקן מיקרופלואידי אחד המכיל 10 יחידות דימות נפרדות. (C) תמונה של מלכודות U מ-PDMS והמרווחים ביחידת דימות אחת, סרגל קנה מידה הוא 100 µm. (D) מבט מלמעלה של ההתקן המיקרופלואידי עם פיני פלדת אל-חלד מוצקים האוטמים את כל כניסות טעינת התאים, ופין פלדת אל-חלד חלול בתוספת צינור האוטמים יציאת מצע אחת לאיסוף זרימת המצע. (E) מבט מהצד של ההתקן המיקרופלואידי עם פיני פלדת אל-חלד מוצקים האוטמים את כל כניסות טעינת התאים ופין פלדת אל-חלד חלול בתוספת צינור האוטמים יציאת מצע אחת לאיסוף זרימת המצע. (F) התקן מיקרופלואידי עם פיני פלדת אל-חלד מוצקים האוטמים את כל כניסות טעינת התאים ופיני פלדת אל-חלד חלולים בתוספת צינורות האוטמים את כל יציאות המצע לאיסוף זרימת המצע. (G) התקן מיקרופלואידי עם פיני פלדת אל-חלד מוצקים האוטמים את כל כניסות טעינת התאים ופיני פלדת אל-חלד חלולים בתוספת צינורות האוטמים את כל יציאות המצע לאיסוף זרימת המצע, מותקן על מיקרוסקופ. הצינורות לאיסוף זרימת המצע מודבקים (סרט ירוק) לבמה של המיקרוסקופ ומופנים אל מיכל איסוף הפסולת. (H) התקן מיקרופלואידי עם פיני פלדת אל-חלד מוצקים האוטמים את כל כניסות טעינת התאים, פיני פלדת אל-חלד חלולים בתוספת צינורות האוטמים את כל יציאות המצע, ופיני פלדת אל-חלד חלולים בתוספת צינורות המחוברים למזרקי מצע האוטמים את כל כניסות המצע, מותקן על מיקרוסקופ. (I) התקן מיקרופלואידי עם פיני פלדת אל-חלד מוצקים האוטמים את כל כניסות טעינת התאים, פין פלדת אל-חלד חלול בתוספת צינור האוטמים את כל יציאות המצע, ופין פלדת אל-חלד חלול בתוספת צינור המחובר למזרקי מצע האוטמים את כל כניסות המצע, מותקן על מיקרוסקופ. צינורות ממזרקי המצע מודבקים לבמת המיקרוסקופ (סרט ירוק ברקע). (J) דוגמה לאופן ניתוק מזרק המצע מההתקן המיקרופלואידי במקרה של דליפה או יחידת דימות עמוסה מדי. איורים 2A–C עובדו מ-Jo et al.15. איורים D–J עובדו מ-Spiri et al.9. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
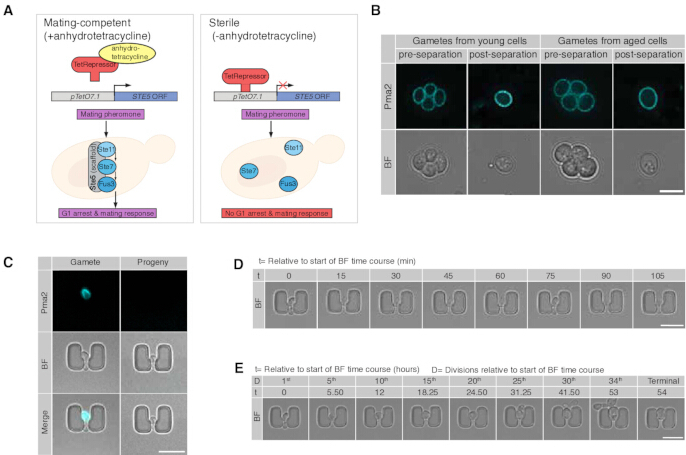
איור 3הכנת גמטות לקביעת תוחלת החיים השכפולית של גמטות באמצעות מיקרופלואידיקה. (A) תיאור סכמטי של המערכת הגנטית להשגת עקרות מותנית. הפרומוטור האנדוגני של STE5, חלבון פיגום הנחוץ להעברה של אותים בעקבות זיהוי פרומון הזיווג, מוחלף ב- pTetO7.1 מקטע מקדם. במצב הבסיס, חלבון מדכא ה-Tet (TetR), המבוטא תחת מקדם קבוע (constitutive promoter), נקשר pTetO7.1 ומדכא את השעתוק מהפרומוטור הזה. הוספה וקישור של anhydrotetracycline גורמים לשינוי קונפורמציוני ב-Tet Repressor, המפחית את זיקתו ל- pTet07.1 ובכך, מסירים את הדכייה של השעתוק של STE5. (B) חתכי z בודדים מייצגים של טטראדים וגמטות צעירים (פאנל שמאלי) ומזוקנים (פאנל ימני), לפני ואחרי הפרדה, המדגימים תאורה במישור בהיר (brightfield) ו-Pma2-GFP (בצבע ציאן). (ג) גמטה מייצגת חיובית ל-Pma2-GFP (פאנל שמאלי) וצאצאים של גמטה שלילית ל-Pma2-GFP (פאנל ימני) שנלכדו במכשירים מבוססי מיקרופלואידיקה, המציגים הדמיה בשדה בהיר וב-Pma2-GFP (ציאן).ד) גמט לכוד מייצג מתחלק פעמיים לאורך תקופה של שעתיים. (ה) גמט מייצג שנלכד ביחידת דימות מיקרופלואידית, עם ויזואליזציה בכל 5th חלוקה עד לטרמינל 34th חלוקה לאורך פרק זמן של 54 שעות. סרגני קנה מידה = 5 µmאיור זה מותאם מ-Spiri et al.9. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
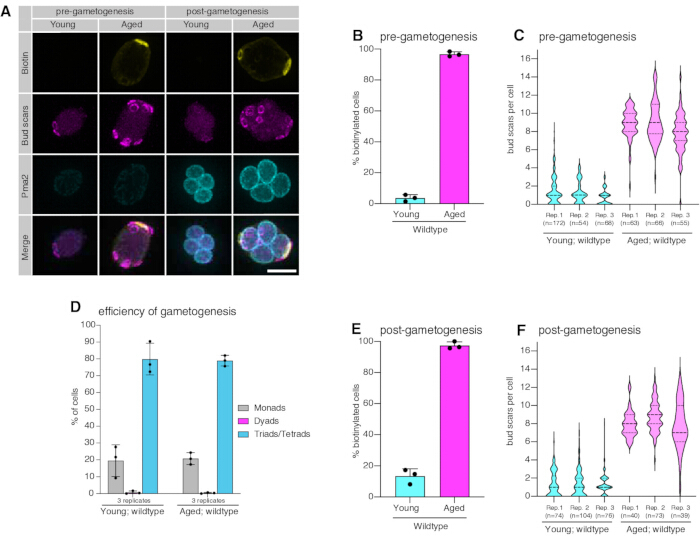
איור 4. כימות של גיל רפליקטיבי ויעילות גמטוגנזה. (A) תאים מייצגים המופרדים לפי גיל, בהטלה מקסימלית (max-intensity projection), לפני גמטוגנזה (פאנל שמאלי) וטטראדים לאחר גמטוגנזה (פאנל ימני), המראים ביוטין באמצעות streptavidin מסומן פלואורסצנטית (צהוב), צלקות ניצנים עשירות בכיטין המראות באמצעות wheat germ agglutinin מסומן פלואורסצנטית (מגנטה), ו-Pma2-GFP (ציאן). (B) כימות של חלק התאים הביוטינליים באוכלוסיות תאי wildtype צעירות (3.63 ± 2.12 %, ממוצע ± סטיית תקן (SD), 3 חזרות, n = 172, 54, ו-68, בהתאמה) ומזדקנות (96.74 ± 1.58 %, ממוצע ± SD, 3 חזרות, n = 63, 66, ו-55, בהתאמה), פסי השגיאה מייצגים SD. (C) כימות של גיל רפליקטיבי על ידי הערכת מספר צלקות הניצבים באוכלוסיות תאי wildtype צעירות (1.16 ± 0.41, ממוצע ± SD, n = 3 חזרות, n = 172, 54, ו-68, בהתאמה) ומזדקנות (8.55 ± 0.66, ממוצע ± SD, 3 חזרות, n = 63, 66, ו-55, בהתאמה). (D) כימות של חלק הטטראדים באוכלוסיות תאי wildtype לאחר גמטוגנזה, צעירות (79.8 ± 9.43%; ממוצע ± SD, 3 חזרות, חזרה 1 ו-3 n = 300, חזרה 2 n = 281) ומזדקנות (78.89 ± 3.17 %, ממוצע ± SD, 3 חזרות n = 300 לכל אחת), פסי השגיאה מייצגים SD. (E) כימות של חלק הטטראדים הביוטינליים באוכלוסיות wildtype צעירות (13.38 ± 4.74%, ממוצע ± SD, n = 3 חזרות, n = 74, 104, ו-76, בהתאמה) ומזדקנות (97.34 ± 2.33%, ממוצע ± SD, 3 חזרות, n = 40, 73, ו-39, בהתאמה) לאחר השלמת הגמטוגנזה, פסי השגיאה מייצגים SD. (F) כימות של גיל רפליקטיבי על ידי הערכת מספר צלקות הניצבים באוכלוסיות טטראדים של wildtype צעירות (1.31 ± 0.04, ממוצע ± SD, 3 חזרות, n = 74, 104, ו-76 בהתאמה) ומזדקנות (8.17 ± 0.54, ממוצע ± SD, 3 חזרות, n = 40, 73, ו-39 בהתאמה). סרגי קנה מידה = 5 µm. מרווחי סמך חושבו באמצעות שיטת Wilson score. תרשימי כינור (Violin plots) מציינים את החציון (קווים רצופים), ואת האחוזונים ה-25th וה-75th (קווים מקווקווים). איור זה מותאם מתוך Spiri et al.9. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
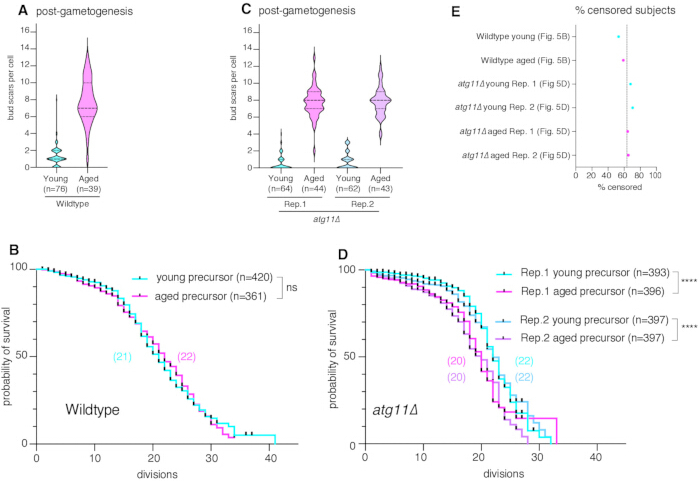
איור 5. כימות של תוחלת חיים רפליקטיבית. (A) כימות של גיל רפליקטיבי על ידי הערכת מספר צלקות הניצנים באוכלוסיות גמטות מסוג wildtype צעירות (1.3 ± 1.2, ממוצע ± SD, n =76) ומזדקנות (7.8 ± 2.6, ממוצע ± SD, n = 39), אותם נתונים כפי שמוצגים באיור 4F עבור Rep. 3. (B) כימות של תוחלת חיים רפליקטיבית של גמטות wildtype צעירות (חציון תוחלת חיים = 21, n = 420, 223 נבדקים שצונסרו) ומזדקנות (חציון תוחלת חיים = 22, n = 361, 213 נבדקים שצונסרו, p = 0.982 בהשוואה לצעירות). ספירות משני שכורים טכניים שורשרו יחד. (C) כימות של גיל רפליקטיבי על ידי הערכת מספר צלקות הניצנים באוכלוסיות טטראד של atg11Δ : Rep. 1 צעירות (0.53 ± 0.91, ממוצע ± SD, n = 64) ומזדקנות (7.8 ± 1.8, ממוצע ± SD, n = 44); Rep. 2 צעירות (0.82 ± 1, ממוצע ± SD, n = 62) ומזדקנות (7.9 ± 1.7, ממוצע ± SD, n = 43). (D) כימות של תוחלת חיים רפליקטיבית של גמטות atg11Δ עבור שני שכורים ביולוגיים בלתי תלויים: Rep.1 צעירות (חציון תוחלת חיים = 22, n = 393, 267 נבדקים שצונסרו) ומזדקנות (חציון תוחלת חיים = 20, n = 396, 255 נבדקים שצונסרו, p = 2 x 10⁻⁶); Rep. 2 צעירות (חציון תוחלת חיים = 22, n = 397, 280 נבדקים שצונסרו) ומזדקנות (חציון תוחלת חיים = 20, n = 397, 259 נבדקים שצונסרו, p = 3 x 10⁻⁶ בהשוואה לצעירות). עבור כל שכור ביולוגי בלתי תלוי, ספירות משני שכורים טכניים שורשרו יחד. (E) אחוז אירועי הצנזור על פני כל ניסויי תוחלת החיים. קו מקווקו מציין ממוצע (63.4% ± 6.2 ממוצע ± SD) של נבדקים שצונסרו מתוך n = 6 ניסויים. מובהקות סטטיסטית של הבדלים בתוחלת החיים הרפליקטיבית הוערכה באמצעות מבחן Log-rank (Mantel-Cox); סימני קו על עקומות ההישרדות מייצגים אירועי צנזור. תרשימי כינור (Violin plots) מציינים חציון (קוים רציפים), אחוזונים 25th ו-75th (קוים מקווקוים). ערכי p מצוינים (ns = p > 0.05, * = p ≤ 0.05, ** = p ≤ 0.01, *** = p ≤ 0.001, **** = p ≤ 0.0001). איור זה מותאם מ-Spiri et al.9. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
איור משלים 1: בחירת אזורי עניין לצורך ניתוח צלקות ניצנים.צילום מסך מייצג מתוכנת ImageJ המראה תאים בודדים שנבחרו באמצעות אזורי עניין (ROIs) מלבניים והתווספו למנהל ה-ROI לצורך ניתוח בהמשך. אזורי העניין שנבחרו מוצגים כתיבות צהובות. אנא לחצו כאן להורדת קובץ זה.
איור משלים 2: הזנה ידנית של מספר צלקות ניצנים.צילום מסך מייצג מ-ImageJ המראה את תיבת הדו-שיח המשמשת להזנה ידנית של מספר צלקות הניצנים שזוהו עבור כל תא נבחר. צלקות הניצנים נספרות על ידי סיבוב של היטל ה-Y ובחינת אות ה-wheat germ agglutinin. אנא לחצו כאן להורדת קובץ זה.
איור משלים 3: סיווג ידני של סימון ביוטין.צילום מסך מייצג מ-ImageJ המראה את תיבת הדו-שיח המשמשת לרישום האם תא נבחר הוא חיובי או שלילי לסימון ביוטין. ערך של 1 מציין תא חיובי לביוטין, וערך של 0 מציין תא שלילי לביוטין. נא לחץ כאן כדי להוריד קובץ זה.
איור משלים 4: בחירה של אזורי עניין במכשיר מיקרופלואידי. צילום מסך מייצג מ-ImageJ המראה מלכודות U מיקרופלואידיות בודדות שנבחרו באמצעות ROIs מלבניים והתווספו ל-ROI Manager. כל ROI כולל מלכודת U אחת לצורך ניתוח המשכי. אנא לחצו כאן להורדת הקובץ.
איור משלים 5: ויזואליזציה של אזורי עניין (ROIs) נבחרים במלכודות U מיקרופלואידיות. צילום מסך מייצג מתוכנת ImageJ המראה מספר אזורי עניין מלבניים המונחים על גבי ההתקן המיקרופלואידי לאחר בחירת מלכודות U בודדות. אזורי העניין מוצגים בו-זמנית באמצעות פונקציית ה-“Show All” במנהל אזורי העניין (ROI Manager). אנא לחצו כאן להורדת הקובץ.
איור משלים 6: זיהוי תאים חיוביים ל-GFP במלכודות U מיקרופלואידיות. צילום מסך מייצג מ-ImageJ המראה את ההנחיה (prompt) ששימשה לקביעה אם תא חיובי ל-GFP נלכד בתוך מלכודת ה-U שנבחרה. תמונת פלואורסצנציה מוצגת לצד תמונת שדה בהיר כדי להקל על הזיהוי. אנא לחץ כאן להורדת קובץ זה.
איור משלים 7: סיווג ידני של תאים חיוביים ל-GFP. צילום מסך מייצג מתוכנת ImageJ המראה את תיבת הדו-שיח המשמשת לרישום מצב ה-GFP עבור תא בתוך U-trap שנבחר. ערך של 1 מציין תא חיובי ל-GFP, בעוד שערך של 0 מציין תא שלילי ל-GFP. אנא לחץ כאן להורדת קובץ זה.
איור משלים 8: הזנה ידנית של תוחלת חיים רפליקטיבית. צילום מסך מייצג מ-ImageJ המציג את תיבת הדו-שיח המשמשת להזנת תוחלת החיים הרפליקטיבית (RLS) של תא בודד לאחר סקירה של ערימת תמונות time-lapse. ה-RLS נקבע כמספר הכולל של חלוקות התאים שנצפו. אנא לחץ כאן להורדת קובץ זה.
איור משלים 9: הזנה ידנית של תוחלת חיים רפליקטיבית. צילום מסך מייצג מ-Fiji/ImageJ המציג את תיבת הדו-שיח המשמשת להזנת תוחלת החיים הרפליקטיבית (RLS) של תא בודד לאחר סקירה של ערימת תמונות time-lapse בשדה בהיר. ה-RLS נרשם כמספר הכולל של חלוקות התאים שנצפו. אנא לחצו כאן להורדת קובץ זה.
איור משלים 10: הערכת סטטוס סופי במהלך ניתוח אורך חיים רפליקטיבי. צילום מסך מייצג מ-Fiji/ImageJ המציג את ההנחיה “Terminal?” המשמשת לקביעה האם התא המנותח הגיע לפנוטיפ סופי או הושלך מהמלכוד לפני עצירה סופית. אנא לחץ כאן להורדת קובץ זה.
איור משלים 11: תיעוד מצב סופי במהלך ניתוח תוחלת חיים רפליקטיבית. צילום מסך מייצג מתוכנת Fiji המראה בחירה של ערך המצב הסופי לאחר קביעה אם נצפה פנוטיפ סופי. אנא לחץ כאן כדי להוריד קובץ זה.
איור משלים 12: בחירת גורל תאי סופי. צילום מסך מייצג מ-Fiji המראה את ההנחיה ששימשה להקצאת הסיבה לצניזור או הגורל הסופי של תא שנבדק. אנא לחצו כאן להורדת קובץ זה.
איור משלים 13: סיווג של מורפולוגיית תאים טרמינליים. צילום מסך מייצג מתוכנת Fiji המראה בחירה של הפנוטיפ הטרמינלי, כולל הסיווג כ"מכווץ" (shriveled up) עבור תא שהפסיק להתחלק והפגין מורפולוגיה מכווצת. אנא לחצו כאן להורדת קובץ זה.
קובץ משלים 1. מאקרו של Fiji לבחירה ידנית של ROI וייצוא ל-TIFF. מאקרו מותאם של Fiji/ImageJ המשמש לבחירה ידנית של תאים בודדים כאתרים של עניין (ROIs), חיתוך של ה-ROIs שנבחרו, וייצוא התמונות החתוכות כקבצי TIFF לצורך ניתוח המשכי. אנא לחצו כאן כדי להוריד קובץ זה.
קובץ משלים 2. מאקרו Fiji להדמיה תלת-ממדית של תא בודד והשלכה על ציר Z. מאקרו Fiji/ImageJ מותאם אישית המשמש ליצירת השלכות תלת-ממדיות ותמונות השלכה על ציר Z של תאים בודדים שנחתכו, לצורך ניתוח של צלקות ניצנים וסימון בביוטין. אנא לחץ כאן כדי להוריד קובץ זה.
קובץ משלים 3. מאקרו Fiji לאנוטציה ידנית של צלקות ניצנים וביוטין.מאקרו Fiji/ImageJ מותאם אישית המשמש לרישום ידני של מספר צלקות הניצבים וסיווג תאים בודדים על פי סטטוס סימון בביוטין. אנא לחץ כאן להורדת קובץ זה.
קובץ משלים 4. חיתוך ידני של ROI וייצוא ל-TIFF – מאקרו Fiji עבור תמונות פתוחות.מאקרו Fiji/ImageJ מותאם אישית המשמש לחיתוך וייצוא של אזורי עניין (ROI) תואמים מתמונות FITC בנקודת זמן t0 וממחסניות היפר-תמונות (hyper-stacks) של צילום רצף בזמן בשדה בהיר, לצורך ניתוח עוקב של אורך החיים השכפולי של הגמטות. אנא לחץ כאן כדי להוריד קובץ זה.
קובץ משלים 5. מאקרו של Fiji לאנוטציה ידנית של GFP, RLS ופנוטיפ סופי. מאקרו מותאם של Fiji/ImageJ המשמש לזיהוי גמטות חיוביות ל-GFP, תיעוד ידני של תוחלת חיים רפליקטיבית (RLS), קביעת סטטוס סופי וסיווג פנוטיפים סופיים או של פליטה במהלך ניתוח תוחלת החיים הרפליקטיבית של הגמטות. אנא לחצו כאן כדי להוריד קובץ זה.
דיון
כאן אנו מספקים פרוטוקול מפורט למדידת תוחלת החיים השכפולית (replicative lifespan) של גמטות שמרים שנגזרו מתאי מקור בגילאים שונים, תוך שימוש בתהליך עבודה מבוסס מיקרופלואידיקה בעלת תפוקה גבוהה שהוצג על ידי Spiri et al9. טכניקה זו מאיצה את חקירת היעילות של התחדשות גמטוגנית ברקעים גנטיים מגוונים, וניתן לנצלה כדי להפיק תובנות מנגנוניות לגבי התהליך השמור של התחדשות גמטוגנית. הגילוי שגמטוגנזה מאפסת את תוחלת החיים השכפולית בשמרים התבצע במקור ברקעי הזנים W303 ו-A364, תוך שימוש במבחני מיקרו-דיסקציה כמדדי קריאה7. לא ניתן היה להעריך את איפוס תוחלת החיים השכפולית בעקבות גמטוגנזה עבור זן SK1, למרות השימוש הנרחב בו לחקר הגמטוגנזה, בשל קשיים בהפרדת תאי הבת הראשונים מהגמטה7. במהלך פיתוח פרוטוקול זה, עקפנו מגבלה זו על ידי הנדסה של רקע זן SK1, הכנסת מוטציית נקודה D368V לתוך לוקוס AMN1 כדי לווסת את הפרדת התאים, ומחיקת FLO8 כדי לבטל פלוקולציה25,26. יתרה מכך, ביטוי של STE5, חלבון פיגום של אותות החיוני להפעלת תגובת ההזדווגות, הוגבל באופן מותנה על ידי יישום של מערכת Tet-OFF הניתנת להשראה על ידי anhydrotetracycline בלוקוס האנדוגני (איור 3A)27,28,29. דבר זה מוביל לליקוי הזדווגות מותנה מלא בין תאי MATa לתאי MATα, ובכך מאפשר הכלאות גנטיות תוך מניעת הפעלת תגובות הזדווגות בין גמטות MATa ו- MATα במהלך הניסויים. לבסוף, כדי לזהות גמטות ולהבדיל ביניהן לבין תאים וגטטיביים לאחר צמיחה קצרה, הוכנס רפורטר טראנסגני הנושא חלבון חלושן (fusion protein) מסוג Pma2-GFP תחת הפרומוטר האנדוגני שלו. Pma2-GFP מבוטא באופן ספציפי בשלב מאוחר של הגמטוגנזה, ממוקם בממברנת הפלזמה של הגמטה, ונשמר למשך מספר סבבים של חלוקת תאים לאחר הנבטה (איור 1D, איור 3B,C, ו-איור 4A)9. המבחן המבוסס על מיקרופלואידיקה המתואר כאן מגדיל משמעותית את התפוקה ואת ההיתכנות של חקירות לגבי תוכנית ההתחדשות הגמטוגנית בהשוואה למבחני מיקרו-דיסקציה רב-יומיים ומאומצים, שהיו השיטה היחידה הזמינה בעבר לכימות התחדשות גמטוגנית. בהתאמה לתוצאות שהתקבלו ב-W303 וב-A364 באמצעות מיקרו-דיסקציה7, אנו מדגימים כי תוחלת החיים השכפולית מאופסת לחלוטין לאחר גמטוגנזה ברקע זן SK1. בנוסף, באמצעות יישום שיטה זו, חשפנו כי אוטופגיה סלקטיבית תלוית-Atg11 חיונית להתחדשות מלאה של גמטות (איור 5B,D) (נתונים נגזרו מ-Spiri et al)9.
התקני מיקרופלואידיקה (איור 2A–D) מוכנים ומורכבים בהתאם לפרוטוקול המתואר (שלב 8). לפני הרכבת ההתקן המיקרופלואידי על המיקרוסקופ, יש לבחון בקפידה את זכוכית הכיסוי כדי לוודא שאין בה סדקים. יש לנקוט זהירות כדי למנוע נזק לזכוכית הכיסוי בעת הטיפול בהתקן המיקרופלואידי. אם מזוהים סדקים, יחידת הדימוי הפגועה לא תשמש כדי למנוע דליפה של מצעים לתוך המיקרוסקופ וחוסר עקביות בלחצים במהלך הניסוי. למרות שניתן באופן תיאורטי להשתמש ביחידות דימוי שאינן פגועות מאותו התקן מיקרופלואידי, מומלץ לעבור להתקן מיקרופלואידי חדש, שכן זכוכית כיסוי פגועה מבנית טומנת בחובה סיכון גבוה להתרחבות הסדקים במהלך הניסוי. לאחר מכן, יש לבחון כל יחידת דימוי תחת המיקרוסקופ כדי לוודא את שלמות מבני ה-PDMS ואת היצמדותם התקינה לזכוכית הכיסוי. כדי להפחית את הסיכון להצטברות תאיים וחסימות במהלך הניסוי, מוסיפים Pluronic F-127 למצע הגידול, ומסננים את המצע לסטריליזציה כדי להסיר שאריות לפני הניסוי. מזרמים מצע דרך יחידות הדימוי המיקרופלואידיות למשך לפחות 2 h לפני טעינת התאים כדי להבטיח שהיחידות מלאות מספיק במצע. אם מצטברת כמות משמעותית של שאריות בחלקו העליון של אזור ה-U-trap ביחידת דימוי ספציפית, ובכך נמנעת טעינת תאים וזרימת מצע, מומלץ להסיר יחידה זו מהניסוי על ידי ניתוקה ממשאבת המצע (איור 2J). לאחר שהמצע התפזר במלואו בכל יחידות הדימוי, נרכשת תמונת בדיקה של ה-ROIs כדי לבקר הבדלים במישור המוקד בתוך יחידת דימוי אחת ובמרחב כל ההתקן המיקרופלואידי. אם להתקן המיקרופלואידי יש נטייה פנימית, כיונונים עדינים של נטיית הבמה יכולים למתן בעיה זו. לחלופין, ניתן לצלם שלושה z-slices לכל מיקום ונקודת זמן במרווח של 3–8 µm בציר z כדי לפצות על הבדלים במישור המוקד לאורך יחידת דימוי אחת.
כדי להפריד טטרדות לגמטות בודדות, מדגרי תרביות ממוינות לפי גיל לאחר הגמטוגנזה מדגרים עם Zymolyase למשך 3 h (איור 1D). אנזים זה מעכל באופן ספציפי את דופן התא של השמרים, מחליש את האסקוס של הטטרדה המגן על הגמטות וממיס תאים שאינם גמטות (איור 1D). גמטות מופרדות מוגנות על ידי דפנות התא שלהן, העמידות יותר לעיכול ובכך מונעות ליזיס. לאחר הפרדת הטטרדות, יש לבחון את הגמטות המופרדות כדי לאשר דיסוציאציה מספקת של הטטרדות ושימור של שלמות הגמטות. אם יותר מ-30% מהתאים נותרים כטטרדות שלמות, מחזורי סוניקציה נוספים יכולים לסייע בפירוקן הלאה (איור 3B). מומלץ להפסיק את הניסוי ולהתחיל מחדש עם מנה רעננה של Zymolyase אם יותר מ-30% מהטטרדות נותרות שלמות, שכן הן עלולות ליצור גושי תאים במהלך הצמיחה, דבר שעלול לגרום לבעיות בזמן הטעינה ובתפעול של המערכת המיקרופלואידית. לאחר ההפרדה, תרביות הגמטות גדלות למשך 3 h ב-30 °C במצע עשיר, זמן ארוך מספיק כדי לאפשר לגמטות להגדיל את גודלן כך שניתן יהיה ללכוד אותן בקלות במכשירים מיקרופלואידיים, אך קצר מספיק כדי שמרבית התאים לא ישלימו את חלוקתם הראשונה (איור 1D). לאחר הצמיחה, התאים נבחנים תחת מיקרוסקופ אור כדי לוודא את הגדלת הנפח ואת הופעת הניצן הראשון. אם גנוטיפ ספציפי דורש זמן רב יותר באופן משמעותי להגדלת הגמטות ותחילת החלוקה, יש להתאים את התזמון בהתאם כדי להבטיח לכידה יעילה של הגמטות.
תאים שגדלו מעבר למיבצם נטענים באופן ידני ליחידות דימוי מיקרופלואידיות על ידי הפעלת לחץ זהירה על המזרק תוך כדי צפייה ביחידה דרך התצוגה החיה של המיקרוסקופ. יש להיזהר שלא להפעיל לחץ מופרז, שכן הדבר עלול לגרום להיפרדות של מבני ה-PDMS מזכוכית הכיסוי, ובכך לפגוע ביחידת הדימוי. הלחץ מופעל באופן רציף עד שמבני ה-PDMS מתחילים להתעוות מעט ותאים מתחילים לזרום לאזור הדימוי. ברגע שתאים מתחילים לזרום למכשיר הדימוי, הלחץ מופחת בזמן שהם עוברים דרך היחידה ומאכלסים מלכודות בודדות. אם נלכדו פחות מ-200 תאים בסבב הראשון, הלחץ מופעל שנית כדי לחזור על מחזור הטעינה. יחידות שנטענו באופן אופטימלי יכילו תאים המאכלסים לפחות 66% מהמלכודות, תוך איזון בין טעינה מספקת לבין טעינת יתר, המגבירה את הסיכון לסתימה במהלך הניסוי. יחידות דימוי עם טעינת יתר מכילות כמויות מופרזות של תאים ופסולת מעל ובתוך אזור ה-U-trap, מה שעלול לחסום את זרימת המצע לאורך יחידת הדימוי. אם נעשה שימוש במשאבות משותפות עבור יחידות דימוי שונות ויחידת דימוי אחת סובלת מטעינת יתר בטעות, היחידה המושפעת מנותקת ממשאבת המצע כדי למנוע מהמשאבה להיעצר עקב סתימה, ובכך למנוע הפרעה לקבוצות ניסוייות נוספות (איור 2J). טעינת כל התנאים מסתיימת בתוך 1 h כדי למנוע חלוקות תאים מוקדמות של גמטות, שיובילו לדילול הגמטות על ידי תאי בת שנוצרו ולהערכה לא מדויקת של אורך החיים השכפולי. כאשר הטעינה עבור כל התנאים מסתיימת וזרימת המצע מחודשת, המכשיר המיקרופלואידי נבדק בקפידה כדי לוודא שאין דליפת מצע מנקי הטעינה שחוברו מחדש. אם נצפית דליפה, יש להסיר בזהירות את פין הפלדה שאינה חלודה ולהחזיר אותו לנקי הטעינה כדי לפתור את הבעיה. לחלופין, אם לא ניתן להפסיק את הדליפה, יחידת הדימוי מנותקת ממשאבת המצע כדי למנוע שפיכת נוזלים לתוך המיקרוסקופ במהלך הניסוי (איור 2J). אם יחידת הדימוי סובלת מטעינת יתר, כפי שמעידים מספר התאים והפסולת סביב המלכודות הראשונות, היא תנותק גם היא ממשאבת המצע כדי למנוע מהמשאבה להיעצר במהלך הניסוי עקב עלייה בלחץ החזרה כתוצאה מזרימת מצע מופחתת (איור 2J).
ההתקנים מיקרופלואידיים המותאמים אישית עם מלכודות U פתוחות ששימשו כאן, ואשר הותאמו לשימוש עם SK1, יכולים ללכוד טווח דינמי רחב של אורך חיים רפליקטיבי עם הגבלה מרחבית נמוכה יותר של התאים בהשוואה לתכנוני מלכודות אחרים, ובכך הם ממזערים את הסיכוי להשפעות על אריכות הימים שדווחו בעבר30. עם זאת, לתכנון הפתוח הזה קיים חיסרון שבו תאים עלולים להידחף החוצה בטרם ניתן יהיה לצפות בהזדקנות (senescence), בעיקר בשל עלייה משמעותית בגודל התא במהלך החלוקות האחרונות של החיים הרפליקטיביים (דבר שנצפה ספציפית ב-SK1 ואינו ניתן למניעה) או בשל סטיות קלות בלחץ במערכת הפלואידיקה לאורך זמן. לכן, יש לנקוט משנה זהירות כדי למנוע חדירת אוויר למערכת המיקרופלואידית במהלך הכנת ההתקן וטעינת התאים. כדי למנוע הטיות בעת הערכת אורך החיים הרפליקטיבי של הגמטות, כל גמטה שנטענה בתחילת צילום ה-time-lapse נספרת עד שנותחו 200 גמטות. תאים שנדחפים החוצה לפני ההזדקנות מסווגים באופן קפדן כנבדקים שסוננרו (censored subjects) לצורכי ניתוח. מצאנו כי שיעורי הסנסורה דומים בין הגנוטיפים (איור 5E, נבדקים שסוננרו = 63.4% ± 6.2, ממוצע ± SD), ללא קשר מערכתי בין תדירות הדחיפה לבין פנוטיפים נצפים של אורך חיים. למרות שדבר זה לא נצפה עד כה, אנו ממליצים לחזור על הניסוי אם שיעורי הדחיפה עולים על 80% מבין התאים שנותחו. לפיכך, למרות שדחיפת תאים מהווה מקור משמעותי לסנסורה השגורה בבדיקה זו, בין היתר משום שאנו סופרים כל גמטה נטענת גם אם היא נדחפת החוצה במהלך החלוקות הראשונות, איננו רואים עדות לכך שדחיפה דיפרנציאלית בין גנוטיפים מסבירה את ההבדלים המדווחים באורך החיים. בגישה זו, ניתן למדוד את אורך החיים הרפליקטיבי באופן עקבי ואמין. כדי להפחית אירועי דחיפה בניסויים עתידיים, פותחים ונבחנים כעת התקנים עם תכנוני מלכודות חדשניים.
אף על פי שהתפוקה של כימות האיפוס הגמטוגני של תוחלת החיים גבוהה משמעותית מזו של השיטה שהייתה קיימת קודם לכן, יש לספור ידנית את חלוקות התאים בכל גמטה על ידי מדען מיומן, ובכך הופך ניתוח הנתונים למגבלה נוכחית של השיטה המוצגת. התקדמויות אחרונות בגישות של למידת מכונה לאוטומציה של ניתוח תוחלת חיים רפליקטיבית בשמרים מציעות אסטרטגיה מבטיחה להתגברות על המגבלה הנזכרת31. מבטיחה במיוחד היא גישה שפורסמה לאחרונה בשם BudFinder, המשתמשת ב-Masked Autoencoder שאומן מראש באופן בפיקוח עצמי על נתוני דימוי של שמרים בקנה מידה גדול, ולאחר מכן משתמשת בו כדי לדייק מודל transformer לזיהוי ישיר של אירועי חלוקת תאים32. גישה זו מפחיתה משמעותית את מספר אירועי החלוקה הדורשים התייחסות ידנית לצורך דיוק המודל בהשוואה לשיטות קודמות. באופן מרגש, כמות הנתונים העצומה שכבר הופקה וסומנה באמצעות הפרוטוקול המתואר כאן מתאימה היטב לגישה דומה שתוכל להפוך לאוטומטי את ניתוח תוחלת החיים הרפליקטיבית של גמטות בעתיד ולהתגבר על המגבלה הנוכחית. יתרה מכך, עבור יישומים עתידיים, ניתן לשלב בקלות פרוטוקול זה עם סמנים ביולוגיים מבוססים ומערכות ביטוי מתוחכמות כדי לזהות מנגנונים מולקולריים וגורמים המתווכים התחדשות תאית במהלך גמטוגנזה ב-S. cerevisiae, ובכך לאפשר תובנות חדשות לגבי תהליך זה השמור אבולוציונית.
גילויים
המחברים מצהירים כי אין ניגודי אינטרסים.
תודות
אנו מודים לחברים הנוכחיים וה前-חברים במעבדות של Brar ו-Ünal על דיונים ביקורתיים והערות על כתב היד. עבודה זו נתמכה על ידי מלגת ניידות של הקרן השוויצרית למדעים לאומיים P500PB_214421 עבור S.S. G.A.B. נתמך על ידי מימון ממכוני הבריאות הלאומיים (R01AG071869), T.L.S. נתמך על ידי מענק Longevity Impetus מקבוצת Norn, קרן Hevolution וקרן Rosenkranz. E.Ü. נתמך על ידי מימון ממכוני הבריאות הלאומיים (R01AG071801) וממכון Astera.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מערכת בקבוק אחסון/סינון בוואקום 1000 mL | Corning | 431098 | ממברנת PES סטרילית, נקבוביות 0.22 µm, 54.5 cm2. יש לאחסן בטמפרטורת החדר. |
| מזרק 20 mL | Becton, Dickinson and Company (BD) | 302830 | מזרק Luer-Lok בנפח 20 mL. יש לאחסן בטמפרטורת החדר. |
| מזרק 5 mL | Becton, Dickinson and Company (BD) | 14-829-45 | מזרק Luer-Lok בנפח 5 mL, יש לאחסן בטמפרטורת החדר. |
| Ampicillin | Alpha Teknova | A9510 | יש לאחסן ב-20 °C- לאחר המסה במים. |
| חרוזי מגנט אנטי-ביוטין | Miltenyi Biotechnology | 130-097-046 | יש לאחסן ב-4 °C. |
| β-mercaptoethanol | MilliPORE SIGMA | M625-250mL | יש לאחסן ב-4 °C. |
| BSA | MilliPORE SIGMA | A4503-100G | יש לאחסן ב-4 °C. |
| מתאם Luer-Stub מסוג Clay Adams Intramedic | Becton, Dickinson and Company (BD) | 427565 | Gauge 23, יש לאחסן בטמפרטורת החדר. |
| קובטות | Bio Rad | 2239955 | קובטות פוליסטירן חד-פעמיות לנפח חצי-מיקרו. יש לאחסן בטמפרטורת החדר. |
| Ethanol | NA | various | |
| EZ-Link Sulfo-NHS-LC-biotin | ThermoFisher Scientific | 21335 | ביוטין לסימון תאי מייסד לצורך בדיקת הזדקנות רפליקטיבית |
| תוכנת Fiji | https://fiji.sc/ | NA | גרסה: Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m) |
| Streptavidin מסומן פלואורסצנטית | ThermoFisher Scientific | S11225 | צמידה ל-Alexa Fluor 546, יש לאחסן ב-20 °C- במנות (aliquots). |
| wheat germ agglutinin מסומן פלואורסצנטית | ThermoFisher Scientific | W11263 | צמידה ל-Alexa Fluor 350, יש לאחסן ב-20 °C- במנות (aliquots). |
| Formaldehyde | ThermoFisher Scientific | F79-1 | 37%, יש לאחסן ב-4 °C. |
| מדיום להשראת גמטוגנזה | NA | הוכן במעבדה לפי מתכון סטנדרטי | 2% potassium acetate, תוספי חומצות אמינו ו-ampicillin (40 mg/L adenine, 40 mg/L uracil, 10 mg/L histidine, 10 mg/L leucine ו-10 mg/L tryptophan, 100 μg/mL ampicillin) |
| Glycine | ThermoFisher Scientific | BP381-1 | 100%, 200 proof. יש לאחסן בטמפרטורת החדר. |
| פין פלדה ריק | iBiochips | HSP-100 | P/N: 0.28” קוטר חיצוני, 0.016” קוטר פנימי, 0.500” אורך, יש לאחסן בטמפרטורת החדר. |
| מיקרוסקופ פלואורסצנטי הפוך | NA | NA | |
| משאבות מזרק Legato 200 | kdScientific | 788200 | יש לאחסן בטמפרטורת החדר. |
| מעמד רב-תאי פלסטי או זכוכית 6/10 ל-Legato 200/210 | kdScientific | 788300 | יש לאחסן בטמפרטורת החדר. |
| מיקרוסקופ אור | NA | NA | |
| מבחנות בעלות הידבקות נמוכה | USA Scientific | 1415-2600 | יש לאחסן בטמפרטורת החדר. |
| עמודי LS | Miltenyi Biotechnology | 130-042-401 | יש לאחסן בטמפרטורת החדר. |
| התקנים מיקרופלואידיים | iBiochips | ADU-10, (AD-Chips of the #18++) | יש לאחסן בטמפרטורת החदर. |
| צינורות בדרגה רפואית ללא DEHP | iBiochips | MTB-100 | ID = 0.202”, OD = 0.060”, wall = 0.20”, יש לאחסן בטמפרטורת החדר. |
| PBS | NA | הוכן במעבדה לפי מתכון סטנדרטי | הכנת 1L של: PBS pH 7; PBS pH8, PBS pH 8 + 100 mM glycine, PBS pH 7.4 + 0.5% BSA |
| Pluronic F-127 | MilliPORE SIGMA | P2443 | יש לאחסן בטמפרטורת החדר. |
| מסנן טרום-הפרדה | Miltenyi Biotechnology | 130-041-407 | גודל נקבוביות 30 µm |
| ערכות התחלה ומפריד QuadroMACS | Miltenyi Biotechnology | 130-091-051 | יש לאחסן בטמפרטורת החדר. |
| פין פלדה מוצק | iBiochips | SSP-200 | OD, 0.027”, ID, 0.500”, יש לאחסן בטמפרטורת החדר. |
| סוניקטור | Branson | 100-132-1623R & 101-135-066R | |
| ספקטרופוטומטר | NA | NA | |
| מסובב מבחנות | NA | NA | |
| Y+A8+2:29+2:31+A8+2+2:33 | Brar-Ünal yeast strain database | pÜB42275 | trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| זן שמרים 2 | Brar-Ünal yeast strain database | pÜB48561 | atg11Δ::KanMX, trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| YPD (YEP + 2% glucose, מועשר ב-Trp ו-Ura) | NA | הוכן במעבדה לפי מתכון סטנדרטי | YPD (1% yeast extract, 2% peptone, 2% glucose, 22.4 mg/L uracil, ו-80 mg/L tryptophan). |
| Zymolyase 100T | MP Biomedicals | 8320932 | יש לאחסן ב-20 °C- במנות (aliquots) לאחר המסה במים. |
מקורות
- Denoth Lippuner A, Julou T, Barral Y. Budding yeast as a model organism to study the effects of age. FEMS Microbiol Rev. 2014;38(2):300-25.
- Higuchi-Sanabria R et al. Role of asymmetric cell division in lifespan control in Saccharomyces cerevisiae. FEMS Yeast Res. 2014;14(8):1133-46.
- Hughes AL, Gottschling DE. An early age increase in vacuolar pH limits mitochondrial function and lifespan in yeast. Nature. 2012;492(7428):261-5.
- Nyström T, Liu B. Protein quality control in time and space—links to cellular aging. FEMS Yeast Res. 2014;14(1):40-8.
- Neiman AM. Sporulation in the budding yeast Saccharomyces cerevisiae. Genetics. 2011;189(3):737-65.
- Sing TL, Brar GA, Ünal E. Gametogenesis: exploring an endogenous rejuvenation program to understand cellular aging and quality control. Annu Rev Genet. 2022;56(1):89-112.
- Ünal E, Kinde B, Amon A. Gametogenesis eliminates age-induced cellular damage and resets life span in yeast. Science. 2011;332(6037):1554-7.
- Ünal E, Amon A. Gamete formation resets the aging clock in yeast. Cold Spring Harb Symp Quant Biol. 2011;76:73-80.
- Spiri S et al. A role for selective ER autophagy in gametogenic rejuvenation revealed by high-throughput lifespan profiling. Nat Commun. 2026. doi:10.1038/s41467-026-77993-0.
- Koch BA, Staley E, Jin H, Yu HG. The ESCRT-III complex is required for nuclear pore complex sequestration and regulates gamete replicative lifespan in budding yeast meiosis. Nucleus. 2020;11(1):219-36.
- Lee MB et al. Defining the impact of mutation accumulation on replicative lifespan in yeast using cancer-associated mutator phenotypes. Proc Natl Acad Sci U S A. 2019;116(8):3062-71.
- Mortimer RK, Johnston JR. Life span of individual yeast cells. Nature. 1959;183(4677):1751-2.
- Chen KL, Crane MM, Kaeberlein M. Microfluidic technologies for yeast replicative lifespan studies. Mech Ageing Dev. 2017;161(Pt B):262-9.
- Jin M et al. Divergent aging of isogenic yeast cells revealed through single-cell phenotypic dynamics. Cell Syst. 2019;8(3):242-53.e3.
- Jo MC et al. High-throughput analysis of yeast replicative aging using a microfluidic system. Proc Natl Acad Sci U S A. 2015;112(30):9364-9.
- Li Y et al. A programmable fate decision landscape underlies single-cell aging in yeast. Science. 2020;369(6501):325-9.
- Li Y et al. Multigenerational silencing dynamics control cell aging. Proc Natl Acad Sci U S A. 2017;114(42):11253-8.
- Liu P, Young TZ, Acar M. Yeast Replicator: a high-throughput multiplexed microfluidics platform for automated measurements of single-cell aging. Cell Rep. 2015;13(3):634-44.
- Thayer NH et al. The Yeast Lifespan Machine: a microfluidic platform for automated replicative lifespan measurements. bioRxiv. 2022;2022.02.14.480146.
- Schindelin J et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Spiri S. Fiji macros for microscopy analysis of gametogenic rejuvenation [Internet]. Zenodo; 2026. Available from: [https://doi.org/10.5281/zenodo.22004193](https://doi.org/10.5281/zenodo.22004193)
- Cabib E, Bowers B. Chitin and yeast budding: localization of chitin in yeast bud scars. J Biol Chem. 1971;246(1):152-9.
- Mizushima N, Levine B, Cuervo AM, Klionsky DJ. Autophagy fights disease through cellular self-digestion. Nature. 2008;451(7182):1069-75.
- Rubinsztein DC, Mariño G, Kroemer G. Autophagy and aging. Cell. 2011;146(5):682-95.
- Kobayashi O, Suda H, Ohtani T, Sone H. Molecular cloning and analysis of the dominant flocculation gene FLO8 from Saccharomyces cerevisiae. Mol Gen Genet. 1996;251(6):707-15.
- Fang O et al. Amn1 governs post-mitotic cell separation in Saccharomyces cerevisiae. PLoS Genet. 2018;14(10):e1007691.
- Azizoglu A, Brent R, Rudolf F. A precisely adjustable, variation-suppressed eukaryotic transcriptional controller to enable genetic discovery. eLife. 2021;10:e69549.
- Choi KY, Satterberg B, Lyons DM, Elion EA. Ste5 tethers multiple protein kinases in the MAP kinase cascade required for mating in S. cerevisiae. Cell. 1994;78(3):499-512.
- Bellí G et al. An activator/repressor dual system allows tight tetracycline-regulated gene expression in budding yeast. Nucleic Acids Res. 1998;26(4):942-7.
- Gao Z et al. Comparative analysis of yeast replicative lifespan in different trapping structures using an integrated microfluidic system. Adv Mater Technol. 2020;5(12):2000655.
- Aspert T, Hentsch D, Charvin G. DetecDiv, a generalist deep-learning platform for automated cell division tracking and survival analysis. eLife. 2022;11:e79519.
- Nguyen P et al. BudFinder: a masked auto-encoder vision transformer framework for yeast budding detection and lifespan quantification. PLoS Comput Biol. 2026;22(5):e1013700.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב