פרוטוקול זה מאפשר בידוד מהימן של קרדיומיוציטים חיוניים מהחדר של דג הקילפי השנתי בעל חייו הקצרים, Nothobranchius furzeri, מקבוצות גיל שונות, ומניב תאים המתאימים למחקרי patch-clamp של תא שלם לבדיקת עיצוב מחדש של הלב הקשור לגיל.
מאמר שיטה
בידוד של קרדיומיוציטים ונטריקולריים מדג קילפש השנתי Nothobranchius furzeri לצורך הקלטות patch clamp של תא שלם
במאמר זה
סיכום
תקציר
קרדיומיוציטים עובדים מבודדים נותרים הגישה הסטנדרטית לחקר אלקטרופיזיולוגיה של הלב. תכשירים של תאים בודדים מאפשרים חקירה ישירה ומדידה מדויקת של זרמים יוניים ופוטנציאלי פעולה, ללא המורכבות המבנית של רקמת לב שלמה. Nothobranchius furzeri (דג הקיליפיש הטורקיז האפריקאי) הפך במהירות לאורגניזם מודל בולט למחקר גרונטולוגי, וזאת בשל תוחלת החיים הקצרה באופן חריג שלו והדמיון במנגנוני ההזדקנות עם יונקים, כולל בני אדם. מין זה משלב יתרונות מעשיים, כגון גודל קטן, גידול זול ומחזור חיים מהיר, עם רלוונטיות טרנסלציונלית. *N. furzeri* מגלה ירידה תלוית-גיל בפעילות המוטורית, בקוגניציה ובתפקוד האיברים, הצטברות של סימני היכר מולקולריים של הזדקנות, ורגישות לטיפולים פרמקולוגיים המווסתים את תוחלת החיים ואת משך החיים הבריאים (healthspan). עם זאת, חקירת הדעיכה התפקודית של הלב המזדקן דורשת שיטה מהימנה להשגת תאים חיוניים ובאיכות גבוהה, המתאימים לטכניקות תאיות בודדות (single-cell) תובעניות. מחקר זה ביצע אופטימיזציה לפרוטוקול שתואר בעבר לבידוד של Danio rerio קרדיומיוציטים כדי להבטיח התאוששות עקבית של מיוציטים תקינים ופעילים הן מצעירים והן מזקנים *N. furzeri*פרוטוקול זה מתאר את בידודם של קרדיומיוציטים ונטריקולריים מ- *N. furzeri* אופטימליים במיוחד עבור טכניקת ה-patch clamp של תא שלם (whole-cell). המאמר מדגים כיצד להוציא את הלב ביעילות, לבצע דיסוציאציה אנזימטית של השריר הלבבי באמצעות פרפוזיה רטרוגרדית, ולאחסן את התאי השריר הלבביים (cardiomyocytes) המבודדים. אנו דנים בבחירת האנזימים הדרושים לעיכול המטריצה החוץ-תאית והצומת הבין-תאיים מבלי לפגוע במבנה תעלות היונים. תאי שריר לבביים שבודדו לאחרונה מתאימים לבדיקות אלקטרופיזיולוגיות ברזולוציה גבוהה, כולל הקלטות של פוטנציאל פעולה ומדידות של זרמי יונים פנימיים וחיצוניים עיקריים בקבוצות גיל שונות. המאמר דן גם במאפיינים של בידוד תאי שריר לבביים בדגים השונים מנהלי בידוד סטנדרטיים של יונקים.
מבוא
ירידה תפקודית של הלב התלויה בגיל מונעת על ידי עיצוב מחדש (remodeling) מבני, מולקולרי ואלקטרופיזיולוגי, אשר יחד פוגעים ברזרבה הלבבית ומעלים את הרגישות לאריתמוגנזה1. כדי להבין את המכניזמים המניעים את ההזדקנות הלבבית ברמה התאית, טכניקת ה-whole-cell patch clamp משמשת ככלי ניסויי הכרחי. היא מאפשרת הערכה כמותית וישירה של זרמים יוניים חוצי-קרומיים בודדים והקינטיקה שלהם, כמו גם של פוטנציאלי פעולה (AP), ובכך מספקת תובנה לגבי השינויים הספציפיים בזרמים היוניים העומדים בבסיס התפקוד הלקוי של השריר הלבבי הקשור לגיל. חקירת המכניזמים הללו דורשת מודלים אמינים של חולייתים להזדקנות לבבית. בשנים האחרונות, דג הקיליפיש התכלת האפריקאי (Nothobranchius furzeri) הופיע כמודל מבטיח לחקר הזדקנות הלב בשל תוחלת חייו הקצרה באופן טבעי2,3. מחקרים מולקולריים והיסטולוגיים ראשוניים חשפו דמיון בתהליכי ההזדקנות בין Nothobranchius ליונקים. מחקרים שבוצעו על ידי קבוצות אחרות קבעו כי N. furzeri בעל מאפיינים חיוניים של הזדקנות לבבית אצל יונקים, כולל שחיקת טלומרים, תוכן mtDNA מופחת וביטוי מופחת של אנזימי נוגדי חמצון, שינויים מבניים ואלקטרופיזיולוגיים בשריר הלב, והצטברות של סממני הזדקנות כגון ליפופוסין ופעילות מוגברת של β-galactosidase4,5,6.
עם זאת, למרות הבולטות הגוברת של N. furzeri במחקר קרדיווסקולרי, אפיון אלקטרופיזיולוגי מפורט ברמת התא הבודד מוגבל בשל אתגרים טכניים מתמשכים. השגת הקלטות patch clamp באיכות גבוהה תלויה אך ורק בבידוד של קרדיומיוציטים תקינים השומרים על שלמות מבנית, תעלות יונים שלמות ומורפולוגיה שאינה היפרא-מכווצת. בעוד שפרוטוקולים של דיסוציאציה אנזימטית עבור קרדיומיוציטים של יונקים מבוססים היטב, בידוד של מיוציטים לבביים חיוניים מלבבות של דגים נותר קשה בשל ארכיטקטורת רקמה שאינה של יונקים, תפוקה תאית נמוכה יחסית וגודל לב קטן7,8. המגבלות העיקריות של הליך זה הן הקושי הטכני בביצוע קניולציה נכונה של הלב והרגישות של הדגימה לשינויים קטנים בטיפול האנזימטי. כל הפרעה בזרימת הפרפוזיה מובילה להרעה ניכרת הן באיכות התאים והן בתפוקה. יתרה מכך, אפילו סטיות קלות בריכוז האנזימים או בזמן העיכול עלולות להשפיע באופן משמעותי על חיוניות התאים ועל איכות ההקלטות האלקטרופיזיולוגיות העוקבות. יש להתחשב גם בגיל בעל החיים. למרות שלבבות מדגים מבוגרים יותר דורשים ריכוזי אנזימים מעט גבוהים יותר וזמני עיכול ממושכים יותר בשל תכולת סיבי קולגן ופיברובלסטים מוגברת2, העקרונות הכלליים של הבידוד נותרים קבועים, כאשר ריכוזי האנזימים וזמני החשיפה משתנים בטווח של 10% כדי להשיג תוצאות אופטימליות.
כתוצאה מכך, פרוטוקול בידוד אנזימטי מפורט בעל הדירות גבוהה הוא תנאי מוקדם לקידום מחקר אלקטרופיזיולוגי על הזדקנות לבבית במודלים של דגים. למרות דמיון מורפולוגי מסוים בממדים ליניאריים, בידוד קרדיומיוציטים מ-N. furzeri דורש מספר שינויים משמעותיים בהשוואה לפרוטוקול עבור Danio rerio. ההליך הקלאסי לבידוד תאים מלב של דג הזברה כולל טבילה של הלב השלם בתמיסה אנזימטית למשך תקופה ממושכת יחסית7,8,9. למרות שגישה זו מניבה תאים חיוניים, היא עלולה להיות אגרסיבית מדי עבור לב ה-Nothobranchius ולהוביל לעיכול אנזימטי מופרז. שיטה זו מבטיחה זרימה יציבה של תמיסות ישירות לתוך חללי הלב, ובכך מספקת שטיפה יעילה יותר של דם מהלב ומאפשרת טיפול אנזימטי מדויק ועדין יותר. מאמר זה מציג מתודולוגיה מעודנת לבידוד מיוציטים לבביים חיוניים המתאימים ל-patch clamp מ-N. furzeri, תוך התייחסות להתאמות המרכזיות הנדרשות כדי להבטיח הקלטות אלקטרופיזיולוגיות באיכות גבוהה.
פרוטוקול
המחקר בוצע ב- N. furzeri מזן GRZ. דגים צעירים בוגרים מינית משני המינים בגיל 1.5–2 חודשים (N = 19, מסת גוף = 0.71 g ± 0.36 g) שימשו להקלטת פוטנציאלי פעולה וזרמים יוניים בתאי שריר לב (cardiomyocytes) ונטריקולריים מבודדים. הדגים גודלו וסופקו על ידי מכון A.N. Severtsov לאקולוגיה ואבולוציה של האקדמיה הרוסית למדעים. בעלי החיים נשמרו באקווריומים בטמפרטורה של 24 °C ± 1 °C תחת מחזור אור/חושך של 12 שעות במיכלים עם 60–100 L מים. צפיפות בעלי החיים הייתה 10–20 בעלי חיים למיכל, בהתאם להמלצות שפורסמו בעבר10.
עיקרון בידוד תאי שריר לב (cardiomyocytes) מ- *N. furzeri* מבוססת על שיטת בידוד הדגים הקלאסית שתוארה בעבר והותאמה לדגים קטנים11,12כל הניסויים בוצעו בהתאם למדריך לטיפול ולהשתמש בבעלי חיים במעבדה (המכונים הלאומיים לבריאות של ארה"ב, US National Institutes of Health) והנחיית האיחוד האירופי 2010/63/EU. הפרוטוקול הניסויי אושר על ידי ועדת הביואתיקה של אוניברסיטת לומונוסוב הממלכתית של מוסקבה (בקשה №202-a, אושר במהלך ישיבת ועדת הביואתיקה №169-d שנערכה ב-27.02.2025). הרכיבים והציוד שנעשה בהם שימוש מפורטים ב- טבלת חומרים.
1. הכנת התמיסות
- הכינו תמיסת בידוד נטולת Ca2+ המכילה (ב-mmol L-1): 100 NaCl, 10 KCl, 1.2 KH2PO4, 4 MgSO4, 50 taurine, 20 glucose, ו-10 HEPES. התאימו את ה-pH ל-6.9 באמצעות NaOH בטמפרטורת החדר (24 °C). בצעו את הבידוד באמצעות תמיסת מלח בטמפרטורת החדר. חמצון של התמיסה אינו נדרש לצורך הבידוד.
הערה: ניתן לשמור את תמיסת הבידוד ב-4 °C למשך 3–4 ימים בבקבוק זכוכית. - הכינו 3 mL של תמיסה אנזימטית המבוססת על התמיסה נטולת ה-Ca2+, המכילה 0.8 mg mL-1 collagenase type 1A, 0.5 mg mL-1 trypsin, ו-0.8 mg mL-1 bovine serum albumin (BSA). הוסיפו את האנזימים מיד לפני תהליך הבידוד כדי לשמור על הפעילות האנזימטית.
הערה: ייתכן שיהיה צורך בהתאמה של ריכוזי האנזימים, מכיוון שהפעילות האנזימטית משתנה בין מנות שונות. - קררו מראש 50–100 mL של מי ברז במקרר ל-+4 °C. המים הקרים נדרשים לצורך אלחוש של הדגים.
2. הכנת מערכת הבידוד
- קבעו שתי גלילי מזרק של 10 mL למעמד בגובה של כ-35 cm.
- חברו צינורות סיליקון (d = 8 mm) לגלילים וחברו את קצותיהם החופשיים באמצעות ברז עירוי תלת-כיווני (3-way infusion stopcock).
- מלאו צינור אחד בתמיסת בידוד נטולת Ca2+ ואת השני בתמיסה אנזימטית. ודאו שלא נותרו בועות אוויר בצינורות, שכן הן מעכבות את הזרימה ומפחיתות את איכות הבידוד. סגרו את הזרימה.
- מלאו מחט חלוקה 32 G בתמיסה נטולת Ca2+ באמצעות מזרק אינסולין של 1 mL כדי למנוע בועות אוויר בקצה המחט.
- חברו את המחט המלאה לקצה החופשי של הברז התלת-כיווני.
- בעזרת דבק קיבוע (mounting putty), קבעו את המחט לצלחת פטרי של 100 mm במקביל למישור התחתון.
- הניחו את צלחת הפטרי המחוברת למערכת הפרפוזיה תחת מיקרוסקופ סטריאו וקבעו אותה באמצעות תפסני הבמה ודבק קיבוע (איור 1A).
3. ניתוח ובידוד הלב
- הכינו את כלי הניתוח: שני זוגות של מספריים ופינצטות למיקרו-כירורגיה אופתלמולוגית, ומגש ניתוח עם ארבעה מחטים רפואיות.
- הוציאו את מי הברז שקוללו מראש מהמקרר והטבילו בהם במהירות את הדג. המתינו עד שתנועת מכסי הזימים תיפסק.
זהירות: ודאו את הפסקת תנועת האופרקולום כדי להבטיח אלגזיה מספקת לפני ההמשך. - הוציאו את הדג מהמים, הניחו אותו על מגש הניתוח כשהצד הגבי פונה כלפי מעלה, ונתקו את חוט השדרה באמצעות מספריים אופתלמוגיים.
- הפכו את הדג על גבו וקבעו אותו למגש באמצעות מחטים. הצמידו את הראש, הזנב והאופרקולומים, תוך קיבוע האופרקולומים לאחור במצב פתוח לחלוטין כדי לפנות מקום נוסף.
- בצעו חתך רוחבי של הפריטונאום. הרחיבו את החתך לאורכו עד לציר הגוף הראשי, תוך הרמה עדינה של העור מהאיברים הפנימיים באמצעות פינצטה. המשיכו עד לשולי הלסת התחתונה וקבעו את קצוות העור לשמאל ולימין (איור 1B).
- אתרו את החדר ואת ה-bulbus arteriosus. תפסו את ה-bulbus arteriosus עם פינצטה רחוק ככל האפשר מהחדר והרימו אותו בעדינות אל מחוץ לגוף. מבלי לשחרר את הפינצטה, חתכו קודאלית לחדר כדי לשמור עליו שלם.
- העבירו את הלב המבודד לצלחמת פטרי תחת מיקרוסקופ סטריאו. קבעו את קצה הקנולה בחדר על ידי הכנסתה תחילה ל-bulbus arteriosus, ולאחר מכן העברתה בזהירות דרך המסתם האאורטלי מבלי לפגוע ברקמה הסובבת. קנולציה מוצלחת הושגה ב-> 90% מהלבבות.
- קבעו את ה-bulbus arteriosus לקנולה באמצעות ליגטורה (איור 1C).
הערה: שערה אנושית (d = 50–70 µm) משמשת היטב כליגטורה, שכן חוט תפר סטנדרטי עבה מדי עבור לב קטן זה.
4. בידוד קרדיומיוציטים
- פתח את הברז התלת-דרכי (stopcock) כדי לאפשר זרימה מהמיכל המכיל תמיסה נטולת Ca2+. כאשר הפעולה מבוצעת כהלכה, החדר פסיבית נמלא בתמיסה ומתרחב. קצב הזרימה נקבע ל-43 µL min-1.
- גזור שאריות של העלייה (atrium) והסינוס הוורידי (sinus venosus) בעזרת מספרי מיקרו-כירורגיה מבלי לפגוע בדפנות החדר.
- בצע פרפוזיה ללב למשך 10–12 min תוך ניטור של זרימה אחידה. לחץ בעדינות על צינור הסיליקון כדי להעביר פולס זמני של תמיסה שיגדיל את הטרבקוּלה של החדר וישטוף דם שנותר. שטיפה מוצלחת תאושר על ידי פסיקה של פעילות הלב והפסקת זרימת אריתרוציטים תחת מיקרוסקופ סטריאו.
- העבר את הברז כך שהתמיסה האנזימטית תופנה אל החדר. בצע פרפוזיה למשך 4–6 min. אשר את הטיפול האנזימטי באופן ויזואלי על ידי פגיעה בשלמות דופן החדר ונשירה של פרגמנטים מיוקרדיאליים קטנים.
זהירות: הימנע מדגימה או העברה של ה-perfusate למיקרוסקופ הפוך לצורך בדיקה, שכן הדבר עלול להוביל לאובדן או נזק מכני לחומר התאי ולהפסיק את הניטור הרציף של איכות הפרפוזיה. עדיף להסתמך על סימני הבידוד המוצלח שתוארו לעיל, הנראים בבירור תחת מיקרוסקופ בינוקולרי. - הוסף מנה קטנה (300–400 µL) של תמיסה נטולת Ca2+ לצלחת תרבית רקמות של 35 mm. חתוך את החדר מה-bulbus arteriosus והעברה אל הצלחת.
- קצץ את החדר בעזרת מספריים עדינים, ולאחר מכן בצע טריטורציה עדינה לרקמה על ידי פיפטינג חוזר עם מיקרו-פיפט של 100 µL המצויד בטיפ קצוץ.
- העבר את תרחיף התאים למבחנה של 1500 µL. בדוק מנה תחת מיקרוסקופ הפוך בהגדלה נמוכה (10×). העरक ויזואלית את צפיפות התאים המיוקרדיאליים המשורטטים בעלי צורת מוט בשדה הראייה. אם השדה צפוף, עם תאים רבים דמויי מוט החופפים זה לזה (>50 לשדה של 10×), הוסף תמיסה נטולת Ca2⁺ כדי להפחית את צפיפות התאים ולמנוע דחיסות יתר בתא ההקלטה. אפשר לתאים לשקוע ב-4 °C למשך 40–50 min לפני ההקלטה.
הערה: ניתן לשמור את התאים ב-4 °C במהלך תקופת השקיעה; השתמש בהם להקלטות בתוך 8 h מהבידוד.
5. הקלטות פאץ'-קלאמפ של תא שלם (Whole-cell patch clamp)
- הכינו את התמיסות החוץ-תאיות והתוך-תאיות עבור זרמי היונים השונים והקלטות פוטנציאל הפעולה המפורטים בטבלה 1.
- משכו פיפטות patch מקפילריים של זכוכית בורוסיליקט דקירי דופן (ללא פילמנט) באמצעות שובך אנכי ומלאו אותן בתמיסה תוך-תאיות. התנגדות הפיפטה המלאה צריכה להיות 2.0–3.0 MΩ עבור כל תצורות ההקלטה.
- מלאו את מאגר הפרפוזיה בתמיסות האמבט החוץ-תאיות ובצעו priming לקווים כדי להסיר את כל בועות האוויר לפני הנחת התאים בתא ההקלטה.
- הוסיפו נפח קטן (30–40 µL) של תרחיף קרדיומיוציטים מבודדים לתא ההקלטה בעל התחתית הזכוכיתית והמתינו 5–10 דקות לשקיעת התאים.
- חברו את הפיפטה לראש המגבר (head-stage). תחת הנחיה מיקרוסקופית, הורידו את הפיפטה לעבר הקרדיומיוציט המטרה באמצעות המיקרו-מניפולטור עד שהקצה נוגע בממברנה, דבר הנראה כשקע קטן ובעלייה בהתנגדות הפיפטה.
- הפעילו יניקה שלילית עדינה כדי ליצור אטם (seal) בהתנגדות גבוהה של GΩ, שנוצר בדרך כלל תוך מספר שניות.
- הגדירו את פוטנציאל השמירה ל-80- mV. קרעו את הממברנה באמצעות סדרה של פולסי יניקה קצרים. לאחר ביסוס תצורת whole-cell, מזערו את הטרנזיינטים הקיבוליים ועזרו בפיצוי על קיבול התא ועל התנגדות הטור (access resistance) באמצעות מעגלי הפיצוי של המגבר.
- פצו על זרמים קיבוליים אלה באמצעות בקרים של Cell capacitance ו-Series resistance במגבר. כווננו את בקר ה-Cell capacitance כדי למזער את הטרנזיינט הקיבולי העיקרי, ולאחר מכן כווננו את בקר ה-Series resistance כדי להפחית את ה-overshoot שנותר עד שיתבטל במידה רבה וזרם הבסיס יהיה שטוח.
- קבלו רק תאים עם התנגדות גישה מוערכת לאחר פיצוי של ≤10–12 MΩ לצורך הקלטה של פוטנציאלי פעולה וזרמי יונים. המשיכו להקליט פוטנציאלי פעולה או זרמי יונים, תוך הוספת החוסמים הספציפיים המפורטים בטבלה 2 לפני ההקלטה במידת הצורך.
- הקליטו באמצעות תוכנת רכישת patch clamp המאפשרת הגדרה של פרוטוקולי גירוי מותאמים אישית עבור כל זרם מטרה. פרוטוקולי ה-voltage-clamp שנעשה בהם שימוש במחקר זה מוצגים באיור 2.
תוצאות
פרוטוקול זה מאפשר בידוד של תאי שריר לבב (cardiomyocytes) פרוventricular בודדים בעלי צורה של מוט מ- *N. furzeri* המתאימים להקלטות patch clamp של תא שלם (whole-cell) ברזולוציה גבוהה. הצלחת הבידוד נבחנת ראשית על סמך מורפולוגיית התא ואיכות האטם (seal), ולאחר מכן מאומתת באופן תפקודי על ידי היכולת להקליט פוטנציאלי פעולה יציבים וכל אחד מהזרמים היוניים העיקריים עם התלות במתח והאמפליטודה הצפויים. ההקלטות המייצגות להלן התקבלו מ- *N. furzeri* והגדירו את ערכי הייחוס המעידים על תא בריא המקובע היטב. סטיות מנקודות ייחוס אלו מעידות בדרך כלל על בידוד תת-אופטימלי, והן מתוארות לצד כל קריטריון.
מורפולוגיה של תאים ויצירת אטימה
קרדיומיוציטים ונטריקולריים חיוניים של N. furzeri נראים מוארכים ובצורת מוט, עם סרקולמה חלקה ושלמה מבחינה מורפולוגית (איור 3). בחלק מהתאים ניתן היה להבחין בפסיים רוחביים עמומים תחת מיקרוסקופ אור, אם כי הם לא נראו באופן עקבי בכל תא; לפיכך, הממברנה החלקה והשלמה והמורפולוגיה המוארכת ובצורת מוט שימשו כקריטריונים העיקריים לבחירת תאים להקלטה. תאים אלו יוצרים בקלות אטם בעל התנגדות גבוהה (>1 GΩ) ועומדים בפני קרע בממברנה. לעומת זאת, תאים עגולים, מכווצים, גרנולריים או נפוחים הם סימנים לעיכול יתר או לנזק מכני: הם נאטמים בצורה גרועה, דועכים במהירות ויש להשליכם. תא בריא שומר על פוטנציאל ממברנה במצב מנוחה יציב ומראה דליפה מינימלית בפוטנציאל החזקה של -80 mV.
מאפייני הקלטת Patch clamp
הקלטות patch-clamp של תא שלם בוצעו בטמפרטורה של 22–24 °C באמצעות מגבר patch-clamp. האותות נדגמו בתדר של 10 kHz ועברו סינון מעביר-נמוך (low-pass) ב-1–2 kHz. הגבר המוצא (α) נקבע על ×0.5 כדי למטב את רזולוציית האות בממיר הדיגיטלי. התנגדות טורית פוצתה ב-70%–80%; השהיה של 10 µs. ההקלטות נפסלו אם התנגדות הגישה המוערכת עלתה על 10–12 MΩ או השתנתה ביותר מ-~10% במהלך ההקלטה. עבור הקלטות של פוטנציאל פעולה וזרמים יוניים, לא בוצע חיסור זרם דליפה ליניארי.
תאים הוצאו מהניתוח אם עמדו באחד מהקריטריונים הבאים: פוטנציאל ממברנה במצב מנוחה פחות שלילי מ-−70 mV במצב current‑clamp; אי-יכולת ליצור gigaseal יציב (>1 GΩ); התנגדות גישה (access resistance) של >10–12 MΩ לאחר פיצוי; דעיכה מהירה (run‑down) של זרמים יוניים במהלך ההקלטה; נזק מורפולוגי (מראה מעוגל, גרגירי או בהתכווצות יתר).
פוטנציאלי פעולה (ביקורת חיובית לחיוניות)
פוטנציאלי פעולה שנרשמו במצב current-clamp מספקים את ההערכה הישירה ביותר לחיוניות החשמלית של קרדיומיוציט מבודד. עוררו פוטנציאלי פעולה (APs) באמצעות פולסי זרם דפולריזציה של 1 ms (בטווח של 0.4–1 nA, כ-30% מעל סף העירור). הגדירו את תדירות הגירוי ל-0.3 Hz. רשמו את ה-APs לאחר כ-5 דקות, ברגע שצורת הגל מגיעה למצב יציב וקבוע. בקרדיומיוציט מבודד היטב מ-N. furzeri צעיר, פוטנציאל הממברנה במצב מנוחה (RMP) הוא יציב וקרוב ל-85- mV (איור 4B). ה-AP חורג (overshoot) עד לכ-30+ mV, מה שיוצר עלייה (upstroke) ברורה מסוג "הכל או כלום" (איור 4A). מאפייני AP מייצגים כוללים APD90 של כ-530 ms, APD50 של כ-460 ms, ומהירות עלייה מקסימלית (dV/dtmax) של כ-50 V s-1. RMP דפולריזציוני (פחות שלילי מכ-70- mV), חריגה מופחתת או חסרה, מהירות עלייה מואטת, או חוסר יכולת לשמר ירי פעולה חוזר עם אמפליטודה ומשך יציבים ברוב המקרים, מעידים על תא פגום או כזה שלא נקלמפ בצורה טובה, אשר אינו ניתן לשימוש להערכת מאפייני AP.
זרם נתרן מהיר (INa)
זרם הנתרן המהיר עומד בבסיס עליית פוטנציאל הפעולה (AP upstroke) ומהווה סמן רגיש לשלמות הממברנה ולאיכות הקיבוע (clamp). באמצעות התמיסות המבוססות על Cs+ בטבלה 1, INa נרשם כזרם פנימה גדול, המופעל ומנוטרל במהירות (איור 5A). במיוציטים צעירים ובריאים, INa הופך ניתן לגילוי סביב -60 mV, מגיע לצפיפות שיא של כ-13- pA pF−1 בערך ב-30- mV, ונעكس סביב +20 mV (איור 5B). קבוע הזמן של הניטרול (inactivation time constant) פוחת מ-~8 ms ב-50- mV ל-~2 ms ב-10- mV, ומתח חצי-הניטרול נמצא סביב 70- mV13 (איור 5C,D). אמפליטודת זרם שיא מופחתת באופן משמעותי, פוטנציאל היפוך מוסט או לא מוגדר, או קינטיקה של הפעלה/ניטרול מואטת ומעוותת, מעידים על בקרת מתח לא נאותה (שגיאת התנגדות טורית) או על פגיעה בשלמות הממברנה, ולא על תהליך הבידוד עצמו.
זרמי סידן (ICaL ו-ICaT)
בהקלטות שבוצעו עם תמיסות לזרם סידן (Table 1), קרדיומיוציטים של N. furzeri מראים זרם סידן פנימה נטו בעל שני רכיבים. הזרם מתחיל להפעיל בערך ב-60- mV, מה שמעיד על רכיב מסוג T (ICaT) בנוסף לזרם הדומיננטי מסוג L (ICaL), ומגיע לצפיפות שיא של כ-7- pA pF−1 בין 10- mV ל-0 mV (Figure 6B). זהות הרכיבים אושרה באופן פרמקולוגי: 10 µM nifedipine חוסמים את הזרם באופן חלקי, בעוד ש-100 µM גורמים לעיכוב כמעט מלא (Figure 6A). חשוב לציין כי ריכוז של 100 µM nifedipine שימש רק בניסויי ביקורת ספציפיים כדי לוודא שהזרם השארי לאחר 10 µM nifedipine רגיש לחלוטין לריכוזים גבוהים יותר ולכן ניתן לזהותו כ-ICaT. להקלטות שגרתיות סטנדרטיות, 50 µM מספיקים כדי לחסום לחלוטין את זרם ה-ICa נטו. רכיב ה-ICaL מוגדר כזרם המעורר מפוטנציאל החזקה של 50- mV, ו-ICaT מתקבל כהפרש בין הזרם שהוקלט מ-90- mV לבין ICaL המבודד (Figure 6C,D). זרם פנימה רגיש ל-nifedipine, המובחן בבירור ובעל מתחי הפעלה ושיא זרם כמתואר, מעיד על תעלות סידן שנשמרו היטב.
זרמי אשלגן מיוחבים מאוחרים (IKr ו-IKs)
נוכחותם של זרמי אשלגן החוצה מאשרת כי מנגנון הרפולריזציה נותר תקין תפקודית לאחר הבידוד. תחת התנאים הפארמקולוגיים (טבלה 2), דה-פולריזציה ל-40- mV ומעלה מעוררת זרם חוצה בכל התאים הבריאים. שני רכיבים מובחנים באמצעות חוסמים סלקטיביים: המיישר המאוחר האיטי (IKs), הרגיש ל-chromanol 293B (20 µM), והמיישר המאוחר המהיר (IKr), הרגיש ל-E4031 (1 µM) (איור 7A,B). במיוציטים מדגים צעירים, IKs, כמו גם IKr, מגיעים לצפיפות של כ-1 pA pF−1 בפוטנציאלי דה-פולריזציה חזקים (איור 7C,D). נוכחותם של שני רכיבי המיישר המאוחר, הממלאים תפקיד מרכזי ברפולריזציה של חדרים בבני אדם אך תורמים פחות במודלים סטנדרטיים של מכרסמים14, משמשת כאישור מרכזי לכך שהתא שהוקלט הוא מיוציט של חדרים מ-N. furzeri עם זרמי רפולריזציה תקינים.
זרם מיושר פנימה בסיסי (IK1)
זרם המיישר הפנימי (inward rectifier current) של הרקע קובע את פוטנציאל הממברנה במצב מנוחה, וניתן להעריכו בנוחות באמצעות פרוטוקול רמפת מתח מ-+60 ל-120- mV (איור 7E). בתא בריא, IK1 הופך כיוון (reverses) סביב 80- mV, בדומה ל-RMP שנמדד במצב current clamp. בפוטנציאלים חיוביים יותר מפוטנציאל ההיפוך, IK1 מציג בליטה חיצונית אופיינית, המגיעה לשיא של מספר pA pF−1 (איור 7F). פוטנציאל היפוך רחוק מ-80- mV או דליפה קבועה משמעותית מעידים על איטום לקוי או על ממברנה פגועה.
בסיכום הדברים, הכנה נחשבת למוצלחת כאשר היא מניבה תאים מוארכים דמויי מוט עם ממברנות חלקות ושלמות, היוצרים חסימות של gigaohm ומפגינים את צורת גל פוטנציאל הפעולה ואת חתימות הזרם של הביקורת שתוארו לעיל. השגת מספר תאים כאלו מלב אחד מאשרת כי הדיסוציאציה האנזימטית שימרה הן את שלמות הממברנה והן את המבנה המלא של תעלות היונים של הלב הנדרשות למחקר אלקטרופיזיולוגי בהמשך.
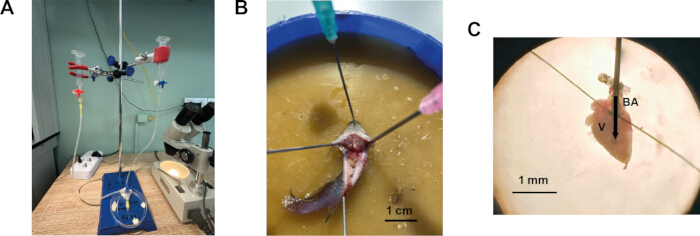
איור 1: פרוטוקול לבידוד קרדיומיוציטים ונטריקולריים מלב של N. furzeri. (A) מערכת לבידוד קרדיומיוציטים המותאמת לדגים קטנים. (B) דג מקובע במגש ניתוח, כאשר הצד הגבני פונה כלפי מטה, והפריטונאום חתוך באופן טרנסברסלי ולאורכי. (C) לב של N. furzeri לאחר קנולציה וקיבוע לצורך פרפוזיה. BA – bulbus arteriosus, V – ventricle. החץ מציין את כיוון זרימת התמיסה אל תוך הוןטריקול. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
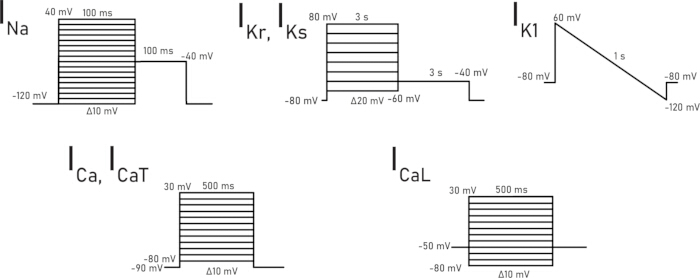
איור 2: פרוטוקולי Voltage-clamp המשמשים להקלטה של כל זרם יוני ספציפי. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
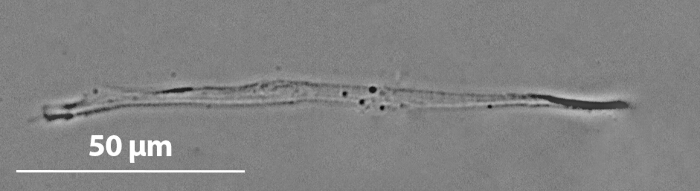
איור 3: מיקרופוטוגרפיה מייצגת של קרדיומיוציט ונטריקולרי מ- N. furzeri צעיר. אנא לחץ כאן כדי לצפות בגרסה מוגדלת של איור זה.
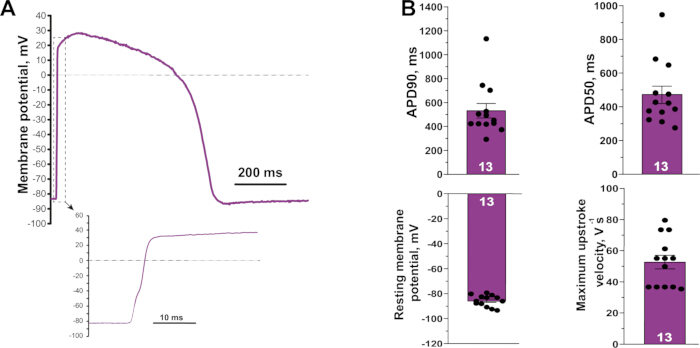
איור 4: פוטנציאל פעולה מייצג שנרשם מתאי קרדיומיוציטים פרוזוריים של N. furzeri צעיר. (A) צורת הגל של פוטנציאל הפעולה. התמונה המוגדלת (inset) מציגה את עליית המתח המהירה (upstroke) בלוח זמנים מורחב. (B) מאפייני פוטנציאל פעולה שנמדדו ממיוציטים צעירים מבודדים (פוטנציאל ממברנה במנוחה, APD50, APD90 ומהירות עליית המתח המקסימלית). (N = 7, n = 13). הערכים מוצגים כממוצע ± S.E.M. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
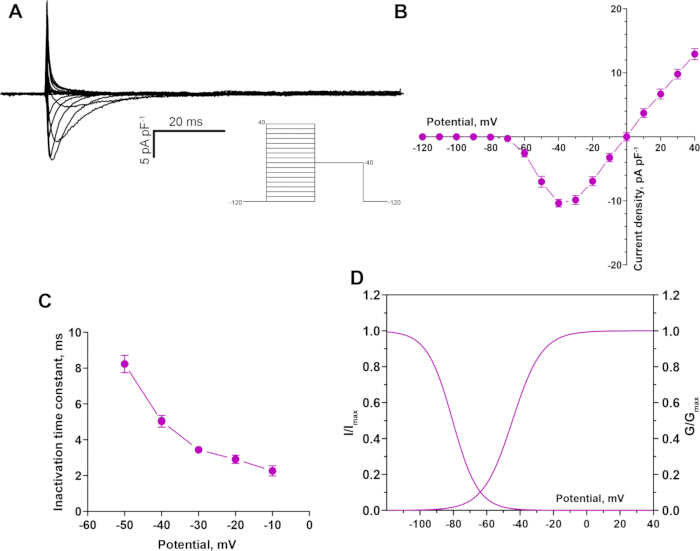
איור 5: זרם נתרן מהיר (INa) שהוקלט מתא שריר לבב (cardiomyocyte) ונטריקולרי של N. furzeri צעיר. (A) הקלטה מייצגת של INa. (B) הקשר בין זרם למתח עבור INa, עם הפעלה בקרבת -60 mV ושיא בקרבת -30 mV. (C) התלות במתח של קבוע הזמן של האינאקטיבציה. (D) עקומות הפעלה ואינאקטיבציה במצב יציב. (N = 5, n = 11). הערכים מוצגים כממוצע ± S.E.M. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
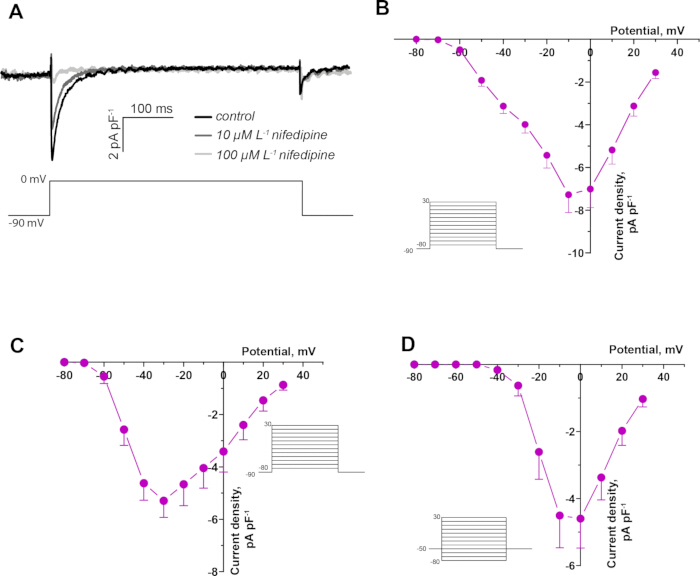
איור 6: זרמי סידן בתא שריר לב (cardiomyocyte) ונטריקולרי צעיר של N. furzeri. (A) הקלטה מייצגת של זרם הסידן נטו בביקורת ובנוכחות 10 µM ו-100 µM nifedipine בתא שריר לב ונטריקולרי צעיר של N. furzeri. (B) קשר זרם-מתח עבור זרם הסידן נטו, המופעל סביב -60 mV עם שיא סביב -10 mV (N = 5, n = 11). (C) קשר זרם-מתח עבור רכיב T-type (ICaT) (N = 3, n = 6). (D) קשר זרם-מתח עבור רכיב L-type (ICaL) (N = 5, n = 7). הערכים מוצגים כממוצע ± S.E.M. אנא לחץ כאן כדי לצפות בגרסה מורחבת של איור זה.
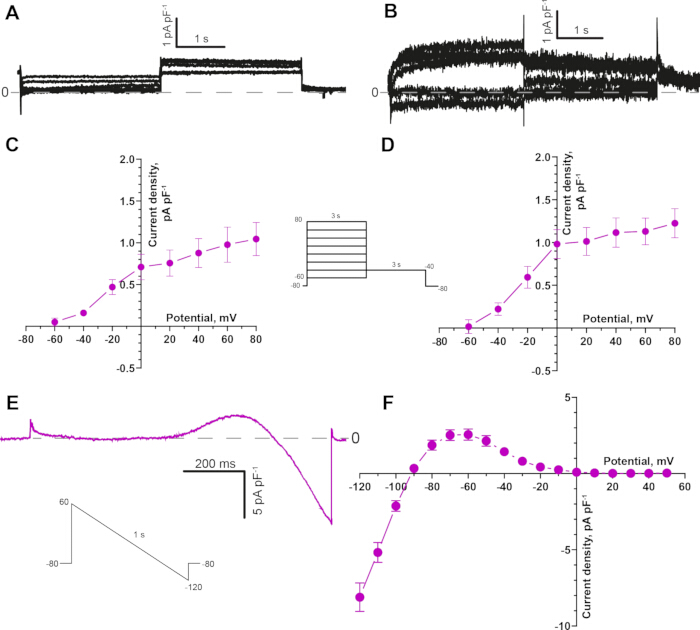
איור 7: זרמי אשלגן בתאי שריר לב פרוטופלזמיים (cardiomyocytes) של פרוזדוריים צעירים מהמין N. furzeri. (A) הקלטה מייצגת של זרם המייצב המאוחר האיטי (IKs), שבודד בנוכחות E4031 (1 µM) כדי לחסום את IKr. (B) הקלטה מייצגת של זרם המייצב המאוחר המהיר (IKr), שבודד בנוכחות chromanol 293B (20 µM) כדי לחסום את IKs. (C) קשר זרם-מתח עבור זרם IKs (N = 5, n = 9). (D) קשר זרם-מתח עבור זרם IKr (N = 5, n = 10). (E) IK1 מייצג שהוקלט באמצעות פרוטוקול רמפת מתח יורדת מ-+60 mV ל-120- mV. (F) קשר זרם-מתח עבור IK1, עם היפוך בקירוב ל-80- mV (N = 5, n = 18). ערכים מוצגים כממוצע ± S.E.M. אנא לחץ כאן להצגת גרסה גדולה יותר של איור זה.
| שם התמיסה | ריאגנט וריכוז (mM) |
| פוטנציאל פעולה וזרמי אשלגן תמיסה חוץ-תאית | 150 NaCl, 3 KCl, 1.2 MgCl2, 1.8 CaCl22, 10 גלוקוז, 10 HEPES; pH 7.4 מכוון עם NaOH |
| פוטנציאל פעולה וזרמי אשלגן תמיסה תוך-תאית | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0.03 Na2GTP ו-10 HEPES; pH 7.2 שכויל באמצעות KOH |
| תמיסה חוץ-תאית למדידת זרם נתרן | 20 NaCl, 123 CsCl, 1 MgCl2, 1.8 CaCl22, 10 גלוקוז ו-10 HEPES; pH 7.2 שכויל באמצעות CsOH |
| תמיסה תוך-תאית לזרם נתרון | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP ו-15 TEA; pH 7.2 שעודגן באמצעות CsOH |
| תמיסה חוץ-תאית לזרם סידן | 150 NaCl, 3 CsCl, 1 MgCl2, 1.8 CaCl22, 10 גלוקוז ו-10 HEPES; pH שהותאם ל-7.2 באמצעות NaOH |
| תמיסה תוך-תאית לזרם סידן | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP ו-15 TEA; pH 7.2 שכוון באמצעות CsOH. |
טבלה 1: הרכב התמיסות החוץ-תאיות והתוך-תאיות להקלטת פוטנציאלי פעולה וזרמים יוניים בשיטת patch-clamp.
| הקלטת זרם | ריכוז החוסם (μM) | |
| 1. | פוטנציאל פעולה | אין צורך בחוסמים |
| 2. | IKr | 50 Nifedipine, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipine, 1 E4031 |
| 4. | IK1 | 50 Nifedipine, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 ניפדיפין |
| 6. | ICaT | 1 טטרודוטוקסין |
| 7. | ICaL | 1 טטרודוטוקסין |
טבלה 2: חוסמים פרמקולוגיים שנוספו לתמיסות החוץ-תאיות לצורך הקלטה סלקטיבית של זרם יוני מסוים.
דיון
בידוד מוצלח של קרדיומיוציטים ונטריקולריים חיוניים מ-N. furzeri מהווה התקדמות מתודולוגית המאפשרת אפיון אלקטרופיזיולוגי ישיר של עיצוב מחדש (remodeling) של הלב הקשור לגיל ברמה התאית. רזולוציה זו חיונית לזיהוי המנגנונים היוניים הספציפיים העומדים בבסיס הדיספונקציה לבבית הקשורה לגיל, אשר לא ניתן להבחין בהם באמצעות הכנות של איברים או של הלב השלם בלבד. חקר קרדיומיוציטים טבעיים מספק תובנה ישירה לגבי האופן שבו ההזדקנות משנה תכונות אלקטרופיזיולוגיות בסיסיות, כולל זרמים יוניים ומאפייני פוטנציאל פעולה.
מספר שלבים בפרוטוקול הנוכחי הם קריטיים להשגת תאי שריר לב (cardiomyocytes) באיכות גבוהה המתאימים לשיטת ה-patch-clamp מ-N. furzeri. ראשית, הפעילות האנזימטית משתנה בין סדרות שונות, לכן יש להתאים את ריכוזי ה-collagenase וה-trypsin עבור כל הכנה. עיכול יתר גורם לנזק לממברנה ולאובדן תפקוד של תעלות יונים, בעוד שעיכול חסר מניב מעט תאים ומונע מגע יציב בין הפיפטה לממברנה. התאים המבודדים שומרים על מורפולוגיה מוארכת ומוטית עם סרקולמה (sarcolemma) חלקה ושלמה, מה שמעיד על שימור השלמות התאית במהלך הבידוד; בחלק מהתאים ניתן להבחין גם בפסי סרקומרים עמומים תחת מיקרוסקופ אור. שימור זה הוא קריטי לקבלת נתונים אלקטרופיזיולוגיים מהימנים, שכן תאים פגועים מראים לעיתים קרובות תפקוד משתנה של תעלות יונים ומאפייני ממברנה פגומים. שנית, גודלו הקטן של לב ה-N. furzeri מהווה אתגר טכני הדורש אופטימיזציה קפדנית של הבידוד האנזימטי ודיסקציה ידנית מדויקת, ותשואת התאים ללב נמוכה יותר מאשר בהכנות של יונקים. יתרה מכך, פרפוזיה לא עקבית או דליפה מהלב הקנוליה הם מהאתגרים הנפוצים ביותר שעלולים להתרחש במהלך הפרוצדורה. תרגלו קנולציה על מספר לבבות כדי לפתח זווית ועומק גישה עקביים. ודאו שקצה המחט נקי מבועיות אוויר ושה-bulbus קשור היטב מבלי לחתוך את הרקמה. כמו כן, לפני המעבר להקלטה, ודאו שהתאים הם בצורת מוט, עם ממברנה חלקה ושלמה (פסים עמומים עשויים להיות נראים בחלק מהתאים). יש להשליך תאים עגולים או גרנולריים. בדקו שכל התמיסות הוכנו טריות ושה-pH שלהן כוונן כראוי. ודאו שהתנגדות הפיפטה היא בטווח המומלץ (2.0–3.0 MΩ). במהלך ההקלטה, בדקו את פרמטרי המגבר שתוארו לעיל; ודאו שההתנגדות הנגישה (access resistance) לאחר פיצוי אינה עולה על 10–12 MΩ; פוטנציאל הממברנה במצב מנוחה הוא פחות שלילי מ-−70 mV במצב current-clamp, והתא יוצר gigaseal יציב.
עם זאת, הפרוטוקול מניב באופן עקבי תאים באיכות גבוהה המתאימים להקלטות patch clamp ופוטנציאלית ליישומים אחרים, ובכך מבסס את N. furzeri כמודל מעשי להזדקנות תאית של הלב. מכיוון ש-N. furzeri מציע יתרונות ברורים על פני מודלים יונקיים מסורתיים למחקרי הזדקנות לבבית, וכחולייתן קצר החיים ביותר שניתן לרבות בשבי, הוא מאפשר מחקרים אורכיים של הזדקנות הלב בלוחות זמנים מעשיים, בהשוואה למודלים של עכברים הדורשים 18–24 חודשים כדי להגיע לגילאים ביולוגיים דומים15. למרות תוחלת חייו הקצרה, הוא מפגין מאפייני מפתח של הזדקנות לבבית של חולייתנים, כולל עיצוב מחדש (remodeling) אלקטרופיזיולוגי, משך פוטנציאל פעולה נשמר עם מהירות עלייה (upstroke velocity) מופחתת, ודיכוי (downregulation) של זרמים יוניים חשובים6.
השוואה לגישות קיימות לבידוד קרדיומיוציטים.
בידוד אנזימטי של קרדיומיוציטים ונטריקולריים חיוניים הוא תנאי מוקדם מבוסס לאלקטרופיזיולוגיה של תא בודד במגוון רחב של מינים. ביונקים, גישת תו התקן מסתמכת על פרפוזיה אאורטלית רטרוגרדית של הלב השלם עם באפר נטול סידן, ולאחריה תמיסה המכילה אנזימים, בדרך כלל קולגנאז ופרוטאזים, תחת לחץ וטמפרטורה מבוקרים. אסטרטגיה זו מאפשרת אספקה אחידה של אנזימים דרך כלי הדם הכליליים, שטיפה יעילה של דם ודיסוציאציה עדינה יחסית של המיוקרדיום, ובכך מניבה מספר רב של מיוציטים בצורת מוט המתאימים להקלטות patch-clamp ברזולוציה גבוהה16,17.
אולם, בדגי עצם (teleost), הארגון האנטומי של הלב והיעדרו של מערכת עורקים כלילית הדומה לזו של יונקים מחייבים ביצוע התאמות משמעותיות. בדגי זברה (zebrafish), אחד ממודלי הדגים הקטנים הנפוצים ביותר במחקר קרדיווסקולרי, בידוד מוצלח של קרדיומיוציטים ונטריקולריים מבוסס על עיכול של הלב השלם בתמיסה אנזימטית למשך תקופה ממושכת יחסית8,9. בפרוטוקולים אלו, הלב המוצא הוא מועבר ישירות לטיפה או לנפח קטן של תמיסת אנזים, שם הוא מדגיר בטמפרטורת החדר או בטמפרטורה המתאימה למין, ולאחר מכן מבוצע ריסוק מכני (trituration) לשחרור תאים בודדים. גישה זו הוכחה ככזו המניבה קרדיומיוציטים מפוספסים חיוניים התומכים בהקלטות של זרמים יוניים מרכזיים11.
למרות תועלתה, לאסטרטגיית העיכול במנות (batch‑digestion) יש מספר מגבלות כאשר היא מיושמת על לבבות קטנים מאוד או שבירים במיוחד. ראשית, החשיפה האנזימטית פחות נשלטת: השכבות החיצוניות של החדר חשופות לריכוז אנזימים אפקטיבי גבוה יותר למשך זמן רב יותר מאשר השכבות הפנימיות, מה שעלול להוביל לעיכול הטרוגני ולתערובת של תאים שעברו עיכול חסר ועיכול יתר. שנית, טבילה ממושכת בתמיסת אנזימים מגבירה את הסיכון לעיכול יתר, במיוחד כאשר קיימים הבדלי פעילות בין מנות האנזימים או כאשר הלב קטן באופן חריג. שלישית, שטיפת הדם מסתמכת בעיקר על דיפוזיה פסיבית ושטיפה ידנית עדינה, שעלולות שלא להספיק כדי לנקות לחלוטין את החללים הלומנליים הצרים של חדר קטן של דג teleost.
שמרנו על העקרונות הכלליים של טיפול ללא סידן, עיכול אנזימתי וטריטורציה עדינה. עם זאת, במחקר זה שונו דרכי הזרקת התמיסות באמצעות קניולציה של ה-bulbus arteriosus ופרפוזיה ישירה של חלל החדרים. גישה זו מאפשרת לחוקר לשטוף דם מחללי החדרים לפני העיכול, להחליף בין תמיסות ללא צורך בהעברה של הלב, ולהפסיק את הטיפול האנזימתי כאשר דופן החדרים מתחילה להתרכך. שינויים אלה חשובים במיוחד עבור הלב הקטן והעדין של N. furzeri, שבו טבילה ממושכת בתמיסת אנזימים עלולה להוביל לעיכול מופרז ולהורדה באיכות התאים.
יישומים עתידיים
שיטת הבידוד הנוכחית פותחת מספר נתיבים למחקרים עתידיים. ראשית, היא מאפשרת אפיון מערכתי של שינויים תלויי-גיל במורפולוגיה של פוטנציאל הפעולה ובצפיפות הזרם היוני, הקינטיקה והתלות במתח בתאי שריר לב (cardiomyocytes) של N. furzeri, ובכך היא משלימה תיאורים מולקולריים והיסטולוגיים אחרונים של הזדקנות הלב במין זה2,3,4,5. שנית, ניתן לשלב את הפרוטוקול עם כלים פרמקולוגיים כדי לבחון כיצד התערבויות המשפיעות על תוחלת החיים או על משך החיים הבריאים משפיעות על האלקטרופיזיולוגיה של הלב ברמת התא הבודד. שלישית, ניתן להשתמש בתאי שריר לב מבודדים של N. furzeri ליישומים מעבר להקלטות בשיטת patch‑clamp, כולל ניתוחים מולקולריים (qPCR, RNA‑seq, פרוטאומיקה) של שינויים תלויי-גיל בביטוי תעלות יונים ובמודיפיקציות לאחר תרגום, אימונוציטוכימיה, ודימיון ברזולוציה גבוהה של ארגון הסרקומרים. לבסוף, ניתן להתאים את המסגרת המתודולוגית המתוארת כאן למודלים אחרים של דגי טלאוסטים קטנים בעלי גודל לב ואנטומיה דומים, ובכך להרחיב את התועלת של N. furzeri כמודל תרגומי למחקר הזדקנות הלב.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים כספיים.
תודות
עבודה זו נתמכה על ידי הקרן למדע של רוסיה (מענק מס' 22-14-00075). המחברים מודים לאנדריי ניקיפורוב על סיועו ברבייה ובשמירה של אוכלוסיית ה-Nothobranchius furzeri ששימשה במחקר זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מזרק אינסולין של 1 מ"ל | מטרת רפואית | 939863 | |
| מזרקים של 10 מ"ל | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| צלחת פטרי 100 מ"מ | SARSTEDT | 83.3902 | |
| 100 μL מיקרופיפטה | Thermo Scientific | 4640040 | |
| צלחת לתרבית רקמות בנפח 35 מ"מ | SPL LIFE SCIENCES | 11035 | |
| ברז עיכוב תלת-כיווני לעירוי | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| 500 μL מבחנה | Eppendorf | EP0030124537-500EA | |
| 5-200 μL קצה | Deltalab | 200009 | |
| מגבר | מכשירים מולקולריים | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| קפילריות זכוכית בורוסיליקאט | Sutter Instrument | B150-110-10 | |
| אלבומין מסרום בקר | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| קולגנאז 1A מסוג (Type) | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| מחט חלוקה (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| גלוקוז | הליקון | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| מיקרוסקופ הפוך | Nikon | - | Eclipse Ti-S |
| KCl | צ'ימד | 00000000089 | |
| KH2PO4 | הליקון | SRL-90654-500G | |
| KOH | הליקון | SRL-38630-1KG | |
| MgATP | מאקלין | A922363 | |
| MgCl2*6H2O | הליקון | Solarbio M8161 | |
| MgSO4*7H2O | הליקון | SRL-74440-500G | |
| מיקרו-מניפולטור | נתונים מהעולם האמיתי (RWD) | MM-500 | |
| פינצטות עין למיקרו-כירורגיה | CILITA | F-111T | |
| מספרי עיניים למיקרו-כירורגיה | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | הליקון | H-1418-1.0 | |
| NaOH | הליקון | SRL-13913-500G | |
| ניפדיפין | Sigma-Aldrich | N7634 | |
| מערכת פרפוזיה | ביוטכנולוגיות | ביו_4_פ | |
| מכשיר למשיכת פיפטאות | קבוצת Narishige | PC-10 | |
| צינורות סיליקון (d = 8 מ"מ) | MEDSIL | TY 9398-004-18037666-94 | |
| מעמד | מעבדת NV | 00000034085 | |
| מיקרוסקופ סטריאו | Labkompleks LCC | 10557 | |
| טאורין | Acros Organics | 166545000 | |
| טטרהאתילאמוניום כלוריד (TEA) | Merck | 822148 | |
| טטרודוטוקסין | Tocris Bioscience | 1078 | |
| טריפסין | Sigma-Aldrich | T0303 | |
| תוכנת WinWCP | אוניברסיטת סטרתקלייד | - | V5.7.5 |
מקורות
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב