L'obiettivo di questo protocollo è utilizzare titolazioni redox monitorate a risonanza paramagnetica elettronica (EPR) per identificare diversi cofattori di Saccharomyces cerevisiae Nar1. Le titolazioni redox offrono un modo molto robusto per ottenere potenziali medi di diversi cofattori attivi redox in enzimi e proteine.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
EPR monitorata Redox Titolazione dei cofattori di
In questo articolo
Sommario
Abstract
Risonanza Paramagnetica Elettronica (EPR) monitorato titolazioni redox sono un potente metodo per determinare il potenziale punto medio di cofattori di proteine e di identificare e quantificare i cofattori nel loro stato redox rilevabile.
La tecnica è complementare elettrochimica diretta (voltammetria) si avvicina, in quanto non offre informazioni sulla velocità di trasferimento di elettroni, ma non stabilire l'identità e redox stato dei cofattori nella proteina in esame. La tecnica è ampiamente applicabile a qualsiasi proteina contenente un elettrone risonanza paramagnetica (EPR) cofattore rilevabile.
Una titolazione tipica richiede 2 ml proteina con una concentrazione cofattore nell'intervallo 1-100 micron. La proteina viene titolato con un riducente chimico (ditionito di sodio) o ossidante (ferricianuro di potassio) per poise il campione ad un certo potenziale. Un filo di platino e un elettrodo di riferimento Ag / AgCl sono collegati ad un voltmetro per misurare il potenziale della soluzione proteica. Un set di 13 diversi mediatori redox viene utilizzato per equilibrare tra i cofattori redox della proteina e gli elettrodi. I campioni sono disegnati in diverse potenzialità e gli spettri Electron Risonanza Paramagnetica, caratteristici per le diverse cofattori redox nella proteina, sono valutate. La trama dell'intensità del segnale rispetto al potenziale di campione viene analizzato usando l'equazione di Nernst per determinare il potenziale del punto medio cofattore.
Introduzione
Colpisce il fatto che i processi chimici fondamentali che sostengono la vita su questo pianeta, la fotosintesi, la fissazione dell'azoto e la respirazione, sono catalizzate da grandi complessi proteici contenenti una vasta gamma di cofattori redox organici e inorganici. È stato stimato che circa il 30% di tutte le proteine contengono uno o più cofattori metallici. 1,2 identificare e caratterizzare i cofattori redox possono essere stabilite con elettrochimica diretta (ad esempio, la proteina pellicola voltammetria) o titolazioni redox. Le due tecniche sono complementari nella loro natura e applicabilità. Voltammetria offre un rapido accertamento delle potenzialità del punto medio e di trasferimento elettronico cinetica di cofattori che possono reagire con una superficie dell'elettrodo. 3,4 solito questo funziona bene per le proteine di trasferimento elettronico, come il citocromo c o ferredossina. E funziona a volte per proteine più complessi che sono stati immobilizzati su una superficie dell'elettrodo. La conoscenza dettagliata dellanatura cofattori nella proteina deve essere disponibile, come voltammogramma non darà alcuna informazione diretta sulla identità del cofattore. Titolazioni redox sono più laborioso da eseguire e richiedono quantità mg di proteina. Tuttavia, offrono informazioni sul potenziale punto medio e l'identità del cofattore. 5 Inoltre in una singola titolazione più cofattori in una proteina può essere monitorato.
Il principio di una titolazione redox è che la proteina redox attivo o enzima viene ridotto o ossidato chimicamente. Per assicurarsi che i cofattori reagiscono con i mediatori riducente o ossidante redox sono utilizzati. Questi mediatori redox reagiscono anche con un elettrodo in modo che il potenziale della soluzione può essere misurata. I mediatori agiscono come tampone redox e equilibrare tra i cofattori nella proteina e l'elettrodo. Dopo poising chimicamente il potenziale al valore desiderato, un campione viene prelevato e congelati in azoto liquido AW rapidamenteAit ulteriori analisi con tecniche spettroscopiche. Spettroscopia EPR è particolarmente utile a questo proposito in quanto può essere utilizzato per misurare quantitativamente centri metallici paramagnetici o radicali organici.
La titolazione redox può essere eseguita in due direzioni: da basso ad alto o da alto a basso potenziale punto medio. La scelta dipende dalla stabilità dei cofattori sotto studio. Spesso è saggio iniziare a basso potenziale e aggiungere ossidante al graduale aumentare il potenziale. Questo è chiamato una titolazione ossidativo ed è descritto qui. Qui vi mostriamo la titolazione redox del cluster ferro-zolfo contenenti proteine Nar1 da Saccharomyces cerevisiae. Questa proteina è coinvolta, probabilmente come una proteina scaffold, nel ferro-zolfo del cluster biosintetico macchine citosolica (CIA via). 6,7
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
1. Preparazione del programma di installazione e soluzioni
- Preparare la soluzione tampone contenente Tris 100 mM, NaCl 250 mM e 10% glicerolo a pH 8,5. Sfiatare il buffer da vampate di calore con argon. Introdurre il buffer in una camera anaerobica.
- Dividere il buffer in due porzioni. Per una porzione (tampone A) aggiungere 1 mM DL-ditiotreitolo (DTT, M r 154.25 g / mol) e 1 mM L-cisteina. L'altra porzione (tampone B) non contiene agenti riducenti.
- Preparare soluzioni ossidanti e riducente. Effettuare 1 ml di soluzioni 2, 20, e 200 mM di potassio ferricianuro (FIC, M r 329,26 g / mol) e del ditionito di sodio (SD, M r 174.11 g / mol) in tampone anaerobica B.
- Preparare mix mediatore come segue:
- Aggiungere 160 mM di ciascuno dei seguenti mediatori redox e 50 mM NaCl al buffer B: N, N, N ', N' tetrametil-p-phenylendediamine (TMPD, M r 237,17 g / mol, E '0 0,276 V) , 2,6-diclorofenolo indofenolo(DCIP, M r 290,08 g / mol, E '0 0,217 V), fenazina ethosulphate (PES, M r 334,4 g / mol, E' 0 0,055 V), blu di metilene (M r 319,85 g / mol, E ' 0 0,011 V), resorufina (M r 235,17 g / mol, E '0 -0,051 V), Indigodisulphonate (M r 466,35 g / mol, E' 0 -0,125 V), 2-idrossi-1,4-naphtaquinone ( M r 174,15 g / mol, E '0 -0,145 V), antrachinone-2-sulfonato (M r 328,28 g / mol, E' 0 -0,225 V), Phenosafranin (M r 322,8 g / mol, E '0 -0,252 V), safranina O (M r 350,84 g / mol, E '0 -0,280 V), rosso neutro (M r 288,8 g / mol, E' 0 -0,340 V), benzilico viologeno (M r 409,4 g / mol, E '0 -0,350 V), e metil viologeno (M r 257,16 g / mol, E' 0 -0,440 V).
- Avvolgere la bottiglia in un foglio di alluminio per proteggere il mediatores dalla luce.
- Preparare 10 mg / ml S. cerevisiae Nar1 proteine strep-tag (181 micron, M r 55.2 kDa) in tampone A. espresso S. cerevisiae Nar1 in E. coli come una proteina strep-tag con un vettore di espressione pET24A. Purificare la proteina in una camera anaerobico utilizzando supporti cromatografia Strep-Tactin (IBA) e purificare utilizzando un sistema di purificazione di proteine come Akta purificatore (GE Healthcare).
- Preparare la configurazione redox titolazione in una camera anaerobico come segue:
- Collegare un elettrodo di riferimento Ag / AgCl e un elettrodo a filo di platino vaso di titolazione. Collegare entrambi gli elettrodi ad un voltmetro in grado di misurare da mV a V.
- Inserire un piccolo bar di agitazione.
- Posizionare il vaso di titolazione sopra un agitatore magnetico.
- Riempire il vaso di titolazione con tampone B, soluzione mix mediatore e soluzione proteica fino a 2 ml, cioè a concentrazioni finali di proteine 72 micron e 38 micron di ognimediatore. Nota: a seconda della concentrazione di proteine e il mediatore richieste concentrazioni importi delle tre soluzioni dovrebbe essere regolato.
- Mescolare per 30 minuti e accendere il voltmetro.
- Preparare 10 quarzo tubi EPR vetro pulito. Introdurre i tubi nella camera anaerobica.
- Riempire un piccolo (circa 200 ml) dewar azoto liquido con azoto liquido.
2. Eseguire Redox Titolazione
- Attendere il potenziale della soluzione è stabile. Nota: In pratica, ciò significa che il potenziale derive meno di 1 mV per minuto.
- Annotare il potenziale in voltmetro.
- Disegnare il primo campione di 200 ml e iniettare in un tubo EPR.
- Chiudere la provetta con tappo di gomma e rimuovere il tubo dalla camera anaerobica.
- Congelare il tubo in azoto liquido come segue: Attenzione! Questo deve essere fatto lentamente, altrimenti il tubo si rompe.
- Prima inserire il tip del tubo in azoto liquido.
- Attendere un sibilo può essere ascoltato. Nota: Questo può richiedere fino a 10 sec.
- Lentamente inserire il resto del tubo in modo che la parte del campione è completamente sommerso.
- Aggiungere una piccola aliquota 1-2 microlitri della soluzione 2 mM SD alla soluzione nel recipiente di titolazione per abbassare il potenziale della soluzione -0.6 V.
Nota: Se più di 10 ml deve essere aggiunto, passare alla soluzione mM 20. Poiché è molto difficile poise a un valore potenziale specifico, i valori effettivi rilevati sul voltmetro sono scritte e utilizzati per costruire la curva di titolazione. - Disegnare un campione come descritto al punto 2,3-2,5.
- Annotare il potenziale effettivo in voltmetro.
- Aggiungere ossidante finché il potenziale è aumentata di circa 50 mV. Inizia aggiungendo una piccola aliquota 1-2 microlitri della soluzione 2 mM FIC. Se più di 10 microlitri deve essere aggiunto, passare alla soluzione 20 mM.
- Annotare how la maggior parte delle soluzioni è stato aggiunto. Nota: Ciò è necessario per correggere diluizione del campione durante la titolazione.
- Disegnare un campione come descritto nella procedura 2,3-2,5.
- Annotare il potenziale effettivo in voltmetro.
- Ripetere i punti 2.9 e 2.12 fino alla gamma potenziale da -0,6 V a +0,2 V è stato coperto e tutti i 10 tubi EPR sono riempiti ognuno con 200 ml.
Nota: Poiché il volume di ogni recesso è diminuito il posizionamento degli elettrodi può essere necessario regolare avere un buon contatto con la soluzione senza interferenze della agitazione. Può essere difficile misurare il potenziale dopo il ritiro dell'ultimo campione e quindi il potenziale di tale campione può essere meno accurate. - Facoltativamente, conservare i campioni EPR congelati in azoto liquido finché le misure EPR può avvenire.
3. Misurare titolazione campioni utilizzando EPR Spettroscopia e analisi dei dati
- Record EPR spettri del diversocampioni di titolazione come segue:
- Utilizzare una pompa ad alto vuoto per evacuare un criostato quarzo a <10 -5 bar.
- Accendere il raffreddamento ad acqua del magnete EPR. Aprire il flusso di aria secca attraverso la cavità EPR.
- Accendere l'alimentazione al magnete e il computer del EPR.
- Eseguire un programma di calibrazione della frequenza. Impostare i parametri di misura EPR. Collegare il criostato per l'elio liquido dewar. Raffreddare la cavità di 9-16 K.
- Introdurre il campione EPR nella cavità. Registrare lo spettro EPR.
- Identificare le diverse specie EPR e utilizzare il miglior spettri di quantificare i segnali. Ottenere EPR quantificazione mediante doppia integrazione degli spettri e confronto con lo spettro di una soluzione standard di rame esterna CuSO 10 mM 4/10 mM HCl / 2 M NaClO 4. 8
- Effettuare la curva di titolazione come segue:
- Tracciare l'ampiezza del segnale EPR ad un valore g che è caratteristico per la paraspecie magnetici di interesse rispetto al potenziale.
- Modificare l'EPR scala ampiezza del segnale di un giri / scala molecola utilizzando la quantificazione EPR dal punto 3.2.
- Correggere l'ampiezza di ciascun campione per la diluizione che si è verificato a causa delle aggiunte di ossidante o riducente segnale.
- Correggere il potenziale per il potenziale punto medio della elettrodo di riferimento Ag / AgCl.
Nota: L'elettrodo di riferimento Ag / AgCl (con KCl saturo) ha un potenziale punto medio di 0,194 V rispetto Hydrogen Electrode standard (SHE) a 25 ° C. Pertanto, se il potenziale sul voltmetro legge circa -0.6 V, il potenziale con riferimento alla SHE è -0.4 V.
- Montare il segnale alla equazione di Nernst come segue:
Per una specie che è paramagnetico allo stato ridotto: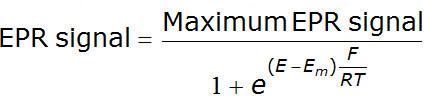
Per una specie che è paramagnetica in oStato xidized: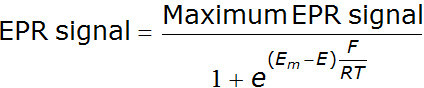
Per una specie che è paramagnetico in uno stato intermedio: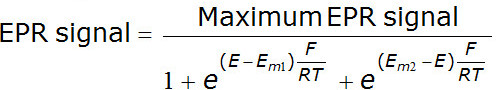
Queste equazioni sono validi per reazioni redox in cui un elettrone viene trasferito, quindi n = 1.
E = potenziale in Volt
E m = potenziale punto medio in Volt
F = costante di Faraday = 96.480 C · mol -1
R = Gas costante = 8,314 J · K -1 · mol -1
T = temperatura in Kelvin
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
La titolazione redox del cluster ferro-zolfo contenenti proteine Nar1 da Saccharomyces cerevisiae portato all'identificazione di tre diversi cofattori: Nar1: a [3Fe-4S] grappolo, un [4FE-4S] grappolo e mononucleare centro Fe (Figura 1) . I segnali EPR sono caratterizzate da g-valori: per la [3Fe-4S] + g z 2,01, g incrocio 2.00 (Figura 1B); per la [4FE-4S] +, z g 2,02 g 1,93 y, x 1,82 g (Figura C),
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
La serie di 13 mediatori redox permette un equilibrio redox nella soluzione nel range da -0.45 a +0,3 V rispetto SHE (Tabella 1 e Figura 3). Ben sopra e sotto tutti questi potenziali mediatori sono o completamente ridotti o completamente ossidate e quindi non ulteriormente equilibrazione con i centri attivi redox della proteina possono verificarsi. Questo è un concetto importante, come nella letteratura titolazioni redox talvolta vengono eseguite con solo due o tre mediatori, consentend...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
Questo lavoro è stato sostenuto finanziariamente da un assegno di ricerca della combinazione olandese Scuola Nazionale delle Ricerche, Catalisi Controlled by Design Chemical (NRSC-Catalysis). Dr. HY Steensma e Dr. GPH van Heusden da Leiden University sono riconosciuti per il loro sostegno, con l'espressione ricombinante di S. cerevisiae Nar1.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Elettrodo di riferimento (Ag/AgCl) | Radiometro | ||
| Prodotti chimici | Spettrometro EPR Sigma-Aldrich | ||
| Bruker | |||
| N,N,N',N' -tetrametil-p-fenilelendediammina (TMPD) · (HCl)2 | 637-01-4 | ||
| 2,6-diclorofenolo indofenolo (DCIP), sale | 620-45-1 | ||
| Fenazina etosolfato (PES) | 10510-77-7 | ||
| Blu di metilene | 122965-43-9 | ||
| Resorufina, sale | 34994-50-8 | ||
| Indigodisolfonato (indaco carminio) | 860-22-0 | ||
| 2-idrossi-1,4-naftachinone | 83-72-7 | ||
| Antrachinone-2-solfonato Na+ H2O | 153277-35-1 | ||
| Fenosafranina | 81-93-6 | ||
| Safranina O | 477-73-6 | ||
| Rosso neutro | 553-24-2 | ||
| Benzil viologen | 1102-19-8 | ||
| Metile viologeno | 1910-42-5 |
Riferimenti
- Lippard, S. J., Berg, J. M. Principles of Bioinorganic Chemistry. , University Science Books. (1994).
- Bertini, I. Bioinorganic Chemistry. , University Science Books. 611(1994).
- Leger, C., et al. Enzyme Electrokinetics: Using Protein Film Voltammetry To Investigate Redox Enzymes and Their Mechanisms. Biochemistry. 42, 8653-8662 (2003).
- Hagen, W. R. Direct Electron Transfer of Redox Proteins at the Bare Glassy Carbon Electrode. Eur. J. Biochem. 182, 523-530 (1989).
- Pierik, A. J., et al. Redox Properties of the Iron-Sulfur Clusters in Activated Fe-Hydrogenase from Desulfovibrio vulgaris (Hildenborough). Eur. J. Biochem. 209, 63-72 (1992).
- Balk, J., Pierik, A. J., Netz, D. J., Muhlenhoff, U., Lill, R. The Hydrogenase-like Nar1p is Essential for Maturation of Cytosolic and Nuclear Iron-Sulphur Proteins. EMBO J. 23, 2105-2115 (2004).
- Sharma, A. K., Pallesen, L. J., Spang, R. J., Walden, W. E. Cytosolic Iron-Sulfur Cluster Assembly (CIA) System: Factors, Mechanism, and Relevance to Cellular Iron Regulation. J. Biol. Chem. 285, 26745-26751 (2010).
- Aasa, R., Vänngård, T. EPR Signal Intensity and Powder Shapes. A Reexamination. J. Magn. Reson. 19, 308-315 (1975).
- Balk, J., Pierik, A. J. A., Netz,, J, D., Mühlenhoff, U., Lill, R. Nar1p, a conserved eukaryotic protein with similarity to Fe-only hydrogenases, functions in cytosolic iron-sulphur protein biogenesis. Biochem. Soc. Trans. 33, 86-89 (2005).
- Hennessy, D. J., Reid, G. R., Smith, F. E., Thompson, S. L. Ferene - a new spectrophotometric reagent for iron. Can. J. Chem. 62, 721-724 (1984).
- Flint, D. H., Emptage, M. H., Guest, J. R. Fumarase A from Escherichia coli: purification and characterization as an iron-sulfur cluster containing enzyme. Biochemistry. 31, 10331-10337 (1992).
- Hagedoorn, P. L., Driessen, M. C., Mvd Bosch,, Landa, I., Hagen, W. R. Hyperthermophilic Redox Chemistry: a Re-evaluation. FEBS Lett. 440, 311-314 (1998).
- Tadesse, M. A., D'Annibale, A., Galli, C., Gentili, P., Sergi, F. An assessment of the relative contributions of redox and steric issues to laccase specificity towards putative substrates. Organic & biomolecular chemistry. 6, 868-878 (2008).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
