Descriviamo qui un metodo migliorato di trasferimento Luminescence Resonance Energy (lRet) dove introduciamo un sito proteasi scissione tra i siti fluoroforo donatore e accettore. Questa modifica ci permette di ottenere segnali lRet specifici derivanti dalle proteine di membrana di interesse, consentendo lo studio di proteine di membrana, senza purificazione della proteina.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Luminescence Resonance Energy Transfer allo Studio conformazionale Cambiamenti nella membrana proteine espresse in cellule di mammifero
In questo articolo
Sommario
Abstract
Trasferimento Luminescence Resonance Energy, o lRet, è una potente tecnica utilizzata per misurare le distanze tra due siti nelle proteine all'interno della gamma distanza di 10-100 Å. Misurando le distanze in diverse condizioni legatura, cambiamenti conformazionali della proteina possono essere facilmente valutati. Con lRet, un lantanidi, terbio il più delle volte chelato, è utilizzato come fluoroforo donatore, offrendo vantaggi quali una maggiore durata unico donatore-emissione, la flessibilità di utilizzare più fluorofori accettore, e la possibilità di rilevare le emissioni accettore sensibilizzata come un modo semplice misurare trasferimento di energia senza il rischio di rilevare anche solo segnali donatori. Qui, descriviamo un metodo per utilizzare lRet sulle proteine di membrana espresse e testati sulla superficie delle cellule di mammifero intatte. Introduciamo un sito proteasi scissione tra la coppia fluoroforo lRet. Dopo aver ottenuto il segnale lRet originale, scissione in quel sito rimuove il segnale lRet specifica proteina diinteresse che ci permette di sottrarre quantitativamente il segnale di fondo che rimane dopo la scissione. Questo metodo consente una più fisiologicamente rilevanti misurazioni da effettuare, senza la necessità di purificazione di proteine.
Introduzione
Trasferimento Luminescence Resonance Energy (lRet) è un derivato del ben noto Fluorescence Resonance Energy Transfer (FRET) tecnica 1. Simile a preoccuparsi, lRet può essere utilizzato per misurare le distanze e le variazioni di distanza tra fluorofori donatore e accettore collegati a siti specifici sulla proteina di interesse all'interno della gamma di 10-100 Å 1-3. I principi della lRet sono simili a FRET dal fatto che il trasferimento di energia di risonanza si verifica tra due fluorofori prossimali quando lo spettro di emissione del fluoroforo donatore si sovrappone con lo spettro di assorbimento del fluoroforo accettore. L'efficienza di questo trasferimento è correlata alla distanza tra i due fluorofori dalla seguente equazione:
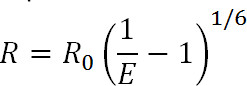 Eq. 1
dove R è la distanza tra i due fluorofori, E è l'efficienza di entrasferimento ERGIA, e R 0, discusso in seguito, è il raggio Förster per la coppia fluoroforo, cioè la distanza alla quale l'efficienza di trasferimento è a metà-massimale. Da questa equazione, si può vedere che l'efficienza è legata alla grandezza della distanza elevato alla sesta potenza inversa 1. E 'questo inversa sesto dipendenza potenza che permette di FRET e misurazioni lRet essere squisitamente sensibile anche a piccole variazioni di distanza, quando nei pressi della R 0 della coppia FRET. La capacità di etichettare specificamente i siti desiderati sulle proteine o altre macromolecole permette di approfittare di questa sensibilità per monitorare i cambiamenti conformazionali.
Rispetto al FRET, che utilizza molecole di colorante organiche convenzionali, lRet offre ulteriori vantaggi. In lRet, invece di utilizzare un colorante organico come fluoroforo donatore, un catione serie dei lantanidi, tipicamente Tb 3+ o Eu 3 +, viene utilizzato 1,4-6. Fluorofori che cadono uTEDS questa categoria, per esempio, terbio chelato, sono anche molto versatile in quanto possono essere utilizzati con una vasta gamma di fluorofori accettori. Tale flessibilità è possibile perché gli spettri di emissione dei lantanidi chelati contenere più picchi di emissione taglienti, consentendo una singola specie di fluoroforo donatore per essere utilizzato con uno di una vasta gamma di fluorofori accettori. Così, emissione accettore sensibilizzati può essere rilevato senza alcun timore di contaminare sanguinare-through da emissioni donatore 5. Lo sperimentatore seleziona il accettore specifico in base alla distanza prevista tra i due fluorofori (Figura 1 e Tabella 1). In questi fluorofori lantanidi chelati, lo ione metallico è chelato da una molecola contenente un gruppo antenna che sensibilizza il lantanide normalmente scarsamente assorbente all'eccitazione e un gruppo funzionale bioreactive per legare lo ione di un gruppo funzionale specifico sulla macromolecola 1, 5,6. Once eccitato, lantanidi rilassarsi allo stato fondamentale mediante il rilascio di fotoni, con un tasso di decadimento dell'ordine del millisecondo. Poiché il decadimento è né un rilassamento singoletto a singoletto né un rilassamento tripletto a singoletto, l'emissione di fotoni può non essere correttamente chiamato fluorescenza o fosforescenza, ma è più propriamente definito luminescenza 1. La lunga decadenza di lantanidi luminescenza aiuta molto nelle misurazioni a vita. Misurazioni Lifetime possono quindi essere utilizzati per determinare l'efficienza tramite la seguente relazione:
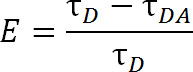 Eq. 2
dove E è l'efficienza del trasferimento, τ D è la durata del donatore (lantanidi chelato) quando non partecipano al trasferimento di energia, e τ DA è la durata del donatore quando partecipano a trasferimento di energia con l'accettore. Con lRet, τ DA possibile alin modo da misurare la durata dell'emissione accettore sensibilizzata perché la vita di terbio è tanto più grande di un fluoroforo accettore organico. L'accettore emette con la stessa vita come la sua eccitazione incitamento (lantanidi donatore), e qualsiasi contributo per la durata di vita propria fluorescenza intrinseca del accettore è relativamente trascurabile. Misurando l'emissione sensibilizzata piuttosto che di emissione del donatore, abbiamo anche eliminare la necessità di garantire un'etichettatura esattamente un rapporto 1: 1 di donatore accettore. Proteina può invece essere etichettato contemporaneamente sia con accettatore e fluorofori donatori. Una popolazione eterogenea etichetta si tradurrà, ma proteine marcate doppio donatore non emette nella lunghezza d'onda accettore e proteine marcate doppio-accettore non sarà entusiasta. Inoltre, la distanza tra i fluorofori dovrebbe essere lo stesso, a prescindere da quale cisteina sito un determinato fluoroforo attribuisce a, soprattutto quando si utilizzano i lantanidi isotropi come un donatore, in modo che il need per specificare un determinato sito per ricevere il donatore o accettore non è necessaria. L'intensità può essere affetto da una popolazione eterogenea, ma dovrebbe comunque essere più che sufficiente per essere rilevato.
Nel progettare esperimenti, la scelta di fluorofori dovrebbe essere dettata dal valore R 0 della coppia nonché nell'intervallo previsto distanza da misurare. Il valore R 0 è definito dalla seguente equazione:
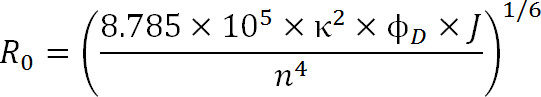 Eq. 3
dove R 0 è il raggio Förster in Angstrom, κ 2 è il fattore di orientamento tra i due coloranti (di solito assunti per essere 2/3), φ D è la resa quantica del donatore, J è la sovrapposizione spettrale integrale tra il donatore del spettro di emissione e lo spettro di assorbimento del accettore in M - 1cm -1 nm 4, ed n è l'indice di rifrazione del mezzo 1.
Il nostro laboratorio ha aggiunto una modifica alla tecnica convenzionale lRet introducendo un sito di riconoscimento proteasi tra donatore e accettore siti etichette sulla proteina essendo sondato. Questa modifica permette di indagine in sistemi non-purificato come le cellule di mammifero intere 7. Questa tecnica è particolarmente utile quando si utilizzano cisteine come siti per l'etichettatura, poiché nel processo di etichettatura con coloranti maleimmide coniugato che si legano ai gruppi sulfidrilici cisteina, altre proteine sulle cellule che hanno cisteine sono inoltre classificati. Tuttavia, includendo i siti di clivaggio della proteasi sulla proteina di interesse e vite di misura prima e dopo clivaggio, lo sperimentatore può quantitativamente sottrarre il segnale di fondo dopo proteasi scissione dal segnale grezzo. Questa sottrazione isola il segnale specifico derivante dalla proteina di interesse (FigURE 2). Utilizzando la modifica sopra descritta, lRet può essere utilizzato per misurare le variazioni di distanza tra il donatore terbio chelato e la sonda accettore su una proteina, e quindi monitorare i cambiamenti conformazionali stato fisiologico prossimità della proteina senza la necessità di purificazione.

Figura 1.L spettri di assorbimento e di emissione di terbio chelato in nero, così come un accettore rappresentante, Alexa 488, in rosso. Notare i picchi di emissione più e il forte, intervallo di emissione stretto per ogni picco di terbio chelato. Questo modello permette di terbio di essere utilizzato con una varietà di fluorofori accettori e facilita la misurazione delle emissioni sensibilizzati all'interno di tali intervalli in cui terbio mostra nessuna emissione. Picco di emissione di terbio a 486 nm si sovrappone abbastanza bene con l'una picco bsorption di Alexa 488, consentendo il trasferimento di energia di risonanza a verificarsi tra i due fluorofori. Lunghezza d'onda di 515 nm è una scelta eccellente per rilevare le emissioni sensibilizzati per questa coppia, come è nella valle tra i picchi di emissione terbio, e abbastanza vicino picco di Alexa 488 di emissione di 520 nm. Si noti che essendo vicino al picco accettore, anche se auspicabile, non è necessaria-565 nm è ancora in grado di rilevare Alexa 488 emissione senza anche rilevare emissione terbio.
| Fluoroforo accettore | R 0 (Å) | Emissione lunghezza d'onda (nm) |
| Atto 465 | 36 | |
| Fluoresceina | 45 | 515 |
| Alexa 488 | 46 | 515 |
| Alexa 680 | 52 | 700 |
| Alexa 594 | 53 | 630 |
| Alexa 555 | 65 | 565 |
| 65 | 575 |
Tabella 1 Un elenco di fluorofori accettori comunemente usati per lRet utilizzo terbio chelato come il donatore 11. I R 0 valori sono stati misurati quando il donatore e accettore sono state allegate alla agonista dominio di legame solubili dei recettori AMPA. E 'ideale per misurare nuovamente il valore di R 0 per ogni nuovo sistema in fase di studio.

Figura 2 Una panoramica del metodo lRet presentato. (A) Il recettore AMPA è una proteina di membrana che subisce cambiamenti conformazionali upon-ligando. Il ligando-bi-a forma di conchiglianding dominio è cerchiata in rosso qui. (B) Il dominio ligand-legame di AMPA quando non si lega alle proteine esiste in una conformazione aperta (a sinistra). Quando è legato al ligand glutammato, la proteina chiude attorno al suo ligando (a destra). Inserendo fluorofori in siti probatori sul LBD, la natura di questo cambiamento conformazionale può essere visto come la distanza tra i fluorofori modifiche, che poi incidere durata della fluorescenza. (C) Quando etichettatura cellule intere, l'etichettatura sia della proteina di interesse così come le proteine di membrana sfondo si possono verificare (a sinistra). Dopo proteasi clivaggio, segnale lRet dalla proteina di interesse scomparirà a causa del rilascio di un frammento solubile, lasciando intatto sfondo segnale (a destra). Questo segnale di fondo può essere sottratto dal segnale grezzo.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
1 Creare il Construct contenente la proteina di interesse
Clonazione del gene che esprime la proteina di interesse in un vettore adatto. Utilizzare i vettori come la serie pcDNA o pRK5 in quanto sono adatti per l'espressione in sistemi di mammiferi come le cellule HEK293 e CHO.
2. selezionare i siti sulla proteina per essere etichettate con fluorofori
- Scegliere siti di etichettatura che sono in grado di riflettere eventuali cambiamenti conformazionali all'interno della proteina. Se possibile, utilizzare una struttura cristallina della proteina o di una proteina omologa per contribuire a rendere questa determinazione. Se non c'è struttura cristallina disponibili, utilizzare software online per prevedere la possibile struttura della proteina e quindi ricevere comprensione siti appropriati.
- Scegliere residui tale che le catene laterali dei residui selezionati sono superficie esposta e accessibili a fluorofori in modo che la proteina può essere etichettato.
- Scegli residui chenon sono fondamentali per la funzione delle proteine, per esempio i siti che non sono coinvolti nel legame ligando.
- Nell'introdurre mutazione cisteina, dare la preferenza a siti che sono simili, per esempio serina, che potrebbero causare perturbazione minima per la struttura delle proteine.
- Dopo aver scelto i siti di etichettatura, apportare le mutazioni al fine di garantire che la proteina dà solo lRet da questi siti destinati. Utilizzare protocolli standard di mutagenesi sito-diretta a mutare via cisteine-non-disolfuro bonded che potrebbero legarsi a maleimide-coniugati tag fluorescenti. Non mutare via cisteine disolfuro-bonded e sepolti, cisteine libere in quanto non devono reagire con coloranti fluorescenti in forma ripiegata della proteina.
- Introdurre residui di cisteina nei siti desiderati facendo mutazioni puntiformi utilizzando protocolli standard di mutagenesi sito-diretta.
- Includere un sito di clivaggio della proteasi che possono specificatamente fendere fuori da una delle cisteine della proteina. Se l'sequenza della proteina permette di esso, introdurre il sito conservativo mutazione della proteina di avere una trombina (sequenza di riconoscimento LVPRGS) o Fattore Xa (sequenza di riconoscimento IDGR o IEGR) sequenza vicino alla cisteina introdotta e accessibili a proteasi scissione; altrimenti la sequenza tetra o esa-peptide può essere inserita nel suo complesso. Scegliere il sito di clivaggio tale che su una delle cisteine introdotte dissocia dal resto della proteina-in alcuni casi, questo può richiedere due siti di taglio che fiancheggiano una cisteina mutato.
3 Prova l'espressione e funzionalità della proteina
- Eseguire un western blot per confermare l'espressione della proteina mutata.
- Eseguire un test funzionale della proteina per garantire che le mutazioni hanno alterato la funzione della proteina solo in minima parte, se non del tutto, per evitare di studiare variazioni conformazionali di una proteina disfunzionale.
NOTA: Dal momento che tutte le proteine hanno funzioni diverse, non esiste un unico f test unctional che viene utilizzato specificamente per lRet; tuttavia, alcuni esempi di test funzionali includono saggi enzimatici attività per gli enzimi, saggi-ligando di legame per i recettori, e studi di elettrofisiologia per i canali ionici.
4 Selezionare i Fluorofori da utilizzare
Selezionare i fluorofori basati sulla gamma distanza prevista da misurare in modo che l'intervallo è compreso tra 0.5-1x R 0 della coppia fluoroforo.
NOTA: Questo consente una più facile sottrazione dello sfondo, che di solito ha durata molto più a lungo. Ad esempio, se l'intervallo atteso distanza è misurata è di circa 35 Å, una coppia fluoroforo opportuno utilizzare sarebbe chelato terbio come il donatore e Alexa 594 come accettore, perché la R 0 per questa coppia è 53 Å (Tabella 1).
5. esprimere la proteina dal Transientemente trasfettando la quantità necessaria di cellule di mammifero
S copi "> Transientemente transfettare la proteina di interesse nelle cellule di mammifero scelti utilizzando uno dei reagenti di trasfezione comuni In genere, utilizzare quattro piatti 10 cm per esperimento lRet per linee cellulari HEK e CHO,. tuttavia, questo importo può variare a seconda espressione della proteina , stabilità, ecc. Lasciare le cellule di esprimere la proteina per 36-48 ore prima della raccolta.6 Etichettare le Proteine
- Staccare le cellule dal piatto di coltura. Staccare cellule HEK semplicemente pipettando tampone contro il fondo del piatto. Staccare cellule CHO con un raschietto cellulare, lavare via i media con tampone extracellulare.
- Raccogliere le cellule per centrifugazione a 1.100 xg per 3 min. Utilizzare le stesse impostazioni di centrifughe per la raccolta di cellule dopo l'etichettatura, così come dopo i lavaggi successivi.
- Sospendere cellule in 3 ml di tampone extracellulare, quindi aggiungere fluorofori donatore e accettore in quantità equimolare fino ad una concentrazione finale di 100-300 nM. Incubare su un rotatore fo 1 ora a temperatura ambiente.
- Lavare le cellule marcate 3-4x con tampone extracellulare per rimuovere fluorofori non legati, quindi sospendere queste cellule in tampone extracellulare (di solito 2 ml) per misure lRet.
- Come controllo, etichettare un insieme separato di cellule con solo fluoroforo donatore (terbio chelato), senza aggiunta di alcun fluoroforo accettore.
NOTA: I dati di questi esperimenti solo donatore è necessaria per completare l'analisi. Questi esperimenti possono essere effettuati sugli stessi o diversi giorni. - Anche in questo caso, eseguire la convalida funzionale, questa volta con la proteina mutante etichettato, come il processo di etichettatura può anche interferire con la funzione a seconda del sito utilizzato per l'etichettatura.
NOTA: Questi esperimenti possono essere eseguiti sullo stesso o diversi giorni.
7 Impostare l'esperimento lRet
- Porre le cellule risospese in una cuvetta di quarzo con un volume minimo di 1 ml.
- Accendere il computer e lo strumento e regolare i parametri del datun programma di acquisizione di conseguenza.
- Impostare la lunghezza d'onda di eccitazione alla gamma di assorbanza del fluoroforo donatore (330-340 nm funziona bene per terbio chelato).
- Impostare la lunghezza d'onda di emissione in modo appropriato, tenendo presente che l'emissione accettore varia in base al accettore utilizzato. È importante sottolineare, selezionare una lunghezza d'onda di rilevamento che misura solo l'emissione accettore e non include alcun sanguinare-through dalla emissione del donatore. Ad esempio, utilizzare una lunghezza d'onda di 565 nm per Alexa 555 come accettore Tabella 1. Per le misurazioni solo donatore, in cui la proteina è stato etichettato solo con il donatore, ma senza accettore, utilizzare una lunghezza d'onda di 545 nm per la misurazione delle emissioni terbio chelato.
- Impostare la lunghezza di rilevazione delle emissioni, deve essere almeno tre volte la durata prevista lRet per assicurare che un componente di lunga durata, non ci mancherà.
- Eseguire la scansione. Fare almeno tre scansioni di 99 scansioni per garantire la coerenza dei risultati. Salva thE i risultati come file di testo (txt).
- Per misurare le variazioni conformazionali di una proteina in relazione alle diverse condizioni (ad esempio l'aggiunta di un legante), modificare tali condizioni e nuovamente effettuare almeno tre scansioni di 99 spazza ciascuno sullo stesso campione in questa nuova condizione. Se lo studio degli effetti del glutammato sulla conformazione dei recettori del glutammato, ad esempio, aggiungere glutammato 1 mM allo stesso campione scansionata nel passaggio 7.3, e poi ripetere la scansione.
- Aggiungi fino a cinque unità della proteasi appropriato e prendere scansioni continuamente fino scissione è completo e nessuna ulteriore cambiamento è visto nel corso della vita per tre scansioni successive. Di solito, scissione è completa in due per 3 ore. Se un sito di taglio Factor Xa viene utilizzato per clivaggio della proteasi, per esempio, aggiungere 3 ml di fattore Xa al campione, e la scansione ogni 30 minuti per 3 ore.
8 Analizzare i dati ottenuti
- Aprire il software di analisi dei dati.
- Caricare la durata della fluorescenzadati utilizzando Importa ASCII per aprire i file di testo. Caricare tutte le repliche e le misurazioni del fondo finali, in un unico file.
- Calcolare la media dei dati di tutte le scansioni per ogni condizione sperimentale per ottenere i dati finali. Per fare ciò, evidenziare le colonne che contengono le singole prove, poi sotto il menu Dati nella barra dei menu, fare clic su Statistiche su Righe per visualizzare i dell'intensità media di fluorescenza delle prove, nonché la deviazione standard ed errore standard.
- Tracciare i valori medi come un grafico lineare con intensità di fluorescenza sulla Y e la durata in microsecondi per l'asse X per creare una curva che rappresenta la durata dell'emissione sensibilizzate della accettore. Modificare l'asse Y del complotto per una scala logaritmica, per consentire una migliore visualizzazione dei dati.
- Ripetere il punto 8.3 sui dati misurazione del fondo, in media le scansioni finali che mostrano sovrapposizione indicazione completa scissione.
- Visualizzare i dati di base medi sultrama stessa che contiene i dati grezzi media. Per fare ciò, aprire la finestra di dialogo Controllo layer trovato sotto il menu Plot. Poi, trasferire i dati contenenti sfondo significare nella lista dei contenuti di livello.
- Allineare i dati di base medi ai dati grezzi medi. Per fare ciò, utilizzare la funzione matematica semplice sotto il menu Math di moltiplicare o dividere i dati di base, se necessario, fino alla fine della coda dello sfondo si sovrappone con la coda dei dati grezzi.
NOTA: In questa coda, la durata della proteina di interesse dovrebbe essere già completamente decaduta; ciò è allineato è semplicemente lo sfondo segnale presente prima e dopo la scissione della proteasi. - Sottrarre il segnale di fondo allineato dal segnale iniziale lRet grezzo, ancora una volta utilizzando la funzione matematica semplice.
- Inserire i dati in un decadimento esponenziale (esponenziali singoli o multipli, a seconda dei siti e il disegno sperimentale).
- Impostare il limite di inizio per il montaggio per iniziare dopo la finedell'impulso laser. Utilizzare questo stesso punto di inizio per tutti i raccordi curve successive.
- Nella finestra di dialogo Seleziona Funzione Fitting, selezionare decadimento esponenziale, in modo da adattare la vita per la seguente equazione per un singolo decadimento esponenziale:
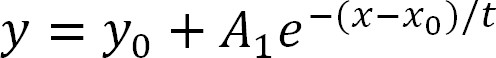 Eq. 4
dove y rappresenta l'intensità di fluorescenza, y 0 rappresenta l'intensità bassa a causa del rumore del sistema, A 1 è l'intensità del segnale, t è la durata della fluorescenza, x è il tempo, e x 0 è l'offset di tempo. - Fissare x 0 a 0, inizia il montaggio delle funzioni, e adattarsi ai dati.
NOTA: Se l'esperimento è progettato per avere il segnale solo da un paio di siti, i dati risultanti dovrebbero facilmente essere in forma da un unico decadimento esponenziale 8. Il residuo della forma è un buon metodo per determinare la bontà del fit e se vite decadimento aggiuntivi sono required.
- Utilizzare le vite ottenuti dai dati per calcolare la distanza tra fluorofori utilizzando l'equazione Förster (un riarrangiamento di equazioni 1 e 2 di cui sopra):
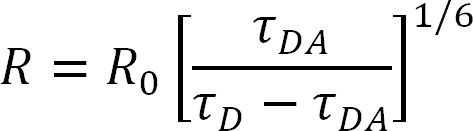 Eq. 5
NOTA: Tutte le variabili sono come sopra indicato con τ DA essendo stato misurato come la vita sensibilizzata emissione accettore. Ulteriori dettagli ed esempi sulle misure di R 0 e R possono essere trovati altrove 7,9,10. - Ripetere l'esperimento e analisi dei dati almeno tre volte per garantire la riproducibilità. Incoerenza tra le singole ripetizioni della stessa misura mette in discussione la validità dei dati; utilizzare esperimenti o ripetizioni di controllo supplementari. Calcola errori di misura utilizzando la calcolatrice gratuita Gustavus analisi Error (sviluppato dal Dr. Thomas Huber) o un sistema simile che si propaga l'errore nellaadatta della vita.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Una misurazione lRet successo con un donatore lantanide dovrebbe avere un donatore solo vita nell'intervallo di tempo millisecondi. La durata di emissione lRet sensibilizzati per la proteina marcata con sia il donatore e l'accettore sarà notevolmente più breve, con una durata nel range microsecondo dopo sottrazione del fondo Figura 3. Proteasi risultati scissione in un aumento della vita che dovrebbe diventare stabile nel tempo ( cioè cambiando non più), mostrando che la scissione della proteas...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
LRet è una potente tecnica che permette agli scienziati di misurare le distanze tra i domini all'interno di una singola proteina, come pure tra subunità di una proteina multimerica. Come tale, lRet è adatto a esaminare i cambiamenti conformazionali e dinamiche di proteine o altre macromolecole. Il protocollo di cui sopra dovrebbe consentire il laboratorio adeguatamente attrezzato per testare facilmente le loro ipotesi; tuttavia, ci sono molte fonti comuni di errore che possono affliggere il nuovo investigatore. Se...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
Questo lavoro è stato supportato dal National Institutes of Health di Grant GM094246, l'American Heart Association di Grant 11GRNT7890004, e la National Science Foundation sovvenzione MCB-1110501.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| LanthaScreen Tiolo Reattivo Tb Chelato | Life Technologies | PV3579 | |
| Accettore fluoroforo-Fluoresceina-5-Maleimmide | Life Technologies | F-150 | La scelta dell'accettore dipende dall'esperimento specifico |
| Accettore fluoroforo-Alexa Fluor 488 C5 Maleimide | Life Technologies | A-10254 | La scelta dell'accettore dipende dall'esperimento specifico |
| Accettore fluoroforo-Alexa Fluor 555 C2 Maleimide | Life Technologies | A-20346 | La scelta dell'accettore dipende dall'esperimento specifico |
| Accettore fluoroforo-Alexa Fluor 594 C5 Maleimide | Life Technologies | A-10256 | La scelta dell'accettore dipende dall'esperimento specifico |
| Accettore fluoroforo-Alexa Fluor 680 C2 Maleimide | Life Technologies | A-20344 | La scelta dell'accettore dipende dall'esperimento specifico |
| QuantaMaster 3-SS | Photon Technology | dovrebbe avere un'eccitazione pulsata con la capacità di misurare tempi di vita nell'ordine dei millisecondi | |
| internazionale FluoreScan 2.0 | Photon Technology | utilizzato nel manoscritto. Software fornito con lo strumento a fluorescenza | |
| Origin 8.6 | OriginLab | Origin è il software di analisi dei dati utilizzato nel protocollo. Può utilizzare altri software di analisi dei dati simili | |
| Cuvetta al quarzo | Starna Cells, Inc | 3-Q-10 | |
| Barra di agitazione | Prodotti Bel-Art | F37119-0007 | Utilizzato in cuvetta per mantenere le celle in sospensione. Può utilizzare qualsiasi ancoretta che si adatti alla cuvetta |
Riferimenti
- Selvin, P. R. Principles and biophysical applications of lanthanide-based probes. Annual Review of Biophysics and Biomolecular Structure. 31, 275-302 (2002).
- Stryer, L., Haugland, R. P. Energy transfer: a spectroscopic ruler. Proceedings of the National Academy of Sciences of the United States of America. 58, 719-726 (1967).
- Stryer, L. Fluorescence energy transfer as a spectroscopic ruler. Annual Review of Biochemistry. 47, 819-846 (1978).
- Selvin, P. R., Hearst, J. E. Luminescence energy transfer using a terbium chelate: improvements on fluorescence energy transfer. Proceedings of the National Academy of Sciences of the United States of America. 91, 10024-10028 (1994).
- Chen, J., Selvin, P. R. Thiol-reactive luminescent chelates of terbium and europium. Bioconjugate Chemistry. 10, 311-315 (1999).
- Ge, P., Selvin, P. R. Thiol-reactive luminescent lanthanide chelates: part 2. Bioconjugate Chemistry. 14, 870-876 (2003).
- Gonzalez, J., Rambhadran, A., Du, M., Jayaraman, V. LRET investigations of conformational changes in the ligand binding domain of a functional AMPA receptor. Biochemistry. 47, 10027-10032 (2008).
- Ramaswamy, S. S., Maclean, D. M., Gorfe, A. A., Jayaraman, V. Proton mediated conformational changes in an Acid Sensing Ion Channel. J. Bio. Chem. 288, (2013).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Conformational changes at the agonist binding domain of the N-methyl-D-aspartic acid receptor. The Journal of Biological Chemistry. 286, 16953-16957 (2011).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Subunit arrangement in N-methyl-D-aspartate (NMDA) receptors. The Journal of Biological Chemistry. 285, 15296-15301 (2010).
- Kokko, T., Kokko, L., Soukka, T. Terbium(III) chelate as an efficient donor for multiple-wavelength fluorescent acceptors. Journal of Fluorescence. 19, 159-164 (2009).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
