Questo metodo consente la generazione di nematodi di Caenorhabditis tetraploide e triploidi da qualsiasi sforzo diploide. Poliploidi ceppi generati da questo metodo sono stati usati per studiare le interazioni del cromosoma nella profase meiotica, e questo metodo è utile per l'esame di domande di base importante in inerente allo sviluppo, evolutiva, biologia cellulare e cancro.
Articolo metodologico
Manipolazione di Ploidy in Caenorhabditis elegans
In questo articolo
Sommario
Abstract
Meccanismi che coinvolgono l'intero genoma poliploidia svolgono un ruolo importante nello sviluppo e nella evoluzione; Inoltre, una generazione anormale di cellule tetraploidi è stato associato con la progressione del cancro sia lo sviluppo di farmacoresistenza. Fino ad ora, non è fattibile per manipolare facilmente il ploidy di un animale pluricellulare senza generare per lo più sterile progenie. Presentato qui è un protocollo semplice e rapido per la generazione di tetraploide Caenorhabditis elegans animali da qualsiasi sforzo diploide. Questo metodo consente all'utente di creare una distorsione nella segregazione cromosomica durante la meiosi, aumentando in ultima analisi ploidy in c. elegans. Questa strategia si basa sulla riduzione transitoria dell'espressione del gene rec-8 per generare gameti diploidi. Un mutante di rec-8 produce gameti diploidi che potenzialmente possono produrre tetraploidi al momento della fecondazione. Questo schema trattabile è stato utilizzato per generare tetraploide ceppi che trasportano le mutazioni e riarrangiamenti cromosomici per comprendere dinamiche cromosomiche e interazioni durante l'associazione e sinapsi nella meiosi. Questo metodo è efficace per la generazione di ceppi tetraploide stabile senza marcatori genetici, può essere applicato a qualsiasi sforzo diploide e può essere utilizzato per derivare triploide c. elegans. Questo semplice metodo è utile per investigare altre domande biologiche fondamentali rilevanti per instabilità genomica, dosaggio genico, scala biologica, segnalazione extracellulare, adattamento allo stress, lo sviluppo della resistenza ai farmaci, e meccanismi di speciazione.
Introduzione
Intero genoma poliploidia esiste in natura e spesso è un passo necessario nell'adattamento, speciazione, organogenesi, guarigione delle ferite e scala biologica; Inoltre è conosciuto per promuovere la resistenza a farmaci1,2,3,4,5,6,7,8, e cancro 9 , 10 , 11 , 12. agricoltura e pesca industrie generano piante poliploidi, pesci e molluschi mediante un trattamento chimico (ad es., la colchicina e orzalin) per ottenere tassi di crescita più veloci e più ingombranti raccolti e bestiame13, 14,15. Produzione sperimentale e inefficiente di tetraploidi esiste per il mouse e zebrafish modello sistemi16,17. Tuttavia, la maggior parte o tutti i poliploidi animali multicellulari generati sono embrionalmente letale o sterile e quindi non è l'ideale per gli studi di laboratorio sugli effetti di polyploidy in un organismo pluricellulare. Di conseguenza, qualsiasi comprensione della poliploidizzazione intero genoma negli organismi multicellulari è stata limitata a specie strettamente imparentate da evolutiva recente poliploidizzazione eventi18,19,20 . Un percorso per far avanzare le conseguenze della poliploidizzazione o query del ruolo biologico è l'uso dell'apparato di modello di c. elegans . Importante, c. elegans è un sistema genetico trattabile che normalmente esiste come un diploide, contiene solo cinque autosomi (A) ed un cromosoma di sesso (X) al genoma, è trasparente che consente per l'osservazione in vivo dei processi biologici, e ha un breve ciclo di vita di 3-4 giorni (da uovo ad adulto sessualmente maturo). C. elegans ha dimostrato di essere in grado di riprodurre come un tetraploide, che è il tipo più comune di intero genoma poliploidia in natura. Triploidi animali possono essere generati incrociando tetraploidi con diploidi, ma loro ploidia non è stabile, e i ceppi diventano diploidi entro un paio di generazioni.
In questi ultimi decenni solo una manciata di vitale e fertile di c. elegans tetraploidi sforzi sono stati isolati in laboratorio, utilizzando una strategia che è laboriosa e genera solo i tipi limitati di ceppi21,22, 23. questa strategia genera tetraploidi di c. elegans dai trattamenti di scossa di calore, che presumibilmente colpisce la segregazione del cromosoma nei gameti, seguita da una proiezione per presunti animali poliploidi utilizzando marcatori genetici. Questi tetraploidi erano estremamente utile per l'indagine di come questo nematode determina se diventare maschi o ermafroditi. Studi successivi hanno utilizzato i ceppi disponibili per studiare la crescita, la dose di gene e il regolamento di synapsis durante la meiosi in questo nematode21,24,25,26. Purtroppo, questi studi sono stati limitati dalla difficoltà nel generare nuove varietà tetraploide e marcatori genetici sfondo questi ceppi contenuti. Mostrato qui è un protocollo semplice e veloce per generare tetraploidi stabile, che è stato utilizzato per generare ceppi per studiare il regolamento di synapsis durante meiosi27.
Come in natura, poliploidizzazione possa derivare dalla formazione di diploide invece di gameti aploidi. La nostra individuazione che genera un coesina meiosi specifico componente mutante rec-8 sperma diploide e ovociti ha indicato che abbattendo il gene rec-8 comporterebbe nella produzione di progenie tetraploidi (Figura 1)27, 28,29. Generazione di ceppi tetraploide coinvolge semplicemente abbattendo rec-8 di interferenza del RNA (RNAi) per due generazioni in modo da fenocopia rec-8 mutante gameti diploidi. Putativi poliploidi possono essere facilmente identificati dal loro più tempo di corporatura normale. Poliploidi sono confermati come completo o parziale tetraploidi contando il numero di cromosomi al nucleo una volta linee stabili sono stabiliti.
La strategia descritta qui consente la generazione di stabile tetraploide Caenorhabditis del nematode ceppi da qualsiasi background genetico diploide iniziale o cariotipo senza l'uso di marcatori genetici. Poiché questo protocollo è più efficiente, versatile e semplice rispetto al regime utilizzato in precedenza, si espanderà gli strumenti necessari per eseguire una query i ruoli della poliploidizzazione in processi fondamentali di sviluppo, stabilità del genoma ed evoluzione in multicellulari organismi. La limitazione solo prevedibile nell'uso di questo protocollo è in ambiti di provenienza genetici resistente a RNAi.
Protocollo
1. impostazione rec-8 RNAi (giorno 1-3 nella Figura 2)
Questo protocollo è stato modificato da Kamath e Ahringer30.
- Per l'induzione dell'espressione di dsRNA rec-8 in Escherichia coli, preparare Nematode crescita medio (NGM) agar piastre31 completati con una concentrazione finale di 1 mM isopropilico-β-D-2-thiogalactopyranoside (IPTG) e 100 µ g/mL ampicillina. Conservare al buio a 4 ° C fino all'utilizzo, fino a 4 settimane.
- Batteri di HT115 striscia portando il clone di rec-8 (W02A2.6) dal clone Ahringer laboratorio biblioteca30 rec-8 sul piatto di brodo di Luria (LB) completati con 100 µ g/mL ampicillina e tetraciclina di 50 µ g/mL. Crescere durante la notte in uno shaker a 37 ° C.
- Il giorno 1, inoculare singole colonie da appena striate singole colonie dei batteri HT115 e. coli che trasportano il clone di RNAi rec-8 in 4 mL LB contenente 100 µ g/mL ampicillina e tetraciclina di 50 µ g/mL. Far crescere la cultura di batteri durante la notte in uno shaker o un rullo di tamburo a 37 ° C.
- La mattina successiva (giorno 2), inducono la produzione di doppia elica (ds) RNA per rec-8 W02A2.6 nella coltura batterica HT115 aggiungendo una concentrazione finale di 1 mM IPTG e agitazione per 40 min a 37 ° C.
- Dopo induzione, piastre NGM/IPTG con 100-200 µ l di HT115 rec-8 batteri del seme e conservare le piastre a temperatura ambiente nel buia durante la notte (giorno 3).
- La mattina successiva (giorno 4), aggiungere il ceppo del nematode desiderato per le piastre di batteri di rec-8 HT115 indotte come descritto al punto 2.1 sotto.
2. generazione e isolando tetraploidi (giorno 4-16 nella Figura 2)
- Il giorno 4, posto 3-4 giovani ermafroditi (quarto) Stadio larvale L4 del ceppo diploide desiderato sulle piastre NMG/IPTG seminati con HT115 rec-8 batteri che erano stata indotta il giorno prima (punto 1.5, sopra). Crescere i nematodi in 15 ° C al buio.
- Ripetere i passaggi da 1.3 e 1.4 a partire 3 giorni dopo passo 2.1, che saranno tre giorni prima di diventare la prima progenie (F1s) da quel passo L4s. La tempistica di questa operazione dipenderà da quanto velocemente un ceppo del nematode cresce a 15 ° C. Alcuni ceppi mutanti diploidi sono coltivatori lenti, e bisogno di una multa di questa temporizzazione tuning al fine di isolare tetraploidi.
- Il giorno 8 (dopo 4 giorni di trattamento d'alimentazione di RNAi rec-8 ), trasferire 20 (2 ermafroditi/Petri dish) della F1 (prima generazione filiale) L4 ermafroditi coltivate in HT115 rec-8 batteri sulla appena indotto HT115 rec-8 RNAi e consentire loro di note.
- In alternativa, trasferimento 20 dei hermaphrodites F1 L4 coltivata in HT115 rec-8 batteri sul appena indotto HT115 rec-8 RNAi batteri insieme con i maschi non trattati dello stesso ceppo (2 ermafroditi con 4-6 maschi/piastra).
- Il giorno 13, inizio screening per F2 (seconda generazione filiale) progenie che appaiono lungo (Lon) o nel complesso più grande del tipo selvatico; quindi trasferire singoli Lon animali sul regolare OP50 o HB101 ceppi di batteri e. coli . Continuare lo screening F3 progenie (terza filiale); Tuttavia, progenie F3 dallo stesso piatto non può essere considerato indipendente ceppi se diventare stabiliti, perché potevano essere fratelli dallo stesso già stabilito F2 madre.
Nota: Tetraploidi putativi sono facilmente riconoscibili perché sono chiaramente più lunghi di diploidi. Wild type ermafroditi sono due terzi inferiori tetraploidi. Perché è più lungo, un corpo tetraploide fa un giro extra come si muove in avanti generando onde sinusoidali di piegatura di corpo dalla testa alla coda (Figura 3A). - Consentire Lon vermi per note e propagare scegliendo Lon progenie finché non solo Lon progenie sono generata in assenza di rec-8 trattamento RNAi. Questo potrebbe richiedere due o tre altre generazioni. Lon vermi spesso sono sterili e non danno progenie.
3. Verifica ceppi tetraploide (film 1 e Figura 3A, B)
Nota: I ceppi tetraploide possono essere convalidati da contando il numero di cromosomi in loro ovociti non fecondati. La microscopia fluorescente può essere utilizzata per lo screening per il numero di coppie di cromosomi in ovociti non fecondati diploide (prima le divisioni meiotiche), se il ceppo ha un marcatore fluorescente per i cromosomi. In assenza di indicatori fluorescenti del cromosoma, nematodi tetraploidi possono essere proiettati fissando i nematodi e colorazione con un colorante di DNA; Vedi sotto per un protocollo per la fissazione di etanolo e intero-animale 4 ′, 6-diamidino-2 ′-phenylindole dicloridrato (DAPI) colorazione.
- Animale intero colorazione DAPI
Nota: Tetraploide ceppi che trasportano 12 coppie di cromosomi collegato possono essere convalidati da DAPI questi animali di colorazione e contando il numero di corpi DAPI in suoi ovociti non fecondati.- Posto da 5 a 10 µ l di M9 buffer31 su un vetrino da microscopio, quindi trasferire nematodi 6-10 per il drop.
- Sotto un microscopio per dissezione, disegnare la maggior parte della M9 discesa senza rimuovere i nematodi con un tessuto di pulizia privo di lanugine. Quindi, immediatamente aggiungere una goccia di 10 µ l di etanolo al 90% sui vermi. Consentire i vermi ad asciugare completamente, ma per non più di un paio di secondi.
- Non appena l'etanolo evapora (questo può essere visto come accade al microscopio per dissezione), aggiungere un ulteriore 10 µ l di etanolo al 90% sui vermi.
- Ripetere il punto 3.1.3 tre volte di più.
- Quando l'ultima goccia di etanolo sarà evaporato, aggiungere 6 µ l di colorante DAPI o Hoechst alla concentrazione finale consigliata nei media montaggio di scelta (ad esempio, una diluizione di 1:1,000 di una concentrazione di stock di DAPI 2 ng / µ l in M9). Per l'archiviazione a lungo termine delle diapositive, 0,5% p-fenilendiammina disciolto in 20 mM Tris-HCl, pH 8.8, nel 90% glicerolo come soluzione antifade, anziché M9 solo, può essere utilizzato.
- Coprire i vermi sulla diapositiva con un vetrino coprioggetto e sigillare i bordi del coprivetrino con smalto. Punteggio ottenuto in un microscopio a fluorescenza (passo 3.1.7) almeno 10 minuti dopo aver aggiunto il vetrino coprioggetti. Diapositive senza antifade possono essere conservati per alcuni giorni a 4 ° C prima di segnare, ma la qualità della fluorescenza inizia a diminuire dopo pochi giorni.
- Utilizzando un microscopio a fluorescenza a 100 ingrandimenti, segnare il numero di corpi singoli DAPI (coppie presumibilmente singolo cromosoma) nell'ovocita non fecondato più maturo, che è immediatamente adiacente la spermateca e non è ancora entrato la spermateca o l'utero.
- Per calcolare i singoli corpi DAPI all'interno di un nucleo dell'ovocita, utilizzare messa a fuoco del microscopio per spostare lentamente dall'alto del nucleo dell'ovocita verso il basso durante il conteggio. Quindi, raccontano lo stesso nucleo mentre si sposta lo stato attivo nella direzione opposta (cioè, dalla parte inferiore alla parte superiore del nucleo) per confermare il numero di corpi DAPI contate.
- Punteggio l'ovocita non fecondato più maturo in ciascuna delle due gonadi in almeno dieci ermafroditi al ceppo Lon stabile. Wild type ovociti hanno 6 DAPI corpi su media, 5 coppie di autosoma e la coppia di cromosomi sessuali. La presenza di 12 corpi DAPI nell'ovocita di stabile Lon ceppi indica che gli animali in questo ceppo sono parziali (4 set di autosomi, 3 cromosomi) o completa (4 set di autosomi, 4 x-cromosomi) tetraploidi.
- Calcolare il numero medio di DAPI corpi osservati da (almeno 10) più ovociti per ceppo. Alcune coppie di cromosomi saranno essere toccando o proprio sulla cima di un altro, quindi il numero di DAPI corpi in un ovocita è spesso più piccolo rispetto al numero effettivo di coppie di cromosomi.
- (Opzionale) Convalidare ulteriormente stabile Lon ceppi, dove il numero medio di corpi DAPI è 12 per verificare se sono pieno (4A, 4x) o parziale (4A, 3x) tetraploidi dall'immunofluorescenza che macchia contro proteine asse del cromosoma ad esempio HTP-332. Questa colorazione distinguerà coppie di cromosomi mostrando un motivo cruciforme da singoli cromosomi estranei presenti nella parziale tetraploide.
Risultati
Compromissione del rec-8 Meiotic coesina componente funzione risultati nei gameti diploidi:
Imaging delle divisioni meiotiche della coesina componente mutante rec-8 dello sperma e ovociti ha rivelato i meccanismi possibili per la generazione di animali tetraploide (Figura 1)27,29,33. Meccanicistico, i difetti di divisione meiotic di rec-8 mutante degli spermatozoi e degli ovociti sono diversi; Tuttavia sia maschile che femminile gameti diploidi sono prodotte dal mutante rec-8 .
Nella meiosi wild-type, cromosomi omologhi diventano temporaneamente collegati uno a altro tramite la ricombinazione di crossover e immettere la prima divisione meiotica come unità o bivalente (Figura 1A)34. Durante la prima divisione, cromosomi omologhi (omologhi) segregano lontani uno da altro, considerando che la sorella cromatidi in ciascun omologo rimangono insieme fino alla seconda divisione. Anche se il modello di segregazione del cromosoma è lo stesso nei gameti maschili e femminili, divisioni degli ovociti sono asimmetriche mentre spermatocita divisioni sono simmetriche e subiscono una citochinesi specializzata. In ogni divisione, l'ovocita scarta la metà del prodotto divisione in un piccolo corpo di polar. Così, ogni precursore di ovocita dà luogo a un singolo oocita aploide e due globuli polari (Figura 1B, C)35. Al contrario, un precursore di singolo spermatocita dà luogo a quattro spermatidi funzionale subendo due divisioni simmetriche. Seconda divisione culmina con quattro spermatidi in erba fuori da un corpo residuo. La citochinesi è speciale in quanto il modello e il numero di spermatidi è determinato dal centrosomi36.
Nel precursore per i gameti mutante rec-8 , ricombinazione di crossover tra cromosomi omologhi non avviene e gli omologhi non sono connessi come un bivalente all'inizio della prima divisione meiotica29,34. Sorella cromatidi di ogni omologo segregano lontani uno da altro nella prima divisione invece di rimanere insieme fino alla seconda divisione, come fanno nei gameti di tipo selvaggio. Interessante, il fenotipo mutante rec-8 durante la seconda divisione è diverso nei gameti maschili e femminili, in quanto gli ovociti non riescono a subire la citochinesi mentre spermatociti subiscono una citochinesi relativamente normale (Figura 1B– F) 27 , 28 , 29. diploidi ovociti sorgono perché nella seconda divisione riescono entrambi segregazione del cromosoma e citochinesi, quindi essi non estrudere il secondo corpo polare (Figura 1B, C). Spermatociti in rec-8 germlines subire in erba spermatid o citochinesi, ma spesso separare entrambi i set di cromosomi ad una delle spermatidi a cedere un spermatid diploide e una spermatid difettare della cromatina (Figura 1– F)27. Quantificazione della percentuale di spermatozoi rec-8 difettare della cromatina è mostrato in Figura 1F.
La formazione dei gameti diploidi maschili e femminili nei mutanti di rec-8 ha suggerito che questo fenotipo mutante poteva essere utilizzato per generare ceppi tetraploide genoma completo.
Generazione di ceppi tetraploide c. elegans :
La presenza di una mutazione nel gene rec-8 in tutti i ceppi tetraploidi generati può essere evitata da abbattere transitoriamente rec-8 di RNAi29,37. Questo presuppone che la riduzione della funzione rec-8 di RNAi genererebbe gameti diploidi che potenzialmente potrebbero dar luogo a animali tetraploide dell'intero genoma, come rec-8 mutanti fanno29,37. Essenziale per questo protocollo è che rec-8 mutanti sia danno luogo a gameti diploidi e sire un numero ragionevolmente grande di giovani, al contrario di altri mutanti meiotiche, che danno luogo ai gameti aneuploid e sono per lo più sterile o embrionale/larvale letale.
Più tetraploide ceppi sono stati generati da nutrire i batteri di c. elegans esprimendo dsRNA rec-8 utilizzando una delle due strategie (Vedi protocollo, Figura 2e tabella 1)27. Tetraploidi possono essere generati da auto-fertilizzazione ermafroditi per due o tre generazioni in capsule di Petri con batteri esprimendo dsRNA rec-8 . Da questa strategia un ermafrodita è posto in appena fatto rec-8 RNAi piastre e sua progenie è trasferito pochi giorni più tardi sulle nuove piastre con appena indotto rec-8 RNAi esprimenti batteri (Vedi protocollo). Inoltre, tetraploidi possono essere generate tramite attraversando la prima generazione di ermafroditi alimentati batteri esprimendo dsRNA rec-8 con i maschi non trattati dello stesso genotipo in capsule di Petri con batteri esprimendo rec-8 dsRNA ( Figura 2). In questo caso, i maschi nella Croce sono esposti ai batteri RNAi rec-8 dal palco L4 in poi, durante l'accoppiamento. Entrambi gli schemi di danno luogo a tetraploide animali27. La tabella 1 Mostra tetraploide ceppi ottenuti utilizzando lo schema presentato qui. Triploide e tetraploide c. elegans sono di dimensioni maggiore rispetto diploidi, ma ceppi triploidi sono instabili e tendono a diventare diploide in una o due generazioni, mentre i ceppi tetraploidi sono relativamente stabili22,23. Putativi tetraploide ceppi sono stati identificati come più grande gli ermafroditi di ceppo (Lon) originale che ha generato solo Lon progenie (Figura 3A). Lon animali sono facilmente identificabili - diploide animali wild-type sono due terzi della lunghezza del tetraploidi e i loro corpi non fanno una curva supplementare, che può essere notata durante il suo movimento sinusoidale in avanti (Figura 3A).
Tetraploide ceppi sono stati confermati da screening per la presenza di 12 coppie di cromosomi in ovociti dei hermaphrodites tetraploide rispetto a sei coppie di cromosomi in ovociti di ermafroditi diploidi (Figura 3B, Ce Movie 1).
Tetraploide classi:
Sono stati identificati due tipi di ermafroditi tetraploide: maschi uno desiderato con frequenze simili come ermafroditi diploidi e l'altro ha generato i maschi frequenze molto più elevato (tabella 1). Questi due tipi di tetraploide ermafroditi hanno dimostrati di differiscono in quanto le frequenze di classe producendo simili a quelli dei maschi diploidi sono tetraploidi per tutti i suoi cromosomi (4A, 4x), considerando che le frequenze di alta classe producendo dei maschi sono ermafroditi che sono tetraploidi per l'autosomi ma triploid per il cromosoma di sesso (4, 3 X). La classe successiva di tetraploidi è stabile e produrre 4A, 3 X ermafroditi e 4A, 2 maschi di X.
Tetraploide ceppi crescono più lentamente e producono dimensioni coulors ridotte rispetto ai diploidi che sono stati derivati da, come si è visto per i ceppi generati con il precedente metodo22,23. Madl e Herman22 ha suggerito che l'aumento della percentuale di embrioni morti nei ceppi tetraploide potrebbe essere a causa di aneuploide nell'ovocita, tuttavia non ha rivelato la ispezione superficiale dei ceppi tetraploide sufficientemente elevati numeri di aneuploid ovociti né anormale degli ovociti o spermatocita divisioni per rappresentare la riduzione osservata nel formato covata (film 2e Figura 3, D).
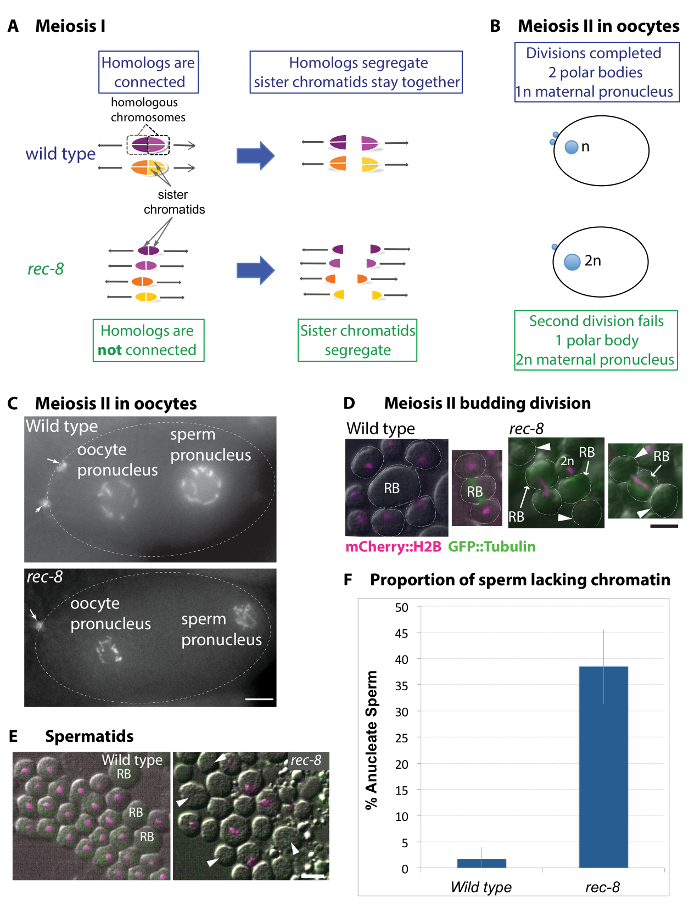
Figura 1: Gametogenesi in rec-8 mutante implica meccanismi possibili per la generazione stabile macchie poliploidi. (A) diagramma del modello di organizzazione e segregazione del cromosoma in wild type e rec-8 divisioni meiotiche mutante. Nella meiosi wild-type, cromosomi omologhi separano in prima divisione meiotica. Sorella cromatidi in ciascun omologo orientano verso il polo dell'alberino stesso e rimangono insieme fino alla seconda divisione. Nei mutanti di rec-8 , gli omologhi non formano crossover e così non sono collegati. In contrasto a selvatico tipo, rec-8 sorella cromatidi orientano lontani uno da altro e separano in prima divisione meiotica. (B) diagramma di wild type e mutanti ovociti mostrando il pronucleo femmina ed estrusi corpi polari (pronucleo maschile non è raffigurato). Negli ovociti di tipo selvaggio, due divisioni meiotiche asimmetriche provocano l'estrusione di due globuli polari. Nei mutanti di rec-8 tuttavia, ha esito negativo il secondo corpo polare estrusione, risultante in un oocita diploide. (C) immagini di wild type e rec-8 ovociti mutante esprimendo mCherry::histone H2B. Le frecce indicano due corpuscoli polari nell'ovocita wild-type e uno nel mutante rec-8 . Barra della scala è di 5 µm. (D ed E) Live immagini di spermatidi da wild type e rec-8 animali mutanti esprimendo mCherry::histone H2B (magenta). Le frecce indicano anucleate spermatidi. Barra della scala è di 2 µm. (D) spermatociti in fase di seconda divisione (in erba) nel wild-type e mutante rec-8 . I tipo selvaggio spermatociti subiscono divisioni simmetriche con conseguente quattro spermatidi in erba, ognuno con un complemento del cromosoma aploide. In rec-8 mutante spermatociti, segregazione del cromosoma è alterata in seconda divisione. Più spesso un'unica massa di cromatina rimane nel corpo del residuo (RB) o in uno dei due sorella spermatidi nella seconda divisione meiotica. Questo dà luogo a anucleate rec-8 mutante sperma (indicato da frecce) o spermatozoi diploidi. Immagini in diretta (E) post-in erba spermatidi in wild-type e mutanti rec-8 visualizzato usando contrasto differenziale di interferenza (DIC) e microscopia a fluorescenza. Wild type spermatidi tutti hanno simili cromatidio masse. REC-8 mutante spermatidi formano anucleate sperma. (F) quantificazione dello sperma mutante anucleate wild type e rec-8 . REC-8 mutanti prodotto 38,5% degli spermatozoi anucleate rispetto a meno di 1,6% nel tipo selvaggio. Test esatto di Fisher indica che un mutante di rec-8 ha incidenza significativamente più alta di sperma anucleate (p ≤ 0.0001) rispetto al wild type. Barre di errore rappresentano deviazioni standard. Clicca qui per visualizzare una versione più grande di questa figura.
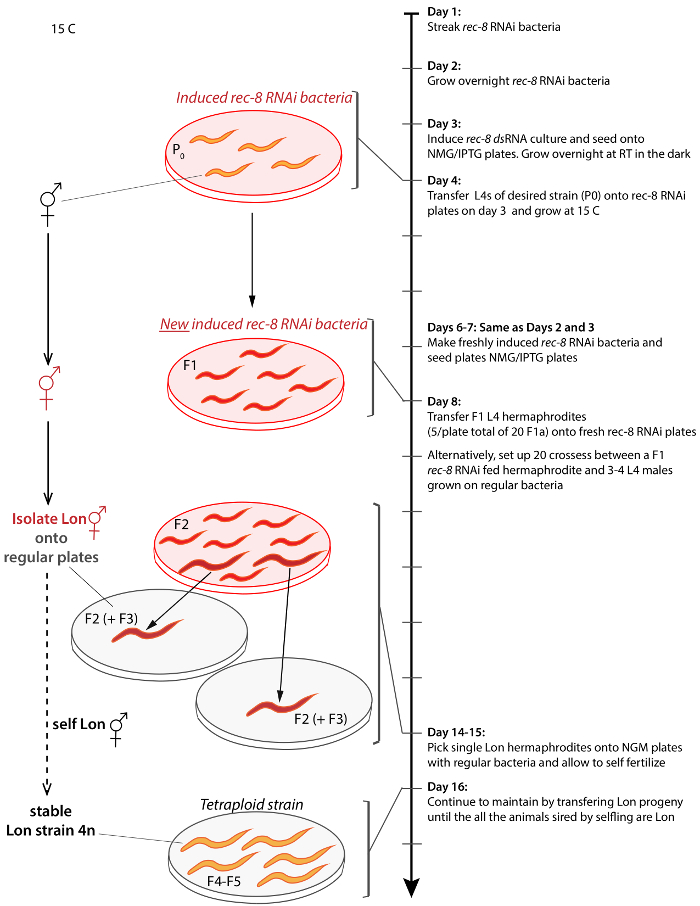
Figura 2: Schema per la generazione e tetraploide c. elegans da qualsiasi sforzo di isolamento. Freccia a destra rappresenta la linea temporale del protocollo a partire dal 1 ° giorno e procedendo al giorno 17. Risultati simili possono essere raggiunti di ermafroditi di attraversamento per i maschi non trattati il giorno 9. Staffe di collegare la raffigurazione di un passo nella timeline. Animali non trattati sono di colore arancione, animali trattati sono di colore rossi, Lon animali sono più ampie, rec-8 dsRNA esprimendo batteri è raffigurato come lastre trasparenti con sfondo rosso trasparente e regolare OP50 batteri è raffigurato su grigio trasparente piastre di fondo. Procedura è fatta a 15 ° C, salvo diversa indicazione. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 3: esempi tetraploidi. (A) immagine di campo luminoso di un animale (MSC2) tetraploide e lo sforzo diploide che è stato derivato da (AV740). Tetraploide c. elegans sono nel complesso più grande e più a lungo (Lon) al diploide. Questa differenza nella dimensione corporea si traduce in un'ulteriore curva sinusoidale del corpo di tetraploide il movimento e può essere utilizzata come criterio per schermo per derivati tetraploide. Barra della scala è di 0,1 mm. (B, C) immagini di fluorescenza di diploide (AV740) e tetraploide (MSC1) più maturo ovocita non fecondato nulcei, prima le divisioni meiotiche. Selezione secondaria viene eseguita osservando il numero di coppie di cromosomi negli ovociti non fecondati dei ceppi Lon stabiliti, come mostrato in 1 film per un ceppo di MSC1 esprimere Mcherry::H2B e GFP::β-tubulina in linea germinale. Barra della scala è 5 µm. (D) immagini da un lasso di tempo (2 film) di divisioni meiotiche tetraploide ovocita raffigurante una meiosi generalmente normale. Punte di freccia contrassegno corpi polari e una linea tratteggiata segna la corteccia dell'ovocita all'interno la spermateca e circondato da spermatozoi; t = tempo trascorso in minuti. Barra della scala è 10 µm. Clicca qui per visualizzare una versione più grande di questa figura.
| Genotipo | Tetraploide derivato (imposta di autosomi: n # di cromosomi x) * | Ceppo parentale (diploide) |
| meIs16 [pie-1p::mCherry:: sua-58 + unc-119(+)]; | MSC1 (4A:4 X) | MSC0 |
| ruIs57 [pie-1p::GFP::b-tubulina + unc-119(+)] | MSC2 (4A:3 X) | |
| MSC3 (4A:4 X) | ||
| MSC5 (4A:3 X) | ||
| MSC6 (4A:4 X) | ||
| MSC8 (4A:4 X) | ||
| UNC-119(ED3) III; ddIs6; ddIs6 [tbg-1::GFP + unc-119(+)]; ltIs37; ltIs37 [pAA64; pie-1p::mCherry::HIS-58 + unc-119(+)] IV | MSC14 (4A:3 X) | TMR17 |
| MSC15 (4A:3 X) | ||
| MSC16 (4A:4 X) | ||
| SPO-11 (me44) / nT1 IV; + / nT1 [qIs51 [Ppes myo-2::gfp-10::gfp, PF22B7.9::gfp]] V | AV800& | AV776 |
| meIs8 [pie-1p::gfp::cosa-1 + unc-119(+)] II; | AV809& | AV727 |
| ltIs37 [pie-1p::mCherry:: sua-58 + unc-119(+)] IV; | ||
| ltIs38 [pie-1p::gfp::ph(PLC1delta1) + unc-119(+)] | ||
| meIs8 [pie-1p::gfp::cosa-1 + unc-119(+)] II; mnT12 (X; IV) | AV826& | AV695 |
| mIn1 [dpy-10(e128) mIs14 [myo-2::gfp pes-10::gfp]] / | AV810& | DR2078 |
| BLI-2(E768) unc-4(e120) II | ||
| ruIs32 [pie-1::GFP::H2B + unc-119(+)] III | AV822& | AZ212 |
| AV823& | ||
| C. briggsae - mfIs42 [Cel-sid-2 + Cel-myo-2::DsRed] | AV824& | JU1018 |
Tabella 1: tetraploide ceppi generati. * Dedotto segnando il numero di bivalenti (coppie omologhe collegate) e univalents (individuali omologhi) in ovociti prima le divisioni meiotiche oltre la proporzione dei maschi desiderato.
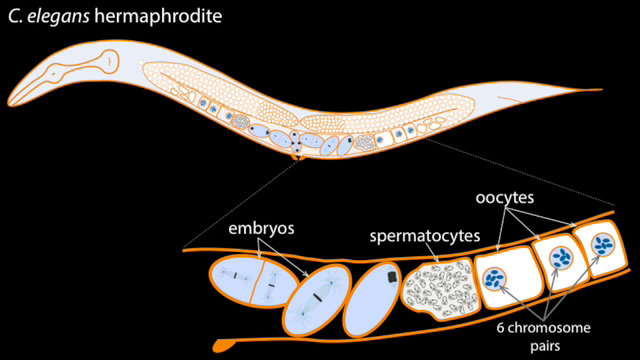
Movie 1: Screening per confermare se stabile Lon ceppi sono completo o parziale tetraploidi. Il film inizia con un diagramma di tipo selvaggio ermafrodita evidenziando la regione imaged (ovociti non fecondati) per identificare tetraploidi contando le coppie di cromosomi. Seguendo lo schema, una serie di proiezioni e filmati dello stack Z mostrare gonadi degli animali diploidi e tetraploidi fissati e DAPI macchiato o immagini di ceppi esprimendo istone Mcherry::H2B live. La selezione è fatta contando il numero di coppie di cromosomi omologhi collegato negli ovociti non fecondati. Conteggio di MCherry o DAPI corpi colorati avviene nell'ovocita non fecondato più vicino allo sperma memorizzazione spermateca "(ovocita-1"). I cromosomi in questo ovocita sono più condensati e separati uno da altro, consentendo più accurata dell'omologo coppie conteggi. Più di 10 animali per ceppo sono stati schermati per garantire i conteggi cromosomici ovocita-1 erano accurati. Spessore dello stack è di 0,2 µm. Clicca qui per visualizzare questo video. (Tasto destro per scaricare.)
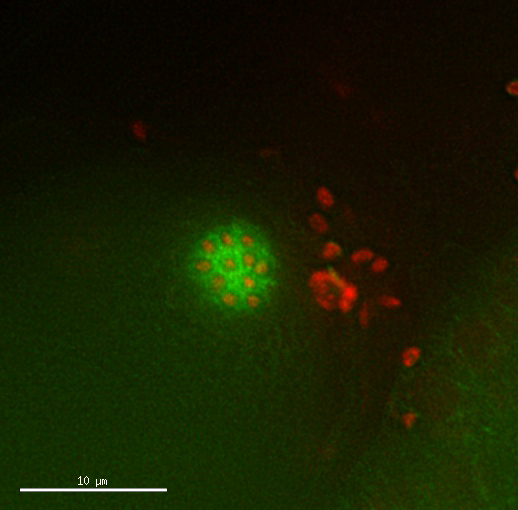
Movie 2: divisioni tetraploide ovocita appaiono normali. Lasso di tempo di divisione dell'ovocita di un ceppo tetraploide esprimendo istone Mcherry::H2B e GFP::β-tubulina. Temporizzazione e reticolo delle divisioni appaiono normali. Immagini scattate ogni 2,5 minuti per favore clicca qui per vedere questo video. (Tasto destro per scaricare.)
Discussione
Produzione di gameti aploidi di (n) è la chiave per generare uno zigote diploide (2n) al momento della fecondazione. Questa riduzione del genoma avviene durante la meiosi con due divisioni cellulari consecutive dopo una duplicazione del genoma singolo. Per generare aploide gameti, c. elegans, come con la maggior parte altri metazoi, segregano gli omologhi derivate maternamente e paterno in prima divisione, mentre sorella cromatidi da ciascun omologo segregano in seconda divisione. Uno modo quello intero genoma poliploidia si presenta in natura è attraverso la generazione di gameti che non riescono a metà della loro dimensione genoma durante la meiosi.
È stato conosciuto da oltre 50 anni che tetraploide c. elegans nematodi sono vitali e fertili. Nigon23e successivamente Madl e Herman22, generato e identificato una manciata di c. elegans tetraploidi interrompendo la segregazione del cromosoma meiotica utilizzando trattamenti shock termico e marcatori genetici, rispettivamente. Un ulteriore singolo ceppo tetraploide briggsae c. è stata derivata utilizzando questo protocollo 30 anni successive24. Questi tetraploidi sono stati utilizzati per indagare come c. elegans determinare se diventare maschi o ermafroditi, come ploidia regola la crescita e le dimensioni e per analizzare l'associazione e sinapsi in meiosi25,26, 38 , 39 , 40. Eppure questi ed altri studi che richiedono l'uso di specifici tetraploidi o triploidi ceppi sono stati limitati dalla difficoltà nel generare tetraploide ceppi da questo metodo.
Il protocollo descritto qui consente la generazione di stabile completo 4A, 4 X e parziale 4A, 3 X tetraploide Caenorhabditis del nematode ceppi da qualsiasi iniziale background genetico diploide o cariotipo senza l'uso di marcatori genetici.
Tetraploidy possono derivare da più di un meccanismo in c. elegans:
Madl e Herman ha suggerito che i ceppi tetraploidi che hanno generato probabilmente derivato da uno stato intermedio triploide. Loro ceppi sono stati ottenuti attraverso selezione nel corso di più generazioni o attraversando il presunto triploid intermedio con maschi diploidi22. I difetti nel cromosoma partizionamento nei mutanti di rec-8 che dà luogo a diploidi ovociti e spermatozoi suggeriscono un altro possibile meccanismo mediante il quale gli animali tetraploidi possono sorgere con il rec-8 RNAi schema27.
I rec-8 RNAi trattati ermafroditi potrebbero produrre ovociti diploidi e spermatociti, che darebbe luogo a tetraploidi animali al momento della fecondazione. Coerenza con questa possibilità è il fatto che alcuni dei hermaphrodites F2 clonato diedero origine alla stabile Lon ceppi nella prossima generazione, che suggerisce che i clonato ermafroditi Lon F2 dove già tetraploide. Nel regime di attraversamento, la prima generazione di rec-8 RNAi trattati ermafroditi è attraversata con i maschi non trattati. Spermatociti diploidi potrebbero ancora sorgere nei maschi, perché la croce è fatta alla presenza di batteri esprimendo rec-8 dsRNA e così, i maschi sono esposti a rec-8 RNAi durante l'accoppiamento per almeno 3 giorni. Di conseguenza, i poliploidi Lon nello schema interattivo potrebbero essersi formato dalla fecondazione di ovociti diploide di sperma diploide. Stabile tetraploide ceppi possono derivare da una fecondazione tra gameti diploidi o dall'incrocio triploidi animali contenenti gli ovociti di ploidy variabile con animali diploidi che producono spermatozoi aploidi.
Considerazioni importanti:
Self-contro regimi di fecondazione incrociata:
Il regime di auto-fertilizzazione rec-8 RNAi trattati F1 ermafroditi e lo schema che coinvolge incrocio di ermafroditi trattati con i maschi non trattati entrambi ha dato origine alla 4A, 4 X e 4A, 3 ceppi tetraploidi di X. Anche se più disomici erano inizialmente isolati dal regime di auto-fertilizzazione, più animali poliploidi erano sterili e quindi entrambi gli schemi sono allo stesso modo efficienti nel produrre ceppi stabile tetraploide. Il motivo per il successo aumentato e la sterilità nel regime di auto-fertilizzazione rimane sconosciuto. Sebbene entrambi gli schemi sono efficienti allo stesso modo, il regime di auto-fertilizzazione è più facile in quanto non richiede l'isolamento dei maschi per l'accoppiamento. Inoltre, quando il ceppo di interesse è inefficiente o difettoso all'accoppiamento, il regime di auto-fertilizzazione sarebbe preferibile. Lo schema interattivo può essere utilizzato per la generazione di complessi tetraploidi contenente più di due versioni di un singolo cromosoma.
Modifiche e limitazioni:
Attualmente, questo protocollo coinvolge rec-8 trattamento RNAi alimentando batteri esprimendo dsRNA per il gene di rec-8 . Così, questo protocollo non funziona in specie Caenorhabditis insensibile alla RNAi, alimentando, o in mutanti difettosi nella diffusione ambientale o sistemica di RNAi tra tessuti41,42,43. Questo problema potrebbe essere risolto potenzialmente introducendo RNAi trattamento di iniezione diretta di dsRNA di interesse direttamente nella linea germinale.
Triploidi animali devono essere generati incrociando un tetraploide a un animale diploide da cui è stata derivata, perché questo schema non genera stabile ceppi triploide44,45. Solo il 15% delle uova generato da triploidi tratteggio, e loro progenie sono per lo più sterile progenie a causa di aneuploidia. Inoltre, pochi superstita prole fertile tendono ad essere completo o vicino diploidi entro un paio di generazioni. Questo è probabilmente, almeno in parte, perché gli ovociti sono parzialmente correggere Trisomia segregando il terzo cromosoma nel corpo polare nella prima divisione meiotica.
Un limite insuperabile di questo protocollo è che non funziona per fare tetraploidi di mutanti che influiscono sui componenti dei macchinari RNAi perché sono resistenti a RNAi trattamento46.
Risoluzione dei problemi:
REC-8 RNAi:
Alcune considerazioni sono cruciali per questo protocollo avere successo. Il primo consiste nell'utilizzare IPTG fresca e preparata IPTG NMG piastre per l'induzione della produzione di dsRNA rec-8 nei batteri batteri HT115 che trasportano il clone di rec-8 (W02A2.6). IPTG è sensibile alla luce ed è importante per ridurre l'esposizione alla luce a piastre. Piastre di IPTG possono essere conservati fino a un mese a 4 ° C al buio. In secondo luogo, i HT115 ceppi batterici RNAi rec-8 (W02A2.6) dalla libreria Ahringer (Kamath e Ahringer 2003) ha prodotto un fenotipo rec-8 più forte rispetto a altri disponibili rec-8 HT115 cloni.
Manutenzione tetraploide ceppo:
Tetraploide ceppi crescono molto lentamente e producono al massimo 50 progenie per generazione47. Tutti i ceppi identificati tetraploidi sono relativamente stabili, ma possono abbattere e diventare diploide quando ha sottolineato (comunicazione personale di Jonathan Hodgkin e le nostre osservazioni non pubblicate). Pertanto, è importante notare che quando tetraploide ceppi sono coltivati a 25 ° C, calore-scioccato, affamato, o congelati e scongelati, essi possono rapidamente ripristinare diploidia, quindi è importante continuare a prendere gli animali Lon quando questi ceppi di sbrinamento o quando esponendo questi ceppi a condizioni di stress che possono causare loro di tornare.
Possibili applicazioni:
Indagine sull'effetto o il ruolo della poliploidizzazione intero genoma in evoluzione, ciclo cellulare, espressione genica e sviluppo negli organismi multicellulari ha fatto affidamento sui confronti tra: cellule dell'organismo che contengono diverso ploidia, stessa cella tipi in strettamente specie con differenti ploidy, o che hanno subito eventi poliploidizzazione evolutivamente recenti e isolamento fisico3,5,6,7,8 ,11,18,19,20,48,49,50. Anche se tetraploidi possono essere derivate da sistemi modello zebrafish e mouse, loro progenie sono sterili o embrionalmente letale16,17. Inoltre, questi sistemi di modello hanno cicli di vita lunghi rispetto al c. elegans, e i metodi disponibili per generare animali poliploidi sono complesse e inefficiente. Di conseguenza, ceppi di c. elegans derivati da questo metodo sarà strumentale per promuovere qualsiasi indagine sugli effetti e ruoli di intero genoma poliploidia negli organismi multicellulari.
Poiché un triploid può essere derivata da un tetraploide attraversando il tetraploide per l'originale diploide, un confronto tra triploidi diploidi e tetraploidi che differiscono solo nel numero di copie del genoma, fornisce un'opportunità unica e senza precedenti per valutazione equivalente animali/organi/celle con dimensioni differenti del genoma (o gene dose). La flessibilità e la facilità dello schema descritto qui ci ha permesso di generare decine di ceppi tetraploide dal diverso background genetico diploide o i karyotypes. Alcuni di questi ceppi sono stati già utilizzati per meccanismi di query di accoppiamento di cromosomi omologhi e synapsis durante meiosi27.
Wild type e mutanti ceppi tetraploide portando marcatori fluorescenti fornirà nuove prospettive di indagine per comprendere le relazioni fra il rapporto di dimensioni e nucleare/cytosol genoma animale intracellulare/cellulare/organo e tutta scalatura, intero genoma poliploidizzazione sull'adattamento, speciazione, dose genica ed espressione e lo sviluppo di organi e tessuti. Oltre allo studio della scala biologica, la generazione di ceppi tetraploide sarà significativamente ulteriori query di fondamentali domande biologiche rilevanti per instabilità genomica segnalazione, extracellulare, endoreduplicazione, intero genoma duplicazione, dosaggio genico, adattamento allo stress, lo sviluppo della resistenza ai farmaci e speciazione meccanismo.
Dichiarazioni
Gli autori non hanno nulla a rivelare.
Ringraziamenti
Ringraziamo il centro di genetica di Caenorhabditis (finanziato dal National Institute of Health (NIH) ufficio di ricerca infrastrutture programmi P40 OD010440) per i ceppi. Gli autori vorrei ringraziare Baptiste Roelens ed Eli Lessman, per averci fornito un feedback costruttivo e il laboratorio di Mano a CCNY, CUNY per l'uso del proprio laboratorio per parte delle riprese e per la loro assistenza. Questo lavoro è stato supportato da un premio di PSC-CUNY TRADB-46-113 e NIH concedere 1SC2GM118275-01. M.S. parzialmente è stata sostenuta da un Istituto canadese di postdoctoral fellowship salute (CIHR) ed E.K. è stato sostenuto dalla dorsale del NIH/NIGMS concedere GM062981.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Microscopio da dissezione | Motic Microscopy | SMZ171 | |
| Name | Company | Numero di catalogo | Comments |
| >Piastre di agar NGM | |||
| 60 mm x 15 mm Piastre di Petri, sterili | Tritech Research | T3305 | |
| Piastre di Petri da 35 mm x 15 mm, | Tritech Research | T3500 | |
| VWR | 89140-850 | da 5 kg | |
| VWR | 97061-278 | di grado biotecnologico | |
| , BD Bacto | VWR | 90000-368 | |
| ampicillina triidrato | VWR | 97062-300 | |
| IPTG, senza diossano | Thermo Scientific | R0391 | |
| Nome | >Azienda | Numero di catalogo | Comments |
| >Growth Culture | |||
| LB Lennox Broth | IBI Scientific | 89126-176 | |
| Nome | Azienda | Numero di catalogo | Comments |
| LB Piastre di Agar | |||
| LB Agar Lennox | IBI Scientific | 89126-182 | |
| Name | Company | Numero di catalogo | Comments |
| Antibiotics | |||
| Ampicillina Triidrato | VWR | 97062-300 | |
| Tetraciclina cloridrato | Fisher Scientific | BP912-100 | |
| Nome | Azienda | Numero di catalogo | Comments |
| Staining | |||
| Hoechst 33258, Pentahydrate | Biotium | 40045 | |
| DAPI | Biotium | 40011< | |
| strong>Name | Company | Numero di catalogo | Comments |
| Fissazione dell'etanolo | |||
| Etanolo, puro, 190 Proof (95%), USP | Koptec, VWR | 89125-166 | |
| Name | Azienda | Numero di catalogo | Comments |
| M9 Tampone | |||
| Cloruro di sodio, grado biotecnologico | VWR | 97061-278 | |
| Fosfato di potassio, monobasico anidro Grado | VWR | 97062-346 | |
| Fosfato di sodio, monobasico diidrato | Fisher Scientific | AC271750025 | |
| Nome | Azienda | Numero di catalogo | Comments |
| RNAi Cloni | |||
| HT115 batteri che esprimono rec-8 dsRNA | Fonte Bioscience | W02A2.6 | |
| HT115 batteri che esprimono rec-8 dsRNA | Dharmacon | RCE1182-202299820 |
Riferimenti
- Ricke, R. M., van Ree, J. H., van Deursen, J. M. Whole chromosome instability and cancer: a complex relationship. Trends Genet. 24, 457-466 (2008).
- Frawley, L. E., Orr-Weaver, T. L. Polyploidy. Curr Biol. 25, R353-R358 (2015).
- Orr-Weaver, T. L. When bigger is better: the role of polyploidy in organogenesis. Trends Genet. 31, 307-315 (2015).
- Otto, S. P. The evolutionary consequences of polyploidy. Cell. 131, 452-462 (2007).
- Davoli, T., de Lange, T. The Causes and Consequences of Polyploidy in Normal Development and Cancer. Annu Rev Cell Dev Biol. 27, 585-610 (2011).
- Adams, K., Wendel, J. Novel patterns of gene expression in polyploid plants. Trends Genet. 21, 539-543 (2005).
- Adams, K. L., Wendel, J. F. Polyploidy and genome evolution in plants. Curr Opin Plant Biol. 8, 135-141 (2005).
- Berman, J. Ploidy plasticity: a rapid and reversible strategy for adaptation to stress. FEMS Yeast Res. 16, (2016).
- Levy, D. L., Heald, R. Mechanisms of Intracellular Scaling. Annu Rev Cell Dev Biol. 28, 113-135 (2012).
- Breneman, A., Cande, J., Dunn, J., Burbank, K., O'toole, E. Genome-wide genetic analysis of polyploidy in yeast. Nature. 443, 541-547 (2006).
- Kuznetsova, A. Y., et al. Chromosomal instability, tolerance of mitotic errors and multidrug resistance are promoted by tetraploidization in human cells. Cell Cycle. 14, 2810-2820 (2015).
- Taylor, J. S., Van de Peer, Y., Meyer, A. Genome duplication, divergent resolution and speciation. Trends Genet. 17, 299-301 (2001).
- Younis, A., Hwang, Y. -J., Lim, K. -B. Exploitation of induced 2n-gametes for plant breeding. Plant Cell Rep. 33, 215-223 (2014).
- Ihssen, P. E., McKay, L. R., McMillan, I., Phillips, R. B. Ploidy Manipulation and Gynogenesis in Fishes: Cytogenetic and Fisheries Applications. Trans Am Fish Soc. 119, 698-717 (2011).
- Stanley, J. G., Allen, S. K., Hidu, H. Polyploidy induced in the American oyster, Crassostrea virginica, with cytochalasin B. Aquaculture. 23, 1-10 (1981).
- Eakin, G. S., Behringer, R. R. Tetraploid development in the mouse. Dev Dyn. 228, 751-766 (2003).
- Heier, J., Takle, K. A., Hasley, A. O., Pelegri, F. Ploidy manipulation and induction of alternate cleavage patterns through inhibition of centrosome duplication in the early zebrafish embryo. Dev Dyn. 244, 1300-1312 (2015).
- Arnold, B., Kim, S. -T., Bomblies, K. Single Geographic Origin of a Widespread Autotetraploid Arabidopsis arenosa Lineage Followed by Interploidy Admixture. Mol Biol Evol. 32, 1382-1395 (2015).
- Session, A. M., et al. Genome evolution in the allotetraploid frog Xenopus laevis. Nature. 538, 336-343 (2016).
- Gallardo, M. H., Bickham, J. W., Honeycutt, R. L., Ojeda, R. A., Köhler, N. Discovery of tetraploidy in a mammal. Nature. 401, 341(1999).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, Suppl . 5-16 (1987).
- Madl, J. E., Herman, R. K. Polyploids and sex determination in Caenorhabditis elegans. Genetics. 93, 393-402 (1979).
- Nigon, V. Polyploidie experimentale chez un nematode libre, Rhabditis elegans maupas. Bull Biol Fr Belg. 95, 187-225 (1951).
- Woodruff, G. C., Eke, O., Baird, S. E., Félix, M. -A., Haag, E. S. Insights Into Species Divergence and the Evolution of Hermaphroditism From Fertile Interspecies Hybrids of Caenorhabditis Nematodes. Genetics. 186, 997-1012 (2010).
- Mlynarczyk-Evans, S., Roelens, B., Villeneuve, A. M. Evidence That Masking of Synapsis Imperfections Counterbalances Quality Control to Promote Efficient Meiosis. PLoS Genet. 9, e1003963(2013).
- Lozano, E., Sáez, A. G., Flemming, A. J., Cunha, A., Leroi, A. M. Regulation of Growth by Ploidy in Caenorhabditis elegans. Curr Biol. 16, 493-498 (2006).
- Roelens, B., Schvarzstein, M., Villeneuve, A. M. Manipulation of Karyotype in Caenorhabditis elegans Reveals Multiple Inputs Driving Pairwise Chromosome Synapsis During Meiosis. Genetics. 201, 1363-1379 (2015).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Severson, A. F., Ling, L., van Zuylen, V., Meyer, B. J. The axial element protein HTP-3 promotes cohesin loading and meiotic axis assembly in C. elegans to implement the meiotic program of chromosome segregation. Genes Dev. 23, 1763-1778 (2009).
- Kamath, R. S., Ahringer, J. Genome-wide RNAi screening in Caenorhabditis elegans. Methods. 30, 313-321 (2003).
- Wood, W. B. The Nematode Caenorhabditis Elegans. , Cold Spring Harbor Laboratory Press. New York. (1988).
- MacQueen, A. J., et al. Chromosome Sites Play Dual Roles to Establish Homologous Synapsis during Meiosis in C. elegans. Cell. 123, 1037-1050 (2005).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Schvarzstein, M., Wignall, S. M., Villeneuve, A. M. Coordinating cohesion, co-orientation, and congression during meiosis: lessons from holocentric chromosomes. Genes Dev. 24, 219-228 (2010).
- Kim, S., Spike, C., Greenstein, D. Germ Cell Development in C. elegans. , Springer. New York, NY. 277-320 (2013).
- Peters, N., et al. Control of mitotic and meiotic centriole duplication by the Plk4-related kinase ZYG-1. J Cell Sci. 123, 795-805 (2010).
- Pasierbek, P. A Caenorhabditis elegans cohesion protein with functions in meiotic chromosome pairing and disjunction. Genes Dev. 15, 1349-1360 (2001).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, 5-16 (1987).
- Flemming, A. J., Shen, Z. -Z., Cunha, A., Emmons, S. W., Leroi, A. M. Somatic polyploidization and cellular proliferation drive body size evolution in nematodes. Proc Natl Acad Sci U S A. 97, 5285-5290 (2000).
- Meneely, P. M. Sex determination in polyploids of Caenorhabditis elegans. Genetics. 137, 467-481 (1994).
- Whangbo, J. S., Hunter, C. P. Environmental RNA interference. Trends Genet. 24, 297-305 (2008).
- Imae, R., Dejima, K., Kage-Nakadai, E., Arai, H., Mitani, S. Endomembrane-associated RSD-3 is important for RNAi induced by extracellular silencing RNA in both somatic and germ cells of Caenorhabditis elegans. Sci Rep. 6, 28198(2016).
- Tijsterman, M., May, R. C., Simmer, F., Okihara, K. L., Plasterk, R. H. A. Genes required for systemic RNA interference in Caenorhabditis elegans. Curr Biol. 14, 111-116 (2004).
- Cortes, D. B., McNally, K. L., Mains, P. E., McNally, F. J. The asymmetry of female meiosis reduces the frequency of inheritance of unpaired chromosomes. Elife. 4, e06056(2015).
- Vargas, E., et al. Autosomal Trisomy and Triploidy Are Corrected During Female Meiosis in Caenorhabditis elegans. Genetics. 207, 911-922 (2017).
- Tabara, H., et al. The rde-1 gene, RNA interference, and transposon silencing in C. elegans. Cell. 99, 123-132 (1999).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. , University of Oxford. (2005).
- Schoenfelder, K. P., Fox, D. T. The expanding implications of polyploidy. J Cell Biol. 209, 485-491 (2015).
- Levy, D. L., Heald, R. Biological Scaling Problems and Solutions in Amphibians. Cold Spring Harb Perspect Biol. 8, a019166(2015).
- Taylor, J. S., Van de Peer, Y., Braasch, I., Meyer, A. Comparative genomics provides evidence for an ancient genome duplication event in fish. Philos Trans Royal Soc B. 356, 1661-1679 (2001).
Ristampe e permessi
