Questo protocollo descrive il flusso di lavoro per l'etichettatura metabolica di cellule senescenti e non in divisione con SILAC pulsato, analisi di spettrometria di massa non mirata e un calcolo semplificato delle emivite proteiche.
Articolo metodologico
Misurazione dei tassi di turnover proteico in cellule coltivate senescenti e non in divisione con etichettatura metabolica e spettrometria di massa
In questo articolo
Sommario
Abstract
Prove crescenti hanno dimostrato che l'accumulo di cellule senescenti nel sistema nervoso centrale contribuisce a disturbi neurodegenerativi come l'Alzheimer e il Parkinson. La senescenza cellulare è uno stato di arresto permanente del ciclo cellulare che si verifica in genere in risposta all'esposizione a stress sub-letali. Tuttavia, come altre cellule non in divisione, le cellule senescenti rimangono metabolicamente attive e svolgono molte funzioni che richiedono richieste trascrizionali e traslazionali uniche e cambiamenti diffusi nei proteomi intracellulari e secreti. Capire come la sintesi proteica e i tassi di decadimento cambiano durante la senescenza può illuminare i meccanismi alla base della senescenza cellulare e trovare potenziali vie terapeutiche per le malattie esacerbate dalle cellule senescenti. Questo articolo descrive un metodo per la valutazione su scala proteome delle emivite proteiche in cellule non in divisione utilizzando l'etichettatura di isotopi stabili pulsati da parte di amminoacidi in coltura cellulare (pSILAC) in combinazione con la spettrometria di massa. pSILAC comporta l'etichettatura metabolica di cellule con versioni stabili contenenti isotopi pesanti di amminoacidi. Accoppiato con i moderni approcci di spettrometria di massa, pSILAC consente la misurazione del turnover proteico di centinaia o migliaia di proteine in miscele complesse. Dopo l'etichettatura metabolica, la dinamica di turnover delle proteine può essere determinata in base all'arricchimento relativo di isotopi pesanti in peptidi rilevati mediante spettrometria di massa. In questo protocollo, viene descritto un flusso di lavoro per la generazione di colture di fibroblasti senescenti e fibroblasti quiescenti arrestati in modo simile, nonché un percorso temporale semplificato e a punto singolo pSILAC che massimizza la copertura dei tassi di turnover proteico previsti. Inoltre, viene presentata una pipeline per l'analisi dei dati della spettrometria di massa pSILAC e il calcolo user-friendly dei tassi di degradazione delle proteine utilizzando fogli di calcolo. L'applicazione di questo protocollo può essere estesa oltre le cellule senescenti a qualsiasi cellula in coltura non in divisione come i neuroni.
Introduzione
La senescenza è stata identificata per la prima volta come uno stato di arresto della crescita indefinito esibito da cellule primarie in coltura dopo aver raggiunto l'esaurimento replicativo1. Da allora è stato dimostrato che la senescenza può insorgere in risposta a numerosi insulti cellulari, tra cui stress genotossici, mitocondriali e oncogeni, tra gli altri2. Mentre la senescenza ha diversi ruoli fisiologicamente importanti, come la soppressione del tumore e la guarigione delle ferite, l'accumulo di cellule senescenti durante l'invecchiamento è associato a una serie di effetti deleteri sulla salute3, tra cui diverse condizioni neurodegenerative 4,5,6. La senescenza cellulare si verifica in più tipi di cellule cerebrali, tra cui i neuroni 7,8,9,10, gli astrociti11, la microglia12 e i precursori degli oligodendrociti13, e contribuisce alla neurodegenerazione e alla disfunzione cognitiva. Gli oligomeri beta amiloidi, uno dei segni distintivi della malattia di Alzheimer14, hanno dimostrato di accelerare la senescenza neuronale 13,15,16. Un aumento della prevalenza di cellule senescenti è stato anche associato al morbo di Parkinson17, in particolare derivante da fattori di stress ambientali11,18. È importante sottolineare che l'eliminazione selettiva delle cellule senescenti nei modelli pre-clinici prolunga la durata della vita e mitiga una moltitudine di malattie legate all'età 3,5,12 e migliora i deficit cognitivi 8,11,12,13. Le cellule senescenti sono così emerse come promettenti bersagli terapeutici per il trattamento di molte condizioni legate all'età.
Gran parte dell'effetto dannoso delle cellule senescenti è causato dal fenotipo secretorio associato alla senescenza (SASP), una complessa miscela di molecole bioattive secrete da cellule senescenti che possono causare infiammazione locale, angiogenesi, distruzione della matrice extracellulare e propagazione della senescenza nel tessuto circostante 19,20,21 . Il SASP rappresenta anche un interessante fenomeno biologico di senescenza perché richiede un notevole sforzo trascrizionale e traslazionale durante uno stato di arresto del ciclo cellulare. Infatti, le cellule senescenti hanno dimostrato di mostrare diminuzioni nella biogenesi dei ribosomi 22,23,24 che dovrebbero ridurre la sintesi proteica. Invece, le cellule senescenti traducono robustamente alcune proteine, in particolare i fattori SASP, e influenzano il metabolismo del tessuto circostante25. Pertanto, vi è un notevole interesse nel comprendere come le cellule senescenti sottoposte a un arresto permanente del ciclo cellulare continuino a mantenere l'omeostasi proteica mentre allo stesso tempo esprimono in modo robusto fattori SASP e altre proteine selezionate.
Questo metodo descrive come utilizzare la spettrometria di massa e l'etichettatura isotopica pulsata stabile da parte degli amminoacidi in coltura cellulare (pSILAC) per misurare globalmente l'emivita delle proteine nelle cellule senescenti su scala proteomica. Nel SILAC tradizionale, le cellule coltivate sono completamente metabolicamente etichettate con isotopi non radioattivi pesanti e leggeri di amminoacidi per l'analisi a valle dell'abbondanza proteica. Questo metodo è stato precedentemente applicato per valutare i cambiamenti di abbondanza in modo completo e quantitativo nel SASP dei fibroblastiin coltura 26. In pSILAC, le cellule sono similmente metabolicamente etichettate con un impulso di isotopo pesante che segue la pre-etichettatura con isotopo leggero e quindi raccolte a uno o più intervalli di tempo. I tassi di incorporazione di isotopi pesanti in riferimento a isotopi leggeri preesistenti vengono quindi utilizzati per calcolare i tassi di turnover proteico relativo. Generalmente, gli isotopi di arginina e lisina sono usati perché la tripsina si scinde a quei residui; pertanto, tutti i peptidi della digestione standard conterranno potenzialmente l'etichetta pesante. Coppie di peptidi che differiscono solo per la presenza o l'assenza di lisina pesante o arginina sono chimicamente identiche e possono essere differenziate e quantificate da uno spettrometro di massa. A seguito dell'analisi della spettrometria di massa, i peptidi possono essere identificati come di nuova sintesi o preesistenti in base alla presenza o all'assenza dell'etichetta isotopica nelle identificazioni peptidiche risultanti. I tassi di turnover proteico possono quindi essere determinati adattando il rapporto tra peptidi pesanti (13 C-15N) su leggeri (12 C-14N) per una data proteina e modelli cinetici per la crescita esponenziale o il decadimento 27,28. pSILAC è stato utilizzato in diversi confronti di tassi di turnover proteico 29,30,31,32 ed è attualmente il metodo più completo e ad alto rendimento per la misurazione delle emivite proteiche.
Questo protocollo descrive in dettaglio la preparazione delle cellule senescenti in parallelo con cellule quiescenti arrestate dalla crescita in coltura, seguite dall'etichettatura metabolica con pSILAC. Le cellule vengono quindi raccolte, omogeneizzate in lisati ed elaborate per l'acquisizione e l'analisi della spettrometria di massa. I dati ottenuti dalla spettrometria di massa vengono quindi utilizzati per determinare le emivite proteiche utilizzando un metodo quantitativo semplificato che impiega un singolo punto temporale e calcoli di emivita eseguiti in un foglio di calcolo. Utilizzando questo approccio, le stime delle emivite proteiche possono essere misurate in modo completo e quantitativo che è più autentico per le condizioni cellulari imperturbabili rispetto ai protocolli che utilizzano bloccanti della sintesi proteica o del turnover.
Protocollo
1. Preparazione di cellule quiescenti e di cellule rese senescenti dall'esposizione a radiazioni ionizzanti (IR)
NOTA: La senescenza cellulare e la quiescenza possono essere indotte utilizzando più metodi, come descritto in dettaglio altrove 33,34,35. Gli stimoli utilizzati per indurre senescenza e quiescenza possono dipendere dal tipo di cellula di interesse e dalla questione biologica in esame. Le cellule utilizzate in questo studio sono disponibili in commercio.
- Scongelare i fibroblasti IMR-90 diploidi umani (~1 x 10⁶ cellule) da un crioviale e placcarli in 20 ml di DMEM integrati con il 10% di siero bovino fetale (FBS) (Tabella 1) su una piastra da 150 mm.
- Far crescere le cellule in condizioni fisiologiche di ossigeno (3% O2, 5% CO2, 37 °C) ed espandere le colture in mezzi contenenti FBS al 10% fino a quando non sono state stabilite repliche sufficienti per le cellule quiscenti e senescenti (si raccomandano almeno 3-5 repliche per condizione).
NOTA: La coltura di cellule a ossigeno fisiologico (3%) è ideale per le cellule primarie dei fibroblasti umani, ma le condizioni di coltura adeguate per altri tipi di cellule possono variare e devono essere determinate caso per caso. - Generare cellule senescenti esponendo le cellule proliferanti a 15 grigi (Gy) di radiazioni ionizzanti (IR).
NOTA: l'intensità dell'esposizione alle radiazioni può variare in base al tipo di cellula. Mentre 15 Gy è usato qui, 10 Gy è anche una dose di radiazioni comunemente usata per i fibroblasti; altre cellule, come i monociti, possono richiedere una dose a partire da 5 Gy. La dose è generalmente determinata empiricamente soppesando la vitalità rispetto all'induzione della senescenza.- Esporre le cellule al 40% -60% di confluenza all'IR in supporti contenenti il 10% di FBS.
- Dopo l'esposizione IR, passare a supporti freschi contenenti il 10% di FBS.
- Cambia supporto (20 ml, contenente il 10% di FBS) ogni 2 giorni per 8 giorni.
NOTA: le cellule sono esposte a IR a confluenza inferiore perché le cellule trattate con IR si espanderanno in coltura prima che cessino di crescere. In questo esperimento, le cellule non erano cellule divise durante l'instaurazione della senescenza e, mentre diventavano più confluenti, mostravano ancora marcatori cellulari senescenti al momento del raccolto. Nei fibroblasti, il fenotipo senescente si sviluppa entro 7-10 giorni.
- Generare cellule di controllo quiescenti cambiando il mezzo su cellule proliferanti placcate in mezzi contenenti lo 0,2% di FBS (fame sierica) (Tabella 1).
- Continuare a far crescere le cellule che saranno utilizzate per il controllo della quiescenza in mezzi contenenti il 10% di FBS fino al giorno 4 dopo che le cellule senescenti sono state esposte all'IR, dividendosi quando necessario.
- Il giorno 4 dopo IR, cambiare il mezzo delle cellule quiescenti a 20 ml di media contenenti lo 0,2% fbS (Tabella 1) e continuare a crescere per altri 6 giorni, cambiando media ogni 2 giorni.
NOTA: Anche nei mezzi contenenti lo 0,2% di FBS, i fibroblasti continueranno a crescere un po 'e potrebbero apparire confluenti entro la fine del raccolto. Come regola generale, mirare a raccogliere cellule quiescenti quando hanno raggiunto una confluenza simile a quella delle colture cellulari senescenti.
2. Etichettatura delle cellule per SILAC pulsato e raccolta dei lisati
- Cambiare i fluidi su entrambe le cellule senescenti e quiescenti (12 piastre) in SILAC Light (Tabella 1) e crescere per 2 giorni.
NOTA: questa etichettatura aiuta a ridurre il rumore di fondo poiché vi è una bassa abbondanza naturale di 13C e 15N. Questo passaggio può essere saltato in condizioni di limitazione dei reagenti, ma comporterà una leggera sovrastima della nuova sintesi proteica. - Sostituire i supporti con SILAC DMEM (Tabella 1) per l'etichettatura metabolica.
NOTA: I supporti SILAC DMEM sono appositamente formulati per contenere isotopi puramente leggeri o pesanti di arginina e lisina per l'etichettatura metabolica. Non devono essere sostituiti con formulazioni DMEM standard nelle sottofacce 2.2.1 o 2.2.2.- Per tre piastre senescenti e tre quiescenti, sostituire i supporti con 30 ml di LUCE SILAC (Tabella 1) e crescere per 3 giorni senza cambiare il supporto.
- Per un minimo di tre piastre senescenti e tre quiescenti, sostituire il supporto con 30 ml di SILAC Heavy (Tabella 1) e crescere per 3 giorni senza cambiare il supporto.
NOTA: A questo punto è disponibile un'opzione per raccogliere immediatamente quelle che saranno le cellule etichettate con la luce, piuttosto che etichettarle per altri 3 giorni. Per un singolo punto temporale, è preferibile etichettare celle pesanti e leggere per lo stesso periodo di questo protocollo per ridurre al minimo gli effetti batch.
- Staccare le cellule dalle piastre di coltura aggiungendo 5 ml di reagente di tripsina preriscaldato a ciascun piatto e incubando per 5 minuti a 37 °C.
- Risospese le cellule staccate in 5 mL dello stesso mezzo utilizzato per la coltura (SILAC Light o SILAC Heavy) per un volume totale di 10 mL.
- Raccogliere le cellule per l'estrazione dei lisati e la convalida dei marcatori di senescenza.
- Per ogni sospensione, aliquota 0,6 x 10⁶ di cellule in 2 mL di terreno contenente lo 0,2% di FBS in un piatto a 6 pozzetti (due piatti, uno per le cellule in coltura leggera SILAC e uno per le cellule coltivate silac heavy) e posto a 37 °C per l'incubazione notturna.
NOTA: Queste piastre (sottostep 2.5.1) saranno utilizzate per il rilevamento dell'attività della β-galattosidasi (SA-βGal) associata alla senescenza (fase 3.1). - Per ogni sospensione, aliquota 1 x 10⁶ di celle in un tubo microcentrifuga e rotazione in una centrifuga da tavolo a piena velocità per 1 minuto. Rimuovere il surnatante e risospese il pellet in 1 mL di fenolo; in questa fase, l'RNA può essere completamente purificato come descritto nel manuale del fornitore di fenolo o conservato a lungo termine a -80 °C.
ATTENZIONE: Il fenolo è corrosivo e deve essere maneggiato esclusivamente in un cappuccio con guanti e un cappotto da laboratorio.
NOTA: L'RNA estratto sarà utilizzato per il rilevamento di mRNA che codificano fattori SASP utilizzando la trascrizione inversa (RT) seguita da analisi quantitativa (q) PCR (RT-qPCR) in tempo reale (fase 3.2). Un altro test affidabile per l'induzione della senescenza è un test per l'incorporazione di 5-etiniledrossi uridina (EdU), che indica la presenza di cellule proliferanti. L'assenza di proliferazione può essere utilizzata per confermare la quiescenza e la senescenza. - Trasferire le cellule rimanenti sul ghiaccio e ruotare verso il basso a 300 x g e 4 °C.
- Per ogni sospensione, aliquota 0,6 x 10⁶ di cellule in 2 mL di terreno contenente lo 0,2% di FBS in un piatto a 6 pozzetti (due piatti, uno per le cellule in coltura leggera SILAC e uno per le cellule coltivate silac heavy) e posto a 37 °C per l'incubazione notturna.
- Rimuovere il surnatante e lavare le cellule due volte in 1 mL di PBS freddo per rimuovere la contaminazione da media/tripsina e proteine esogene dal siero bovino fetale dal terreno di coltura.
- Ruotare nuovamente le cellule, rimuovere il surnatante e procedere alla lisi.
- Risospesare i pellet di cella in 150 μL di urea 8 M 50 mM di Lisi tampone di lisi bicarbonato di ammonio appena preparato (Tabella 1) e mescolare mediante pipettaggio su e giù.
- Sonicare i lisati in un sonicatore ad acqua per 2,5 minuti con 30 s on/off a media potenza a 4 °C.
- Trasferire i lisati in un blocco termico preriscaldato a 95 °C e denaturare per 4 minuti.
- Spin down i lisati; i lisati possono ora essere conservati a -80 °C o utilizzati immediatamente per la quantificazione.
- Effettuare uno stock di 30 μL di diluizioni 1:10 per ogni lisato in Lysis Buffer.
- Misurare la concentrazione proteica con il BCA Assay Kit utilizzando una curva standard preparata in 1/10x Lysis Buffer diluito in ddH2O. I lisati possono ora essere conservati a -80 °C a tempo indeterminato.
3. Validazione della senescenza mediante attività β-galattosidasi associata alla senescenza (SA-βGal) e analisi RT-qPCR degli mRNA associati alla senescenza
Nota : il materiale di partenza per questi passaggi viene raccolto durante il passaggio 2.5
- Partendo dalle piastre a 6 pozzetti che sono state impostate nella sottostep 2.5.1, analizzare le cellule per l'attività SA-βGal utilizzando il kit di colorazione della senescenza β-galattosidasi seguendo il protocollo del produttore. Visualizza la colorazione sotto campo luminoso con il colore abilitato, come descritto in precedenza36.
NOTA: SA-βGal viene quantificato confrontando la percentuale di cellule positive (colore blu visibile) in condizioni di controllo senescenti rispetto a quelle quiescenti. Un minimo del 70% delle cellule dovrebbe essere SA-βGal positivo per una conferma positiva della senescenza. Le cellule di controllo quiescenti dovrebbero essere meno del 10% positive per SA-βGal. - Estrarre l'RNA dalla sospensione fenolica (sottostep 2.5.2) e analizzare utilizzando RT-qPCR per aumentare i livelli di mRNA che codificano fattori SASP (IL6, CXCL8, IL1B), marcatori del ciclo cellulare (CDKN2A / p16, CDKN1A / p21) e altri indicatori di senescenza (perdita di LMNB1 e PCNA).
NOTA: l'RNA è instabile e deve quindi essere maneggiato con apparecchiature prive di RNasi, guanti freschi e su ghiaccio se non diversamente indicato nel protocollo.- Partendo dalla sospensione fenolica, aggiungere 200 μL di cloroformio per 1 mL di fenolo e girare a 12.000 x g per 15 min a 4 °C.
- Rimuovere con attenzione la fase acquosa e aggiungere un volume 1:1 di isopropanolo, 15 μg di co-precipitante glicogeno, quindi incubare a 4 °C per 10 minuti per precipitare l'RNA.
- Dopo l'incubazione, pellet l'RNA mediante centrifugazione a 12.000 x g per 20 min a 4 °C seguito da un lavaggio in EtOH al 75% pari a 1 volume di fenolo utilizzato. Sospendere l'RNA in 50 μL di acqua distillata priva di nucleasi; L'RNA può essere immagazzinato a -80 °C a tempo indeterminato.
- Ai campioni di RNA, aggiungere 38 μL di acqua distillata priva di nucleasi, 10 μL di 10x tampone di reazione DNAse e 2 μL di DNasi I seguita da miscelazione.
NOTA: la generazione di una miscela comune di tutti i reagenti nella sottofase 3.2.3 moltiplicata per il numero di campioni da trattare per un'equa distribuzione ai campioni è la migliore pratica. - Incubare campioni di RNA trattati con DNasi I a 37 °C per 30 min.
- Rimuovere la DNasi dai campioni utilizzando 1 volume di una miscela di fenolo/cloroformio/alcool isoamilico (25:24:1) ruotando e ruotando alla massima velocità in una centrifuga da tavolo per 5 minuti; l'RNA sarà contenuto nella fase acquosa.
- Ripetere i sottopassaggi 3.2.2 e 3.2.3 per precipitare l'RNA. Risospeso in 20 μL di acqua distillata priva di nucleasi; L'RNA può essere immagazzinato a -80 °C a tempo indeterminato.
- Generare cDNA da RNA purificato incubando 0,5-1,0 μg di RNA purificato con 200 U di trascrittasi inversa, 100 primer casuali pMol e 10 mM di una miscela dNTP in 1x buffer di reazione fornito con la trascrittasi inversa; incubare per 10 min a 25 °C, poi per 30 min a 50 °C, con una fase finale di inattivazione a 85 °C per 5 min.
- Analizzare il cDNA dalla fase RT (sottostep 3.2.3) da cellule di controllo quiescenti e senescenti utilizzando l'analisi PCR quantitativa (q) in tempo reale per valutare il livello di marcatori mRNA noti per essere aumentati (CDKN2A / p16, CDKN1A / p21, IL1B, IL6 e CXCL8 mRNA) o diminuiti (LMNB1 e PCNA mRNA) con senescenza come descritto altrove. L'mRNA ACTB , che codifica la proteina di pulizia β-actina, è spesso un buon mRNA per normalizzare le differenze nel materiale in ingresso. I primer utilizzati sono nella Tabella 2.
NOTA: l'analisi RT-qPCR relativa dipende da ipotesi di uguale efficienza di legame tra le coppie di primer target e una coppia di primer di riferimento. Queste ipotesi dovrebbero essere testate per i nuovi set di primer come dettagliato altrove37. Inoltre, i marcatori di riferimento dovrebbero essere costanti tra i tipi di cellule confrontati e diverse opzioni aggiuntive per le cellule senescenti sono state precedentemente identificate38.
4. Digestione della tripsina in soluzione
NOTA: da questo punto in poi, è fondamentale utilizzare tamponi, solventi e sostanze chimiche di grado spettrometrico di massa per prevenire interferenze da impurità durante l'analisi della spettrometria di massa. Tutti i tamponi devono essere composti da ingredienti adatti all'analisi di spettrometria di massa tandem per cromatografia liquida, tra cui acqua e acetonitrile. Fare riferimento alla Tabella dei materiali per un elenco di sostanze chimiche e solventi adatti.
- Aliquota 50 μg di ciascun campione proteico in nuove provette e portare a volumi uguali con Lysis Buffer.
- Per ogni campione, aggiungere DTT a una concentrazione finale di 20 mM per ridurre i legami disolfuro.
- Incubare i campioni a 37 °C per 30 minuti con agitazione, quindi lasciare raffreddare i campioni a temperatura ambiente (RT, ~ 10 min).
- Aggiungere iodoacetamide ad una concentrazione finale di 40 mM per alchilare irreversibilmente i gruppi sulfidrilici che sono stati ridotti nella fase precedente. Incubare i campioni a RT al buio per 30 minuti.
- Diluire ogni campione al di sotto di 1 M di urea con un tampone composto da 50 mM di bicarbonato di ammonio. Controllare se il pH è di circa 8 pipettando una piccola quantità di campione su strisce di pH.
- Aggiungere 1 μg di tripsina a ciascun campione per 50 μg di proteina di partenza, o a 1:50 rapporto tripsina/proteina, in massa, se si digerisce una quantità proteica diversa. Ad esempio, 3 μg di tripsina verrebbero aggiunti per la digestione di 150 μg di proteine.
- Incubare i campioni durante la notte a 37 °C con agitazione per digerire le proteine in peptidi.
- Aggiungere acido formico all'1%, in volume, di ciascun campione per estinguere la digestione delle proteine.
NOTA: l'esperimento può essere messo in pausa qui. Congelare i campioni a -80 °C e proseguire con la fase successiva in un secondo momento, se necessario.
5. Pulizia del campione con estrazione in fase solida (SPE)
NOTA: questo protocollo di estrazione in fase solida richiede cartucce di estrazione in fase solida e una configurazione del collettore di vuoto. Altri protocolli equivalenti di estrazione in fase solida (SPE) possono essere eseguiti a discrezione del ricercatore prima dell'analisi della spettrometria di massa.
- Prepararsi per SPE posizionando le cartucce di estrazione in fase solida su un collettore di vuoto, utilizzando una cartuccia di estrazione per ciascun campione.
NOTA: fare riferimento alle linee guida del produttore per la quantità di assorbente da utilizzare nel protocollo SPE. Per 50 μg di campioni peptidici, si consiglia di utilizzare cartucce assorbenti da 10 mg. - Condizionare ogni cartuccia SPE aggiungendo 800 μL di SPE Elution Buffer (Tabella 1) e utilizzare l'aspirazione sotto vuoto per aspirare il solvente attraverso la cartuccia.
- Ripetere il passaggio 5.2.
- Equilibrare ogni cartuccia aggiungendo 800 μL di spe Wash Buffer (Tabella 1) e utilizzare l'aspirazione sottovuoto per aspirare il buffer attraverso le cartucce.
- Ripetere il passaggio 5.4 altre due volte per un totale di tre volte.
- Caricare i campioni di peptidi nelle cartucce SPE e utilizzare l'aspirazione sotto vuoto per prelevare campioni attraverso le cartucce.
NOTA: A questo punto, i peptidi sono legati all'assorbente all'interno delle cartucce. - Lavare ogni cartuccia con SPE Wash Buffer e utilizzare l'aspirazione sottovuoto per aspirare il tampone attraverso le cartucce.
- Ripetere il passaggio 5.7 altre due volte per un totale di tre lavaggi.
- Prima della fase di eluizione, disporre i tubi di raccolta all'interno del collettore di vuoto sotto ogni cartuccia, assicurando attentamente l'allineamento tra i tubi di raccolta e le cartucce.
- Per eluire i peptidi, aggiungere 800 μL di SPE Elution Buffer a ciascuna cartuccia ed eluire i peptidi in tubi di raccolta con aspirazione sottovuoto.
- Ripetere il passaggio 5.10 con 400 μL di SPE Elution Buffer.
- Rimuovere i campioni peptidici dal collettore a vuoto e asciugare completamente in un concentratore di vuoto (l'essiccazione richiede circa 3 ore).
NOTA: l'esperimento può essere messo in pausa qui. Congelare i campioni a -80 °C e continuare in un secondo momento, se necessario.
6. Analisi spettrometrica di massa ad acquisizione dipendente dai dati (DDA)
- Sospendere i campioni peptidici ad una concentrazione di 400 ng/μL in un tampone composto da acido formico allo 0,2% in acqua.
- Per aiutare nella risisolazione dei peptidi, ruotare i campioni per 5 min. Quindi, sonicare i campioni per 5 minuti in un sonicatore a bagnomaria.
- Pellet di qualsiasi materiale insolubile centrifugando campioni a 15.000 x g per 15 minuti a 4 °C. Trasferire i supernatanti peptidici in flaconcini di SM.
- Aggiungere gli standard peptidici di scelta del tempo di ritenzione indicizzato (iRT) a ciascun campione ad una concentrazione di 1:30 iRT:sample, in volume.
- Presentare i campioni per l'analisi proteomica utilizzando la spettrometria di massa tandem a cromatografia liquida (LC-MS/MS).
- Utilizzare le impostazioni LC-MS/MS consigliate per l'analisi non mirata da parte della struttura di spettrometria di massa. Le impostazioni di esempio per l'analisi sono mostrate nella Figura 3, configurate per l'analisi su uno spettrometro di massa Orbitrap accoppiato a un sistema di cromatografia nano liquida in modalità nano-flusso. Segue un esempio di protocollo.
- Caricare 1 μg (5 μL) di ciascun campione su una colonna trappola (1 cm di lunghezza x 100 μm di diametro) e lavarli con solvente di carico (Tabella 1) ad una portata di 10 μL/min per 5 min.
- Caricare i campioni su una colonna analitica (50 cm di lunghezza x 100 μm di diametro) con una portata di 400 nL/min.
- Eluire i peptidi su un gradiente lineare di 90 minuti con un solvente organico (0,2% di acido formico e 99,8% di acetonitrile) e solvente inorganico (0,2% di acido formico in 99,8% di acqua), che va dal 5% al 35% di solvente organico.
- Acquisire dati di spettrometria di massa in modalità dipendente dai dati con un ciclo continuo di scansioni di rilevamento MS1 (risoluzione 60.000, target AGC 3e6, tempo massimo di accumulo di 100 ms e intervallo di massa 400-1.600 m/z) seguito da 20 scansioni MS2 dipendenti dai dati (risoluzione 15.000, target AGC 1e5, tempo massimo di iniezione 25 ms e finestre di isolamento di larghezza 1,6 m/z) con frammentazione HCD (energia di collisione normalizzata del 27%).
- Dopo l'acquisizione MS di tutti i campioni, importare i file di spettrometria di massa grezza in uno strumento software di analisi proteomica della spettrometria di massa per l'identificazione e la quantificazione delle aree di picco peptidico.
NOTA: Per l'identificazione di peptidi e proteine in questo esperimento, è stato utilizzato lo strumento di ricerca del database Mascot con il database di sequenza del proteoma umano UniProt rivisto (PROTEOMA ID: UP000005640). I seguenti parametri di ricerca sono stati specificati in Mascot:- Quantazione: SILAC K+8 R+10 [MD] Enzima: Tripsina/p Modifica fissa: carbamidometile (C)
- Modifica variabile: acetyl (Protein N-term), Gln->pyro-Glu (N-term Q), Oxidation (M), Label:13C(6)15N(2) (K), Label:13C(6)15N(4) (R)
- Tolleranza alla massa peptidica: 10 ppm
- Tolleranza di massa del frammento: 0,08 Da
- Numero massimo di scollature mancate: 2
- Tutti i parametri non specificati erano predefiniti
- Quantificare le aree di picco peptidico per peptidi pesanti e leggeri nello strumento software di quantificazione del proteoma. Per la quantificazione delle aree di picco in questo esperimento, è stata utilizzata la piattaforma software Skyline gratuita e open source39,40. Esportare aree di picco di peptidi pesanti e leggeri per la stima delle emivite proteiche.
7. Calcolo delle emivite proteiche
- Aprire la cartella di lavoro di analisi SILAC (Tabella 3) al primo foglio denominato 1) Dati grezzi e incollare in ID UniProt, nomi di geni, aree di picco pesanti e aree di picco leggero nelle colonne indicate (SH = Senescente-Pesante, SL = Senescente-Luce, CH = Controllo (quiescente)-Pesante, CL = Controllo (quiescente)-Luce).
- Aprire i fogli 2-4 e assicurarsi che le colonne UniProt ID e Gene corrispondano al numero di proteine identificate dall'analisi (questi esperimenti hanno identificato 841 proteine). Il resto delle colonne si riempirà automaticamente di dati dopo che sono stati trascinati per coprire le proteine identificate.
- Aprire il quarto foglio denominato 4) Analisi e rimuovere le righe in cui le colonne G e H indicano che il campione è fuori portata; mantenere le righe che leggono entro l'intervallo. La trama del vulcano nel quinto foglio si popolerà automaticamente.
Risultati
Questo protocollo descrive un metodo per confrontare globalmente le emivite proteiche tra cellule di controllo quiescenti senescenti e non in divisione utilizzando pSILAC e punti temporali minimi. Questo protocollo descrive la generazione di cellule senescenti e quiescenti in coltura, l'etichettatura metabolica di cellule con isotopi stabili di arginina e lisina nell'arco di 3 giorni, quantificando l'abbondanza relativa di isotopi peptidici pesanti e leggeri mediante spettrometria di massa e un calcolo semplice e accessibile delle emivite proteiche utilizzando formule di foglio di calcolo (Figura 1). Questo metodo è altamente flessibile e può essere adattato a numerosi tipi di cellule e condizioni.
Come parte della generazione di cellule senescenti per questo protocollo, vengono utilizzati due metodi di convalida della senescenza: cellule SA-βGal-positive visualizzate al microscopio e livelli aumentati di marcatori senescenti quantificati utilizzando l'analisi RT-qPCR. La misurazione dei marcatori senescenti dovrebbe fornire chiare distinzioni tra cellule quiescenti e senescenti affinché i confronti delle due popolazioni cellulari siano considerati validi. Per l'attività di SA-βGal, le cellule senescenti dovrebbero apparire blu mentre le cellule di controllo quiescenti non hanno colore o hanno pochissimo colore (Figura 2A). Questo test può essere quantificato contando le cellule positive, colorate di blu come percentuale del numero totale di cellule, e quindi confrontando il tasso di positività percentuale tra il controllo quiescente e le cellule senescenti. È importante che questo protocollo venga eseguito contemporaneamente per il confronto di entrambi gli stati cellulari; L'attività di SA-βGal si basa sul pH della soluzione colorante, quindi i risultati possono variare sostanzialmente tra i saggi e devono essere considerati una misura qualitativa.
L'analisi RT-qPCR dei marcatori senescenti mostrerà alti livelli degli mRNA che codificano i fattori SASP (IL6, CXCL8, IL1B) e gli inibitori del ciclo cellulare (CDKN2A/p16, CDKN1A/p21) nella maggior parte dei modelli senescenti. Sebbene si preveda una certa variazione in base al tipo di cellula, alla condizione di coltura e all'induttore senescente 41,42, la maggior parte delle cellule senescenti mostra livelli superiori di cinque volte superiori di mRNA IL6, CXCL8 e CDKN1A / p21 rispetto alle cellule di controllo quiescenti; al contrario, i livelli di MRNA LMNB1 e PCNA, che codificano i marcatori di proliferazione, dovrebbero essere bassi o assenti nelle cellule senescenti rispetto alle cellule quiescenti (Figura 2B). Nel loro insieme, una percentuale significativa di positività a SA-βGal e l'espressione attesa di un pannello di marcatori di mRNA associati alla senescenza sono sufficienti per confermare l'induzione della senescenza in un esperimento.
L'elaborazione di campioni proteici per l'analisi della spettrometria di massa consiste nella digestione in soluzione (2 giorni) e nell'estrazione in fase solida (4-6 ore). Per eseguire analisi proteomiche non mirate, i peptidi risultanti vengono sottoposti all'analisi LC-MS/MS utilizzando l'acquisizione dipendente dai dati (DDA). Sugli strumenti Orbitrap, un metodo DDA può essere specificato nell'editor del metodo software dello strumento di spettrometria di massa. Le impostazioni dello spettrometro di massa utilizzate in questo studio sono mostrate nella Figura 3A. Le impostazioni della cromatografia liquida possono anche essere specificate all'interno dell'editor di metodi. Per questo studio è stato utilizzato un gradiente lineare di 90 minuti con fase organica crescente (acetonitrile) (Figura 3B). A seguito di un'acquisizione riuscita, la corrente ionica totale (TIC) dovrebbe contenere un segnale intenso durante la porzione di gradiente lineare del metodo (Figura 3C). Questo protocollo descrive un protocollo di esempio su uno strumento Orbitrap, ma il calcolo delle emivite proteiche può essere eseguito sui dati ottenuti da qualsiasi spettrometro di massa raccolto in modalità DDA, che è disponibile su diversi tipi di strumenti (ad esempio, Orbitraps e strumenti a tempo di volo) e fornitori. Le impostazioni di acquisizione saranno uniche per il tipo e la configurazione dello strumento utilizzato e si consiglia di utilizzare le impostazioni suggerite dalla struttura di spettrometria di massa. Questo metodo è anche compatibile con i metodi non DDA (SRM, PRM, DIA), purché le aree di picco cromatografiche quantitative per picchi pesanti e leggeri possano essere estratte dai file di dati grezzi e inserite nelle formule del foglio di calcolo.
I file di spettrometria di massa grezzi vengono cercati con uno dei tanti strumenti di ricerca di database proteomici disponibili per identificare peptidi e proteine. Ad esempio, questo studio ha utilizzato il motore di ricerca Mascot43. Per ottenere aree di picco cromatografiche per la quantificazione di peptidi pesanti e leggeri, i risultati della ricerca nel database vengono importati in un software proteomico in grado di aree di picco cromatografiche come Skyline39,40. L'esame dei cromatogrammi ionici estratti dei peptidi (Figura 4) rivelerà la proporzione relativa di segnali peptidici pesanti e leggeri. Una percentuale inferiore di segnale peptidico pesante rispetto al segnale peptidico leggero nelle cellule senescenti indica un tasso di turnover proteico più lento (Figura 4A) e un segnale peptidico pesante più elevato rispetto alla luce indica un tasso di turnover proteico più veloce (Figura 4B). I campioni non etichettati dovrebbero mostrare poco o nessun segnale peptidico pesante. Qualsiasi segnale peptidico pesante apparente nei campioni non etichettati è considerato rumore di fondo e verrà sottratto durante i calcoli finali. La quantificazione delle aree di picco cromatografiche per peptidi leggeri e pesanti per tutte le condizioni di trattamento ed etichettatura deve essere esportata per il successivo calcolo dei tassi di turnover proteico e l'analisi statistica.
Utilizzando l'analisi a singolo punto temporale, la quantificazione delle emivite proteiche è semplice da eseguire e può essere eseguita comodamente in fogli di calcolo. Nella Tabella 3 sono state calcolate le emivite per 695 proteine identificate dall'analisi di spettrometria di massa. Partendo dall'abbondanza di isotopi pesanti e leggeri a livello proteico per ogni proteina nei campioni (input per la scheda tecnica grezza 1 ), un isotopo pesante percentuale (chiamato Ratio, R) viene quindi calcolato automaticamente sul foglio intitolato 2) Rapporto H | H + L. In questa fase, la R da campioni etichettati pesanti viene normalizzata sottraendo la R da campioni non etichettati per produrre una R finale per i triplicati quiescenti e senescenti. Poiché i campioni non etichettati non dovrebbero avere alcun isotopo pesante aggiunto esogenamente, vengono utilizzati per eliminare il segnale di fondo. Da R, il kdeg (tasso di turnover) viene calcolato utilizzando la seguente formula:
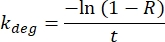
L'emivita (H, in giorni) è determinata per ogni proteina nel controllo quiescente e nei triplicati senescenti (foglio intitolato 3) Emivita (giorni)) utilizzando la seguente formula:

Queste emivite vengono quindi mediate tra i triplicati quiescenti e senescenti per generare un'emivita media quiescente e senescente per ciascuna proteina e un valore p. Le emivite calcolate vengono quindi filtrate per valori negativi, che si verificano quando il segnale pesante proveniente da celle etichettate con luce (lo sfondo) è maggiore del segnale pesante proveniente da celle etichettate pesantemente. Questo filtraggio ha portato a 707 proteine da 841 identificate con emivite valide per i risultati qui presentati.
L'emivita viene quindi riportata come un rapporto log2 di celle di controllo senescenti su quiescenti (log2FC) e tracciata in un grafico vulcanico (Figura 5). Ad esempio, osservando il foglio di analisi 5), la proteina del recettore della trombina II della coagulazione (F2R) può essere vista avere un'emivita nelle cellule quiescenti di 0,51 giorni (colonna B) e un'emivita nelle cellule senescenti di 1,07 giorni (colonna C) che ha prodotto un log2FC di ~ 1,06 (colonna D) con un valore p di 0,001.
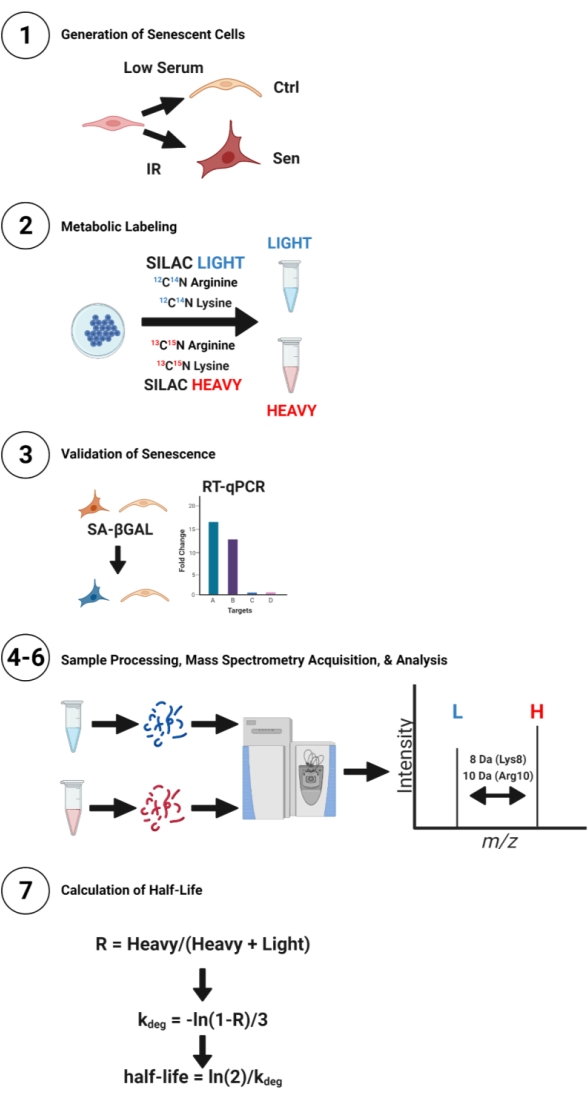
Figura 1: Diagramma del flusso di lavoro pSILAC per celle di controllo senescenti e quiescenti. I fibroblasti IMR-90 umani sono stati utilizzati per preparare colture cellulari quiescenti (a basso siero) o senescenti (IR) per il confronto delle emivite proteiche. Le cellule sono state quindi etichettate con SILAC Light o SILAC Heavy media con arginina isotopica e lisina per 3 giorni. I lisati sono stati estratti dalle cellule, digeriti, dissalati e analizzati utilizzando la spettrometria di massa. I picchi isotopici peptidici pesanti e leggeri corrispondono rispettivamente ai peptidi appena sintetizzati e preesistenti. Le emivite sono state calcolate usando un'equazione per il decadimento esponenziale. Fare clic qui per visualizzare una versione più grande di questa figura.
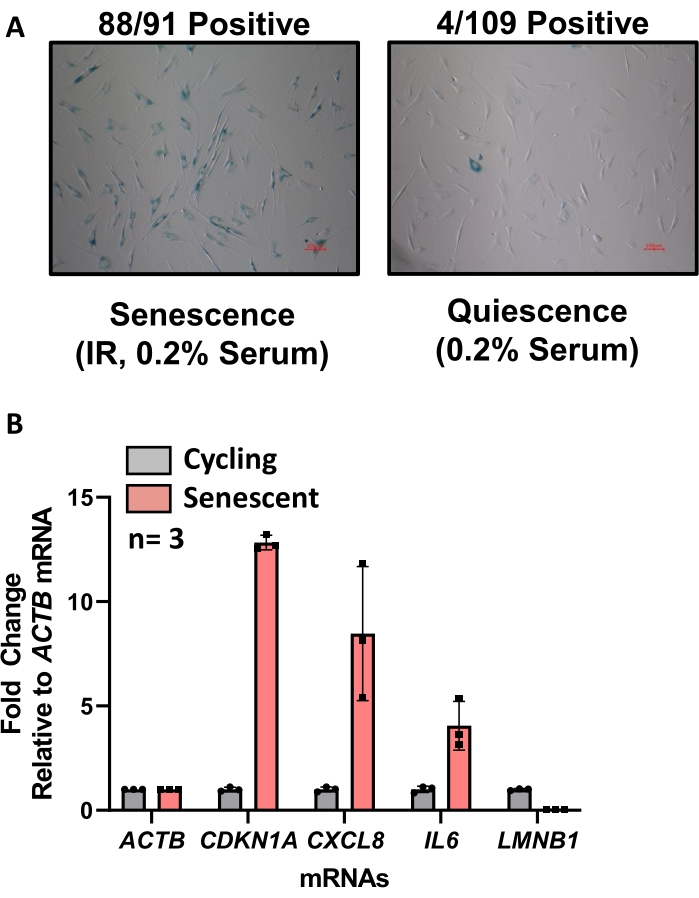
Figura 2: Validazione dei fenotipi senescenti mediante analisi SA-βGal e RT-qPCR. (A) Le cellule senescenti e quiescenti vengono ripiazionate al momento della raccolta in una piastra a 6 pozzetti e colorate per SA-βGal utilizzando il kit di colorazione SA-βGal. Il colore blu nel corpo cellulare è positivo per la senescenza. Le immagini sono scattate in campo luminoso con colore a ingrandimento 10x, marcatore di dimensioni in rosso. (B) Analisi RT-qPCR che confronta cellule senescenti (rosse) e cellule cicliche (grigie) da un esperimento non correlato. Gli aumenti dei livelli di mRNA CDKN1A/p21, CXCL8 e IL6 sono indicativi della senescenza, così come la diminuzione dei livelli di mRNA LMNB1 . Fare clic qui per visualizzare una versione più grande di questa figura.
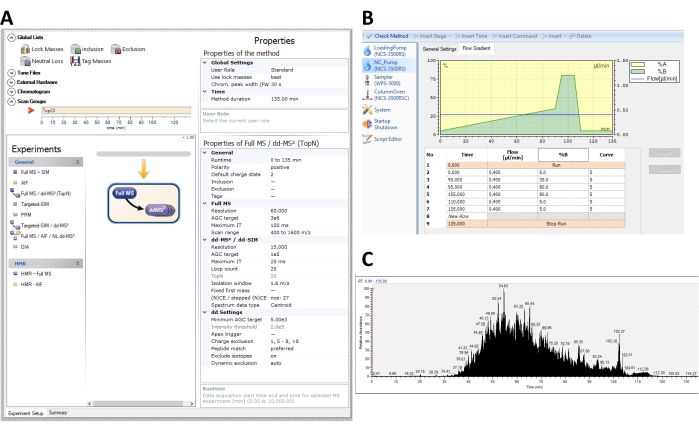
Figura 3: Metodi rappresentativi per scansioni di acquisizione dipendente dai dati (DDA) e gradiente di cromatografia liquida di colture pSILAC sullo spettrometro di massa orbitrap Q-Exactive HF. (A) Impostazioni dello strumento consigliate nel software dello strumento per l'analisi dipendente dai dati di lisati di cellule intere da un esperimento pSILAC. (B) Esempio di impostazioni del gradiente di flusso della cromatografia liquida. I peptidi vengono eluiti su un gradiente lineare di 90 minuti che va dal 5% al 35% di tampone B (0,2% di acido formico e 99,8% di acetonitrile), seguito da un lavaggio di 10 minuti con tampone B all'80% e 25 minuti di equilibrio con tampone B al 5% (C) Un cromatogramma ionico totale rappresentativo (TIC) di un'acquisizione spettrometrica di massa di peptidi di fibroblasti IMR-90 acquisiti con le impostazioni specificate. Fare clic qui per visualizzare una versione più grande di questa figura.
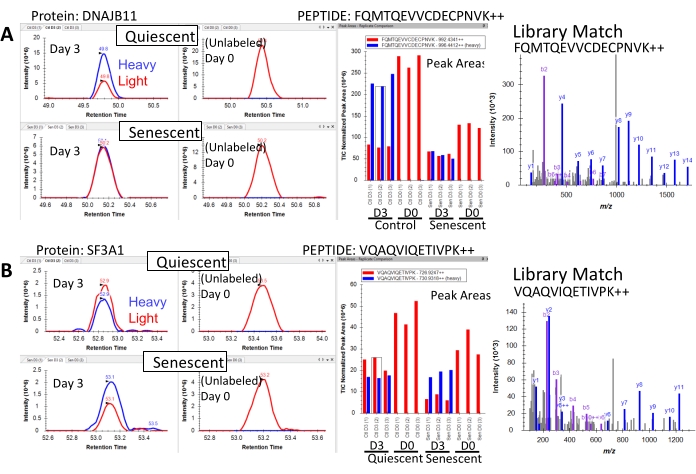
Figura 4: Cromatogrammi ionici estratti rappresentativi di peptidi con turnover alterato durante la senescenza. (A) Aree di picco cromatografiche del peptide FQMTQEVVCDECPNVK++ dalla proteina DnaJ omologo sottofamiglia B membro 11 (DNAJB11) in cellule senescenti e non senescenti. Dopo 3 giorni di SILAC, le cellule senescenti incorporano isotopi meno pesanti in questo peptide rispetto alle cellule quiescenti (non senescenti), come indicato da una riduzione dell'area di picco del peptide contenente isotopi pesanti (blu) rispetto al peptide leggero (rosso), indicando che questo peptide ha ridotto il turnover nelle cellule senescenti. (B) Aree di picco cromatografiche del peptide VQAQVIQETIVPK++ dalla proteina Splicing Factor 3a Subunità 1 (SF3A1) in cellule senescenti e non senescenti. Dopo 3 giorni di SILAC, le cellule senescenti incorporano una percentuale maggiore di isotopo pesante in questo peptide rispetto alle cellule quiescenti (non senescenti), come indicato da una riduzione dell'area di picco del peptide contenente isotopi pesanti (blu) rispetto al peptide leggero (rosso), indicando che questo peptide ha aumentato il turnover nelle cellule senescenti. Le condizioni non etichettate (Giorno 0) non mostrano alcuna incorporazione di isotopi pesanti per entrambi i peptidi, come previsto. Fare clic qui per visualizzare una versione più grande di questa figura.
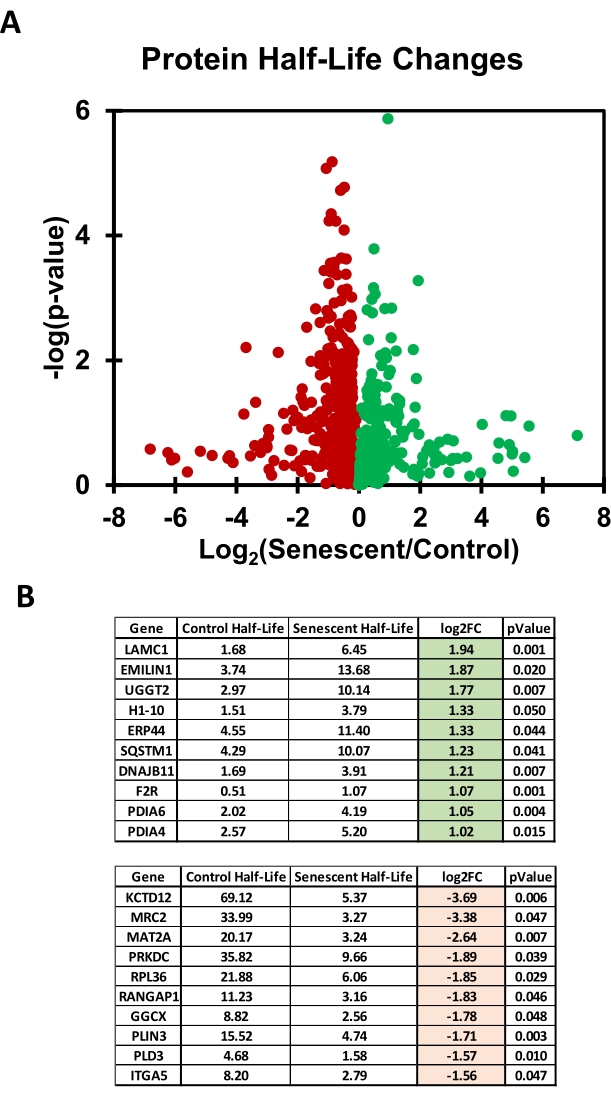
Figura 5: Confronto delle emivite proteiche in cellule senescenti e quiescenti determinate dall'etichettatura pSILAC. (A) Grafico del vulcano che mostra il rapporto log2 di senescente / controllo (quiescente) per ciascuna delle 695 proteine identificate; in questo esperimento, i mezzi di etichettatura Light and Heavy non contenevano glucosio e rosso fenolo. (B) Tabelle che mostrano le prime 10 proteine con l'emivita più aumentata o diminuita nelle cellule quiescenti rispetto alle cellule senescenti (sinistra e destra, rispettivamente). Fare clic qui per visualizzare una versione più grande di questa figura.
Tabella 1: Supporti e buffer utilizzati in questo protocollo. Fare clic qui per scaricare questa tabella.
Tabella 2: Primer RT-qPCR utilizzati in questo protocollo. Fare clic qui per scaricare questa tabella.
Tabella 3: Cartella di lavoro dell'analisi SILAC per il calcolo delle emivite proteiche, dei cambiamenti di piega e dei t-test. Fare clic qui per scaricare questa tabella.
Discussione
pSILAC è una tecnica potente che consente la quantificazione globale dei tassi di turnover proteico in più condizioni cellulari. Questo documento descrive in dettaglio l'uso di pSILAC per confrontare le emivite proteiche globali tra cellule senescenti e quiescenti, comprese le istruzioni per la preparazione di cellule senescenti e quiescenti, l'etichettatura e la raccolta SILAC e, infine, l'analisi utilizzando la spettrometria di massa DDA. Inoltre, viene descritto un test in due fasi per la convalida del fenotipo della senescenza utilizzando l'analisi SA-βGal e RT-qPCR di un pannello di mRNA che codificano per proteine associate alla senescenza. Oltre alla validazione della senescenza con i due approcci descritti, una terza validazione della senescenza può essere eseguita a seguito di analisi di spettrometria di massa cercando cambiamenti nei marcatori di senescenza noti tra cellule senescenti e quiescenti a livello proteomico. Le proteine associate alla senescenza che dovrebbero essere elevate includono p16, p21 e BCL2, tra gli altri, descritti altrove44,45. Nel protocollo sopra descritto, le radiazioni ionizzanti sono state utilizzate per l'induzione della senescenza e la fame sierica per le cellule quiescenti. Per l'induzione della senescenza, ci sono più opzioni disponibili e c'è una sostanziale eterogeneità tra loro 41,42,46. Attualmente, non esiste un metodo senescente che sia considerato il "più fisiologico", quindi la scelta dell'induttore senescente è in gran parte basata sul contesto dell'esperimento. Tuttavia, gli esperimenti con l'obiettivo di affermare un fenomeno generale sulla senescenza sono raccomandati per utilizzare almeno due diversi induttori senescenti. Discutere la gamma di paradigmi di senescenza esula dallo scopo di questo articolo, ma alcuni metodi comuni per indurre la senescenza includono l'innesco di danni al DNA (IR, doxorubicina, esaurimento replicativo), l'espressione di proteine oncogeniche (HRAS, BRAF) e l'interruzione della funzione mitocondriale2.
Oltre alla scelta dell'induttore senescente, la scelta delle cellule di controllo è una considerazione altrettanto importante. Le cellule senescenti sono, per definizione, sotto arresto indefinito della crescita, quindi viene spesso scelto un confronto con altre cellule arrestate dalla crescita. Per pSILAC, le cellule arrestate dal ciclo cellulare sono generalmente preferibili perché non si replicano e sono quindi più facili da usare per i calcoli dell'emivita proteica47. Tuttavia, poiché le cellule coltivate spesso conservano alcune cellule in divisione, è importante che i metodi utilizzati per indurre l'arresto del ciclo cellulare producano una risposta il più omogenea possibile per ridurre al minimo l'errore delle cellule che stanno ancora proliferando. Per calcolare i tassi di degradazione delle proteine per le cellule cicliche utilizzando pSILAC sono necessari calcoli aggiuntivi per compensare la velocità con cui la proteina viene diluita nelle cellule figlie27. Tuttavia, l'arresto della crescita quiescente in sé non è privo di complicazioni. Esistono due metodi generali per l'arresto del ciclo cellulare: la privazione del siero e l'inibizione del contatto48. Non tutte le cellule possono essere rese quiescenti attraverso l'inibizione del contatto, anche se alcuni fibroblasti hanno dimostrato di dimostrare la quiescenza dopo diversi giorni di coltura49. Questo metodo ha usato la privazione del siero perché è più comunemente usato per i confronti di cellule senescenti, anche se richiede che la cellula senescente sia similmente priva di siero per confronti accurati. Il siero attiva il complesso mTOR, e quindi la privazione del siero ha diversi effetti a valle sulla cellula oltre all'arresto del ciclo cellulare50. In particolare, le cellule senescenti hanno dimostrato di mostrare un SASP ridotto in caso di privazione sierica o inibizione di mTOR51,52.
Un altro punto importante da considerare in pSILAC è il numero di punti temporali da testare. Questo protocollo ha raccolto le cellule in un unico punto temporale (3 giorni di etichettatura leggera o pesante), il che semplifica sostanzialmente l'analisi risultante. La scelta del punto temporale dovrebbe essere basata sull'obiettivo dell'esperimento. Per l'analisi globale, ci si aspetta che 3 giorni catturino la maggior parte delle proteine, anche se le emivite per le proteine di breve durata che si trasformano completamente entro 3 giorni (tutto il segnale luminoso viene perso) non possono essere misurate in questo momento. Al contrario, le proteine longeve con pochissimo turnover in 3 giorni sono anche difficili da quantificare e spesso appaiono come aventi emivite estremamente grandi (nell'ordine delle settimane) che in genere sono solo una conseguenza di un accumulo di segnale molto poco pesante. A causa della relazione non lineare nel rapporto tra segnali peptidici pesanti e leggeri rispetto alla percentuale di proteine appena sintetizzate in punti temporali più brevi e più lunghi, la quantificazione delle emivite potrebbe essere migliorata aggiungendo ulteriori punti temporali di etichettatura. Per i confronti relativi tra due stati cellulari, come in questo protocollo, può essere sufficiente un'emivita approssimativa, ma è possibile utilizzare punti temporali aggiuntivi per migliorare l'accuratezza quantitativa.
Questo protocollo descrive come eseguire un'analisi non mirata basata su DDA del turnover proteico. Tuttavia, i calcoli del turnover proteico possono essere applicati generalmente a qualsiasi schema di acquisizione in grado di derivare l'abbondanza relativa di coppie di peptidi pesanti e leggeri. Ad esempio, metodi basati su MS2 come l'acquisizione indipendente dai dati (DIA/SWATH) possono essere applicati anche per il calcolo dei tassi di turnover con successo53. Inoltre, la strumentazione e le pipeline software diverse da quelle descritte in questo protocollo possono essere utilizzate per eseguire analisi DDA, identificazione delle proteine e quantificazione delle proteine. Quando si utilizzano piattaforme software di quantificazione delle proteine come Skyline per estrarre le aree di picco peptidico, è consigliabile ispezionare manualmente i cromatogrammi ionici estratti nell'area di lavoro dei documenti, identificare i picchi che sono stati erroneamente integrati e picchi non quantitativi e curare il documento di conseguenza. Una vasta raccolta di tutorial è disponibile online per Skyline (skyline.ms).
pSILAC rappresenta uno dei metodi più ideali per la quantificazione globale delle emivite proteiche nelle cellule coltivate grazie al multiplexing superiore (copertura del proteoma) e alla produttività. Mentre pSILAC non fornisce tassi diretti di sintesi o degradazione, poiché il cambiamento del segnale leggero e pesante è dovuto a una confluenza di fattori, pSILAC è molto utile per i confronti tra condizioni e diversi tipi di cellule. I metodi a basso rendimento spesso rientrano in due tipi: 1) trattamento delle cellule con cicloeximide per bloccare la sintesi proteica e raccogliere a intervalli di tempo dopo l'aggiunta per monitorare il decadimento, o 2) trattamento delle cellule con un inibitore del decadimento proteico e raccolta a intervalli di tempo dopo l'aggiunta per monitorare l'accumulo di proteine, deducendo così i tassi di decadimento proteico. Il limite di entrambi i metodi è che tali trattamenti causeranno inevitabilmente cambiamenti sostanziali alla fisiologia cellulare. Al contrario, pSILAC non richiede alcun intervento sostanziale e teoricamente non ha effetti rilevabili sulla fisiologia cellulare poiché gli amminoacidi isotopici differiscono di un solo neutrone dalle loro controparti non isotopiche. Pertanto, il metodo qui descritto per pSILAC rappresenta un semplice protocollo per la misurazione globale delle emivite proteiche più fisiologiche in cellule non in divisione.
Le alterazioni nel turnover proteico hanno una stretta relazione con l'invecchiamento, le malattie legate all'età, la neurodegenerazione e la longevità54,55. Questo protocollo descrive un metodo per interrogare queste relazioni utilizzando l'etichettatura isotopica stabile degli amminoacidi in coltura cellulare per misurare i tassi di turnover proteico nelle cellule di senescenza. Tuttavia, esistono numerosi metodi analoghi per eseguire studi nel contesto dell'invecchiamento e della neurodegenerazione in vivo in organismi interi come i topi. In effetti, questi studi hanno sottolineato l'importanza di misurare i tassi di turnover proteico nel contesto delle malattie legate all'età 56,57,58,59.
In questo studio, le proteine ribosomiali e le proteine residenti nel reticolo endoplasmatico si sono distinte come due categorie di proteine con emivite ridotte e aumentate nelle cellule senescenti, rispettivamente. Mentre sono necessarie ulteriori analisi dei livelli di stato stazionario per conclusioni definitive, questi risultati suggeriscono ulteriormente che le cellule senescenti possono regolare in modo univoco la traduzione attraverso una diminuzione dell'emivita delle proteine ribosomiali. In futuro, l'applicazione di approcci stabili di marcatura isotopica per studiare la relazione tra senescenza cellulare e neurodegenerazione in vivo in modelli murini sarà un'estensione promettente dell'approccio di etichettatura degli isotopi descritto da questo protocollo.
Dichiarazioni
Gli autori non hanno divulgazioni.
Ringraziamenti
Questo lavoro è stato supportato dal National Institutes of Health (NIH) e dall'Intramural Research Program (IRP), National Institute on Aging (NIA). N.B. è stato supportato da Longevity Impetus Grants e dall'Office of Dietary Supplements (ODS) Scholars Program. La Figura 1 è stata creata con BioRender.com.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Acetonitrile (grado LC-MS) | Grainger | AH015 | |
| Bicarbonato di ammonio | Millipore-Sigma | 9830 | |
| Antibiotico-antimicotico (100x) | ThermoFisher | 15240062 | |
| ThermoFisher | 23227 | ||
| Ditiotreotolo (DTT) | Sigma | D9779 | |
| DMEM, glucosio alto, HEPES | ThermoFisher | 12430112 | |
| dNTP Mix | ThermoFisher | R0191 | |
| Siero fetale bovino, certificato, inattivato a caldo | ThermoFisher | 10082147 | |
| Acido formico | Sigma | 27001 | |
| Gammacel 40 Exactor | Best Theratronics | Irradiatore al cesio per cellule | |
| GlycoBlue | ThermoFisher | AM2238 | |
| Iodoacetamide (IAA) | Sigma | I1149 | |
| Fibroblasti polmonari primari IMR-90 sensibili alla | ATCC | CCL-186 | |
| iRT Kit (tempo di ritenzione indicizzato) | Biognosys | Ki-3002-2 | di ritenzione indicizzato Standard peptidici |
| Isopropanolo | ThermoFisher | 423835000 | |
| Mascotte | Matrix Science | Mascot Daemon 2.8 | Software di ricerca proteomica su database |
| Maxima Reverse Transcritase (200 U/µ L) | ThermoFisher | EP0742 | |
| MEM Soluzione di Aminoacidi Non Essenziali (100x) | ThermoFisher | 11140050 | |
| Nano LC System | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB Estrazione in Fase Solida Cartirdges | Waters | 186000383 | |
| Orbitrap Spettrometro di Massa | ThermoFisher | Q Exactive HF Orbitrap | |
| Fenolo/Cloroformio/Alcool isoamilico (25:24:1), 100 mM EDTA, pH 8.0 | ThermoFisher | 327110025 | |
| Soluzione salina tamponata con fosfato (PBS) | Kit | ThermoFisher 10010023 | |
| Pierce (tripsina) -DMEM | ThermoFisher | A33972 | |
| Sistema PCR in tempo reale QuantStudio 6 | Primer | ||
| ThermoFisher | SO142 | ||
| Senescenza β-Galattosidasi Kit di colorazione | Segnalazione cellulare | 9860 | |
| Skyline | University of Washington | Skyline-Daily v21.2.1.424 | Software di proteomica quantitativa gratuito e open source. Disponibile su www.skyline.ms |
| Sonicatore a bagnomaria | Branson | CPX-952-516R | |
| Reagente TRIzol | ThermoFisher | 15596018 | Indicato come fenolo nel testo; pericoloso |
| TRYPle Express | ThermoFisher | 12605010 | |
| Tripsina (grado di sequenziamento) | Promega | V5113 | |
| TURBO Dnase (2U/ uL) | ThermoFisher | AM2238 | |
| Urea | ThermoFisher | 29700 | |
| Acqua (grado LC-MS) | Grainger | AH365 |
Riferimenti
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
Ristampe e permessi
