In questo protocollo, descriviamo un metodo per la raccolta simultanea di tessuto cerebrale fetale e di siero non emolizzato di alta qualità dallo stesso embrione di topo. Abbiamo utilizzato questa tecnica per indagare come l'esposizione alimentare materna influenzi i profili dei macronutrienti e lo sviluppo neurologico fetale nei topi eterozigoti per Nf1 (Neurofibromatosi di Tipo 1).
Articolo metodologico
Raccolta concomitante di cervello e siero murino fetale per valutare gli effetti della dieta materna sulla nutrizione e sullo sviluppo neurologico nella neurofibromatosi di tipo 1
In questo articolo
Sommario
Abstract
È stato dimostrato che l'obesità indotta dalla dieta materna altera lo sviluppo neurologico nella prole, il che può portare a una riduzione della capacità cognitiva, iperattività e disturbi del comportamento sociale. I pazienti con la malattia genetica clinicamente eterogenea Neurofibromatosi di tipo 1 (NF1) possono presentare deficit simili, ma al momento non è chiaro se fattori ambientali come la dieta materna influenzino lo sviluppo di questi fenotipi e, in caso affermativo, il meccanismo attraverso il quale tale effetto si verificherebbe. Per consentire la valutazione di come l'esposizione materna alla dieta obesogenica influenzi i fattori sistemici rilevanti per il neurosviluppo nella NF1, abbiamo sviluppato un metodo per raccogliere simultaneamente siero non emolizzato e cervelli interi o micro-sezionati a livello regionale da prole fetale di madri murine alimentate con una dieta di controllo rispetto a una dieta ricca di grassi e saccarosio. I cervelli sono stati processati per la criosezione o congelati per essere utilizzati per il successivo isolamento di RNA o proteine; La qualità del tessuto raccolto è stata verificata mediante immunocolorazione. La qualità del siero è stata verificata analizzando i profili dei macronutrienti. Utilizzando questa tecnica, abbiamo identificato che la dieta obesogenica materna aumenta il colesterolo sierico fetale in modo simile tra i cuccioli eterozigoti WT e Nf1.
Introduzione
La neurofibromatosi di tipo 1 (NF1) è considerata una RASopathy, un gruppo di malattie caratterizzate da mutazioni genetiche germinali che determinano l'attivazione della via di segnalazione RAS/MAPK (RAt Sarcoma virus/Mitogen-activated Protein Kinase). I pazienti con RASopathy NF1 sono a rischio di sviluppare molte manifestazioni diverse, tra cui tumori benigni e maligni del sistema nervoso centrale (glioma 1,2 della via ottica, glioma di alto grado 3,4) e periferico (neurofibroma plessiforme 5,6, tumore maligno della guaina del nervo periferico 7,8), nonché displasie ossee9 e anomalie pigmentarie della pelle10 (lentiggini ascellari, macule café-au-lait). L'effetto di questo disturbo sulla cognizione e sullo sviluppo neurologico è sempre più riconosciuto, con i pazienti con NF1 che mostrano una maggiore incidenza di deficit di apprendimento, iperattività e disturbo dello spettro autistico 11,12,13. Tuttavia, esiste una significativa eterogeneità nello sviluppo di questi fenotipi tra i pazienti 13,14,15,16,17 e non è chiaro il motivo per cui alcuni pazienti mostrano significativi disturbi cognitivi mentre altri non ne sono affetti. È stato dimostrato che l'obesità indotta dalla dieta materna influisce in modo simile sull'apprendimento e sul comportamento nella popolazione generale 18,19,20,21,22,23,24,25,26,27,28, suggerendo che le esposizioni alimentari materne differenziali alla NF1 potrebbero essere una fonte di questa eterogeneità clinica. In particolare, i figli di madri obese mostrano un aumentato rischio di sviluppare iperattività 18,19,20,23,25,26, autismo 19,24,27, deficit della funzione esecutiva 21,23 e hanno punteggi QI su scala completa più bassi22,28. Tuttavia, i pazienti con NF1 hanno fenotipi metabolici alterati rispetto alla popolazione generale, tra cui una ridotta incidenza di obesità e diabete 29,30,31, rendendo poco chiaro se risponderebbero in modo simile agli stimoli dietetici.
Per rispondere a queste domande, abbiamo voluto determinare se i cambiamenti indotti dalla dieta obesogenica al profilo dei macronutrienti nella prole fetale con Nf1 hanno contribuito ai cambiamenti dello sviluppo neurologico. In precedenza abbiamo raccolto dal cervello fetale tessuti interi e micro-sezionati a livello regionale di alta qualità appropriati per applicazioni di sviluppo neurologico32. Tuttavia, la raccolta del sangue fetale è impegnativa a causa delle piccole dimensioni del corpo e del basso volume di sangue33. La raccolta del sangue tramite drenaggio per gravità dopo la decapitazione ha portato a bassi volumi di raccolta e a una significativa emolisi nei nostri campioni, che possono influenzare l'interpretazione dell'applicazione a valle. La raccolta tramite aspirazione dal cuore fetale o dai vasi toracici, come è stato precedentemente riportato33, era tecnicamente impegnativa e provocava anche frequenti emolisi. Abbiamo quindi sviluppato un metodo per la raccolta del siero fetale, che utilizza tubi capillari specializzati per consentire una raccolta di volume più elevato senza uno sforzo di taglio significativo.
Qui, presentiamo questo metodo per raccogliere simultaneamente cervelli embrionali e siero fetale da cuccioli eterozigoti Nf1 esposti a una dieta ricca di grassi e zuccheri rispetto a una dieta di controllo in utero (Figura 1 e Tabella supplementare S1). I cervelli sono stati crio-incorporati per la successiva analisi mediante immunofluorescenza o micro-sezionati a livello regionale e congelati per il successivo utilizzo in applicazioni di biologia molecolare. È stato ottenuto un siero di alta qualità, adatto per applicazioni a valle come la profilazione dei macronutrienti. Utilizzando questo metodo, abbiamo identificato che l'esposizione alimentare materna ad alto contenuto di grassi e saccarosio porta all'aumento dei livelli sierici di colesterolo sia nei cuccioli eterozigoti WT che in quelli Nf1.
Protocollo
Tutte le procedure sugli animali in questo studio hanno seguito le linee guida NIH e sono state approvate dal Comitato istituzionale per la cura e l'uso degli animali della Washington University di St. Louis. Gli animali sono stati alloggiati con ciclo standard di 12 ore di luce:buio e libero accesso a cibo e acqua.
1. Dieta materna
- Mettere i topi femmina su cibo di controllo (CD) o dieta obesogenica (Ob) a 4 settimane di età.
- A 8-12 settimane di età, impostare l'accoppiamento a tempo monitorando il tappo di muco della diga al mattino presto per determinare l'età corretta per la raccolta. Per verificare l'obesità indotta dalla dieta, pesare le femmine al momento dell'accoppiamento.
NOTA: Per la configurazione iniziale dell'accoppiamento è stato utilizzato un intervallo di 8-12 settimane per garantire che le femmine alimentate con dieta obesogenica fossero in sovrappeso rispetto alle loro controparti, cosa che non sempre si verificava entro le 8 settimane di età. Il giorno del plug è considerato embrionale giorno 1 (E1) e tutti gli animali utilizzati in questo studio sono stati raccolti a E19. Il punto temporale fetale tardivo è stato scelto a causa dei cambiamenti dello sviluppo neurologico precedentemente osservati in questo periodo negli animali esposti alla dieta obesogenica (dati non mostrati).
2. Rimozione del feto dalla diga
- Innanzitutto, assicurati che la madre appaia gravida (forma e pienezza addominale, palpazione addominale o movimento fetale). In caso di dubbio, pesare nuovamente la femmina per misurare l'aumento di peso.
NOTA: Le tope gravide tardive dovrebbero mostrare almeno 3-4 g di aumento di peso. Per aumentare la probabilità di concepimento nel periodo di tempo desiderato, la segatura sporca (contenente urina e feromoni) dalla gabbia di un maschio può essere aggiunta alla gabbia della femmina ogni giorno per 3 giorni prima dell'accoppiamento per indurre l'estro34. - Sopprimere la madre mettendola in una camera con un tovagliolo di carta contenente 3 ml di isoflurano, facendo attenzione a evitare il contatto diretto tra la madre e il tovagliolo di carta imbevuto di anestesia. Dopo che l'animale è stato sedato, posizionalo su un tovagliolo di carta, tienilo per la coda, posiziona le forbici da dissezione sul collo e poi forza le forbici verso l'alto verso la testa per eseguire la lussazione cervicale. In alternativa, eseguire la decapitazione dopo la sedazione con isoflurano.
NOTA: Il siero può essere raccolto dalla madre in questa fase, utilizzando una metodologia simile a quella descritta di seguito, ma con tubi capillari più grandi. Se lo si desidera, deve essere eseguita la decapitazione piuttosto che la lussazione cervicale. Si deve fare attenzione per garantire che il fenotipo di interesse non venga alterato dalla somministrazione di isoflurano immediatamente prima dell'eutanasia. - Posizionare la diga con il lato ventrale rivolto verso l'alto in un piatto da 100 mm. Pizzica la pelle che copre l'addome e fai un'incisione sulla linea mediana con le forbici da dissezione. Praticare ulteriori incisioni perpendicolari all'incisione della linea mediana per creare lembi di pelle per esporre l'utero contenente gli embrioni.
- Estrarre l'utero dalla cavità addominale. Usando le forbici, scollegare l'utero dalla diga. Metti la sacca embrionale intatta ("perle su un filo") contenente gli embrioni in un piatto con soluzione salina fredda sterile 1x tamponata con fosfato (PBS). Metti il piatto di feti sul ghiaccio.
NOTA: Poiché ogni cucciolata contiene in genere 6-10 cuccioli che verranno raccolti sia per il cervello che per il siero, i feti vengono tenuti sul ghiaccio per evitare la degradazione dei tessuti. Mettere i cuccioli sul ghiaccio garantisce inoltre un'adeguata eutanasia dei cuccioli, poiché l'eutanasia materna da sola potrebbe non essere sempre sufficiente. Se si desidera solo la raccolta del siero, può essere preferibile la raccolta a temperatura ambiente.
3. Raccolta del siero fetale
- Rimuovere il feto dal sacco embrionale sezionandolo accuratamente con una pinza #5. Trasferire l'embrione in un piatto utilizzando una pinza curva con 1x PBS sterile freddo fresco.
- Tamponare delicatamente l'animale su un tovagliolo di carta per rimuovere il liquido amniotico residuo e il PBS dal campione.
- Tieni l'animale per l'addome. Decapitare parzialmente l'animale con micro forbici praticando un'incisione sul collo ventrale. Assicurati che i vasi sanguigni siano tagliati, ma che la pelle che tiene la testa sia ancora attaccata.
NOTA: La testa deve rimanere attaccata in modo che il sangue possa essere raccolto contemporaneamente dal corpo e dalla testa. - Tenere il corpo a un angolo di 45° con l'incisione rivolta verso il basso. Tenere la minivetta da 50 μl (tubo capillare) parallela al sito di incisione della diga dove il sangue forma una gocciolina. Lasciare che la provetta capillare da 50 μl si riempia di sangue.
NOTA: La provetta capillare x2 o la provetta capillare da 100 μL possono essere utilizzate per raccogliere fino a ~75 μL di sangue. - Posizionare la testa in un piatto fresco da 60 mm contenente 1x PBS freddo e sterile per un'ulteriore raccolta dei tessuti (sezione 4).
- Dopo che il sangue è all'interno del tubo capillare, premere rapidamente lo stantuffo in un tubo da 1,5 mL. Muovi il tubo o giralo rapidamente per assicurarti che il sangue sia sul fondo del tubo.
- Ripetere per il resto della cucciolata.
NOTA: Tenere i cuccioli sul ghiaccio e muoversi rapidamente tra loro è essenziale per ridurre il rischio di coagulazione post mortem che limiterà il volume di raccolta. - Coagulare il sangue a temperatura ambiente per 30 minuti.
- Centrifugare i campioni di sangue a 4 °C, 16.000 × g per 20 minuti.
- Trasferire il siero in provette fresche da 500 μl con una pipetta da 200 μl, senza disturbare il pellet di cellule del sangue sul fondo della provetta.
NOTA: Il siero deve essere di colore paglierino senza detriti rossi. Ogni feto dovrebbe produrre 15-30 μL di siero. - Conservare il siero raccolto a -80 °C.
4. Raccolta del cervello fetale
- Guardando attraverso il microscopio da dissezione, tieni il muso usando una pinza curva e usa la pinza #5 per staccare con cura la pelle dalla calotta cranica, tenendola attaccata al muso per facilitarne la presa. Angolo #5 pinza a 45° rispetto al cranio, perforare con cura la membrana trasparente che è il cranio in via di sviluppo, spostare la pinza parallelamente al cranio, inserirla sotto la calotta cranica, quindi pizzicare e staccare da un lato. Dopo aver rimosso un lato, afferrare il lato rimanente con una pinza #5 e staccare dall'altro lato.
- Raccogli delicatamente il cervello dal cranio usando un micro cucchiaio e trasferisci il cervello in un piatto fresco da 60 mm contenente 1x PBS freddo.
NOTA: A questo punto, l'intero cervello può essere fissato e incorporato per l'immunocolorazione. Cfr. la metodologia32 pubblicata in precedenza. - Se il tessuto deve essere congelato a scatto per altre applicazioni molecolari, sezionare l'area di interesse. L'isolamento del tessuto periventricolare intorno al ventricolo laterale, terzo e quarto è descritto di seguito.
- Usando la pinza curva, tieni il cervello all'incrocio tra il rombencefalo e il proencefalo con la mano non dominante. Con la mano dominante, tieni il bisturi con la lama parallela alla superficie del cervello. Premere con decisione nella regione corticale media (Figura 1).
- Tenendo ancora il rombencefalo, fai una seconda incisione davanti al rombencefalo per separarlo dal proencefalo (Figura 1). Nella sezione più anteriore, cerca due piccoli spazi semicircolari situati all'interno del piano orizzontale, che sono i ventricoli laterali. Utilizzare le pinze curve posizionate al centro di ciascun ventricolo per tenere il cervello in posizione, sezionare accuratamente il rivestimento utilizzando una pinza #5 e rimuoverle in una provetta da microcentrifuga da 1,5 ml fresca e pulita.
- Nella sezione centrale, cerca un piccolo spazio lineare sulla superficie ventrale, che è il terzo ventricolo. Utilizzando una pinza #5, pizzicare con cura il rivestimento su entrambi i lati della superficie ventricolare, quindi rimuoverlo in una provetta da microcentrifuga da 1,5 ml fresca e pulita.
- Nella sezione più posteriore, cerca un piccolo spazio lineare centrale all'interno del rombencefalo, che è il quarto ventricolo. Sezionare il rivestimento su entrambi i lati utilizzando una pinza #5, quindi rimuoverlo in una provetta per microcentrifuga da 1,5 ml fresca e pulita.
NOTA: Se l'affettatura del rombencefalo non è un taglio netto, il tessuto del quarto ventricolo può essere oscurato e/o distrutto. - Per i passaggi 4.3.2-4.3.4, subito dopo che il tessuto è stato inserito nelle provette per microcentrifuga, posizionare rapidamente le provette in un contenitore criosicuro contenente azoto liquido.
NOTA: Le provette possono essere conservate in azoto liquido fino a quando i campioni rimanenti non sono stati sezionati. ATTENZIONE: L'azoto liquido può causare gravi congelamenti. Non infilare le mani direttamente nell'azoto liquido ed evitare schizzi. - Posizionare le provette congelate sul ghiaccio secco e trasferire i fazzoletti congelati in un congelatore a -80 °C fino al momento dell'uso.
Risultati
Per illustrare la qualità del tessuto cerebrale ottenuto con questa tecnica, mostriamo campioni di cervelli fetali da topi Nestin-CFPnuc35, immunocolorati per GFAP secondo una tecnica precedentemente riportata32. Le cellule Nestin+ sono visibili rivestire il ventricolo laterale (Figura 2A), con filamenti GFAP+ che si estendono dalla superficie. Non abbiamo osservato differenze tra l'espressione di Nestina o GFAP nel ventricolo laterale della MC rispetto ai topi esposti a Ob nei ceppi eterozigoti WT o Nf1 (Figura 2A, B). Successivamente abbiamo valutato la qualità del tessuto microdissezionato. Per prima cosa abbiamo eseguito il western blotting36 per la proteina housekeeping β-actina sul tessuto microdissezionato isolato dai ventricoli laterali di MC rispetto a topi esposti a Ob. Tutti i campioni hanno mostrato una forte espressione di β-actina (Figura 2C), come previsto. Abbiamo quindi isolato l'RNA dal tessuto microdissezionato secondo la metodologia precedentemente riportata32. L'RNA isolato ha mostrato sia un'elevata purezza (260/280 ≥ 2) che integrità (valori RIN ≥ 9), indicativi di RNA non degradato ad alta purezza (Figura 2D).
Abbiamo quindi confrontato i diversi metodi di isolamento del siero. Utilizzando il nostro metodo delle minivette, abbiamo raccolto regolarmente volumi maggiori di siero non emolizzato, mentre il drenaggio per gravità e la puntura toracica hanno portato a una raccolta di volume e all'emolisi altamente variabili in molti campioni (Figura 3A, B). Per illustrare la qualità del siero ottenuto con questa tecnica, abbiamo misurato i livelli sierici totali di colesterolo utilizzando il reagente del colesterolo totale secondo le istruzioni del produttore. I livelli di colesterolo fetale erano all'interno dell'intervallo previsto per i cuccioli di gestazione tardiva sulla base di studi precedenti su feti umani37. I livelli sono aumentati nei topi esposti a Ob rispetto a quelli esposti a CD sia per i cuccioli wild-type (Figura 3C, a sinistra) che per quelli eterozigoti Nf1 (Figura 3C, a destra). Si noti che il pannello di destra mostra i dati combinati di due diversi ceppi eterozigoti Nf1 con mutazioni germinali identificate dal paziente (R681X, C383X)32,38,39 poiché profili simili sono stati osservati in entrambi i ceppi.
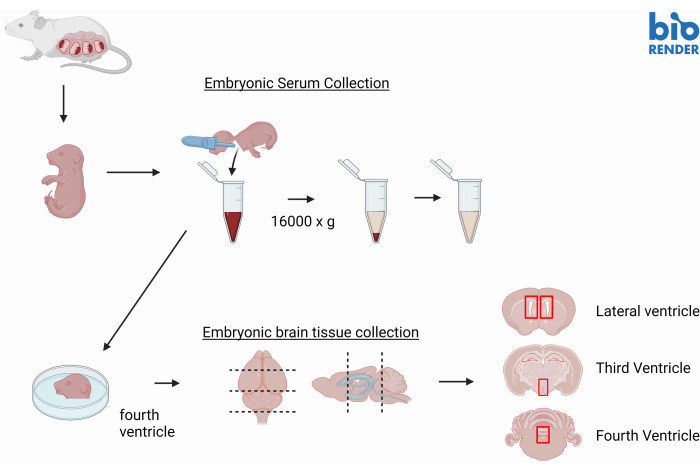
Figura 1: Estratto grafico del flusso di lavoro. I cuccioli vengono prima isolati dalle madri gravide. Il siero viene quindi raccolto dai cuccioli. Infine, i cervelli interi vengono isolati dai cuccioli e, se lo si desidera, microsezionati per le regioni di interesse. Grafica realizzata con BioRender.com. Clicca qui per visualizzare una versione più grande di questa figura.
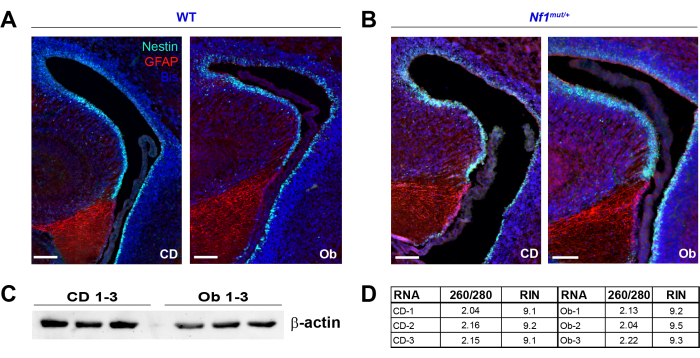
Figura 2: Risultati illustrativi, tessuto cerebrale. (A) Cervelli criosezionati da topi Nestina-CFPnuc , che esprimono una proteina fluorescente ciano localizzata nutoriamente sotto il controllo del promotore Nestina, sono stati raccolti con questo metodo e immunocolorati per GFAP (rosso) secondo la metodologia precedentemente riportata32. Le cellule nestin-positive vengono visualizzate tramite l'espressione endogena di Nestin-CFPnuc (verde). I nuclei sono stati controcolorati con bis-benzimmide (blu). Non c'erano differenze significative tra i cervelli di MC e WT esposti a Ob. Barra della scala = 100 μm. (B) Nestina-CFPnuc; I cuccioli di Nf1mut/+ sono stati valutati in modo simile. La distribuzione di GFAP e Nestina-CFP è apparsa simile alla WT e non variava con le condizioni dietetiche. Barra della scala = 100 μm. (C) La proteina è stata isolata dal tessuto microsezionato del ventricolo sinistro. Il Western blotting è stato eseguito secondo la metodologia precedentemente riportata36 con 20 μg di proteina caricata per corsia. Una forte espressione di β-actina era rilevabile in tutti i campioni. (D) L'RNA è stato isolato da tessuto microsezionato secondo la metodologia precedentemente riportata32. La qualità dell'RNA è stata valutata tramite rapporti 260/280 e valori RIN. Tutti i campioni hanno mostrato eccellenti rapporti 260/280 (≥2) e valori RIN (≥9), indicando un buon isolamento dell'RNA non degradato. Abbreviazioni: CFP = proteina fluorescente ciano; GFAP = proteina acida fibrillare gliale; WT = wild-type; LV = ventricolo laterale; RIN = numero di integrità dell'RNA. Clicca qui per visualizzare una versione più grande di questa figura.
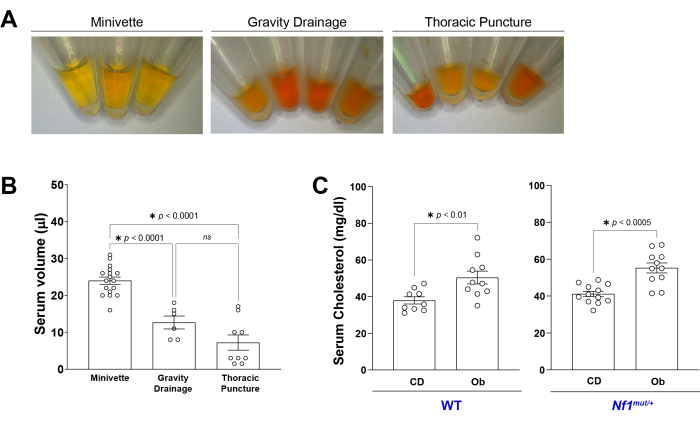
Figura 3: Risultati illustrativi e siero. (A) Il siero è stato raccolto da ciascuno dei metodi descritti. La raccolta con la minivetta ha consentito la raccolta di routine del siero non emolizzato rispetto al drenaggio assistito dalla gravità e alla puntura toracica. (B) Sono mostrati i volumi tipici di raccolta del siero. La collezione di minivette ha permesso una raccolta più riproducibile di volumi maggiori di siero. Significatività statistica determinata dall'ANOVA unidirezionale con confronti multipli. (C) Il colesterolo sierico totale è stato misurato da CD rispetto al siero fetale aggregato WT esposto all'ob (a sinistra) e al siero fetale aggregato Nf1-eterozigote (a destra); Gli animali esposti all'ob hanno mostrato un livello di colesterolo sierico più elevato in entrambi i genotipi. Significatività statistica determinata dal t-test. Barre di errore: SEM. Abbreviazioni: WT = wild type; CD = dieta di controllo; Ob = dieta obesogenica. Clicca qui per visualizzare una versione più grande di questa figura.
Tabella supplementare S1: Composizioni dietetiche. Viene mostrata la composizione delle diete di controllo e obesogeniche utilizzate in questo manoscritto. NOTA: Per una dieta a basso contenuto di grassi e senza saccarosio che controlla meglio i singoli componenti della dieta in D12331, la dieta D12328 (researchdiets.com) può essere preferita. Clicca qui per scaricare questo file.
Discussione
I metodi tradizionali per la raccolta del sangue dai topi includono il sanguinamento retrobulbare, della vena caudale, della vena safena, della vena facciale e della vena giugulare 40,41,42. Sfortunatamente, questi metodi non sono ideali per la raccolta del sangue embrionale a causa delle dimensioni dell'animale e della vascolarizzazione piccola e delicata. La raccolta del sangue tramite drenaggio assistito dalla gravità dopo la decapitazione ha portato sia a bassi volumi di raccolta che a una significativa emolisi nei nostri campioni. I protocolli precedenti hanno riportato un miglioramento dei volumi utilizzando un ago modificato da 20 G per drenare il sangue dai vasi sanguigni toracici33; Tuttavia, abbiamo trovato questa tecnica tecnicamente impegnativa e abbiamo osservato alti tassi di emolisi, rendendola inadatta per molte applicazioni a valle. Il nostro metodo ha il vantaggio di essere prelevato attraverso il flusso sanguigno passivo, riducendo il rischio di emolisi da stress puro indotto dall'aspirazione. Lo stantuffo sul tubo capillare fornisce anche un modo rapido ed efficiente per erogare il sangue nella provetta di raccolta, riducendo al minimo l'esposizione all'aria e limitando la frammentazione dei coaguli di sangue. È importante sottolineare che il tessuto cerebrale intero o microsezionato a livello regionale può essere successivamente raccolto dallo stesso animale, riducendo il fabbisogno totale di animali da esperimento.
Questo protocollo non è privo di regolazioni per ottimizzare la qualità e l'efficienza della raccolta. Per la raccolta del siero, è fondamentale rimuovere delicatamente il liquido embrionale e il PBS in eccesso dall'animale prima della raccolta del sangue, poiché il liquido in eccesso può rendere l'animale scivoloso e aumentare la probabilità di un posizionamento errato o instabile che influisce negativamente sulla qualità della raccolta del sangue. Inoltre, il posizionamento delle dita mentre si tiene l'embrione è fondamentale, poiché il sangue si attaccherà a un dito guantato durante la raccolta se il dito è adiacente al tubo capillare. È anche importante tenere l'apertura del tubo capillare adiacente, piuttosto che immergersi, nel sangue che scorre; La raccolta capillare verrà interrotta se il tubo viene sommerso. Infine, è necessario considerare attentamente l'applicazione a valle per ottimizzare la raccolta del siero. Ad esempio, il glucosio si degrada nel tempo in provette non trattate a temperatura ambiente, quindi può essere necessaria la raccolta in provette contenenti fluoruro di sodio o EDTA per quantificare con precisione i livelli di glucosio43,44.
Per la raccolta del tessuto cerebrale, l'attenta rimozione della pelle e del cranio trasparente su entrambi i lati della testa è fondamentale per un'estrazione pulita. Se solo un lato viene sezionato, il cervello può attaccarsi al cranio con un tentativo di rimozione, con conseguente lacerazione e distorsione del tessuto. Per sezionare il cervello, è importante fare singole fette pulite per separare la corteccia anteriore da quella media e la corteccia media dal rombencefalo. Avere più tagli può interrompere l'integrità strutturale del tessuto o oscurare il punto di riferimento per la successiva microdissezione. Infine, per evitare la degradazione del campione, è fondamentale mantenere i campioni sul ghiaccio fino alla fissazione o al congelamento rapido.
Sebbene preferiamo questo metodo a causa della raccolta di routine di siero non emolizzato ad alto volume, non è privo di inconvenienti. Sebbene l'emolisi sia ridotta rispetto ad altre tecniche, questo metodo non elimina il rischio. Il tubo capillare può anche ostruirsi con un coagulo di sangue una volta che il sangue smette di fluire, quindi è importante lavorare rapidamente dopo la decapitazione per mitigare il rischio di mancata raccolta a causa della coagulazione. Anche la conservazione dei campioni sul ghiaccio, che viene eseguita per preservare l'integrità del campione in questo protocollo, può influire negativamente su alcuni fenotipi e potrebbe non essere appropriata per tutte le applicazioni.
In conclusione, questa metodologia può essere utilizzata per isolare simultaneamente il siero e i cervelli interi o microsezionati a livello regionale dallo stesso feto. Questa tecnica può essere utilizzata per affrontare il modo in cui fattori sistemici, come un cambiamento indotto dalla dieta materna nel profilo dei macronutrienti, potrebbero influenzare lo sviluppo neurologico nella NF1 o in altri disturbi.
Dichiarazioni
Gli autori non hanno conflitti di interesse.
Ringraziamenti
N Brossier è supportato dal Francis S. Collins Scholars Program in Neurofibromatosis Clinical and Translational Research finanziato dal Neurofibromatosis Therapeutic Acceleration Program (NTAP, Grant # 210112). Questa pubblicazione è stata supportata in parte dal finanziamento dell'NTAP presso la Johns Hopkins University School of Medicine. I suoi contenuti sono di esclusiva responsabilità degli autori e non rappresentano necessariamente le opinioni ufficiali della Johns Hopkins University School of Medicine. Ulteriore supporto da parte del St. Louis Children's Hospital (FDN-2022-1082 a NMB) e del Washington University in St. Louis Diabetes Research Core (NIH P30 DK020579). La microscopia è stata eseguita attraverso l'uso del Washington University Center for Cellular Imaging (WUCCI), supportato dalla Washington University School of Medicine, dal Children's Discovery Institute della Washington University e dal St. Louis Children's Hospital (CDI-CORE-2015-505 e CDI-CORE-2019-813) e dalla Foundation for Barnes-Jewish Hospital (3770 e 4642). I topi Nestin-CFPnuc35 sono stati generosamente forniti da Grigori Enikolopov (Renaissance School of Medicine, Stony Brook University, NY), e i topi Nf1 eterozigoti per una mutazione germinale R681X o C383X 32,38,39 sono stati generosamente forniti da David Gutmann (Washington University School of Medicine, St. Louis, MO). La Figura 1 è stata creata con BioRender.com.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| #5/45 Pinze | Dumont | 11251-35 | Forma della punta: angolata di 45 gradi |
| 4200 Tapestation | Agilent | G2991BA | Verificare l'integrità e la qualità dell'RNA, misurare i valori RIN |
| Contenitore da banco per azoto liquido | Thermo Fisher | 2122 | O altro contenitore crio-sicuro |
| Control Chow | PicoLab | 5053 | Diete di ricerca D12328 (a basso contenuto di grassi, a basso contenuto di zuccheri) può essere utilizzato anche. |
| Pinza curva | Cole Parmer | UX-10818-25 | Forma della punta: curva 90° |
| Manico della lama di dissezione | Cole-Parmer Essentials | 10822-20 | SS Siegel-Type, lame da #10 a #15 |
| EMS SuperCut Forbici di dissezione | Microscopio elettronico scienze | 72996-01 | 5½ " (139,7 mm), |
| Anticorpo GFAP | Abcam | ab7260 | Diluire 1:350. Blocco con il 10% di siero contenente 0,3 M di glicina. |
| Lame chirurgiche in acciaio al carbonio Glassvan, misura 11 | Le lame MYCO medical | 2001T-11 | #11 consentono un taglio dritto e piatto |
| Micro cucchiaio da laboratorio | Az Scilab | A2Z-VL001 | acciaio inossidabile, autoclavabile |
| Micro forbici | Rubis | 78180-1C3 | modello 1C300 |
| Minivette POCT neutro | Sarstedt | 17.2111.050 | volume nominale: 50 µ L, senza preparazione |
| Nanorop | Thermo Fisher | 13-400-519 | Misura della concentrazione di RNA, rapporti 260/280 |
| Dieta obesogenica | Researchdiets.com | D12331 | ad alto contenuto di grassi e saccarosio |
| Thermo Fisher | TR13421 | Rilevamento colorimetrico | |
| dell'anticorpo beta;-actina | Segnalazione cellulare | 8457 | Diluire 1:1.000. |
Riferimenti
- Listernick, R., Darling, C., Greenwald, M., Strauss, L., Charrow, J. Optic pathway tumors in children: the effect of neurofibromatosis type 1 on clinical manifestations and natural history. J Pediatr. 127 (5), 718-722 (1995).
- Fisher, M. J., et al. Integrated molecular and clinical analysis of low-grade gliomas in children with neurofibromatosis type 1 (NF1). Acta Neuropathol. 141 (4), 605-617 (2021).
- Cimino, P. J., et al. Expanded analysis of high-grade astrocytoma with piloid features identifies an epigenetically and clinically distinct subtype associated with neurofibromatosis type 1. Acta Neuropathol. 145 (1), 71-82 (2023).
- Lucas, C. -H. G., et al. Multiplatform molecular analyses refine classification of gliomas arising in patients with neurofibromatosis type 1. Acta Neuropathol. 144 (4), 747-765 (2022).
- Fisher, M. J., et al. Management of neurofibromatosis type 1-associated plexiform neurofibromas. Neuro-Oncol. 24 (11), 1827-1844 (2022).
- Packer, R. J., et al. Plexiform neurofibromas in NF1. Neurology. 58 (10), 1461-1470 (2002).
- Evans, D. G. R., et al. Malignant peripheral nerve sheath tumours in neurofibromatosis 1. J Med Genet. 39 (5), 311(2002).
- Prudner, B. C., Ball, T., Rathore, R., Hirbe, A. C. Diagnosis and management of malignant peripheral nerve sheath tumors: Current practice and future perspectives. Neurooncol Adv. 2, Suppl 1 i40-i49 (2020).
- Ma, Y., et al. A molecular basis for neurofibroma-associated skeletal manifestations in NF1. Genet Med. 22 (11), 1786-1793 (2020).
- Ozarslan, B., Russo, T., Argenziano, G., Santoro, C., Piccolo, V. Cutaneous findings in neurofibromatosis Type 1. Cancers. 13 (3), 463(2021).
- Hyman, S. L., Shores, A., North, K. N. The nature and frequency of cognitive deficits in children with neurofibromatosis type 1. Neurology. 65 (7), 1037-1044 (2005).
- Morris, S. M., et al. Disease burden and symptom structure of autism in neurofibromatosis type 1: a study of the International NF1-ASD Consortium Team (INFACT). JAMA Psychiatry. 73 (12), 1276-1284 (2016).
- Geoffray, M. -M., et al. Predictors of cognitive, behavioural and academic difficulties in NF1. J Psychiatr Res. 140, 545-550 (2021).
- Monroe, C. L., Dahiya, S., Gutmann, D. H. Dissecting clinical heterogeneity in neurofibromatosis type 1. Ann Rev Pathol. 12 (1), 53-74 (2017).
- Kehrer-Sawatzki, H., Mautner, V. -F., Cooper, D. N. Emerging genotype-phenotype relationships in patients with large NF1 deletions. Hum Genet. 136 (4), 349-376 (2017).
- Hou, Y., et al. Predictors of cognitive development in children with neurofibromatosis type 1 and plexiform neurofibromas. Dev Med Child Neurol. 62 (8), 977-984 (2020).
- Biotteau, M., et al. Sporadic and familial variants in NF1: an explanation of the wide variability in neurocognitive phenotype. Front Neurol. 11, 368(2020).
- Rodriguez, A., et al. Maternal adiposity prior to pregnancy is associated with ADHD symptoms in offspring: evidence from three prospective pregnancy cohorts. Int J Obes (Lond). 32 (3), 550-557 (2008).
- Andersen, C. H., Thomsen, P. H., Nohr, E. A., Lemcke, S. Maternal body mass index before pregnancy as a risk factor for ADHD and autism in children). Eur Child Adolesc Psychiatry. 27 (2), 139-148 (2018).
- Pugh, S. J., et al. Gestational weight gain, prepregnancy body mass index and offspring attention-deficit hyperactivity disorder symptoms and behaviour at age 10. Bjog. 123 (13), 2094-2103 (2016).
- Mina, T. H., et al. Prenatal exposure to maternal very severe obesity is associated with impaired neurodevelopment and executive functioning in children. Pediatr Res. 82 (1), 47-54 (2017).
- Oken, E., et al. Analysis of maternal prenatal weight and offspring cognition and behavior: Results from the Promotion of Breastfeeding Intervention Trial (PROBIT) Cohort. JAMA Netw Open. 4 (8), e2121429-e2121429 (2021).
- Buss, C., et al. Impaired executive function mediates the association between maternal pre-pregnancy body mass index and child ADHD symptoms. PLOS ONE. 7 (6), e37758(2012).
- Li, Y. -M., et al. Association between maternal obesity and autism spectrum disorder in offspring: a meta-analysis. J Autism Dev Disord. 46 (1), 95-102 (2016).
- Dow, C., Galera, C., Charles, M. -A., Heude, B. Maternal pre-pregnancy BMI and offspring hyperactivity-inattention trajectories from 3 to 8 years in the EDEN birth cohort study. Eur Child Adolesc Psychiatry. 32 (10), 2057-2065 (2023).
- Fast, K., et al. Prevalence of attention-deficit/hyperactivity disorder and autism in 12-year-old children: A population-based cohort. Devl Med Child Neurol. 66 (4), 493-500 (2023).
- Carter, S. A., et al. Maternal obesity and diabetes during pregnancy and early autism screening score at well-child visits in standard clinical practice. Autism. 28 (4), 975-984 (2023).
- West, Z., et al. Relationships between maternal body mass index and child cognitive outcomes at 3 years of age are buffered by specific early environments in a prospective Canadian birth cohort. J Dev Orig Health Dis. 14 (1), 42-52 (2023).
- Gutmann, D. H., et al. Neurofibromatosis type 1. Nat Rev Dis Primers. 3, 17004(2017).
- Martins, A. S., et al. Lower fasting blood glucose in neurofibromatosis type 1. Endocr Connect. 5 (1), 28-33 (2016).
- Martins, A. S., et al. Increased insulin sensitivity in individuals with neurofibromatosis type 1. Arch Endocrinol Metab. 62 (1), 41-46 (2018).
- Brossier, N. M., Thondapu, S., Cobb, O. M., Dahiya, S., Gutmann, D. H. Temporal, spatial, and genetic constraints contribute to the patterning and penetrance of murine Neurofibromatosis-1 optic glioma. Neuro Oncol. 23 (4), 625-637 (2020).
- de Lurdes Pinto, M., et al. Technical Report: Mouse fetal blood collection taking the best out of the old needle-syringe method. Scandinavian Journal of Laboratory Animal Science. 35 (1), 5(2008).
- Musillo, C., et al. Bdnf-Nrf-2 crosstalk and emotional behavior are disrupted in a sex-dependent fashion in adolescent mice exposed to maternal stress or maternal obesity. Transl Psychiatry. 13 (1), 399(2023).
- Encinas, J. M., Vaahtokari, A., Enikolopov, G. Fluoxetine targets early progenitor cells in the adult brain. Proc Natl Acad Sci U S A. 103 (21), 8233-8238 (2006).
- Anastasaki, C., et al. Human induced pluripotent stem cell engineering establishes a humanized mouse platform for pediatric low-grade glioma modeling. Acta Neuropathol Commun. 10 (1), 120(2022).
- Cai, H. -J., Xie, C. -L., Chen, Q., Chen, X. -Y., Chen, Y. -H. The relationship between hepatic low-density lipoprotein receptor activity and serum cholesterol level in the human fetus. Hepatology. 13 (5), 852-857 (1991).
- Toonen, J. A., et al. NF1 germline mutation differentially dictates optic glioma formation and growth in neurofibromatosis-1. Hum Mol Genet. 25 (9), 1703-1713 (2016).
- Guo, X., Pan, Y., Gutmann, D. H. Genetic and genomic alterations differentially dictate low-grade glioma growth through cancer stem cell-specific chemokine recruitment of T cells and microglia. Neuro Oncol. 21 (10), 1250-1262 (2019).
- Parasuraman, S., Raveendran, R., Kesavan, R. Blood sample collection in small laboratory animals. J Pharmacol Pharmacother. 1 (2), 87-93 (2010).
- Meyer, N., et al. Impact of three commonly used blood sampling techniques on the welfare of laboratory mice: Taking the animal's perspective. PLOS ONE. 15 (9), e0238895(2020).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. J Appl Toxicol. 21 (1), 15-23 (2001).
- Jung, J., Garnett, E., Rector, K., Jariwala, P., Devaraj, S. Effect of collection tube type on glucose stability in whole blood. Ann Clin Lab Sci. 50 (4), 557-559 (2020).
- Bonetti, G., et al. Which sample tube should be used for routine glucose determination. Prim Care Diabetes. 10 (3), 227-232 (2016).
Ristampe e permessi
