Questo studio presenta un saggio FRET raziometrico semplice e di facile utilizzo per il rilevamento e la valutazione quantitativa dell'attività della DNasi e dimostra la sua applicazione nell'analisi di una nucleasi debole.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Valutazione dell'attività della DNasi mediante trasferimento di energia di risonanza a fluorescenza raziometrica
In questo articolo
Sommario
Abstract
Il presente protocollo descrive un semplice e sensibile saggio raziometrico di trasferimento di energia di risonanza di Förster (FRET) per la rilevazione e la valutazione quantitativa dell'attività della DNasi. Le misure raziometriche FRET utilizzano il rapporto tra i segnali di emissione del donatore e dell'accettore. Il test rileva le rotture del DNA a singolo filamento utilizzando un'oligosonda FRET a 38 mer a forma di graffette, a doppia marcatura, impiegata come sensore di scissione del DNA in tempo reale. L'applicazione principale dell'approccio descritto è la valutazione quantitativa degli effetti delle condizioni di reazione, come il pH, la temperatura e la composizione del tampone, sull'attività della DNasi. Grazie alla sua capacità di rilevare anche la scissione minima e lenta del DNA, il test è particolarmente adatto per studiare l'attività nucleolitica debole che richiede lunghi periodi di osservazione e per studiare gli effetti del pH sull'attività della DNasi. Questi vantaggi specifici di questo protocollo FRET raziometrico sono illustrati dalla sua applicazione alla rilevazione e all'analisi dell'attività DNasi dell'inibitore dell'elastasi leucocitaria (LEI).
Introduzione
L'approccio raziometrico della fluorescenza è un metodo analitico che utilizza rapporti di segnali di fluorescenza invece di basarsi esclusivamente sull'intensità di un singolo segnale 1,2. Il vantaggio dell'utilizzo dei rapporti è che forniscono una calibrazione interna e compensano molti fattori casuali, come le variazioni delle concentrazioni del campione e della sonda, i parametri dello strumento, ecc. Ciò migliora l'accuratezza e la sensibilità delle sonde fluorescenti.
Nel contesto specifico delle sonde di trasferimento di energia di risonanza (FRET) di Förster, il termine "raziometrico" si riferisce al fatto che la misurazione si basa sul rapporto di due segnali di emissione provenienti dalla coppia di fluorofori donatori e accettori FRET. Per quantificare l'attività dell'analita target, le sonde FRET raziometriche utilizzano il rapporto tra le intensità di emissione accettore/donatore (o, in alcuni casi, il rapporto donatore/accettore invertito). Il rapporto è direttamente correlato all'efficienza FRET. Fornisce un meccanismo di autonormalizzazione che riduce al minimo il rumore di fondo e tiene conto delle variazioni delle condizioni di illuminazione e della concentrazione della sonda3.
Recenti interessanti applicazioni del metodo raziometrico includono il suo utilizzo in biosensori elettrochimici raziometrici per la rilevazione del DNA tumorale circolante (ctDNA)4,5, in bio-nanomacchine alimentate dal movimento browniano per la rilevazione FRET della fase fagocitaria dell'apoptosi6 e per la marcatura FRET espressa e l'analisi della clearance fagocitaria7. L'approccio raziometrico FRET descritto in questo lavoro è utile per la valutazione quantitativa dell'attività della DNasi. Le misurazioni del saggio si basano sui rapporti delle emissioni della coppia FRET. Grazie alla sua capacità di rilevare anche la scissione minima e lenta del DNA, il test è particolarmente adatto per lo studio di attività nucleolitiche deboli che richiedono periodi di osservazione più lunghi e per esperimenti a diversi livelli di pH.
Qui, alcuni vantaggi specifici del saggio FRET raziometrico sono illustrati dalla sua applicazione per studiare l'attività DNasi di un debole inibitore dell'elastasi nucleasi-leucocita (LEI). Il rapporto include un protocollo dettagliato con istruzioni dettagliate e una descrizione dell'analisi raziometrica dei dati.
Descrizione della sonda FRET raziometrica
La sonda FRET raziometrica è un oligo di DNA autocomplementare a 38 mer che trasporta la coppia FRET donatore-accettore di FAM-TAM (Fluoresceina-Tetrametilrodamina). La sua sequenza è 5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'. Il 38-mer auto-ibridante assume una conformazione a forma di graffa, comprendente due forcine collegate di 23 e 15 nucleotidi, che posizionano i suoi due fluorofori a 23,8 Å l'uno dall'altro. Questo è significativamente più vicino del raggio di Förster per questa coppia, R0 = 55 Å8. Tale posizionamento corrisponde ad un'altissima efficienza di trasferimento di energia dal donatore all'accettore7: EFRET = 0,993477. Di conseguenza, quando illuminata alla lunghezza d'onda di eccitazione FAM (488 nm), la sonda FRET emette fluorescenza alla lunghezza d'onda di emissione dell'accettore TAM (580 nm), mentre l'emissione FAM (525 nm) viene soppressa.
La Figura 1A mostra la struttura secondaria della sonda prevista dall'UNAFold, con piccoli anelli su entrambi gli apici delle forcine a causa dell'impedimento sterico dovuto alla curvatura stretta. Lo schema del rilevamento della rottura del DNA da parte della sonda FRET è presentato nella Figura 1B. Mostra che la rottura dell'oligosonda da parte di una DNasi separa la sua coppia FRET. Questa separazione produce drastici cambiamenti negli spettri di emissione di entrambi i fluorofori nella sonda. La Figura 1C presenta gli spettri di emissione della sonda prima e dopo la sua scissione e dimostra che la divisione della coppia FRET dopo la scissione della sonda DNasi II aumenta l'emissione del donatore a 525 nm (ID 525 nm) e contemporaneamente diminuisce l'emissione dell'accettore a 580 nm (IA 580 nm). La Figura 1D mostra i rapporti PAGE, gel e FRET corrispondenti agli spettri di emissione. La scissione della sonda DNasi II ha prodotto due bande larghe corrispondenti a frammenti FAM 12-16-mer (verde) e TAM 20-24-mer (rosso), indicando tagli casuali del 38-mer su entrambi i lati di T23 in prossimità dell'area di connessione tra le forcine.
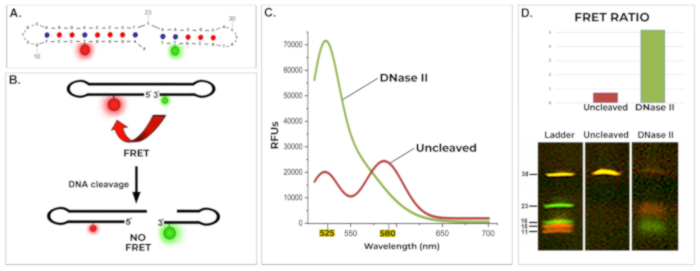
Figura 1: Struttura e funzionamento della sonda FRET raziometrica. (A) Struttura secondaria prevista della sonda FRET generata da UNAFold. (B) Rappresentazione schematica della sonda FRET funzionante. La sonda FRET raziometrica è un oligonucleotide a forma di graffa a 38 mer marcato con un donatore FRET (FAM) e un accettore (TAM) a una distanza FRET effettiva di 23,8 Å, garantendo un'efficienza FRET del >99%. La scissione dell'oligosonda da parte di una DNasi separa la coppia FRET, abolendo FRET. (C) Spettri di emissione della sonda FRET prima e dopo la scissione mediata da DNasi II. Prima della scissione, l'emissione di FAM viene soppressa e l'emissione di TAM è prominente. La scissione mediata da DNasi separa FAM e TAM, ripristinando l'emissione di FAM (picco di 525 nm) e abolendo l'emissione di TAM (calo di 580 nm). Eccitazione λ = 488 nm. (D) Valutazione raziometrica ed elettroforetica della sonda FRET prima e dopo la scissione della DNasi II. Pannello superiore: rapporti FRET (RD/A = ID 525 nm / IA 580 nm), che rappresentano una misura quantitativa dello stato della sonda. Rosso: non scisso; verde: DNasi II-scissione. Pannello inferiore: Gel denaturante PAGE corrispondente ai dati fluorimetrici. La scissione della DNasi II produce frammenti marcati con FAM (12-16 nt, verde) e frammenti marcati con TAM (20-24 nt, rosso), che indicano la scissione vicino alla connessione tra le forcine, che fiancheggiano T23. Il controllo non scisso mostra una fluorescenza gialla. Scala: oligonucleotidi marcati con FAM e TAM corrispondenti ai segmenti 5' e 3' della sonda 38-mer, con etichette fluorescenti nelle loro posizioni originali. Condizioni di reazione: 10 mM di tampone acetato di sodio (pH 5,2), 1 pmol/μL di sonda FRET, 0,0033 U/μL di DNasi II, 24 ore a 37 °C. RD/A = ID 525 nm/IA 580 nm; Eccitazione λ = 488 nm. UNAFold condizioni: sonda FRET da 1 μM, 10 mM Na+, 0 mM Mg2+, 37 °C. Fare clic qui per visualizzare una versione più grande di questa figura.
Mentre i cambiamenti negli spettri di emissione dei singoli test sono evidenti, i confronti quantitativi tra un gran numero di spettri di emissione richiedono un parametro quantitativo più facile da usare e compatto. Questo ruolo è svolto dal rapporto FRET. Il metodo di fluorescenza presentato appartiene a un gruppo di approcci raziometrici che si basano sui rapporti diretti (a due canali) delle emissioni di fluorescenza dei membri della coppia FRET per le loro valutazioni quantitative 2,9.
L'approccio utilizza il rapporto tra le emissioni donatore/accettore (RD/A = ID 525 nm / IA 580 nm), che è correlato all'efficienza FRET e caratterizza quantitativamente la condizione del 38-mer (rotto o intatto). Il rapporto ID / IA fornisce un meccanismo di autonormalizzazione che tiene conto intrinsecamente delle variazioni di fattori come la concentrazione della sonda, l'intensità dell'eccitazione e il fotosbiancamento3. L'approccio è adatto solo per sonde FRET che hanno donatore e accettore collegati all'interno della stessa sonda, dove il loro rapporto è noto e costante. Per questo motivo, l'approccio non deve considerare né l'eccitazione diretta dell'accettore né il crosstalk del donatore2. La stechiometria fissa donatore-accettore della sonda assicura che i rapporti di emissione donatore/accettore non siano influenzati da queste variazioni e riflettano direttamente le condizioni della sonda. Di conseguenza, il rapporto tra le emissioni donatore-accettore fornisce un parametro quantitativo di scissione del DNA con normalizzazione del segnale incorporata 2,3.
Il test utilizza il rapporto ID / IA ( piuttosto che l'opposto rapporto IA / ID ) perché questo rapporto descrive la cessazione della FRET dopo la scissione della sonda e quindi cambia nella stessa direzione dell'attività della DNasi, aumentando con l'aumento della scissione. Ciò è illustrato dalla Figura 1D, che mostra il rapporto FRET della sonda raziometrica e la sua elettroforesi PAGE prima e dopo la sua scissione da parte della DNasi II, entrambi corrispondenti agli spettri nella Figura 1C. Per dimostrare la convenienza, l'economicità temporale e la facilità d'uso del test FRET raziometrico, è stato applicato per scoprire e studiare l'attività della DNasi di un debole inibitore dell'elastasi nucleasi-leucociti (LEI).
LEI a nucleasi debole
L'inibitore della proteasi LEI è naturalmente metastabile, cioè topologicamente sbilanciato. Questa caratteristica è essenziale per il suo meccanismo inibitorio. Quando la sua proteasi bersaglio scinde l'ansa del sito reattivo LEI (RSL), la molecola inibitrice della proteasi subisce un drastico cambiamento conformazionale, allungando meccanicamente la proteasi in una forma inattiva10,11. Sorprendentemente, questo rompe e distende anche la molecola stessa del LEI e smaschera un sito criptico della DNasi che è coperto nel suo ripiegamento nativo, convertendo così il LEI in un'endonucleasi attiva L-DNasi II (DNasi II derivata dal LEI)11,12. Il sito criptico della DNasi può anche essere esposto dalla denaturazione e dalla rottura del LEI causata dalla sua incubazione notturna a pH 2 in acido solforico10,13. L'utilizzo di questo test FRET per studiare i LEI ha dimostrato che i trattamenti di denaturazione chimica e la scissione enzimatica mirata non sono strettamente necessari per smascherare l'attività nucleolitica latente dei LEI.
L'applicazione e il protocollo presentati dell'approccio FRET raziometrico descrivono la scoperta di una debole attività della DNasi intrinsecamente presente nel LEI normale e non denaturato. La scoperta della capacità nucleolitica intrinseca del LEI non scisso e la sua analisi sono state possibili grazie all'idoneità del test per lunghi periodi di osservazione a diversi livelli di pH acido.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
Valutazione dell'attività della DNasi mediante trasferimento di energia di risonanza a fluorescenza raziometrica
Il metodo è adatto per la rilevazione e l'analisi delle proprietà nucleolitiche di una proteina solubile. Per esaminare la dipendenza dal pH della DNasi studiata, la procedura valuta simultaneamente l'attività della DNasi in un intervallo di valori di pH. La tecnica può essere utilizzata per studiare le attività delle nucleasi deboli e lente. I dettagli dei reagenti e delle attrezzature utilizzate in questo studio sono elencati nella tabella dei materiali.
1. Preparazione dei componenti della miscela di incubazione per il sistema di valutazione fluorimetrica
- Preparare le soluzioni tampone agli intervalli di pH desiderati. Per un intervallo di pH compreso tra 6,8 e 8,0, utilizzare Tris-HCl o tamponi fosfato. Utilizzare il tampone Tris-HCl per condizioni fisiologiche di pH (pH da 7,2 a 8,0) grazie alla sua stabilità e alla minima interferenza con l'attività enzimatica.
NOTA: I tamponi fosfato sono appropriati per questo intervallo di pH, ma sono meno adatti per valori di pH più elevati (>7,5) a causa delle loro limitazioni di capacità tampone.
Per un intervallo di pH compreso tra 4,2 e 7,2, utilizzare tamponi acetato o citrato. Il tampone acetato è efficace per condizioni di pH più basse, fino a pH 4,2.
NOTA: Il tampone citrato è utilizzabile a valori di pH leggermente più alti (pH da 5,6 a 7,2) e offre una buona capacità tampone. Questi tamponi sono adatti per studiare l'attività della DNasi in condizioni da acide a neutre. Lo studio presentato sull'attività nucleolitica del LEI ha utilizzato tamponi acetato di sodio da 10 mM con pH compreso tra 4,8 e 6,5. - Diluire il campione proteico a una concentrazione adeguata in ciascuna soluzione tampone. Quando l'attività nel campione è completamente sconosciuta, preparare una serie di diluizioni della proteina. La diluizione ottimale dipende dalla forza dell'attività della DNasi e deve essere determinata sperimentalmente testando diverse concentrazioni proteiche.
NOTA: Lo studio presentato sull'attività nucleolitica ultradebole del LEI lo ha utilizzato a una concentrazione di 1 μM.- Controllare sempre il pH della soluzione finale quando si utilizzano tamponi altamente concentrati, poiché il pH dei tamponi concentrati può cambiare dopo la diluizione.
- Preparare la soluzione raziometrica della sonda FRET in acqua priva di nucleasi. Utilizzare concentrazioni della sonda FRET vicine a 1 μM (1 pmol/μL). Evitare l'uso di sonde in concentrazioni molto elevate.
Riscaldare e raffreddare rapidamente la soluzione della sonda prima dell'applicazione per garantire la completa dissociazione degli accoppiamenti di basi indesiderati.
NOTA: Lo studio presentato sull'attività nucleolitica del LEI ha utilizzato una concentrazione di 1 μM (1 pmol/μL) della sonda FRET in acqua priva di nucleasi.
2. Induzione della reazione DNasi utilizzando la sonda FRET raziometrica come substrato
- Preparare tre pozzetti in una piastra a 96 pozzetti per ogni condizione di pH da testare. Includere tre pozzetti aggiuntivi, ciascuno per i controlli positivi e negativi.
- In ogni pozzetto per la serie di pH, combinare quanto segue:
70 μl di acqua priva di nucleasi
10 μL di tampone 10X (tampone a scelta)
10 μL di campione con proteine
10 μL di soluzione raziometrica della sonda (10 pmol/μL di concentrazione madre)
NOTA: Lo studio presentato sull'attività nucleolitica del LEI nel pH acido ha utilizzato il seguente tampone 10X: 100 mM di acetato di Na pH 5,2 - In ogni pozzetto di controllo positivo, combina quanto segue:
79 μl di acqua priva di nucleasi
10 μL di tampone 10X DNasi II (100 mM di Na Acetato pH 5,2)
0,33 μL di DNasi II (1 U/μL stock)
10 μL di soluzione raziometrica della sonda (10 pmol/μL di concentrazione madre)
NOTA: Per gli studi a pH acido, utilizzare la DNasi II come controllo positivo. Quando si valuta l'attività della DNasi vicino a pH 7 (in particolare pH 6,5-8), passare alla DNasi I e al suo tampone associato (ad esempio, 10 mM Tris-HCl, 2,5 mM MgCl2, 0,5 mM CaCl2, pH 7,6) invece della DNasi II e del tampone acetato. - In ogni pozzetto di controllo negativo aggiungere acqua priva di nucleasi al posto del campione proteico.
- In ogni pozzetto per la serie di pH, combinare quanto segue:
- Indurre la reazione DNasi aggiungendo le soluzioni della sonda alle miscele di reazione contenenti la proteina DNasi a diversi valori di pH.
NOTA: Mescolare accuratamente tutti i campioni evitando la formazione di bolle. Per i campioni di DNasi attivi, avviare tutte le reazioni il più vicino possibile alla simultaneità. Per un'attività ultra-debole, come quella del LEI, una tempistica rigorosa è meno critica.
NOTA: Per garantire tempi di incubazione costanti, soprattutto quando si tratta di nucleasi attive, scaglionare l'aggiunta dei campioni in base al tempo necessario per ciascuna misurazione. Ad esempio, se ogni misurazione richiede 10 s, aggiungere il secondo campione 10 s dopo il primo.
3. Incubazione
- Incubare la DNasi studiata con la sonda FRET raziometrica a 37°C in un bagno d'acqua o in un incubatore a temperatura regolata per vari periodi di tempo. Utilizza più punti temporali con intervalli di campionamento regolari per valutare con precisione i tassi di turnover enzimatico e ridurre al minimo gli artefatti. Lo studio presentato sull'attività nucleolitica ultradebole del LEI ha utilizzato incubazioni di 24 ore per registrare la reazione nucleolitica lenta.
NOTA: Determinare il tempo di incubazione ottimale negli esperimenti preliminari, perché dipende dalla forza della DNasi studiata. Una nucleasi attiva richiederebbe un tempo molto breve per completare la scissione della sonda, quindi iniziare con un'incubazione di 15-30 minuti. Se il campione è troppo concentrato e la reazione è troppo veloce, la concentrazione proteica deve essere ridotta. Se la proteina del campione è troppo debole, il tempo di incubazione può aumentare secondo necessità.
4. Normalizzazione del segnale alle stesse condizioni di pH
- Arrestare tutte le reazioni di incubazione aggiungendo 100 μL di 250 mM di Tris-HCL (pH 8,0). Questo passaggio equalizza anche il pH in tutti i campioni.
NOTA: La fase di equalizzazione del pH è importante quando si confrontano le reazioni avviate in diverse condizioni di pH. La procedura garantisce la completa separazione dei frammenti della sonda, massimizzando il segnale basato su FRET. Inoltre, l'emissione di fluorofori FAM della sonda è ridotta a pH acido ed è ottimale a pH 8,0. Per i campioni con una forza ionica più elevata di quelli utilizzati in questo studio, potrebbe essere necessaria una soluzione di equalizzazione più concentrata (>250 mM) e con pH più elevato (>8,0) per ottenere un'efficace regolazione del pH.
NOTA: Il pH alcalino blocca efficacemente l'attività delle nucleasi acide come il LEI, come dimostrato nel presente studio. Per le nucleasi neutre o alcaline, devono essere identificati e applicati metodi di inattivazione specifici appropriati prima della valutazione del segnale.
5. Rilevamento del segnale fluorimetrico e calcolo dei rapporti FRET
- Immediatamente dopo la fase di equalizzazione del pH, utilizzare uno spettrofluorimetro per registrare gli spettri di emissione dei fluorofori donatori e accettori. Esegui le misure direttamente nella piastra a 96 pozzetti eccitando il fluoroforo donatore a 488 nm e rilevando contemporaneamente le emissioni a 525 nm (donatore) e 580 nm (segnale accettore derivato da FRET).
- Utilizzare le intensità di fluorescenza registrate per valutare l'attività della DNasi in ciascun campione. Applicare metodi statistici appropriati per analizzare i dati e valutare la significatività.
NOTA: Calcolare il rapporto FRET utilizzando la formula: RFRET = Emissione donatrice a 525 nm/Emissione accettore a 580 nm. In questo test, la scissione del DNA interrompe il FRET separando i fluorofori, con conseguente aumento dell'emissione del donatore e diminuzione dell'emissione dell'accettore. Questo spostamento aumenta il rapporto FRET (RFRET), che funge da indicatore dell'attività della DNasi.
6. Verifica della scissione basata su PAGE
- Verificare la scissione della sonda FRET eseguendo l'elettroforesi su gel di poliacrilammide denaturante (PAGE)14. La sonda FRET e i suoi prodotti di scissione sono marcati in modo fluorescente e visibili senza ulteriori macchie.
NOTA: Nello studio rappresentativo, la scissione mediata da LEI della sonda FRET a 38 metri è stata confermata dalla denaturazione di PAGE (vedi Figura 2). L'analisi ha rivelato che il LEI ha prodotto frammenti marcati con FAM 6-8-mer e frammenti marcati con TAM 15-16-mer, coerenti con la scissione vicino a entrambi gli apici delle forcine. Questo modello differiva dal profilo del frammento generato da DNase II.- Caricare 15 μl di ciascun campione su un gel PAGE denaturante al 20%.
- Far funzionare il gel per 1 ora a 100 V.
- Acquisisci immagini di gel utilizzando un sistema di documentazione dotato di una telecamera a colori ad alta risoluzione.
NOTA: Le immagini dello studio rappresentativo sono state acquisite utilizzando una fotocamera reflex digitale.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Questo studio rappresentativo evidenzia i vantaggi specifici dell'approccio FRET raziometrico per lo studio delle reazioni enzimatiche lente che richiedono lunghi periodi di osservazione. In particolare, l'applicazione dimostra il rilevamento e l'analisi dell'attività DNase intrinseca del LEI utilizzando un sistema FRET raziometrico. I risultati di questo studio sono mostrati nella Figura 2.
Utilizz...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
Questo studio dimostra l'applicazione del FRET raziometrico per il rilevamento e la valutazione dell'attività della DNasi utilizzando un inibitore dell'elastasi leucocitaria (LEI) a nucleasi debole. L'approccio fornisce un metodo conveniente e quantitativo per valutare le proprietà della DNasi di proteine e biomolecole. Il suo protocollo è diretto e la sua procedura di analisi dei dati è diretta e semplice. Il test utilizza una sonda FRET da 38 mer che tollera lunghe incubazioni a vari p...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
Questa ricerca è stata supportata dalla sovvenzione R01 GM148812 dal National Institute of General Medical Sciences, NIH; da sovvenzioni R21 CA255979 dal National Cancer Institute, NIH; e sovvenzioni R21 AG073887 e R21 AG071978 entrambe dal National Institute on Aging, NIH (tutti V.V.D.).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Piastra a 96 pozzetti | Falcone | 353219 | |
| Sonda FRET DNA | IDT DNA | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3'; FAM – Fluoresceina-dT; TAM – Tetrametilrodammina-dT. | |
| DNasi II | Sigma Aldrich | D8764 | |
| Fotocamera reflex digitale EVOLT | Olimpo | E500 | |
| Apparecchio per elettroforesi su gel con alimentatore | Bio-Rad | ||
| LEI | Novoproteina | CJ01 | |
| Sistema di imaging su gel LiCOR | LiCOR | ||
| Acqua priva di nucleasi | Invitrogen | 10977015 | |
| Gel PAGE prefabbricato | Invitrogen | EC68852 | |
| Soluzione tampone di acetato di sodio pH 5,2 | Sigma Aldrich | S2899-100ML | |
| Spettrofluorimetro | Tecan | Saffire 2 |
Riferimenti
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
