Qui presentiamo uno studio stabilito nell'iDiv Ecotron, camere del mesocosmo terrestre con condizioni ambientali controllate sopra e sotto terra, per studiare gli effetti indipendenti e interattivi della storia delle piante e della storia del suolo sul funzionamento dell'ecosistema delle comunità di praterie lungo un gradiente di diversità vegetale.
Articolo metodologico
JenaTron - Un approccio sperimentale per studiare gli effetti della storia delle piante e della storia del suolo sul funzionamento dell'ecosistema delle praterie
In questo articolo
Sommario
Abstract
La perdita globale di biodiversità ha motivato molti studi che variano sperimentalmente la ricchezza delle specie vegetali ed esaminano le conseguenze per il funzionamento dell'ecosistema. Tali esperimenti mostrano generalmente una relazione positiva tra la biodiversità superficiale e sotterranea e il funzionamento degli ecosistemi terrestri. Inoltre, questa relazione tende a rafforzarsi nel tempo, vista come un miglioramento del funzionamento di diverse comunità vegetali e una riduzione del funzionamento di comunità vegetali a bassa diversità. Si ipotizza che le differenze nell'assemblaggio di comunità multitrofiche e nelle interazioni biotiche nelle comunità vegetali ad alta e bassa diversità influenzino le prestazioni delle piante alterando la struttura e la funzione della comunità di consumatori e guidando le risposte plastiche o micro-evolutive delle specie vegetali nelle comunità vegetali. Per risolvere questa complessa interazione della storia della comunità, abbiamo separato questi effetti in storia delle piante e del suolo. La storia delle piante si riferisce a tutte le risposte a livello di pianta alle passate pressioni di selezione abiotica e biotica sperimentate nelle loro comunità, mentre la storia del suolo si riferisce a tutte le proprietà abiotiche e biotiche del suolo sviluppate come eredità delle interazioni pianta-suolo in condizioni di diversità vegetale variabile. Abbiamo allestito un esperimento sulla biodiversità in un Ecotron, una struttura mesocosmica terrestre che consente di controllare le condizioni ambientali sopra e sotto terra, per verificare se il rafforzamento della relazione tra biodiversità e funzionamento dell'ecosistema è dovuto alla storia del suolo, alla storia delle piante o a una combinazione di entrambe. Abbiamo stabilito un gradiente di diversità vegetale composto da 1, 2, 3 e 6 specie di piante da prateria e nidificato fattorialmente con la storia del suolo e i trattamenti della storia delle piante per ogni livello di ricchezza delle specie vegetali. Risultati rappresentativi dimostrano il successo dell'istituzione di trattamenti target nell'esperimento Ecotron, osservando gli effetti della storia delle piante e del suolo sullo sviluppo iniziale e sulla crescita finale delle piante. Inoltre, forniamo un caso di studio per l'analisi dei dati delle variabili di risposta individuali. Delineiamo gli obiettivi e i metodi di ricerca per valutare in modo completo le risposte multifunzionali ai trattamenti sperimentali necessari per affrontare in definitiva l'ipotesi generale.
Introduzione
Negli ultimi tre decenni, le crescenti preoccupazioni per la perdita di biodiversità hanno spinto un'ampia ricerca incentrata sulla manipolazione sperimentale della ricchezza di specie vegetali per studiarne l'impatto sul funzionamento dell'ecosistema 1,2. Studi sperimentali hanno dimostrato una relazione positiva tra la diversità vegetale e il funzionamento dell'ecosistema1, che tende ad aumentare nel tempo 3,4,5,6,7,8,9. Si tratta di una scoperta significativa, in quanto suggerisce che i risultati sperimentali ottenuti da comunità giovani e di recente costituzione probabilmente sottovalutano le conseguenze della perdita di biodiversità, sottolineando al contempo l'importanza diconservare gli ecosistemi più vecchi e ricchi di specie.
I cambiamenti nei processi biotici e abiotici nel tempo, che possono essere osservati solo in esperimenti a lungo termine, sono una possibile spiegazione per gli effetti amplificanti della biodiversità sul funzionamento dell'ecosistema. Un'elevata diversità vegetale è stata associata ad aumenti delle concentrazioni di carbonio e nutrienti nel suolo 3,9,11,12,13, complementarità ottimizzata delle risorse 3,8,14, maggiore differenziazione di nicchia tra le piante15, accumulo di mutualisti a tutti i livelli trofici10,16, e la diminuzione delle minacce da parte di agenti patogeni ed erbivori attraverso meccanismi di regolazione top-down più forti 17,18,19. Al contrario, una bassa diversità vegetale è stata associata a una pressione selettiva verso un aumento degli investimenti nelle difese delle piante e un uso meno efficiente delle risorse 10,20,21,22. Nel complesso, si ipotizza che le differenze nell'assemblaggio di comunità multitrofiche e nelle interazioni biotiche nelle comunità vegetali ad alta e bassa diversità influenzino le prestazioni delle piante alterando la struttura e la funzione della comunità di consumo, oltre a guidare i cambiamenti plastici o micro-evolutivi delle specie vegetali a livello di comunità vegetali 23,24,25,26. Per risolvere la complessa interazione della storia della comunità, questi effetti sono stati separati in due componenti importanti: la storia delle piante e la storia del suolo. La storia delle piante si riferisce a tutte le risposte delle piante alle passate pressioni di selezione abiotica e biotica sperimentate nelle rispettive comunità, mentre la storia del suolo si riferisce a tutte le proprietà abiotiche e biotiche del suolo sviluppate a seguito di interazioni pianta-suolo 23,24,27,28. Entrambe le componenti sono sempre più riconosciute come fattori chiave negli effetti a lungo termine sulla biodiversità 29,30,31.
Gli studi sperimentali sul campo forniscono preziose informazioni sugli effetti a lungo termine della storia del suolo e delle piante in condizioni ambientali realistiche e su larga scala spaziale32,33. Tuttavia, gli esperimenti sul campo sono soggetti a vari fattori esterni incontrollati, come le fluttuazioni meteorologiche, i disturbi naturali e le interazioni con altri organismi. Al contrario, gli esperimenti di microcosmo su piccola scala, sebbene limitati nel catturare la complessità e le dinamiche degli ecosistemi naturali, offrono un controllo preciso su fattori abiotici come la temperatura, la luce e l'acqua34. Per combinare i vantaggi di entrambi gli approcci, negli anni '90 sono emerse nuove strutture sperimentali chiamate "Ecotrons" (ad esempio, Ecotron a Silkwood, Regno Unito34; Ecotron a Montpellier, Francia35; Ecotron a Hasselt, Belgio36). Roy et al. (2021)37 definiscono un Ecotron come una struttura sperimentale costituita da involucri replicati progettati per ospitare campioni di ecosistemi, consentendo una simulazione realistica delle condizioni ambientali sopra e sotto il suolo, facilitando al contempo la misurazione simultanea e automatizzata dei processi ecosistemici. Pertanto, gli Ecotron consentono lo studio integrato di processi ecosistemici complessi, interazioni multitrofiche e funzioni ecosistemiche. Possono ospitare una varietà di organismi sopra e sotto terra da più livelli trofici in una grande serie di camere mesocosmiche indipendenti, consentendo un controllo e un monitoraggio precisi delle condizioni ambientali sia nei sistemi sopra che sotto terra37,38.
In questo studio, abbiamo allestito un esperimento nell'iDiv Ecotron38,39, denominato "JenaTron Experiment" (Figura 1 e Figura 2), per verificare se le relazioni tra biodiversità e funzionamento dell'ecosistema (BEF) in comunità con diversi livelli di ricchezza di specie vegetali sono modulate dalla storia del suolo, dalla storia condivisa delle piante o da un effetto combinato di entrambi. L'iDiv Ecotron è specificamente progettato per esperimenti di biodiversità multitrofica, concentrandosi sullo studio congiunto delle interazioni sopra e sotto il suolo negli ecosistemi terrestri 38,39,40. Comprende 24 unità sperimentali identiche, denominate "EcoUnits" (Figura 2F, G), ciascuna in grado di ospitare fino a quattro singoli ecosistemi in compartimenti isolati (Figura 2K), consentendo la costruzione di ecosistemi complessi e quasi naturali, riducendo al minimo l'impatto della variabilità ambientale. Un vantaggio chiave è la capacità di stabilire repliche multiple di monoliti del suolo intatti (Figura 2A-C) in condizioni ambientali controllate, che consente la misurazione di intricati processi ecosistemici, inclusi gli effetti di feedback pianta-pianta e pianta-suolo, che sono spesso difficili da catturare in esperimenti di microcosmo su piccola scala38,39.
In Europa, le praterie seminaturali sono tra gli ecosistemi terrestri più complessi e ricchi di biodiversità e forniscono servizi ecosistemici vitali. Tuttavia, dall'inizio del XXsecolo, queste praterie gestite in modo estensivo hanno dovuto affrontare crescenti minacce dovute al cambiamento di destinazione d'uso del suolo, rendendole un punto chiave per la conservazione e la ricerca sulla biodiversità. Uno degli esperimenti di biodiversità più longevi al mondo su praterie gestite in modo estensivo è l'Esperimento di Jena32,33, situato a Jena, in Germania (50.951°N, 11.621°E, 139 m s.l.m.; sito web: https://the-jena-experiment.de). Istituito nel 2002, l'esperimento indaga le relazioni tra la diversità vegetale delle praterie e il funzionamento dell'ecosistema, concentrandosi in particolare sul ciclo dei nutrienti e sulle interazioni trofiche32,33. Per l'installazione dell'esperimento JenaTron all'interno dell'iDiv Ecotron, abbiamo utilizzato l'esperimento Trait-Based41 (TBE), un componente dell'esperimento Jena iniziato nel 2010 e completato nel 2021. Nel 2022, 23 appezzamenti del TBE sono stati selezionati per stabilire un gradiente di diversità vegetale che va da una a sei specie, coprendo oltre 24 comunità vegetali all'interno dell'iDiv Ecotron. Queste comunità comprendevano sei specie di piante delle praterie, che si sovrapponevano all'esperimento principale dell'esperimento di Jena e rappresentavano tre specie di graminacee (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) e tre specie forb (Leucanthemum vulgare agg., Plantago lanceolata L. e Ranunculus acris L.; vedi Tabella 1 per i dettagli sulla composizione delle specie vegetali e le repliche per ciascun livello di diversità vegetale). Queste specie, diffuse e frequentemente coesistenti nelle praterie europee seminaturali, differiscono inoltre nei loro tratti di acquisizione delle risorse temporali, rendendole ideali per studi completi sull'uso delle risorse temporali, come la fenologia delle piante41. Le 24 composizioni vegetali sono state assegnate in modo casuale a tutte le EcoUnit (Figura 1C), con ciascuna EcoUnit ulteriormente suddivisa in quattro compartimenti per ospitare le combinazioni fattoriali di trattamenti di storia del suolo e storia delle piante.
La storia del suolo (Figura 1A) è stata stabilita scavando un totale di 96 monoliti del suolo dall'esperimento di Jena. Il suolo del sito è un suolo di pianura alluvionale ricco di sostanze nutritive classificato come Eutric Fluvisol, sviluppato da sedimenti fluviali argillosi32,33. Informazioni dettagliate sul pH del suolo, sui cambiamenti nella struttura del suolo e sulla materia organica all'interno del profilo del suolo dell'esperimento di Jena sono disponibili in Lange et al. (2023)9. Dei 96 monoliti, 48 sono stati ottenuti scavando due monoliti da ciascuno dei 22 appezzamenti di TBE, che comprendono monocolture, miscele di due e tre specie. Inoltre, quattro monoliti sono stati prelevati da un appezzamento di otto specie, che servirà come miscela di sei specie nell'esperimento JenaTron. Ciascuno di questi 48 monoliti del suolo (profondità: 0,8 m; diametro: 0,5 m) ospitava una comunità di residenza specifica per il lotto dal 2010, rappresentando così una storia del suolo specifica per la comunità vegetale (+SH). I restanti 48 monoliti sono stati scavati da quattro appezzamenti di terreno nudo che sono stati mantenuti liberi dalla vegetazione dall'inizio dell'esperimento di Jena nel 2002, quindi privi di qualsiasi storia del suolo specifica della comunità vegetale (-SH). Da ciascuno dei quattro appezzamenti di terreno nudo, sono stati scavati 12 monoliti. I due trattamenti di storia del suolo (+SH; -SH) sono stati combinati fattorialmente con due trattamenti di storia delle piante piantando piante pre-cresciute che riflettevano la composizione specifica della comunità vegetale della TBE a una densità uguale, con singole piante distanziate di 6 cm l'una dall'altra.
La storia delle piante (Figura 1B) è stata stabilita utilizzando due fonti di semi distinte per ciascuna delle specie vegetali selezionate dal pool di specie dell'Esperimento di Jena: La prima fonte consisteva in semi raccolti da piante che avevano sperimentato una storia specifica della comunità dal 2010, corrispondenti agli esatti appezzamenti dell'Esperimento basato sui tratti (TBE) da cui sono stati scavati i monoliti del suolo (+PH). Questi semi sono stati raccolti da maggio a settembre 2019 a seconda della fenologia della fioritura della specie, garantendo un campionamento minimo di cinque individui per specie e appezzamento. Dopo la raccolta, i semi sono stati puliti e conservati a -20°C fino all'inizio dell'esperimento JenaTron. La seconda fonte di sementi comprendeva sementi ottenute da un fornitore commerciale di sementi che produceva sementi di provenienza regionale. Questi semi sono stati utilizzati per stabilire i grafici TBE nel 2010, rappresentando così piante senza una storia di selezione specifica della comunità all'interno dell'esperimento Jena (-PH) e sono stati conservati a -20°C dal 2010 fino all'inizio dell'esperimento JenaTron. Entrambe le storie delle sei specie di piante perenni sono state pre-coltivate da febbraio a maggio 2022 in quattro camere della serra di ricerca iDiv situata a Lipsia, in Germania (51.330°N, 12.393°E, 120 m s.l.m.).
La combinazione fattoriale di storia del suolo (SH) e storia delle piante (PH) a ciascun livello di ricchezza di specie vegetali ha portato a quattro trattamenti all'interno di ciascuna delle 24 EcoUnità: (1) con storia del suolo, con storia delle piante (+SH/+PH), (2) con storia del suolo, senza storia delle piante (+SH/-PH), (3) senza storia del suolo, con storia delle piante (-SH/+PH) e (4) senza storia del suolo, senza anamnesi (-SH/-PH; Figura 1C). L'obiettivo principale dell'esperimento JenaTron è quello di indagare se il rafforzamento della relazione tra biodiversità e funzionamento dell'ecosistema sia dovuto alla storia del suolo, alla storia delle piante o a una combinazione di entrambe. Ipotizziamo che le comunità vegetali con una storia specifica condivisa di piante e suolo mostreranno la più forte relazione BEF, mentre un'esclusione sperimentale della storia del suolo, della storia delle piante o di entrambe potrebbe avere effetti dannosi sulle relazioni positive della diversità vegetale e del funzionamento dell'ecosistema. In definitiva, se la storia del suolo o delle piante dovesse alterare la relazione tra la ricchezza delle specie vegetali e il funzionamento dell'ecosistema, ciò costituirebbe una considerazione importante per la conservazione e il monitoraggio delle comunità conservate localmente e delle nuove comunità ripristinate.
Protocollo
NOTA: Assicurarsi che in tutte le fasi del protocollo siano forniti dispositivi di protezione individuale adeguati (ad es. caschi, guanti, gilet, scarpe antinfortunistiche, ecc.).
1. Terreni: preparazione, scavo, installazione
- Fonti del suolo, selezione e preparazione degli appezzamenti (febbraio 2022)
- Seleziona due fonti di suolo dal sito sul campo dell'esperimento di Jena:
- Seleziona 23 appezzamenti TBE che hanno ospitato una comunità specifica per 12 anni al fine di coprire un gradiente di diversità vegetale di 1, 2, 3 e 6 specie. Designare questi appezzamenti come trattamento dell'esperimento JenaTron "con storia del suolo specifica della comunità vegetale" (+SH).
- Seleziona 4 appezzamenti di terreno nudo con le stesse proprietà del suolo degli appezzamenti TBE (pH, contenuto di sabbia, ecc.), ma mantenuti senza copertura vegetale dal 2002. Designare questi appezzamenti come trattamenti dell'esperimento JenaTron "senza una storia specifica della comunità vegetale" (-SH).
- Rimuovere delicatamente i 5 cm superiori di terreno da tutti gli appezzamenti selezionati utilizzando un miniescavatore per equalizzare le condizioni tra i trattamenti della storia del suolo.
- Seleziona due fonti di suolo dal sito sul campo dell'esperimento di Jena:
- Scavo del monolite del suolo (marzo 2022)
- Installare il dispositivo di estrazione monolitico in ogni appezzamento, montare un sistema di taglio su un cilindro di acciaio vuoto e inserirlo nel dispositivo di estrazione (Figura 2A).
- Accendere il dispositivo e il sistema di taglio ruoterà attorno alla parete esterna del cilindro. Il sistema scava una tacca nel terreno in cui il dispositivo di estrazione preme contemporaneamente il cilindro d'acciaio. Parallelamente, utilizzare un mini-escavatore per scavare una fossa a lato del cilindro d'acciaio (Figura 2B).
- Una volta che il cilindro d'acciaio è completamente incorporato nel terreno, arrampicarsi nella fossa laterale e agganciare il monolite al bordo inferiore del cilindro d'acciaio montando una piastra inferiore temporanea e utilizzare il dispositivo di estrazione del monolite per sollevarlo dalla fossa di scavo (Figura 2C).
- Smontare il sistema di taglio dal cilindro in acciaio, montare una piastra superiore temporanea sul cilindro in acciaio, sollevare il monolite utilizzando una sospensione fissata al miniescavatore e capovolgerlo.
- Installazione del sistema di aspirazione dell'acqua (marzo 2022)
- Smontare la piastra inferiore, rimuovere circa 5 cm di strato di terra con una spatola e riporla per un uso successivo.
- Incorporare un anello di sonde di aspirazione dell'acqua (8 candele collegate con tubi in cloruro di polivinile [PVC]) nella polvere di quarzo, inumidirlo con acqua demineralizzata (VE) e riempire il fondo del cilindro in acciaio con il terriccio precedentemente rimosso.
- Collegare l'estremità in PVC dell'anello della sonda di aspirazione dell'acqua alla piastra inferiore e imbullonarla successivamente.
- Ruotare nuovamente il cilindro d'acciaio con la sospensione del miniescavatore, etichettarlo singolarmente, sigillare le aperture nelle pareti del cilindro con nastro adesivo e avvolgere il cilindro in un foglio di plastica per proteggerlo durante il trasporto.
- Trasporta i monoliti del suolo con un camion all'iDiv Ecotron, situato presso la stazione sperimentale del Centro Helmholtz per la ricerca ambientale (UFZ) a Bad Lauchstädt, Germania (51.392°N, 11.876°E, 116 m s.l.m.).
- Installazione di sensori del suolo (aprile 2022)
- Dopo il disimballaggio, praticare i fori di precisione per i sensori orizzontalmente nel monolite del terreno con una lama in acciaio personalizzata utilizzando le aperture nella parete del cilindro a tre diverse profondità (9,5 cm, 21,5 cm e 43,5 cm).
- Posiziona i sensori del terreno nei fori, usa un tronco di legno per portarli nella giusta posizione e bullona le aperture con tappi di tenuta su misura.
- Installazione dei monoliti del suolo nelle EcoUnit (aprile 2022)
- Sollevare con cautela la parte tecnica e superiore di ciascuna EcoUnit dalla parte inferiore (Figura 2G). Trasporta la parte inferiore ai cilindri in acciaio che ospitano i monoliti del terreno intatti dotati di sensori del suolo.
- Fissare ogni cilindro d'acciaio a una sospensione, sollevarlo con un carrello elevatore e montare un connettore sull'anello della candela di aspirazione collegato alla piastra inferiore.
- Sollevare quattro monoliti del suolo nel contenitore inferiore di ciascuna delle 24 EcoUnit (Figura 2F), due con la stessa storia del suolo specifica della comunità vegetale (+SH) e due senza la stessa storia del suolo specifica della comunità vegetale (-SH). Far passare i cavi dei sensori del suolo attraverso le aperture del contenitore di terra.
- Fissare i cilindri in acciaio alla parte inferiore con le viti e successivamente collegare gli anelli delle candele di aspirazione dell'acqua di ciascun cilindro al sistema di aspirazione dell'acqua dell'EcoUnit tramite il connettore precedentemente installato.
- Utilizzare il carrello elevatore per trasportare il container dotato dei monoliti di terra in un capannone (24 m x 24 m).
- Posizionare con cura le parti tecniche e superiori (con le pareti interne tra le sottounità [Figura 2K]) di ciascuna EcoUnit sopra la parte inferiore.
- Disponi tutte le 24 EcoUnit in tre file, ciascuna composta da due gruppi di quattro EcoUnit, per un totale di sei blocchi. Garantire una distanza da centro a centro di 6 m tra i blocchi all'interno di ciascuna fila e di 8,2 m tra le file. In ogni blocco, assegna in modo casuale i quattro livelli di diversità delle piante (1, 2, 3 e 6) alle quattro EcoUnità, garantendo una distribuzione uniforme delle specie in tutte le EcoUnità, ove possibile.
2. Piante: Preparazione e impianto di coltivazione
- Selezione delle specie e del materiale delle sementi
- Seleziona le seguenti sei specie di piante dal pool di specie dell'esperimento di Jena: Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) e Ranunculus acris L. (Ranunculaceae).
- Per ogni specie, selezionare il materiale del seme proveniente da due diverse fonti di seme:
- Usa semi di piante che sono cresciute sugli appezzamenti TBE dell'esperimento Jena dal 2010 (con storia delle piante, +PH).
- Utilizzare il materiale di semina originale che è stato utilizzato per avviare la TBE nel 2010 proveniente da un produttore di sementi regionale (senza storia vegetale, -PH).
- Preparazione del supporto (febbraio 2022)
- Raccogli il terreno specifico del lotto da ciascuno dei lotti selezionati presso il sito del campo dell'esperimento di Jena. Riempi il terriccio in scatole di plastica da 20 L e conservalo a 4 °C fino al momento in cui viene utilizzato per la coltivazione delle piante.
- Setacciare ogni terreno specifico dell'appezzamento attraverso una maglia di 4 mm. Mescola il terreno dei quattro appezzamenti di terreno nudo prima di setacciare.
- Per rimuovere il biota indesiderato, trasferire la sabbia di quarzo in contenitori di acciaio inossidabile e scaldare in un forno di essiccazione per 4 ore a 200 °C.
- Mescola il terreno specifico dell'appezzamento e la sabbia di quarzo in volume in un rapporto 3:1 e riempi la miscela di terreno e sabbia in piastre multipot usando una pala di plastica (totale n = 152).
- Etichettare singolarmente ogni piatto multipot e posizionarlo in una serra con un ciclo giorno-notte di 16 h/18 °C e 8 h/12 °C, mantenendo un'umidità moderata del 60%-70% di umidità relativa (RH).
- Innaffia le piastre su richiesta e tienile nude per due settimane per consentire alle banche dei semi del terreno di germogliare. Diserbare tutte le piastre due volte per rimuovere le piantine indesiderate.
- Campagna di semina (marzo-aprile 2022)
- Determinare l'ordine di semina in base al tempo di germinazione specifico della specie come segue:
- Semina R. acris 2 settimane prima di altre erbe
- Semina P. lanceolata e L. vulgare 1 settimana prima delle graminacee A. odoratum, D. glomerata e H. lanatus.
- Semina tutte le specie, ad eccezione di R. acris, direttamente nel substrato terra-sabbia specifico dell'appezzamento (3:1) in piastre multivaso con due o tre semi per vaso. Dopo una germinazione riuscita, diradare tutte le specie in singole piantine usando una pinzetta in acciaio per molle.
- Pretrattare i semi di R. acris in piastre di Petri su carta da filtro inumidita con una soluzione di acido gibberellico (1000 mg. L−1) per interrompere la dormienza (Figura 2D). Incubare i semi per 24 ore.
- Trasferire i semi di R. acris su carta da filtro inumidita con acqua demineralizzata (VE) fino alla germinazione. Una volta che i semi raggiungono lo stadio di radichetta, pungere le piantine nel substrato di terreno e sabbia specifico per l'appezzamento (3:1) nelle piastre multipot preparate utilizzando una pinzetta in acciaio per molle.
- Innaffiare tutti gli individui delle piante con acqua deionizzata su richiesta e tenerli nella serra fino al trasporto all'iDiv Ecotron (Figura 2E-H)
- Determinare l'ordine di semina in base al tempo di germinazione specifico della specie come segue:
- Campagna di piantumazione (maggio 2022)
- Progetta schemi di impianto individuali per tutti i monoliti del suolo con le seguenti caratteristiche:
- Garantire un numero equilibrato di individui per specie all'interno delle comunità vegetali.
- Mantenere una distanza di 6 cm tra ogni individuo di pianta e il suo vicino.
- Randomizza il modello di impianto tra le EcoUnits, ma mantienilo costante all'interno delle subunità.
- Usa uno stencil di piantagione su misura per segnare la posizione esatta di ogni individuo di pianta sui monoliti del terreno. Usa stuzzicadenti di plastica di diversi colori per la marcatura, assegnando un colore specifico a ciascuna specie. Dopo la marcatura, rimuovere lo stencil (Figura 2I).
- Piantare le piante pre-coltivate su tutti i monoliti del terreno entro una settimana utilizzando fioriere a bulbo con un diametro di 4 cm (5280 individui totali di piante; Figura 2J).
- Progetta schemi di impianto individuali per tutti i monoliti del suolo con le seguenti caratteristiche:
3. Svolgimento dell'esperimento
- Fase di costituzione di tre settimane (maggio 2022):
- Sostituire tutti gli individui che non sono sopravvissuti alla campagna di semina entro 2 settimane dalla semina iniziale (n = 124 [2,35%]).
- Accendi le luci e imposta il regime di illuminazione su un ciclo giorno-notte di 16/8 ore. Per replicare la lunghezza del giorno regionale in tarda primavera e in estate all'inizio dell'esperimento, simulare il crepuscolo attenuando le luci dal 100% al 75% di intensità nell'arco di un'ora, quindi allo 0% nell'ora successiva (100% di intensità: ~370 μmol/(m²·s)). Simula l'alba invertendo questo schema di oscuramento.
- Equalizzare l'umidità superiore del suolo al 20% (± 3%) in volume utilizzando un kit di misurazione dell'umidità del suolo.
- Impostare l'irrigazione iniziale a 450 ml ogni 12 ore per ogni subunità.
- Collega i sensori dell'aria e del suolo per monitorare la temperatura e l'umidità durante l'esperimento.
- Fase sperimentale (giugno-ottobre 2022)
- Seguendo la naturale stagionalità, accorciare la lunghezza del giorno di un'ora intera ogni 2 settimane da agosto a ottobre per tenere conto della lunghezza dei giorni regionali dalla fine dell'estate all'autunno.
- Aumentare l'irrigazione iniziale a 650 ml ogni 12 ore a luglio e a 750 ml ogni 12 ore ad agosto, adattandosi alle esigenze idriche delle piante.
- Estirpare costantemente le piantine indesiderate nella fase di cotiledone usando una pinzetta per mantenere la densità delle piante riducendo al minimo il disturbo alla struttura del suolo.
- In conformità con la gestione standard per i prati gestiti in modo estensivo, eseguire due raccolte di biomassa fuori terra, tagliando le piante a 3 cm sopra la superficie del suolo con le forbici.
Risultati
Per fornire informazioni iniziali sull'efficacia di questo approccio nel testare gli effetti indipendenti e interattivi della storia delle piante e del suolo sulle relazioni di funzionamento tra biodiversità ed ecosistema, abbiamo prima valutato le fotografie di due EcoUnit rappresentative dopo la fase di insediamento di 3 settimane dell'esperimento JenaTron, in cui gli effetti del trattamento sono diventati rapidamente visibili (Figura 3). Oltre alle differenze specifiche del trattamento nell'altezza e nel colore della comunità vegetale (Figura 3A), abbiamo anche riconosciuto differenze specifiche del trattamento nel tempo di fioritura di R. acris. In particolare, le piante cresciute da semi senza storia vegetale sembravano avere un inizio di fioritura più precoce rispetto alle piante cresciute da semi con la storia vegetale specifica della comunità dell'esperimento di Jena (Figura 3B).
Per valutare se le comunità di nuova costituzione nell'iDiv Ecotron riflettono accuratamente le comunità di campo originali, è stata eseguita un'analisi comparativa dell'altezza vegetativa delle piante specie-specifica come indicatore dello sviluppo finale delle piante tra l'esperimento JenaTron e i lotti TBE. Nell'esperimento JenaTron, l'altezza della pianta è stata determinata come il valore medio della foglia vegetativa più alta di tre individui per specie vegetale in ciascuna delle 24 comunità e combinazioni di trattamento poco prima della prima campagna di raccolta alla fine di luglio 2022. Nel TBE, l'altezza vegetativa della pianta è stata determinata come il valore medio della foglia vegetativa più alta di tre individui per specie vegetale e appezzamento nel luglio 2012. Le misurazioni dell'altezza delle piante dell'iDiv Ecotron mostrano una forte correlazione con quelle dei grafici sul campo dell'esperimento di Jena (Figura 1 supplementare).
Per fornire un ulteriore caso di studio per l'analisi dei dati, l'altezza vegetativa delle piante nell'iDiv Ecotron è stata studiata in modo più dettagliato. Ci siamo concentrati su analisi a livello di specie e comunità e abbiamo testato se la storia delle piante, la storia del suolo e la diversità delle piante influenzano la crescita vegetativa delle piante. Per questo, abbiamo utilizzato modelli lineari a effetti misti (LMM) e riassunto i risultati tramite ANOVA (somma dei quadrati di tipo I; per i risultati dettagliati dell'ANOVA, vedere la Tabella supplementare 1). A livello di appezzamento, le variabili di risposta erano l'altezza vegetativa media della pianta e il coefficiente di variazione dell'altezza della pianta (CV = sd/media 100). Gli effetti fissi includevano la diversità delle piante (numerico), i trattamenti della storia delle piante e del suolo e le loro interazioni. Gli effetti casuali includevano EcoUnit annidata all'interno del blocco di sale Ecotron. A livello di specie, abbiamo incluso anche le specie e la loro interazione con la diversità vegetale e i trattamenti storici in termini fissi. Le trasformazioni dei dati (log per l'altezza della pianta e radice quadrata per l'altezza (CV) hanno garantito il rispetto delle ipotesi del modello. Le analisi sono state condotte utilizzando R (versione 4.3.1)42 e il pacchetto nlme per LMM43. I risultati hanno mostrato differenze significative tra le specie nell'altezza delle piante, con erbe più alte delle piante (Figura 4, Figura 2 supplementare). In tutte le specie, la storia del suolo ha avuto un effetto positivo sull'altezza delle piante (F(1,66) = 11,11, P = 0,001), mentre la storia e la diversità delle piante non hanno avuto un impatto significativo (F(1,66) = 0,22, P = 0,64 e F(1,17) = 1,52, P = 0,23, rispettivamente; Figura 4). A livello di comunità, la diversità vegetale non ha avuto alcun effetto sull'altezza (F(1,17) = 0,01, P = 0,91; Figura 5A) ma ha aumentato significativamente l'altezza delle piante CV all'interno delle comunità (F(1,17) = 14,29, P = 0,002; Figura 5B). Non sono stati riscontrati effetti significativi della storia della pianta o del suolo sull'altezza della pianta CV (F(1,68) = 0,55; P = 0,46; F(1,68) = 0,09, P = 0,76; Figura 5). Abbiamo caricato i dati e lo script R nel database Jena Experiment (https://doi.org/10.25829/QN9R-J839).

Figura 1: Impostazione dell'esperimento JenaTron. (A) La storia del suolo (SH) è stata stabilita scavando 96 monoliti di suolo intatti dall'esperimento Jena (JE), di cui la metà (n = 48) è stata ottenuta da 23 appezzamenti che hanno ospitato una comunità specifica per l'appezzamento per 12 anni (+SH), mentre l'altra metà (n = 48) è stata ottenuta da quattro appezzamenti di terreno nudo mantenuti privi di vegetazione dall'inizio dell'esperimento di Jena nel 2002 (-SH). (B) La storia delle piante (PH) è stata stabilita utilizzando due fonti di semi per ciascuna delle sei specie vegetali: semi raccolti da piante coltivate dal 2010 sugli stessi appezzamenti, dove i monoliti sono stati scavati nell'esperimento di Jena (+ PH), e i semi originali utilizzati per seminare queste comunità sul campo nel 2010 (-PH). (C) La storia delle piante e la storia del suolo sono state incrociate in modo indipendente per ogni composizione a diversi livelli di diversità vegetale (1, 2, 3 e 6), risultando in quattro trattamenti in ciascuna EcoUnit dell'iDiv Ecotron: (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH e (4) -SH/-PH. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 2: L'iDiv Ecotron presso la stazione di ricerca dell'Helmholtz-Centre for Environmental Research (UFZ) a Bad Lauchstädt, Germania. (A) Attrezzatura per lo scavo di monoliti nel suolo sul campo, (B) Scavo di monoliti nel suolo sul campo, (C) Fossa di scavo sul campo, (D) Preparazione del materiale del seme di Ranunculus acris in piastre di Petri su carta da filtro inumidita con soluzione di acido gibberellico nella serra, (E) Pre-coltivazione di piante con substrato del terreno specifico per l'appezzamento in piastre multipot nella serra, (F) EcoUnit nella sala iDiv Ecotron, (G) Rappresentazione schematica di un'unità sperimentale ("EcoUnit") con attrezzatura tecnica (adattata da Eisenhauer et al. (2019)23 e Schmidt et al. (2021)38), (H) Piastre con tutti gli individui da piantare nell'esperimento JenaTron) dopo il trasporto all'iDiv Ecotron, (I) Marcatura specie-specifica delle posizioni di impianto per tutti gli individui di piante su un monolite di terreno realizzato con uno stencil di piantagione, (J) Piantagione di individui di piante su un monolite di suolo utilizzando fioriere a bulbo, (K) Quattro lisimetri in un'EcoUnit con pareti interne. Clicca qui per visualizzare una versione più grande di questa figura.

Figura 3: Due rappresentanti delle 24 EcoUnità, ognuna delle quali ospita una comunità in tutte le combinazioni di trattamento della storia della pianta e del suolo. (A) EcoUnità con una miscela di 3 specie (A. odoratum, H. lanatus e P. lanceolata) con differenze specifiche per il trattamento nell'altezza e nel colore della vegetazione della comunità. (B) EcoUnit con una monocoltura di R. acris, che indica differenze dipendenti dalla storia della pianta nel tempo di fioritura. Clicca qui per visualizzare una versione più grande di questa figura.
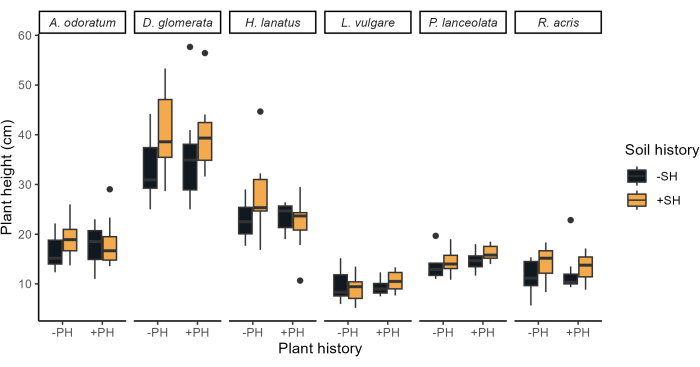
Figura 4: Effetti della storia delle piante e del suolo sull'altezza vegetativa delle sei specie di piante da prato prima del primo raccolto nel luglio 2022. Le specie sono elencate in ordine alfabetico all'interno di gruppi funzionali (graminacee seguite da forbs). I trattamenti anamnestici (+PH/-PH) sono sull'asse x e la storia del suolo (+SH/-SH) è codificata a colori (giallo/nero) nei box plot. Clicca qui per visualizzare una versione più grande di questa figura.
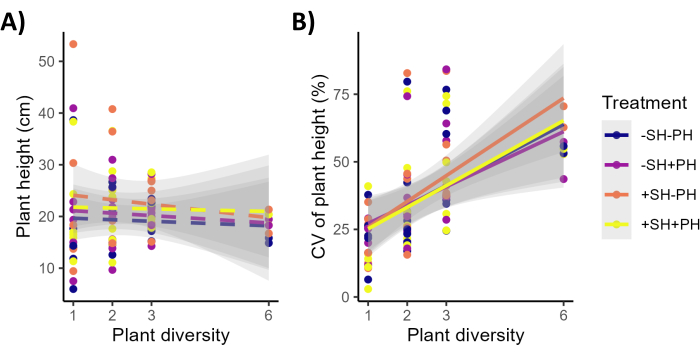
Figura 5: Effetti della ricchezza di specie sulla media della comunità e sulla variazione dell'altezza vegetativa delle piante. (A) Media della comunità. (B) Variazione dell'altezza vegetativa della pianta. (+PH/-PH) per la storia delle piante, (+SH/-SH) per la storia del suolo. La variazione dell'altezza della pianta (CV) è mostrata per sottounità. Le linee tratteggiate rappresentano effetti non significativi, mentre le linee continue rappresentano effetti significativi sulla diversità vegetale. Clicca qui per visualizzare una versione più grande di questa figura.
Tabella 1 Comunità vegetali nell'esperimento JenaTron. Monocolture di tutte le specie vegetali selezionate (n = 6); miscele di 2 specie (n = 9); Miscele di 3 specie (n = 7) tutte con composizioni diverse; e due repliche identiche della miscela di 6 specie (n = 2). Clicca qui per scaricare questa tabella.
Figura supplementare 1: Altezza media delle piante delle specie. Altezza media delle piante delle specie nei grafici (A) JenaTron Experiment (luglio 2022) e in campo (B) TBE (luglio 2012). Nel pannello A sono stati inclusi solo i dati del trattamento con anamnesi delle piante e anamnesi del suolo. C'è una correlazione significativa tra l'altezza delle piante nell'esperimento JenaTron e i grafici di campo (correlazione di Pearson r(49) = 0,45, p = 0,0008). Clicca qui per scaricare questo file.
Figura 2 supplementare: Effetti dei trattamenti di storia delle piante e del suolo sull'altezza vegetativa delle sei specie vegetali a diversi livelli di diversità vegetale (SR). I simboli della legenda +PH e -PH rappresentano trattamenti con e senza storia vegetale, mentre +SH e -SH significano rispettivamente trattamenti con e senza storia del suolo. Clicca qui per scaricare questo file.
Tabella supplementare 1: Risultati ANOVA da modelli lineari a effetti misti che valutano gli effetti della diversità vegetale (ricchezza di specie, SR), della storia del suolo (SH) e della storia delle piante (PH) sull'altezza delle piante sia a livello di specie che a livello di appezzamento. I valori F e p sono riportati per ogni trimestre. Nota: numDF e denDF rappresentano il numeratore e il denominatore gradi di libertà per ogni termine del modello. I valori P < 0,05 suggeriscono un effetto statisticamente significativo sull'altezza della pianta. Clicca qui per scaricare questo file.
Tabella supplementare 2: Misure sopra e sotto il suolo, variabili di risposta e metodi. Uno spettro di misurazioni sopra e sotto il suolo, variabili di risposta e metodi condotti nell'esperimento JenaTron per studiare gli effetti indipendenti e interattivi della storia delle piante e della storia del suolo sulle relazioni BEF per gli ecosistemi nel loro complesso. Clicca qui per scaricare questo file.
Discussione
Con l'esperimento JenaTron, forniamo un approccio sperimentale complementare al sito32,33 dell'esperimento Jena per migliorare la nostra comprensione meccanicistica delle relazioni BEF. L'esperimento sul campo ci consente di studiare gli effetti a lungo termine della storia del suolo e della storia delle piante sul funzionamento dell'ecosistema in condizioni ambientali realistiche, con grandi appezzamenti indisturbati che consentono misurazioni ripetute per molti anni. Le combinazioni selezionate casualmente di specie vegetali da un ampio pool di specie lungo un gradiente di diversità vegetale ben consolidato da monocolture fino a 60 specie aiutano a identificare gli effetti sulla diversità escludendo il più possibile gli effetti specie-specifici32,33. Tuttavia, l'esperimento sul campo, che qui si riferisce esplicitamente all'"esperimento ΔBEF" come parte dell'esperimento di Jena (per ulteriori dettagli, vedi Vogel et al. (2019)29), è limitato nell'indagare la storia del suolo e la storia delle piante completamente indipendenti l'una dall'altra e dalle potenziali influenze di vari fattori esterni, come le fluttuazioni meteorologiche, le perturbazioni naturali e le interazioni con altri organismi29. A questo punto, l'approccio complementare dell'utilizzo degli esperimenti Ecotron entra al centro della ricerca BEF. Gli esperimenti Ecotron rappresentano un importante collegamento tra gli esperimenti di microcosmo su piccola scala e a breve termine, che studiano solo poche o anche solo una singola specie e quindi riducono l'elevata complessità degli esperimenti sul campo o addirittura del mondo reale34,38. Pertanto, l'obiettivo principale degli esperimenti Ecotron non è quello di imitare l'intera complessità della natura, ma piuttosto di creare ecosistemi semplificati ma biologicamente significativi. Questo permette di comprendere meglio molti, ma ovviamente non tutti, i processi biologici e le interazioni che avvengono nel mondo reale34,37. Inoltre, i sistemi chiusi di un Ecotron consentono di studiare flussi e processi, che spesso non possono essere facilmente studiati sul campo35.
Varie modifiche della tecnica sperimentale sono state utilizzate in studi precedenti, sottolineando la significativa adattabilità dell'impianto iDiv Ecotron. Ad esempio, l'esperimento44 "Insect Armageddon", condotto nel 2018, ha comportato una riconfigurazione delle EcoUnit rimuovendo le pareti interne fuori terra e la dissezione sotterranea con cilindri in acciaio. Invece, i contenitori sotterranei sono stati interamente riempiti con una miscela di terra e sabbia, facilitando la creazione di comunità di praterie comprendenti 12 specie vegetali europee su una superficie del suolo di 1,5 m2 per EcoUnit. Questo disegno sperimentale ha permesso l'introduzione di due distinti livelli di abbondanza di invertebrati fuori terra, consentendo ai ricercatori di studiare gli impatti del declino della biomassa degli invertebrati sulle funzioni e sui servizi ecosistemici all'interno degli ecosistemi delle praterie dell'Europa centrale. Un altro esempio illustrativo è l'esperimento "EcoLux", condotto nel 2020, che ha dimostrato una modifica del regime di luce per studiare gli effetti dell'inquinamento luminoso notturno sulla diversità e sulle prestazioni delle piante45 , nonché la sua influenza sulle comunità e sulle funzioni del suolo46. In prospettiva, il potenziale per ulteriori modifiche rimane notevole. L'imminente esperimento "ResCUE", previsto per il 2026, mira a esaminare le relazioni tra la diversità vegetale e la stabilità dell'ecosistema in condizioni climatiche estreme26. Questo esperimento implementerà una siccità calda standardizzata, una condizione ambientale difficile da replicare in ambienti naturali, simulando la riduzione delle precipitazioni insieme all'aumento delle temperature attraverso un gradiente di diversità vegetale delle praterie stabilito nell'iDiv Ecotron. Lo studio si concentrerà sulla valutazione della resistenza e del recupero di molteplici funzioni ecosistemiche in risposta all'evento climatico estremo controllato26.
Tuttavia, l'utilizzo delle strutture di Ecotron per collegare esperimenti sul campo ed esperimenti di microcosmo su piccola scala comporta anche limitazioni, come una scala spaziale ancora relativamente piccola, un basso numero di repliche, una minore complessità biologica e la mancanza di rappresentazione della variabilità climatica naturale37. Inoltre, l'impianto iDiv Ecotron non è in grado di simulare tutti i tipi di scenari climatici, come gli inverni, limitando la sua capacità di studiare le singole piante in un ciclo annuale realistico attraverso diverse generazioni. Quindi, come accennato in precedenza, è molto importante considerare gli studi Ecotron come approcci di ricerca complementari che devono essere considerati in ultima analisi in combinazione con i risultati di altri approcci sperimentali37. Tuttavia, la struttura iDiv Ecotron ci offre l'opportunità unica di studiare monoliti del suolo intatti in condizioni ambientali controllate, di incrociare ortogonalmente piante con diverse storie specifiche della comunità vegetale con suoli con diverse storie specifiche della comunità vegetale e di studiare i loro effetti sul funzionamento dell'ecosistema lungo un gradiente di diversità vegetale, che è difficile da raggiungere in condizioni di campo23, 35. Inoltre, la tecnica consente di studiare le piante nel loro insieme, sia sopra che sotto terra, in condizioni ambientali controllate, che non sono facilmente realizzabili sul campo. Infine, nell'esperimento JenaTron, le comunità vegetali piantate (piuttosto che seminate) sono state stabilite per garantire la parità di densità totale delle piante, con ogni specie rappresentata in proporzioni uguali. Al contrario, nelle comunità seminate, le specie spesso si stabiliscono a ritmi diversi e alcune specie bersaglio possono non riuscire a stabilirsi completamente o potrebbero rimanere in abbondanza molto bassa.
Per garantire la riproducibilità del protocollo presentato, durante l'esecuzione devono essere meticolosamente considerati diversi passaggi critici: (1) Scavo di monoliti nel suolo: uno dei vantaggi chiave dell'impianto iDiv Ecotron è la sua capacità di stabilire un numero sostanziale di repliche di monoliti del suolo intatti in condizioni ambientali controllate. Per garantire l'integrità dei monoliti del suolo, è essenziale mantenere le condizioni ottimali del campo per l'estrazione dei monoliti del suolo. In particolare, un'eccessiva umidità del suolo può portare alla compattazione della colonna di terreno, mentre i terreni troppo secchi o ghiacciati possono provocare la formazione di crepe. Nei casi in cui il monolite è compromesso a causa di questi fattori, deve essere scartato, rendendo necessaria una ripetizione del processo di scavo. (2) Selezione delle specie: il protocollo descritto utilizza sei specie di piante da prato del TBE, che sono state selezionate in base alla sovrapposizione con l'esperimento principale, a una rappresentazione equilibrata di graminacee e forbs e alla possibilità di studiare diverse strategie di utilizzo delle risorse (ad esempio, la fenologia delle piante)41. Per un esperimento sulla biodiversità, sei specie sono un numero basso di specie e la selezione di altre specie che possiedono altre combinazioni di tratti potrebbe portare a risultati sperimentali diversi e deve essere attentamente considerata. (3) Densità delle piante e proporzioni uguali di tutte le specie: un notevole vantaggio della configurazione dell'esperimento JenaTron è che le comunità vegetali sono stabilite con la stessa densità totale delle piante e che ogni specie è rappresentata con lo stesso numero di individui. Garantire una densità di piante costante e proporzioni di impianto uguali è fondamentale per la riproducibilità sperimentale, in quanto previene gli effetti confondenti associati a un insediamento differenziale delle singole specie. Pertanto, un controllo preciso della densità delle piante è essenziale per preservare il disegno sperimentale e garantire risultati affidabili.
Dopo aver avviato l'esperimento JenaTron seguendo il protocollo, con particolare attenzione alla considerazione dei passaggi più critici menzionati, sono emersi rapidamente effetti distinguibili del trattamento sull'altezza, il colore e il tempo di fioritura della comunità vegetale. Successive analisi comparative delle altezze delle piante vegetative specie-specifiche tra JenaTron e TBE hanno chiaramente confermato che le comunità stabilite nell'iDiv Ecotron assomigliano effettivamente alle comunità originali del campo. Per fornire ulteriormente un caso di studio per l'analisi dei dati, abbiamo analizzato in modo più dettagliato l'altezza vegetativa delle piante nell'esperimento JenaTron. Le analisi delle altezze delle piante vegetative specie-specifiche nello JenaTron hanno confermato il successo dell'insediamento di tutte le specie bersaglio e hanno rivelato differenze significative tra specie e gruppi funzionali. Questo risultato è atteso, poiché è noto che le erbe crescono più alte di altri gruppi funzionali nell'esperimento di Jena47. Un significativo effetto positivo della storia del suolo è stato rilevato in tutte le specie, indicando che le condizioni precedenti del suolo modellano la crescita delle piante nell'Ecotron, potenzialmente guidato da effetti di feedback positivi da suoli che in precedenza ospitavano una comunità vegetale (indipendentemente dal livello di diversità) e feedback negativi da suoli ritenuti privi di vegetazione. Le proprietà biotiche e abiotiche delle storie del suolo sembrano differire, dando alle piante in suoli con una storia specifica della comunità vegetale un vantaggio rispetto alle piante in suoli senza questa rispettiva storia, poiché l'altezza delle piante gioca un ruolo importante nella loro capacità di competere per la luce ed è quindi un tratto vitale per l'aumento del carbonio48. Al contrario, non è stato riscontrato alcun effetto significativo della storia vegetale specifica della comunità vegetale sull'altezza vegetativa media, il che implica che le proprietà del suolo possono avere un'influenza più forte rispetto alle fonti di semi nelle condizioni ambientali dell'Ecotron. Tuttavia, questa ipotesi deve essere testata in modo olistico studiando la moltitudine di funzioni ecosistemiche che sono state misurate nell'esperimento JenaTron.
Né le analisi specie-specifiche né quelle comunitarie hanno fornito prove che la ricchezza delle specie influenzi l'altezza vegetativa media delle piante, in contrasto con i precedenti risultati dell'esperimento sul campo, in cui l'altezza delle piante aumentava con specie più alte49 probabilmente a causa di una maggiore competizione della luce47,50. Una maggiore complementarità tra le specie in comunità più diversificate può portare a una maggiore densità di piante51, migliorando potenzialmente ulteriormente la crescita dell'altezza delle piante52. L'assenza di effetti sulla diversità delle piante sull'altezza delle piante nell'esperimento JenaTron potrebbe quindi essere dovuta all'assenza di variazioni dipendenti dalla biodiversità nella densità delle piante, indicando la potenziale importanza di questo meccanismo per le prestazioni delle singole piante dipendenti dalla diversità nel mondo reale52. Tuttavia, la ricchezza di specie ha avuto un effetto significativo sull'altezza delle piante, suggerendo che la diversità delle piante aumenta la complessità strutturale della vegetazione, in linea con gli studi che collegano la diversità a chiome fuori terra più complesse 49,50,52,53,54.
Nel loro insieme, i risultati confermano il successo dell'istituzione dei trattamenti target dell'esperimento JenaTron, fornendo le prime intuizioni sull'efficacia del nostro approccio attraverso la rapida manifestazione di effetti significativi del trattamento (Figura 3, Figura 4 e Figura 5). Inoltre, l'analisi comparativa dell'altezza vegetativa specie-specifica delle piante indica che le comunità di nuova costituzione nell'iDiv Ecotron assomigliano effettivamente alle osservazioni originali sul campo. L'analisi dettagliata dell'altezza vegetativa delle piante funge da caso di studio per l'analisi dei dati e la visualizzazione delle singole variabili di risposta. Tuttavia, questo caso di studio evidenzia i limiti di concentrarsi su una singola variabile di risposta nell'affrontare olisticamente l'ipotesi generale, indipendentemente dal fatto che il rafforzamento della relazione tra biodiversità e funzionamento dell'ecosistema nel tempo sia dovuto alla storia del suolo, alla storia delle piante o a una combinazione di entrambe. Ciò sottolinea l'importanza del nostro approccio altamente collaborativo allo studio degli effetti indipendenti e interattivi della storia delle piante e della storia del suolo sulle relazioni BEF23. Undici sottoprogetti dell'Unità di ricerca sperimentale di Jena (FOR 5000) hanno lavorato a stretto contatto nell'esperimento JenaTron, misurando un'ampia gamma di variabili di risposta in varie aree di ricerca, come la microbiologia, l'ecologia chimica, la fenologia, il rilevamento prossimale, la genetica, l'epigenetica, l'ecologia del suolo e la modellazione della rete alimentare. Questo sforzo integrativo mira a (1) separare gli effetti della storia delle piante dagli effetti della storia del suolo su più livelli trofici e funzioni ecosistemiche, (2) studiare gli effetti specifici delle specie vegetali e gli effetti specifici dell'interazione a tutti i livelli di ricchezza delle specie vegetali e (3) esplorare i meccanismi alla base delle relazioni BEF23 (Tabella supplementare 249, 50,55,56,57,58 ,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
Dichiarazioni
Gli autori non hanno nulla da rivelare.
Ringraziamenti
Un ringraziamento eccezionale va a L. Boockmann, T. Meier, N. Naderi e L.-M. Walter per il loro supporto come assistenti di ricerca durante l'intera durata dell'esperimento JenaTron. Ringraziamo tutti i dipendenti della Umwelt-Geräte-Technik GmbH (UGT) per la loro collaborazione professionale e calorosa durante lo scavo del monolite di terreno nell'esperimento di Jena. Ringraziamo anche C. Lauterwasser, H.-C. Schulz e R. Widuwils per aver supportato UGT nello scavo di monoliti nel suolo. Un ringraziamento va allo staff tecnico dell'esperimento di Jena S. Eismann, F. Freter, G. Kratzsch, U. Köber, K. Kunze e H. Scheffler per il loro supporto sul campo e il loro diligente aiuto durante la campagna di piantumazione presso l'iDiv Ecotron. Siamo grati a I. Merbach e allo staff tecnico della stazione di ricerca del Centro Helmholtz per la ricerca ambientale (UFZ) di Bad Lauchstädt, in particolare a O. Bednorz e K. Kirsch, per il loro vitale supporto. Vogliamo ringraziare A.Q. Barth e R. Altmann per la loro eccellente collaborazione nella serra iDiv. Ringraziamo S. Haenzel, A. Lochner e A. Zeuner per il loro indispensabile aiuto nell'amministrazione, nell'organizzazione e nel lavoro di laboratorio. Ringraziamo i Mercator Fellows J. Cavender-Bares, F. Isbell, L. Mommer e K. Mueller, così come lo stretto collaboratore B. Schmid e i Principal investigator U. Brose, H. Schielzeth, N. van Dam, W.W. Weisser, C. Wirth e J. Wolf per il loro importante contributo all'ideazione, progettazione e realizzazione dell'esperimento JenaTron. Infine, ringraziamo la Fondazione tedesca per la ricerca (DFG) per il sostegno finanziario (FOR 5000), nonché il Centro tedesco per la ricerca integrativa sulla biodiversità (iDiv, finanziato dalla Fondazione tedesca per la ricerca [DFG-FZT 118, 202548816]), l'Università di Lipsia, l'Università Friedrich Schiller di Jena e l'Istituto Max Planck per la biogeochimica di Jena per il supporto finanziario e logistico.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Fioriera a bulbo ( 4 cm di diametro) | Kent & Ferramenta Stowe | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& gad_ fonte=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE | |
| Connettore candela di aspirazione | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Vassoio di coltivazione ( senza drenaggio) | Bonsai-shopping | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| Acqua demineralizzata (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| Nastro adesivo | T-Rex | ferramenta | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& gad_source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| Scatole in plastica (20 L) | Auer Imballaggio | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| Carta da filtro (diametro 150 mm) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| Carrello elevatore | hirsch | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| Acido gibberellico ( 90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| Brocche dosatrici ( 3000 mL) | Hü | Ferramenta | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ |
| Brocche dosatrici ( 5000 mL) | Hü | Ferramenta | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ |
| Setacci metallici (maglia 4 mm) | Blau-Metall | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| Miniescavatore | Zeppelin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| Vaschette di malta ( 90 L) | Ferramenta | Gripline | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| Piastre multipot (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| Piastre di Petri (diametro 150 mm) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| Stencil per piantare (su misura) | UFZ | n.a. | Stencil per piantagione prodotto dall'officina del Centro Helmholtz per la ricerca ambientale (UFZ), Lipsia, Germania, appositamente per piantare i cilindri metallici iDiv Ecotron. |
| Foglio di plastica | Cargo Point | ferramenta | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ |
| Pale in plastica | Hü | Ferramenta | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| Spruzzatore a pressione (1500 mL) | Bü Rkle | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| Polvere di quarzo | Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| Sabbia di quarzo HQS (dimensioni 0,3 - 0,8 mm) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| Tappi di tenuta | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Materiale per le sementi | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| Kit per la misurazione dell'umidità del suolo (ML3 ThetaKit) | Delta-T Devices | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| Estrazione del monolite del suolo dispositivo | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Sensori del suolo ( SMT-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| Pinzetta in acciaio per molle (105 mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| Lama in acciaio inox (su misura) | UFZ | n.a.Lama | acciaio inox prodotta dall'officina del Centro Helmholtz per la Ricerca Ambientale (UFZ), Bad Lauchstä dt, Germania, in particolare per l'inserimento di sensori del suolo nei cilindri metallici iDiv Ecotron |
| Cilindro in acciaio inox | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Etichette adesive (12 cm x 2 cm) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| Sospensioni | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Piastra superiore/inferiore temporanea | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Stuzzicadenti | Bü roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096A8AA& storeType=B2C& lkz= 1131602& obt=20& kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8& gad_source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Cazzuola Iwo-CRoCfWsQAvD_BwE |
| Negozio di ferramenta | Kaufmann | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.& wt _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& wt _cc4=& wt_cc6=7940328& wt_cc7= 566& gad_source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB | |
| Camion | Europcar | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc& utm_campaign& utm_term& gad_source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& veicolo Tipo=TR& pickupLocation=ZJSC04 & dropoffLocation=ZJSC04& ritiroYe ar=2024& pickupMonth=12& ritiro Giorno = 11& dropoffYear=2024& dropoff Mese=12& dropoffDay=18& pickup Ora=10& pickupMinute=00& dropoff Ora=18& dropoffMinute=00& autista Età=26& countryOfResidence=DE |
| Pinzette | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| Sonde di aspirazione dell'acqua | Umwelt Gerä te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| Legno per il registro del sensore | Negozio di ferramenta | Konsta | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
Riferimenti
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
Ristampe e permessi
