Questo protocollo fornisce una descrizione completa di un metodo per la registrazione simultanea dei segnali di calcio provenienti da neuroni e astrociti attraverso molteplici regioni cerebrali legate alla memoria e ne dimostra l'applicazione durante un paradigma di apprendimento e comportamento della memoria.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo metodologico
Un metodo di fotometria a fibre a doppio colore per registrare l'attività degli astrociti-neuroni in più regioni cerebrali durante l'apprendimento e i comportamenti di memoria
In questo articolo
Sommario
Abstract
L'apprendimento e la memoria dipendono in modo critico dalla coordinazione tra neuroni e astrociti nelle regioni cerebrali distribuite. Gli astrociti modulano la trasmissione sinaptica e l'eccitabilità neuronale, contribuendo così alla codifica e alla consolidazione delle informazioni all'interno dei circuiti legati alla memoria. Le correlazioni intra- e interregionali tra astrociti e neuroni sono fondamentali per comprendere la memoria e i disturbi cognitivi. Tuttavia, il monitoraggio simultaneo dell'attività astrocita e neuronale in più regioni durante il comportamento della memoria rimane tecnicamente impegnativo. Qui viene presentato un metodo che facilita la registrazione simultanea di questi segnali di calcio da astrociti e neuroni in diverse regioni legate alla memoria. Questa strategia combina indicatori di calcio geneticamente codificati a doppio colore (GECI) specifici per tipo cellulare, un sistema di fotometria a fibre multicanale e il tracciamento comportamentale sincronizzato per ottenere un monitoraggio in tempo reale dell'attività neuronale e astrocitaria nella corteccia prefrontale mediale (mPFC), nella regione CA1 dell'ippocampo e nella corteccia entorhinale mediale (MEC). I risultati rappresentativi dimostrano dinamiche coordinate del calcio tra regioni e tipi cellulari durante il compito di riconoscimento degli oggetti. Questo metodo fornisce un quadro sperimentale riproducibile ed efficiente per indagare le interazioni astrocito-neurone alla base dei processi di apprendimento e memoria.
Introduzione
L'apprendimento e la memoria sono processi cognitivi fondamentali che coinvolgono l'acquisizione, l'archiviazione e il recupero di informazioni, fondamentali per la formazione di comportamenti adattivi. Questi processi sono alla base di una varietà di funzioni complesse, come la navigazione spaziale, il riconoscimento degli oggetti, l'associazione contestuale e il processo decisionale. Inoltre, le malattie disfunzionali cognitive, tra cui il morbo di Alzheimer, le malattie cognitive legate all'età e le lesioni cerebrali traumatiche, mostrano anomalie nella formazione della memoria 1,2,3. Pertanto, una comprensione completa delle basi neurali dell'apprendimento e della memoria richiede di chiarire l'interazione dinamica tra i diversi tipi cellulari. Questa interazione avviene all'interno e tra queste regioni durante la codifica e il recupero delle informazioni.
Tradizionalmente, si pensava che la formazione della memoria fosse determinata prevalentemente dall'attività neuronale. Tuttavia, ricerche approfondite hanno dimostrato che gli astrociti regolano in modo significativo la codifica, la consolidazione e il recupero delle informazioni. Lo ottengono modulando la trasmissione sinaptica, regolando l'eccitabilità neuronale, rilasciando gliotrasmettitori e fornendo supporto metabolico 4,5,6,7,8. Gli astrociti interagiscono dinamicamente con i neuroni, e la comunicazione bidirezionale è collettivamente chiamata "rete astrocito-neurone"9,10,11. Pertanto, comprendere le interazioni coordinate tra astrociti e neuroni è fondamentale per comprendere i meccanismi cellulari e di rete dell'apprendimento e della memoria.
L'apprendimento e la memoria dipendono dall'integrazione dinamica delle informazioni attraverso più regioni cerebrali. Le interazioni tra astrociti e neuroni non sono confinate ai microcircuiti locali, ma si estendono attraverso regioni cerebrali distribuite implicate nella memoria, inclusa la corteccia prefrontale mediale (mPFC), la regione CA1 dell'ippocampo e la corteccia entorinale mediale (MEC). L'mPFC è stato implicato nella consolidazione della memoria e nella regolazione della memoria a lungo termine; CA1 è centrale per la codifica e riattivazione episodica della memoria; e MEC funge da hub per l'integrazione spaziale e multimodale delle informazioni, fornendo input essenziali al circuito ippocampo-corticale 12,13,14,15,16. Le evidenze accumulate suggeriscono che gli astrociti in queste regioni partecipino a dinamiche coordinate tra i neuroni, svolgendo ruoli chiave nel flusso informativo e nelle transizioni di stato durante l'apprendimento ela memoria 17,18.
Sebbene il riconoscimento della funzione sinergica di astrociti e neuroni nell'elaborazione della memoria sia aumentato, rimane una sfida tecnica significativa nel monitorare simultaneamente l'attività del calcio sia negli astrociti che nei neuroni in molteplici regioni cerebrali associate alla memoria durante il comportamento di animali in movimento libero. L'imaging a due fotoni offre un'alta risoluzione spaziale ma è limitata dalla profondità e dalla fissazione dellatesta 19,20; L'elettrofisiologia multicanale consente registrazioni ad alta risoluzione temporale ma manca di specificità cellulare e non riesce a distinguere i segnali astrocitici di calcio. Così, è stato sviluppato un metodo che consente la registrazione simultanea dei segnali astrocitici e neuronali del calcio attraverso molteplici regioni cerebrali legate alla memoria in topi in movimento libero. Gli indicatori di calcio geneticamente codificati (GECI) riportano cambiamenti conformazionali intracellulari dalla dinamica Ca2+ fino alla dipendenza da Ca2+ in CaM/M13 che modulano la fluorescenza dei fluorofori codificati geneticamente. Gli approcci GECI a doppio colore sfruttano indicatori spettralmente separabili, come sensori di calcio verde e rosso, insieme a promotori specifici per tipo cellulare per consentire la registrazione simultanea dell'attività astrocita e neuronale di Ca2+ nella stessa regione cerebrale. Combinando GECI a doppio colore specifici per tipo cellulare (GCaMP6f e jRGECO1a) e un sistema di fotometria a fibre multicanale, è stato ottenuto il monitoraggio in tempo reale dell'attività calciale nei neuroni e negli astrociti in mPFC, CA1 e MEC. Inoltre, prendendo come esempio il nuovo compito di riconoscimento degli oggetti (NOR), è stata dimostrata la dinamica coordinata del calcio tra regioni cerebrali e tipi cellulari nei compiti di apprendimento. Questo metodo è un protocollo riproducibile, affidabile e scalabile per indagare l'attività dell'insieme astrocito-neurone nelle regioni cerebrali durante l'apprendimento e la memoria.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
Tutti gli esperimenti sugli animali furono approvati dal Comitato per la Cura e l'Uso degli Animali della Terza Università Medica Militare (Approvazione Etica degli Animali n.: AMUWEC20230126) e furono condotti in conformità con la Guida della Terza Universitària Medica Militare per la Cura e l'Uso degli Animali da Laboratorio, per garantire il trattamento etico degli animali. I reagenti e le attrezzature utilizzate sono elencati nella Tabella dei Materiali.
Per garantire la sicurezza dell'esperimentatore, tutte le procedure sperimentali che coinvolgevano animali vivi e vettori virali venivano eseguite indossando indumenti protettivi, guanti sterili e mascherina. Tutti gli strumenti venivano completamente sterilizzati prima dell'uso e le superfici sperimentali pulite con etanolo al 70% prima e dopo ogni esperimento. I materiali rimanenti sono stati smaltiti in conformità con le normative istituzionali sullo smaltimento dei rifiuti. Tutti i reagenti e le attrezzature venivano maneggiati per evitare il contatto diretto con pelle o occhi.
1. Preparazione degli animali e gestione virale
- Topi domestici di 4 mesi C57BL/6 (entrambi i sessi) in un ciclo chiaro/scuro di 12 ore con accesso ad libitum a cibo e acqua.
- Scongelare aliquote di AAV5-GfaABC1D-GCaMP6f o AAV9-hSyn-jRGECO1a sul ghiaccio a 0–4 °C immediatamente prima dell'uso.
- Collega una micropipetta in vetro tirato (diametro della punta 15–25 μm) a una siringa e montala su una pompa per microiniezione.
- Posiziona il topo su una piattaforma chirurgica sterile e disinfetta tutti gli strumenti con etanolo al 70%.
2. Iniezione virale stereotassica
NOTA: In questo studio è stata utilizzata una strategia di iniezione virale in due fasi. Nelle condizioni sperimentali attuali, questa strategia può essere implementata in modo affidabile e stabile, e il modello di espressione risultante è coerente con il profilo di promotore specifico specifico per il tipo cellulare atteso.
- Primo intervento: iniezione di AAV5-GfaABC1D-GCaMP6f (titolo: 7 ×10 12 vg/mL) per astrociti
- Indurre l'anestesia con isoflurano al 3% in una camera, poi mantenere l'anestesia con 0,8%–1,2% di isoflurano tramite un cono nasale (seguendo protocolli istituzionalmente approvati).
- Mantieni la temperatura corporea tra 37 e 38 °C usando un cuscinetto riscaldante e applica una pomata oftalmica per prevenire la disidratazione corneale.
- Rimuovi i peli del cuoio capelluto e disinfetta accuratamente la pelle. Fai un'incisione mediana per rivelare la superficie del cranio.
- Posizionare la testa nello strumento stereotassico, regolare le suture bregma e lambda sullo stesso piano orizzontale e regolare ulteriormente il telaio per garantire che i punti laterali di 2 mm rispetto al bregma su entrambi i lati siano in livello.
- Identifica le coordinate stereotassiche usando un atlante cerebrale del topo, con il bregma come punto di riferimento.
mPFC: AP +1,8 mm, ML +0,3 mm, DV −3,0 mm
CA1: AP −2,1 mm, ML +1,6 mm, DV −1,2 mm
MEC: AP −4,5 mm, ML −2,9 mm, DV −2,0 mm - Forare una craniotomia a cerchio di 0,6 mm (diametro) sopra ogni sito, mantenere la dura madre umida e intatta dopo aver aperto il cranio.
- Riempi il virus GCaMP6f nella siringa a 5 nL/s e installa la siringa nel braccio stereotassico.
- Abbassare lentamente la pipetta, iniettare 150 nL a 0,6 nL/s, tenere per 8 minuti, poi prelevare a 0,1 mm/s. Ripeti questa procedura per tutte le regioni.
- Sigilla l'incisione con adesivo tissutale e lascia 2 settimane per l'espressione virale.
- Chirurgia secondaria: iniezione di AAV9-hSyn-jRGECO1a (titolo: 1 × 10¹³ vg/mL) per i neuroni.
NOTA: L'intervento è stato eseguito 14 giorni dopo la prima iniezione del virus.- Indurre e mantenere l'anestesia come descritto sopra (Passo 2.1.1).
- Mantieni la temperatura corporea e proteggi gli occhi.
- Riapri il cuoio capelluto lungo la linea mediana e livellalo il cranio.
NOTA: Il cranio è stato livellato allineando bregma e lambda nello stesso piano orizzontale. - Detriti tissutali trasparenti negli stessi punti delle finestre della craniotomia del primo intervento, esponendo la dura mater intatta.
- Regolare le coordinate usando il bregma come punto di riferimento, eseguire iniezioni rigorosamente alle stesse coordinate e profondità descritte in precedenza.
- Riempi il virus jRGECO1a a 5 nL/s e installa la siringa.
- Inietta 150 nL a 0,6 nL/s, tieni per 8 minuti e ritira lentamente. Ripeti questa procedura per tutte le regioni e prevedi 3 settimane per l'espressione virale.
3. Impianto di sonda di fotometria a fibra multisito
NOTA: Eseguire immediatamente l'iniezione di jRGECO1a.
- Installa la ghiera in fibra ottica in un supporto stereotassico.
- Posiziona la fibra (ferrula da 1,25 mm, nucleo da 200 μm, NA 0,39) 100–150 μm sopra la profondità di iniezione virale:
mPFC: AP +1,8 mm, ML +0,3 mm, DV −2,9 mm
CA1: AP −2,1 mm, ML +1,6 mm, DV −1,1 mm
MEC: AP −4,5 mm, ML −2,9 mm, DV −1,9 mm - Sigilla la craniotomia con adesivo tissutale e fissa la ghiera con cemento dentale.
4. Registrazione fotometrica in fibra multicanale
NOTA: Per garantire un'espressione stabile e completa dei due indicatori di calcio, è stata eseguita una fotometria a fibra ottica multicanale tre settimane dopo la seconda iniezione virale per la registrazione.
- Abitua i topi al sistema di fibre e all'arena una volta al giorno per tre giorni.
- Dopo 3 settimane di espressione virale, anestesia brevemente il topo con isoflurano al 3%.
- Collegare un'estremità della fibra ottica integrata al sistema di acquisizione della fotometria della fibra.
- Imposta la luce di eccitazione a due lunghezze d'onda: 470 nm e 560 nm.
- Imposta la frequenza di acquisizione a 30 Hz.
- Collega i tre rami all'estremità opposta della fibra a tre regioni cerebrali: Canale 1 a mPFC, Canale 2 a CA1, Canale 3 a MEC.
- Posizionare i topi in un'area aperta con una lunghezza laterale di 50 cm e permettere una libera esplorazione.
- Dopo 10 minuti, scollega la fibra e riporta i topi nelle loro gabbie.
- Registrazione della fotometria in fibra durante il Task di Riconoscimento Oggetti Novel
NOTA: Pulire la piattaforma e gli oggetti con etanolo al 75% prima di ogni prova.- Posiziona due oggetti identici in quadranti diagonalmente opposti.
- Collega il fascio di fibre in uno stato di anestesia leggera.
- Lascia che i topi esplorino gli oggetti per 10 minuti, poi riportali nelle gabbie di casa senza rimuovere la fibra.
- Esegui la registrazione fotometrica delle fibre durante il nuovo test di riconoscimento degli oggetti nei topi.
NOTA: Escludi il processo se gli artefatti di movimento sono eccessivi per i dati di registrazione stabili.- Regola i laser di stimolazione:
470 nm per GCaMP6f (astrociti)
560 nm per jRGECO1a (neuroni) - Registrare segnali di calcio a 30 Hz, sincronizzati con il tracciamento video a 30 Hz. Posizionare un diodo laser all'interno del fotogramma video (fuori dal campo visivo del mouse) all'avvio dell'acquisizione per fungere da marcatore temporale.
- Dieci minuti dopo la fase di apprendimento, sostituisci un oggetto con uno nuovo e rimetti il mouse a posto per 10 minuti di esplorazione mentre registri.
- Scollega la fibra con una ghiera di ceramica e riporta i topi nelle gabbie di casa.
- Regola i laser di stimolazione:
5. Elaborazione e analisi dei dati
NOTA: Classificare un transitorio di Ca2⁺ nelle registrazioni fotometriche a fibra come un segnale genuino solo se la sua ampiezza supera tre volte la deviazione standard della banda del rumore 21,22,23. Protocollo24:D efine Object Recognition Test (NORT) Innovativo come eventi in cui i topi entrano in contatto fisico con l'oggetto, sia pungendololo sia annusandolo con il naso. Per la quantificazione del segnale, definire la linea di base come il segnale medio durante la finestra -2---1 s (rispetto all'inizio dell'interazione a t=0). Imposta la finestra di analisi peri-evento per coprire da 2 s prima a 4 s dopo l'inizio di ciascuna interazione con l'oggetto, seguendo i protocolli stabiliti.
- Importa tracce di fluorescenza nel software di analisi.
NOTA: L'elaborazione del segnale a fluorescenza è stata eseguita utilizzando software di analisi proprietario seguendo i flussi di lavoro standard di fotometria in fibra. Il software in sé non è open source e non può essere condiviso. Per considerazioni metodologiche generali riguardanti l'elaborazione del segnale di fotometria a fibra, vedi i rapporti metodologicirecenti 25. - Esegui la correzione della linea di base e allinea i segnali di calcio all'inizio del compito NOR utilizzando video sincronizzati.
- Converti ΔF/F in punteggi Z per confronti inter-regioni edual-color 9:
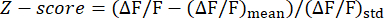
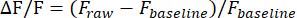
NOTA:
(ΔF/F)media: media di ΔF/F.
(ΔF/F)Std: deviazione standard di ΔF/F.
Fraw: intensità di fluorescenza grezza.
F baseline: intensità di fluorescenza di base (media su un periodo di base predefinito). - Quantificare metriche come l'area sotto la curva (AUC) per le risposte di calcio di astrociti e neuroni durante l'esplorazione di oggetti nuovi rispetto a quelli familiari.
6. Verifica istologica dopo la registrazione
- Anestetizzare il topo con un'overdose di pentobarbital fino a confermare la completa perdita dei riflessi.
- Eseguire perfusione transcardica con soluzione fisiologica normale, seguita da paraformaldeide (PFA) al 4%.
- Dissezionare con attenzione il cervello e fissarlo post-fissare al 4% di PFA a 4 °C per 12–24 ore.
- Trasferire il cervello al 30% di saccarosio in PBS a 4 °C finché il tessuto non affonda per la crioprotezione.
- Immergi il cervello in un composto a temperatura di taglio ottimale, congelalo e taglia le sezioni coronali (spessore 40 μm) usando un criostato.
- Eseguire la colorazione a immunofluorescenza per verificare l'espressione virale e la posizione delle fibre.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Sulla base del protocollo descritto sopra, è stata effettuata una registrazione multi-sito a doppio colore della fibra mirata agli mPFC, CA1 e MEC di topi C57 di 4 mesi. Nel presente studio, abbiamo implementato una strategia di iniezione virale in due fasi per introdurre sequencialmente i due indicatori. Nelle nostre condizioni sperimentali, questa strategia può essere implementata in modo affidabile e stabile, e il modello di espressione risultante è coerente con il profilo di promotor...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
In questo studio è stato sviluppato un metodo per la registrazione simultanea dell'attività calciale astrocita e neuronale in molteplici aree cerebrali rilevanti per la memoria dei topi durante comportamenti di apprendimento e legati alla memoria. Diversa dall'imaginga regione singola 28 o dalle tecniche elettrofisiologiche, la registrazione sincrona multi-regione cattura dinamiche coordinate attraverso reti di memoria distribuita, dimostrandosi così uno strumento...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Non vengono dichiarati conflitti di interessi, finanziari o di altro tipo, dagli autori.
Ringraziamenti
La signora Jia Lou è riconosciuta per l'assistenza tecnica, mentre Sai Te Xin Si (strumento AI) è riconosciuta per l'assistenza nella modifica linguistica. Questo lavoro ha ricevuto il sostegno della National Natural Science Foundation of China (grant n. 82371485, 82588301, 32400932) e della Natural Science Foundation di Chongqing, Cina (grant n. CSTB2024NSCQ-JQX0024, 2024NSCQ-MSX1104).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | Si collega alla micropipetta per l'iniezione virale |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | Espressione GCaMP6f specifica per gli astrociti |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | Indicatore di calcio spostato verso il rosso specifico per i neuroni |
| Unguento per occhi e naso Bepanthen | Bepanthen | MA0008 | Previene l'essiccazione della cornea |
| Fibre ottiche raggruppate con guaine in ceramica | Inper | BFO-1x3-W1.25 | Collega le fibre impiantate al sistema di fotometria |
| Fotocamera | Mind Vision | MV-SUA502C-T | Video comportamentali sincronizzati con i segnali di calcio |
| Cement dentale | NISSIN | Super-Bond C&B | Usato per fissare le ferrule al cranio |
| Supporto ferrule | Inper | SCH-1.25 | Tiene saldamente la ferrule in ceramica durante l'impianto |
| Vaporizzatore di isoflurano & sistema di anestesia | RWD Life Science | R510-29 | Per induzione e mantenimento dell'anestesia |
| Sistema di fotometria multicanale | RWD Life Science | R821 | Per registrazione a doppio colore |
| Software OFRS | RWD Life Science | Analizza i segnali di calcio registrati | |
| Fibre ottiche | RWD Life Science | R-FOC-BL200C-39N | Impiantate nella regione cerebrale target |
| Strumento stereotassico | RWD Life Science | 68801 | Usato per l'iniezione virale precisa e l'impianto delle fibre |
| Pompa per siringa | KD Scientific | 788130 | Consegna il virus a velocità controllate |
| Colla per tessuti | 3M Animal Care Products | 1469SB Vetbond | Per la chiusura delle incisioni |
Riferimenti
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
