Questo protocollo fornisce un metodo riproducibile per generare iPSC umane aneuploidi libere da integrazioni a partire da cellule primarie del liquido amniotico, utilizzando l'elettroporazione con plasmidi episomiali. Esso ottimizza le condizioni di trasfezione e di coltura per stabilizzare le anomalie cromosomiche, offrendo una piattaforma pratica per creare modelli specifici per malattie destinate a ricerche successive e applicazioni cliniche.
Articolo metodologico
Generazione di cellule staminali pluripotenti indotte umane aneuploidi da cellule primarie di liquido amniotico mediante elettroporazione con plasmide episomale
In questo articolo
Sommario
Abstract
La generazione di cellule staminali pluripotenti indotte (iPSC) specifiche per il paziente a partire da cellule del liquido amniotico (AFC) portatrici di aneuploidie cromosomiche definite fornisce una piattaforma potente per la modellizzazione di disturbi genetici. Tuttavia, lo stabilimento di un protocollo affidabile e riproducibile per la riprogrammazione delle AFC aneuploidi rimane tecnicamente impegnativo a causa dell'instabilità genomica intrinseca e della capacità proliferativa variabile di queste cellule. Qui presentiamo un metodo completo e non integrante per generare iPSC umane aneuploidi a partire da AFC primarie mediante elettroporazione con plasmidi episomiali. Questo protocollo descrive l'intero flusso di lavoro, comprendente il scongelamento e l'espansione cellulare con una strategia di adattamento graduale del mezzo, e il trasferimento ottimizzato del plasmide tramite sistema di elettroporazione, coltura post-elettroporazione sequenziale con cambi di mezzo diretti alla transizione mesenchimale-epiteliale (MET) e selezione meccanica di colonie basata su criteri morfologici definiti. Descriviamo inoltre procedure di validazione, inclusa la colorazione immunofluorescente per marcatori chiave della pluripotenza, analisi del cariotipo con bandeggio G per confermare il mantenimento del cariotipo aneuploide e verifica, mediante PCR, dell'eliminazione dei vettori episomiali. Questo protocollo privo di cellule feeder e di integrazioni genomiche consente di ottenere linee di iPSC aneuploidi adatte alla modellizzazione di malattie, allo screening di farmaci e allo studio della biologia cromosomica.
Introduzione
L'avvento della tecnologia delle cellule staminali pluripotenti indotte ha trasformato la medicina rigenerativa, la modellizzazione delle malattie e la scoperta di farmaci, consentendo la generazione di cellule pluripotenti specifiche per il paziente senza i problemi etici associati alle cellule staminali embrionali umane (hESCs). La base concettuale del riprogrammazione cellulare ha origine dalla dimostrazione di Gurdon del trasferimento nucleare di cellule somatiche1, seguita dall'isolamento delle cellule staminali embrionali2,3,4 e, infine, dallo sviluppo della pluripotenza indotta5 mediante l'espressione ectopica di OCT4, SOX2, KLF4 e c-MYC. Da allora, la tecnologia delle iPSC è diventata una piattaforma indispensabile per lo studio dello sviluppo umano, dei disturbi genetici e della medicina di precisione. I primi metodi di riprogrammazione utilizzavano vettori retrovirali o lentivirali, ma i rischi legati all'integrazione hanno limitato l'applicazione clinica. Di conseguenza, lo sviluppo di metodi di riprogrammazione privi di integrazione è diventato una priorità per la traduzione clinica. Questi includono l'uso del virus di Sendai6, mRNA sintetico7, vettori episomiali basati sul meccanismo oriP/EBNA1 (antigene nucleare di Epstein-Barr-1)8 e la riprogrammazione chimica9,10,11,12 mediante l'uso esclusivo di composti di piccole molecole.
L'aneuploidia è la causa principale di aborto spontaneo e difetti congeniti nei esseri umani. Comprendere i meccanismi cellulari e molecolari alla base delle anomalie dello sviluppo associate all'aneuploidia richiede modelli cellulari appropriati in grado di riprodurre fedelmente il background genetico di queste condizioni. Le cellule del liquido amniotico (AFC) rappresentano un materiale iniziale attraente ed efficiente per la generazione di iPSC specifiche per il paziente13,14,15, in particolare nel contesto di malattie genetiche diagnosticate prenatalemente16,17. Il liquido amniotico residuo ottenuto durante l'amniocentesi di routine consente l'accesso a cellule di origine fetale senza richiedere ulteriori biopsie invasive dei tessuti dopo la nascita. Rispetto alle cellule somatiche adulte, le AFC mostrano generalmente una maggiore capacità proliferativa, telomeri più lunghi, un minor carico cumulativo di mutazioni ambientali e una maggiore plasticità dello sviluppo, caratteristiche che facilitano tutti la riprogrammazione cellulare18,19. In particolare, le AFC conservano fedelmente la costituzione cromosomica del feto in via di sviluppo, rendendole una fonte ideale per stabilire modelli specifici per la malattia basati su iPSC per anomalie cromosomiche, tra cui la trisomia 2120, la trisomia 1821, la sindrome di Turner e la sindrome di Klinefelter22.
Questo protocollo fornisce una guida completa per la generazione di iPSC prive di integrazione a partire da cellule del liquido amniotico aneuploidi, utilizzando vettori episomiali. Il metodo include procedure dettagliate per l'isolamento cellulare, il riprogrammazione, la selezione di cloni e la caratterizzazione. Rispetto ad altri metodi di riprogrammazione privi di integrazione, il sistema di plasmidi episomiali offre un equilibrio pratico tra sicurezza genomica, semplicità tecnica ed efficacia economica, risultando particolarmente adatto all'uso di routine in laboratorio e ad applicazioni di biobancaggio su larga scala. Il protocollo è applicabile sia a cellule del liquido amniotico (AFC) criopreservate provenienti da biobanche consolidate, sia a campioni freschi di liquido amniotico residuo ottenuti durante diagnosi prenatali di routine. Sebbene le efficienze di riprogrammazione episomiale riportate per le AFC siano relativamente basse, e possa verificarsi un recupero spontaneo dei cromosomi durante il riprogrammazione o una coltura prolungata, in particolare in alcune aneuploidie, il flusso di lavoro è facilmente applicabile alla creazione di biobanche di iPSC specifiche per malattia, allo studio della biologia cromosomica e dello sviluppo umano precoce, e alla differenziazione successiva in tipi cellulari specifici per linea. Questo approccio è particolarmente adatto alla generazione di linee di iPSC prive di integrazione e clinicamente rilevanti a partire da campioni prenatali, per modelli di malattia e studi meccanicistici sulle anomalie cromosomiche.
Protocollo
Tutte le procedure che coinvolgono campioni di liquido amniotico umano sono state condotte in conformità con la Dichiarazione di Helsinki ed approvate dal Comitato per la Revisione Istituzionale (IRB)/Comitato Etico per la Ricerca Umana dell'Ospedale Universitario Terzo di Pechino (Protocollo n. M2023406). I campioni aneuploidi sono stati ottenuti dalla Biobanca del Centro di Medicina della Riproduzione dell'Ospedale Universitario Terzo di Pechino, un archivio clinico certificato dallo Stato specializzato in risorse umane per lo sviluppo e la riproduzione. Questi campioni consistono in liquido amniotico residuo raccolto originariamente durante amniocentesi di routine per diagnosi prenatale clinica, che altrimenti sarebbe stato scartato. Da tutti i donatori è stato ottenuto un consenso informato scritto prima della raccolta, con autorizzazione esplicita al deposito dei campioni residui nella Biobanca e al loro successivo utilizzo per la ricerca. Tutti i campioni sono stati rigorosamente anonimizzati per proteggere la privacy dei pazienti. Sono stati selezionati campioni con cariotipi aneuploidi confermati mediante analisi clinica con bandeggiatura G, inclusi Trisomia 21 (sindrome di Down, N = 2), Trisomia 18 (sindrome di Edwards, N = 1), Monosomia X (sindrome di Turner, N = 1) e sindrome di Klinefelter (N = 2), per l'induzione di iPSC. Le informazioni dettagliate sulle linee cellulari aneuploidi utilizzate nella riprogrammazione sono riassunte nella Tabella 1.
1. Scongelamento e coltura primaria di cellule del liquido amniotico biobancate
NOTA: questa sezione descrive la procedura standardizzata per il recupero e l'isolamento di AFC aneuploidi dalla Biobanca. Le cellule in coltura vengono espanse per ottenere popolazioni sufficienti per il successivo riprogrammamento episomale.
- Procedura standardizzata di scongelamento
- Equilibrazione del mezzo: Riscaldare il mezzo completo AmnioType-1 a 37 °C prima dell'uso.
- Recupero del campione: Recuperare una crioprovetta contenente circa 300.000 AFC criopreservate nel mezzo di congelamento cellulare dallo stoccaggio in azoto liquido. Trasferire immediatamente la provetta in laboratorio su ghiaccio secco per evitare uno scongelamento prematuro.
- Scongelamento rapido: Immergere la metà inferiore della crioprovetta in un bagno d'acqua a 37 °C e agitare delicatamente. Interrompere lo scongelamento quando rimane solo un piccolo cristallo di ghiaccio visibile.
NOTA: Evitare uno scongelamento completo. Ciò impedisce alle cellule di essere esposte agli effetti tossici del DMSO caldo. - Diluizione: In una cappa a flusso laminare, trasferire la sospensione cellulare goccia a goccia in un tubo conico da 15 mL contenente 4 mL di mezzo AmnioType-1 preriscaldato.
- Centrifugazione: Centrifugare la sospensione a 300 × g per 5 min a temperatura ambiente.
- Seeding: Aspirare il soprannatante e risospendere delicatamente il pellet cellulare in 2 mL di mezzo AmnioType-1 fresco. Trasferire le cellule in una piastra a 6 pozzetti o in un flacone T25 pre-ricoperto con Gelatina 0,1% a una densità di 30.000–50.000 cellule/cm².
- Incubazione iniziale: Posizionare le cellule in un'incubatrice umidificata a 37 °C e 5% CO2. Esaminare i flaconi al microscopio invertito a contrasto di fase al Giorno 3 post-seeding per confermare l'adesione iniziale delle cellule.
- Amplificazione e transizione del mezzo per AFC primarie
- Preparazione del mezzo di coltura per fibroblasti (FC): Per preparare 100 mL di mezzo di coltura per fibroblasti fatto in casa, mescolare 82 mL di DMEM ad alto contenuto di glucosio con 15 mL di Siero Fetale Bovino (FBS). Aggiungere 1 mL di GlutaMAX 100×, 1 mL di Aminoacidi Non Essenziali (NEAA) 100× e 1 mL di Penicillina-Streptomicina (P/S). Filtrare il mezzo attraverso un sistema di filtrazione a vuoto da 0,22 µm in un ambiente sterile.
- Durante l'amplificazione, modificare gradualmente il mezzo delle AFC ogni 3 giorni, passando dal mezzo clinico specializzato (AmnioType-1) a un sistema di coltura standardizzato per fibroblasti (mezzo FC, fatto in casa), per garantire la stabilità metabolica prima dell'elettroporazione.
- Eseguire una transizione graduale del mezzo:
- Giorno 3 (75% AmnioType-1: 25% FC): Aspirare il mezzo AmnioType-1 esistente. Aggiungere un mezzo misto costituito dal 75% di AmnioType-1 e dal 25% di mezzo FC.
- Giorno 6 (50% AmnioType-1: 50% FC): Aspirare e sostituire con un rapporto 1:1 di mezzo AmnioType-1 e mezzo FC.
- Giorno 9 (25% AmnioType-1: 75% FC): Aspirare e sostituire con una miscela di 25% di AmnioType-1 e 75% di mezzo FC.
- Giorno 12 (100% FC): Aspirare e passare al 100% di mezzo FC.
NOTA: Questa adattamento graduale riduce lo stress cellulare e previene il distacco di cloni aneuploidi sensibili.
- Eseguire una transizione graduale del mezzo:
- Osservare quotidianamente la morfologia delle colonie. Il liquido amniotico contiene una popolazione eterogenea di cellule. Mediante microscopia a contrasto di fase, identificare i due tipi principali: tipo F (simile a fibroblasti, a forma di fuso) e tipo E (simile a epiteliali, arrotondate). La sottopopolazione mesenchimale di tipo fibroblastico è ottimale per la riprogrammazione.
NOTA: Monitorare attentamente le cellule per segni di senescenza.
- Passaggio di AFC primarie
- Quando le cellule raggiungono una confluenza dell'80%–90% (tipicamente Giorno 10–14), aspirare il mezzo dal flacone e lavare delicatamente una volta con 2 mL di soluzione salina tamponata al fosfato di Dulbecco (DPBS) senza Ca²⁺/Mg²⁺.
- Aggiungere 1 mL di soluzione di Tripsina-EDTA 0,25% per un singolo pozzetto di una piastra a 6 pozzetti, in modo da coprire lo strato monocellulare.
- Incubare a 37 °C per 4–5 minuti fino a quando le cellule si staccano completamente.
- Neutralizzare il reagente di dissociazione aggiungendo 3 mL di mezzo FC. Trasferire la sospensione in un tubo conico da 15 mL.
- Centrifugare a 300 × g per 5 min a temperatura ambiente.
- Aspirare il soprannatante e risospendere il pellet cellulare in 1 mL di mezzo FC fresco. Contare le cellule vitali utilizzando un emocitometro o un contatore cellulare automatico con esclusione del blu di tripano.
- Sezionare le cellule in un nuovo flacone T25 a una densità di 30.000–50.000 cellule/cm² in mezzo completo (solitamente in un rapporto 1:2 o 1:3).
- Ampliare le cellule fino al passaggio 3–5 prima di utilizzarle per la riprogrammazione. Non utilizzare cellule oltre il passaggio 6.
NOTA: La qualità delle cellule al momento dell'elettroporazione è il fattore più importante per il successo della riprogrammazione. Utilizzare esclusivamente AFC di tipo F sane, in fase logaritmica di crescita, senza segni di senescenza o morfologia anomala.
2. Elettroporazione di plasmidi episomiali nelle AFC mediante un sistema di elettroporazione cellulare
- Rivestire i contenitori di coltura con matrice della membrana basale
- Scongelare la matrice della membrana basale (Matrigel) durante la notte a 4 °C sul ghiaccio
- Raffreddare DPBS sterile o DMEM/F-12 in ghiaccio. Pre-raffreddare le punte pipetta e le provette in ghiaccio per 30 minuti.
- Diluire la matrice della membrana basale 1:200 in DMEM/F-12 freddo su ghiaccio utilizzando puntali e tubi freddi (ad esempio, 30 µL matrice + 6 mL DMEM/F-12 per una piastra a 6 pozzetti
- Mescolare accuratamente ma delicatamente aspirando e dispensando 5-6 volte. Evitare di introdurre bolle d'aria.
- Aggiungere la soluzione di rivestimento diluita nei vasi di coltura utilizzando 1 mL per pozzetto in una piastra a 6 pozzetti.
- Incubare i vasi rivestiti a 37 °C per almeno 1 h, oppure a temperatura ambiente per 2 h.
- Aspirare la soluzione di rivestimento immediatamente prima della semina delle cellule. Aggiungere 2 mL di mezzo FC senza antibiotici più 10 μM Y-27632 (inibitore di ROCK) e reinserire la piastra in un 37 °C incubatrice. Non permettere alla superficie rivestita di asciugarsi.
NOTA: Le piastre rivestite possono essere conservate a 4 °C sigillato con parafilm per un massimo di 7 giorni. Portare a temperatura ambiente prima dell'uso.
- Scongelare e preparare i plasmidi episomiali per la riprogrammazione
- Selezione dei plasmidi: utilizzare i seguenti plasmidi episomiali per il riprogrammazione: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL e pCXLE-EBNA1.
NOTA: (Facoltativa) Per l'ottimizzazione delle condizioni di elettroporazione, è possibile eseguire in parallelo l'elettroporazione di pCE-GFP nelle medesime condizioni. L'espressione di GFP nelle prime 48–72 ore fornisce un indicatore pratico dell'efficienza di trasfezione, mentre la progressiva perdita del segnale GFP durante i successivi passaggi può essere utilizzata per monitorare la diluizione transitoria del plasmide. - Controllo di qualità (QC): verificare la concentrazione e la purezza del DNA utilizzando uno spettrofotometro. Assicurarsi che il rapporto A260/280 sia compreso tra 1,8 e 1,9. Assicurarsi che la concentrazione di ciascun plasmide sia maggiore di 1 µg/µL e sterile.
NOTA: È fondamentale assicurarsi che tutti i plasmidi siano preparati utilizzando metodi privi di endotossine. Le endotossine residue possono causare una citotossicità elevata e una riduzione significativa dell'efficienza di riprogrammazione. Conservare i plasmidi in aliquote piccole a -20 °C per evitare cicli ripetuti di congelamento e scongelamento. - Per un 100 µL reazione, preparare 5 µg della miscela di plasmidi (rapporto equimolare di peso di pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL e pCXLE-EBNA1
- Selezione dei plasmidi: utilizzare i seguenti plasmidi episomiali per il riprogrammazione: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL e pCXLE-EBNA1.
- Impostare i parametri di elettroporazione.
- Inizializzare il dispositivo di elettroporazione. Impostare i parametri dell'impulso sulla configurazione ottimizzata per cellule aderenti primarie: tensione dell'impulso: 1.200 V; durata dell'impulso: 20 ms; numero di impulsi: 2.
- Riempire la stazione della pipetta con 2 mL di Buffer E, assicurandosi che l'elettrodo sia completamente immerso.
NOTA: Se esperimenti iniziali mostrano una viabilità cellulare inferiore al 50%, considerare la prova di set di parametri alternativi: 950 V / 20 ms / 2 impulsi (più delicato). Queste alternative comportano una riduzione dell'efficienza in cambio di una migliore sopravvivenza.
- Preparare le AFC per l'elettroporazione
- Al Giorno 0, verificare al microscopio che le cellule presentino una morfologia sana, a forma di fuso, senza segni di sovra-crescita, senescenza o contaminazione. Assicurarsi che le cellule abbiano raggiunto una confluenza del 90% e si trovino nella fase logaritmica attiva di crescita.
- Subito prima della procedura di elettroporazione, aspirare il rivestimento di Matrigel e sostituirlo con 2 mL di mezzo preriscaldato privo di antibiotici mezzo FC più 10 μM Y-27632 (inibitore di ROCK). Riscaldare preventivamente questo mezzo FC privo di antibiotici a 37 °C in un incubatore per almeno 20 minuti prima della raccolta delle cellule per il sistema di elettroporazione.
NOTA: NON aggiungere Penicillina-Streptomicina (P/S) né altri antibiotici a questo specifico lotto di mezzo. Dopo l'elettroporazione, la membrana cellulare rimane temporaneamente permeabile e vulnerabile. La presenza di antibiotici può determinare un aumento dell'apoptosi. - Aspirare il mezzo degli AFC per l'elettroporazione e lavare il monostrato una volta con DPBS senza Ca²⁺/Mg²⁺.
- Aggiungere 2 mL (per fiasca T25) di enzima TrypLE Select e incubare a 37 °C per 4–5 min.
- Neutralizzare con 6 mL di mezzo completo FC e trasferire in un tubo conico da 15 mL. Contare le cellule utilizzando un contatore cellulare automatico.
- Centrifugare a 300 × g per 5 min a temperatura ambiente.
- Rimuovere completamente il soprannatante utilizzando una 200 μL punta della pipetta, avendo cura di non disturbare il piccolo pellet cellulare.
- Risospendere il pellet cellulare nel Buffer R a una densità finale di 1,0 × 10⁷ a 1,4 × 10⁷ cellule/mL
NOTA: Aspirare il soprannatante in modo quanto più completo possibile per assicurare che il pellet cellulare sia asciutto. Eventuali residui di mezzo di coltura possono diluire il buffer di risospensione, riducendo così l'efficienza dell'elettroporazione. Utilizzare il Buffer R (per cellule aderenti) per le AFC. Verificare la scelta del buffer in base alle raccomandazioni del produttore.
- Eseguire l'elettroporazione.
- Aliquota 110 μL della sospensione cellulare (contenente 1,0–1,4) × 106 cellule) in un tubo sterile da 1,5 mL per microcentrifuga.
NOTA: Aggiungere un ulteriore 10 μL di Buffer R fino al volume finale per assicurare una sospensione cellulare sufficiente, il che aiuta a evitare l'introduzione di bolle d'aria durante l'aspirazione. - Aggiungere 5 μg miscela di plasmidi al 110 μL Aliquota cellulare. Mescolare mediante pipettaggio delicato per 3 volte.
- Attaccare un sterile 100 μL punta di elettroporazione al pipettatore. Assicurarsi che la punta scatti in posizione correttamente.
- Caricare 100 μL della sospensione cellulare/DNA, assicurandosi che non siano presenti bolle d'aria visibili.
NOTA: Le bolle d'aria provocano archi elettrici durante l'impulso elettrico, causando la morte delle cellule e danneggiando la punta. Se sono visibili bolle, espellere la miscela nuovamente nel tubo e ripetere l'aspirazione lentamente. - Inserire la pipetta caricata verticalmente nel tubo del Buffer nella stazione fino a quando scatta in posizione. Verificare che tutti i parametri siano corretti sullo schermo touch, quindi premere il pulsante Start per erogare la sequenza di impulsi.
- Attendi che lo schermo visualizzi "Completo" (di solito entro 1–2 s). Rimuovere immediatamente la pipetta dalla stazione ed erogare direttamente la sospensione cellulare elettroporata in 2–3 pozzi di una piastra da 6 pozzetti rivestita contenente mezzo FC privo di antibiotici preriscaldato + 10 μM Y-27632
- Smaltire correttamente la punta usata. Ripetere i passaggi per ulteriori pozzetti o replicati, se necessario. Posizionare la piastra a 6 pozzetti in un 37 °C, 5% CO₂₂ incubatore umidificato per tutta la notte.
- Aliquota 110 μL della sospensione cellulare (contenente 1,0–1,4) × 106 cellule) in un tubo sterile da 1,5 mL per microcentrifuga.
3. Coltura di riprogrammazione post-elettroporazione
NOTA: Questa sezione descrive le modifiche sequenziali del mezzo e il raggiungimento del riprogrammamento completo delle AFC in iPSC. La tempistica copre circa 25 giorni, dall'elettroporazione alla selezione delle colonie.
- Circa 16–18 ore dopo l'elettroporazione, aspirare con attenzione il mezzo senza staccare le cellule aderenti sopravvissute. Aggiungere delicatamente 2 mL di mezzo FC pre-riscaldato (contenente P/S) in ogni pozzetto per consentire alle cellule di stabilizzarsi nelle prime 24 ore. Reintrodurre la piastra nell'incubatore.
- Dal Giorno 2 al Giorno 6, sostituire metà del mezzo ogni due giorni: aspirare con attenzione 1 mL di mezzo usato e aggiungere 1 mL di mezzo fresco TeSR-E8 (E8).
NOTA: La sostituzione parziale del mezzo preserva i fattori autocrini secreti che supportano i primi eventi di riprogrammazione. Aspirare lentamente dal bordo del pozzetto per ridurre al minimo il disturbo delle cellule in transizione debolmente aderenti. - Nei Giorni 7, effettuare una sostituzione completa del mezzo con 2 mL di E8 ogni due giorni.
- Osservare quotidianamente al microscopio i cambiamenti morfologici. Ci si aspetta l'insorgenza di aggregati parzialmente riprogrammati, simili a selciato, intorno al Giorno 10–14.
NOTA: (Opzionale) Supplire le colture con 25–100 μM di butirrato di sodio tra il Giorno 9 e il Giorno 15 se la formazione di colonie è scarsa23. - Sostituire il mezzo E8 quotidianamente a partire dal Giorno 15.
- A partire da circa il Giorno 18, ispezionare quotidianamente i pozzetti per individuare l'emergere di vere colonie di iPSC. Una cronologia completa del flusso di lavoro di riprogrammazione, dal giorno 0 dell'elettroporazione alla selezione delle colonie, è riportata in Tabella 2.
4. Selezione meccanica di colonie di iPSC ed espansione di linee di iPSC stabilite
NOTA: Distinguere le vere colonie di iPSC da cellule riprogrammate o non riprogrammate in base ai seguenti criteri morfologici. Identificare le colonie "ideali" sulla base dei seguenti tratti morfologici: (1) Definizione del bordo: Cercare un margine netto, liscio e circolare che delimiti chiaramente la colonia dalle cellule del liquido amniotico circostanti; (2) Densità cellulare: Assicurarsi che le cellule all'interno della colonia siano piccole, strettamente impaccate e presentino un elevato rapporto nucleo-citoplasma con nucleoli prominenti; (3) Rifrangenza: Le colonie di alta qualità appaiono brillanti e altamente rifrangenti in contrasto di fase; (4) Planarità: La colonia deve crescere come un foglietto piatto e bidimensionale, piuttosto che come un "grumo" tridimensionale. Le colonie parzialmente riprogrammate spesso compaiono prima rispetto alle vere colonie di iPSC e tendono ad essere più grandi, più spesse e più tridimensionali. Queste colonie si differenzieranno spontaneamente durante il picking e il passaggio. Non selezionare colonie che presentano "vacuoli", bordi irregolari o segni di differenziazione centrale.
- Prelevare e trasferire meccanicamente le colonie di iPSC
- Preparare una piastra da 24 pozzetti rivestita con Matrigel con 0,5 mL per pozzetto di mezzo E8 integrato con 10 μM di Y-27632. Mantenere a 37 °C fino all'uso.
- Posizionare la piastra di coltura sotto un microscopio stereoscopico all'interno di un armadio biosicurezza di Classe II. Sterilizzare l'obiettivo e il piatto del microscopio stereoscopico con etanolo al 70% prima di avvicinare la piastra al campo visivo.
- Identificare le colonie che mostrano una morfologia corretta (piatte, compatte, con bordi ben definiti).
- Utilizzando una punta sterile da 10 μL tenuta a un angolo leggermente inclinato (circa 30° rispetto all'orizzontale), tracciare delicatamente un solco lungo il perimetro di una colonia selezionata per definirne il contorno. Tagliare la colonia in circa 3 frammenti effettuando incisioni parallele lungo il suo diametro. Utilizzare la stessa punta per raschiare e sollevare delicatamente i frammenti della colonia dal substrato e trasferirli in un pozzetto della piastra da 24 pozzetti preparata.
- Ripetere i passaggi per ciascuna colonia, posizionando i frammenti in pozzetti separati.
- Posizionare la piastra da 24 pozzetti nell'incubatrice. Lasciarla indisturbata per 24 h per consentire l'attacco dei frammenti.
- A partire dal Giorno 2 dopo il prelievo, sostituire il mezzo giornalmente con mezzo E8 senza Y-27632.
- Quando le colonie prelevate si espandono fino a raggiungere una confluenza del 70–80% (tipicamente in 3–6 giorni), effettuare il passaggio utilizzando Accutase.
- Passaggio ed espansione di linee iPSC stabilizzate
- Aspirare il mezzo dal pozzetto contenente le iPSC. Aggiungere Accutase per coprire il monostrato. Incubare a temperatura ambiente per 2–6 min. Osservare i bordi delle colonie al microscopio; le cellule dovrebbero iniziare a staccarsi, creando spazi tra di esse.
- Aspirare completamente la soluzione di Accutase. Aggiungere 1 mL di mezzo E8 + 10 μM Y-27632. Pipettare delicatamente il mezzo sulla superficie delle colonie da 5 a 8 volte utilizzando una pipetta P1000 per dissociare le colonie in piccoli aggregati di 2–8 cellule.
NOTA: Evitare un'eccessiva dissociazione delle iPSC, poiché riduce drasticamente la sopravvivenza. L'obiettivo è ottenere aggregati piccoli e uniformi, non una sospensione di singole cellule. - Trasferire gli aggregati con 1 mL di mezzo E8 + 10 μM Y-27632 distribuendoli uniformemente in una piastra da 12 pozzetti appena rivestita con Matrigel. Posizionare la piastra nell'incubatrice.
- Cambiare il mezzo giornalmente con mezzo E8 (senza Y-27632 dal Giorno 1).
- Continuare i passaggi ogni 3–4 giorni con un rapporto di suddivisione da 1:2 a 1:5, in base alla confluenza.
- Coltivare le linee iPSC per un minimo di 10 passaggi prima delle applicazioni successive per garantire l'eliminazione stabile degli episomi.
5. Caratterizzazione di linee iPSC aneuploidi
NOTA: eseguire i seguenti saggi di validazione su linee iPSC stabilite (passaggio 10 o successivo) per confermare la pluripotenza, l'integrità del cariotipo e l'eliminazione del vettore episomale.
- Verificare l'espressione dei marcatori di pluripotenza.
- Convalidare l'espressione dei marcatori fondamentali della pluripotenza mediante colorazione immunofluorescente, citometria a flusso o entrambi i metodi. I profili dei marcatori previsti sono riassunti in Tabella 3.
NOTA: Sebbene la colorazione immunofluorescente fornisca una conferma iniziale della pluripotenza, si raccomandano RT-qPCR e RNA-seq per una valutazione più ampia dell'espressione genica associata alla pluripotenza, inclusi LIN28A, DPPA4 e KLF4.
- Convalidare l'espressione dei marcatori fondamentali della pluripotenza mediante colorazione immunofluorescente, citometria a flusso o entrambi i metodi. I profili dei marcatori previsti sono riassunti in Tabella 3.
- Analisi del cariotipo mediante bandeggio G
FONDAMENTALE: La riprogrammazione può indurre il recupero dalla trisomia in un sottoinsieme di cloni. Analizzare più cloni (5–10 per linea parentale) per identificare sia derivati con aneuploidia mantenuta sia derivati con ripristino di eucariotidia.- Raccolti le iPSC al passaggio 10–15 con una confluenza del 70%–80%.
- Aggiungere 0.1 μg/mL colcemid nel mezzo di coltura. Incubare a 37 °C per 2–4 h per arrestare le cellule in metafase.
NOTA: Il colcemid è un veleno mitotico. Manipolarlo con guanti in una cappa a sicurezza biologica. Smaltire i rifiuti contenenti colcemid come materiale pericoloso. - Dissociare le cellule in una sospensione monocellulare utilizzando Accutase o un reagente equivalente. Centrifugare a 300 × g per 5 min.
- Risospendere il pellet in 5 mL di soluzione ipotonica preriscaldata (cloruro di potassio 0,075 M). Incubare a 37 °C per 15–20 min.
- Aggiungere 1 mL di fissativo appena preparato (metanolo:acido acetico, rapporto volumetrico 3:1) al tubo, mescolando delicatamente. Centrifugare a 300 × g per 10 min.
- Aspirare il soprannatante. Aggiungere 5 mL di fissativo fresco. Mescolare delicatamente e incubare per 10 min. Centrifugare nuovamente.
- Ripetere nuovamente il passaggio di fissazione (passaggio 6) per un totale di 3 fissazioni.
- Dopo l'ultima centrifugazione, risospendere il pellet in 0,5–1 mL di fissativo fresco per ottenere una densità cellulare appropriata.
- Aggiungere 2–3 gocce della sospensione cellulare su vetrini di vetro puliti e bagnati, da un'altezza di circa 30 cm. Lasciare asciugare all'aria.
- Fare cuocere le vetrine a 80 °C per 2 h oppure 65 °C per tutta la notte per invecchiare i cromosomi.
- Eseguire la colorazione G: trattare i vetrini con soluzione di tripsina 0,025% per 30-60 secondi, risciacquare e colorare con soluzione di Giemsa al 5% per 1-5 minuti.
- Analizzare almeno 20 metafasi ben distanziate per clone mediante microscopio in campo chiaro con obiettivo a immersione (100× obiettivo
- Documentare il cariotipo utilizzando la nomenclatura ISCN (ad esempio, 47,XX,+21 per trisomia 21 femminile; 45,X per sindrome di Turner).
NOTA: Il cariotipo con bandeggio G rileva anomalie cromosomiche maggiori ma ha una risoluzione limitata. Si raccomandano saggi complementari, come l'analisi delle variazioni del numero di copie (Copy Number Variation, CNV), il sequenziamento dell'esoma completo (Whole Exome Sequencing, WES) o il sequenziamento del genoma completo (Whole Genome Sequencing, WGS), per identificare alterazioni genetiche submicroscopiche e confermare l'integrità genomica delle iPSC.
- Verificare l'eliminazione del vettore episomale mediante PCR.
NOTA: Questo passaggio conferma che tutti i plasmidi episomiali sono stati persi dalla linea di iPSC mediante amplificazione PCR di sequenze specifiche del vettore.- Estrarre il DNA genomico da iPSC (passaggio ≥ 10) e da AFC di controllo non trasfettati utilizzando un kit standard di estrazione basato su colonne.
- Impostare un 25 μL Reazione di PCR. Eseguire la PCR utilizzando coppie di primer Orip/GAPDH nelle condizioni di ciclatura (94 °C per 2 min; seguiti da 35 cicli di 94 °C per 30 s, 55 °C per 30 s, e 72 °C per 30 s; estensione finale a 72 °C per 5 min). Includere un controllo positivo (template plasmidico) e un controllo negativo (DNA genomico da cellule non trasfettate) in ogni corsa di PCR.
- Separare i prodotti della PCR su un gel di agarosio al 2% utilizzando una scala di DNA appropriata.
- Interpretare i risultati: le linee di iPSC con episomi eliminati non mostrano bande di amplificazione a 544 bp. Il controllo positivo deve mostrare bande della dimensione prevista. Il controllo negativo non deve mostrare bande.
- Rilevamento di Mycoplasma mediante PCR
- Raccogliere 0,5–1 mL di sopranatante di coltura dopo almeno 24 ore di incubazione dalle colture di iPSC prima della sostituzione del mezzo e centrifugare a 12.000 × g per 5 min per rimuovere i detriti cellulari.
- Utilizzare il sopranatante chiarificato come stampo per la PCR con il Kit di Rilevamento Mycoplasma PCR, seguendo le istruzioni del produttore.
- Separare i prodotti di PCR mediante elettroforesi su gel di agarosio al 2%. Procedere con esperimenti successivi solo se le colture di iPSC sono state confermate prive di micoplasma.
NOTA: Se le AFC parentali non vengono ottenute da una biobanca certificata con test documentati di sterilità e di ricerca di micoplasmi, si raccomanda vivamente uno screening routinario per micoplasmi prima della riprogrammazione, come primo passaggio di controllo qualità.
- Saggio del potenziale di differenziazione trilineage (Opzionale)
- Conferma in vitro capacità di differenziazione mediante differenziazione trilinee diretta o formazione di corpi embrionali (EB), seguita dall'analisi di marcatori specifici per i foglietti germinativi. In alternativa, eseguire in vivo formazione di teratomi in topi immunodeficienti per la validazione della pluripotenza secondo lo standard aureo
NOTA: Per protocolli dettagliati di saggio di teratoma o di differenziazione diretta, consultare le procedure operative standard pubblicate24. Questi saggi sono raccomandati ma possono essere omessi se completi in vitro sono forniti dati relativi all'analisi dei marcatori e alla differenziazione funzionale
- Conferma in vitro capacità di differenziazione mediante differenziazione trilinee diretta o formazione di corpi embrionali (EB), seguita dall'analisi di marcatori specifici per i foglietti germinativi. In alternativa, eseguire in vivo formazione di teratomi in topi immunodeficienti per la validazione della pluripotenza secondo lo standard aureo
6. Derivazione e verifica clonale a singola cellula
NOTA: Per garantire che ogni linea di iPSC derivi da una singola cellula, si raccomanda un processo di verifica clonale in due fasi. Dopo il prelievo meccanico e l'espansione, si raccomanda un ulteriore passaggio di semina di singole cellule clonali a seguito della conferma del cariotipo. La verifica che ogni linea di iPSC origini da una singola cellula rappresenta un requisito fondamentale per la generazione di iPSC. Questo passaggio assicura l'eliminazione della mosaicismo somatico parentale e conferma che la firma diagnostica di aneuploidia sia uniforme in tutta la popolazione.
- Seeding di singole cellule
- Dissociare e risospendere i colli di iPSC con cariotipo confermato in sospensione di singole cellule utilizzando Accutase per 2–6 min a 37 °C.
- Utilizzare mezzo E8 integrato con 10 µM di Y-27632 per massimizzare la sopravvivenza delle singole cellule isolate. Eseguire il deposito di singole cellule utilizzando uno dei seguenti metodi:
- Diluizione limite: Diluire la sospensione a una concentrazione di 0,5–1 cellula ogni 100 µL. Seminare 100 µL in ogni pozzetto di una piastra 96 pozzetti rivestita con Matrigel.
- Ordinamento cellulare attivato da fluorescenza (FACS): Ordinare direttamente singole cellule vitali nei pozzetti di una piastra 96 pozzetti rivestita con Matrigel.
- Verifica ed espansione della monoclonalità
- Ispezione iniziale: A 24–48 h dal seeding, utilizzare un microscopio a contrasto di fase ad alta risoluzione per ispezionare ogni pozzetto. Contrassegnare esclusivamente i pozzetti contenenti un singolo evento di adesione ben definito. Escludere i pozzetti con più aggregati o privi di cellule.
- Crescita del collo: Mantenere le singole cellule identificate nel mezzo E8 senza inibitore di ROCK dopo le prime 24 h.
- Espansione sequenziale: Una volta che il collo derivato da singola cellula raggiunge il 70% di confluenza, espandere sequenzialmente le cellule dalla piastra 96 pozzetti a piastre 24 pozzetti, 12 pozzetti e infine 6 pozzetti.
NOTA: Per la ricerca sulle terapie cellulari, spesso è richiesta documentazione fotografica dello stadio di singola cellula (giorno 0 o giorno 1) come parte del Certificato di Analisi, al fine di dimostrare lo stato di purezza linéare delle linee di iPSC.
Cause potenziali di riprogrammazione non riuscita, formazione subottimale di colonie e difficoltà durante l'isolamento delle linee di iPSC sono riassunte insieme a soluzioni pratiche nella Tabella 4.
Risultati
Progressione morfologica durante la riprogrammazione
Le cellule primarie del liquido amniotico mostravano morfologie eterogenee, inclusi cellule di tipo E e di tipo F (Figura 1A). Le cellule di tipo F devono essere espanse e utilizzate per la riprogrammazione. Dopo l'elettroporazione delle AFC con plasmidi episomiali Epi5, si osserva una sequenza caratteristica di cambiamenti morfologici. Al Giorno 0, le AFC mostrano una tipica morfologia allungata, simile a quella dei fibroblasti. Tra il Giorno 3 e il 5, compaiono i primi segni morfologici di riprogrammazione: piccoli gruppi di cellule con aspetto epiteliale emergono all'interno della popolazione cellulare mesenchimale, segnalando l'inizio della MET. Queste cellule transizionali sono più piccole e compatte rispetto alle cellule mesenchimali circostanti. Tra il Giorno 7 e il 10, i gruppi cellulari mostrano un aumento della compattezza, riflettendo una transizione verso una morfologia epiteliale caratteristica. Le colonie di iPSC completamente riprogrammate iniziano a emergere tra il Giorno 14 e il 16. Tra il Giorno 21 e il 25, le colonie mature di iPSC sono pronte per essere selezionate (Figura 1B). Il plasmide pCE-GFP è stato elettroporato in parallelo ai plasmidi di riprogrammazione per valutare l'efficienza di trasferimento del DNA (Figura 1C). L'espressione di GFP può essere utilizzata come indicatore visivo di un'elettroporazione riuscita e della persistenza del plasmide durante le prime fasi della coltura.
Differenziare le colonie di iPSC completamente riprogrammate dalla riprogrammazione parziale
Una competenza fondamentale in questo protocollo è la capacità di distinguere le colonie di iPSC completamente riprogrammate da quelle parzialmente riprogrammate, poiché la selezione di queste ultime porta al fallimento nell'instaurazione di linee stabili di iPSC. Tabella 5 riassume le principali differenze morfologiche e molecolari tra questi due tipi di colonie.
Figura 2 illustra un confronto affiancato. Le cellule parzialmente riprogrammate spesso formano aggregati lenti privi di confini ben definiti. Questi ammassi possono mostrare un certo grado di compattamento ma in genere mantengono caratteristiche mesenchimali o presentano margini irregolari e "sfocati", indicativi di un reset epigenetico incompleto (Figura 2, sinistra). Durante la riprogrammazione primaria, le colonie con una morfologia tipica delle iPSC possono contenere aree di differenziazione spontanea (Figura 2, centro). Le regioni indifferenziate definite morfologicamente possono essere selezionate e isolate manualmente per ulteriore espansione. Le linee di iPSC stabilite con successo dovrebbero esibire la classica morfologia compatta delle cellule pluripotenti, caratterizzata da un elevato rapporto nucleo-citoplasma, nucleoli prominenti e giunzioni intercellulari estremamente strette (Figura 2, destra).
Tipicamente, si osservavano dozzine o centinaia di colonie dopo la riprogrammazione mediante elettroporazione con 1–2 × 10⁶ AFC. Da ogni linea di AFC, 24 colonie singole venivano prelevate manualmente, ottenendo da 1 a 9 clone di iPSC espandibili (Tabella 1).
Convalida dei marcatori di pluripotenza
Le linee di iPSC stabilite dovrebbero esprimere l'intero repertorio di marcatori di pluripotenza. Figura 3 mostra risultati rappresentativi di immunofluorescenza e FACS per una linea di iPSC aneuploide con sindrome di Klinefelter (47,XXY) al passaggio 15. I marcatori nucleari OCT4, NANOG e SOX2 mostrano un'espressione uniforme in tutta la colonia, mentre il marcatore di superficie cellulare TRA-1-60 presenta una colorazione membranosa ad anello caratteristica (Figura 3A). L'analisi FACS ha inoltre quantificato elevati livelli di espressione di SSEA-4 e TRA-1-81 (Figura 3B). Questi profili di espressione sono coerenti con i criteri stabiliti per cellule staminali pluripotenti autentiche, confermando che l'aneuploidia non compromette il raggiungimento della pluripotenza a livello di marcatori.
Conferma del cariotipo di iPSC aneuploidi
L'analisi del cariotipo con bandeggio G è essenziale per ogni clone di iPSC derivato da cellule del liquido amniotico aneuploidi. Figura 4 mostra risultati rappresentativi dell'analisi del cariotipo.
Un risultato positivo del cariotipo è l'identificazione di cloni di iPSC con il cariotipo aneuploide previsto, confermato in almeno 20 preparati in metafase. Un risultato negativo consiste nel ritrovamento di soli cloni euploidi (46,XX o 46,XY) a partire da una fonte aneuploide, il che, sebbene confermi il successo del protocollo nella generazione di iPSC, indica un completo recupero della trisomia e richiede la ripetizione della derivazione clonale da singola cellula o del riprogrammamento per ottenere linee in cui l'aneuploidia sia mantenuta.
Verifica della rimozione del vettore episomale
I vettori episomiali vengono progressivamente diluiti durante il passaggio e diventano non rilevabili dopo una prolungata coltura nella maggior parte delle linee iPSC stabilite8,25,26,27. L'eliminazione del vettore esogeno è un tratto distintivo dell'approccio di riprogrammazione non integrante. Un risultato positivo (confermata eliminazione episomiale) consiste nell'assenza di bande di amplificazione di oriP (544 bp) al passaggio 10 o successivi. Un risultato negativo (eliminazione incompleta) mostra bande persistenti al passaggio 10, che di solito si risolvono entro il passaggio 15–20 con ulteriori passaggi. L'amplificazione di GAPDH è stata utilizzata come controllo interno per confermare l'integrità del DNA genomico e il successo dell'amplificazione PCR (Figura 5A). Casi rari di vettori episomiali persistenti oltre il passaggio 20 potrebbero indicare eventi di integrazione genomica, segnalando che la linea clonale deve essere scartata. Per garantire la sicurezza biologica e l'integrità sperimentale delle linee iPSC aneuploidi generate, si raccomanda vivamente uno screening basato su PCR per la contaminazione da micoplasma. I supernatanti della coltura cellulare di tutte le linee monoclonali mantenute devono essere raccolti e analizzati mediante PCR utilizzando primer specifici per micoplasma. Tutte le linee monoclonali risultate positive (ad esempio, Clone #7 e #9) devono essere scartate immediatamente (Figura 5B).
Potenziale di differenziazione trilineare in vitro
La conferma del potenziale di differenziazione trilineare è un criterio richiesto per validare le linee di iPSC. Figura 6 mostra risultati rappresentativi della differenziazione in vitro tramite corpi embrionali di una linea di iPSC con trisomia 18. L'espressione di PAX6 (ectoderma), T-Brachyury e TBX6 (mesoderma), GATA6 e SOX17 (endoderma) conferma la capacità delle iPSC aneuploidi di differenziarsi in tutti e tre i foglietti embrionali (Figura 6).
Derivazione e verifica clonale a singola cellula
Per ottenere modelli di iPSC aneuploidi ad alta fedeltà, è stato implementato un protocollo di derivazione e verifica in due fasi a livello di singola cellula, al fine di ridurre al minimo l'eterogeneità cellulare ed escludere potenziali casi di chimera. Dopo l'espansione iniziale, le linee clonali con cariotipo normale sono state dissociate e riseminata a densità di singola cellula. L'ispezione microscopica a 24–48 h ha confermato la presenza di eventi di adesione derivati da singole cellule, che sono stati successivamente espansi per stabilire linee monoclonali validate (Figura 7A).
Un risultato positivo è rappresentato dall'espansione riuscita di una singola colonia a partire da una singola cellula in una piastra a 96 pozzetti, confermata da un monitoraggio microscopico giornaliero che mostra un'unica colonia per pozzetto (Figura 7B). Dopo l'espansione, la riconferma del cariotipo e dei marcatori di pluripotenza deve corrispondere a quella del clone originale. Un risultato negativo consiste nell'osservazione di più colonie per pozzetto o nel mancato sviluppo e sopravvivenza delle singole cellule.
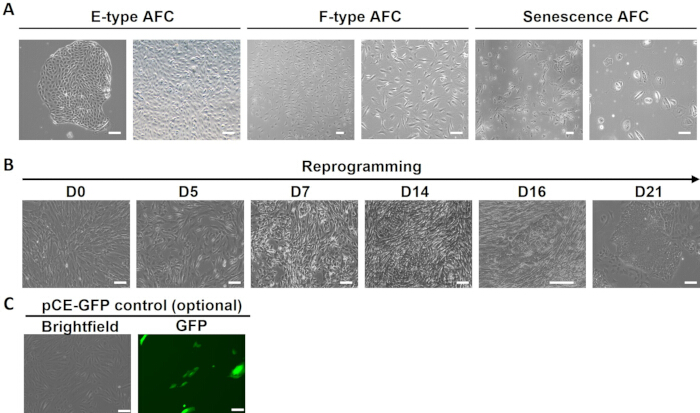
Figura 1: Progressione morfologica della riprogrammazione delle cellule del liquido amniotico mediante plasmidi episomiali Epi5. Immagini rappresentative che mostrano la morfologia di diversi tipi di cellule del liquido amniotico (AFC) primarie e la procedura di riprogrammazione in punti temporali chiave. (A) Immagini a contrasto di fase che mostrano le tre morfologie primarie del materiale iniziale: di tipo epiteliale (tipo E), di tipo fibroblastico (tipo F) e cellule senescenti del liquido amniotico. (B) Immagini rappresentative del decorso temporale del processo di riprogrammazione dal Giorno 0 al Giorno 21, che illustrano la transizione dalle AFC primarie all’emergere di colonie compatte simili a iPSC. Giorno 0: cellule staminali mesenchimali del liquido amniotico (AF-MSCs) prima dell’elettroporazione, che mostrano una tipica morfologia mesenchimale a forma di fuso. Giorno 3–5: fase iniziale della transizione mesenchimale-epiteliale (MET); compaiono cellule di tipo epiteliale in aggregati tra le cellule mesenchimali residue. Giorno 7–10: compaiono le cellule primarie di riprogrammazione. Giorno 14–16: colonie primarie di riprogrammazione (colonne MET) con morfologia a selciato ma bordi mal definiti. Giorno 21–25: colonie di iPSC completamente riprogrammate che emergono con cellule piatte e strettamente impacchettate, bordi distinti, alto rapporto nucleo-citoplasma e nucleoli prominenti. (C) Immagini rappresentative in fluorescenza che mostrano l’espressione di GFP dopo l’elettroporazione delle AFC con pCE-GFP. La barra della scala corrisponde a 100 µm. Cliccare qui per visualizzare una versione ingrandita di questa figura.
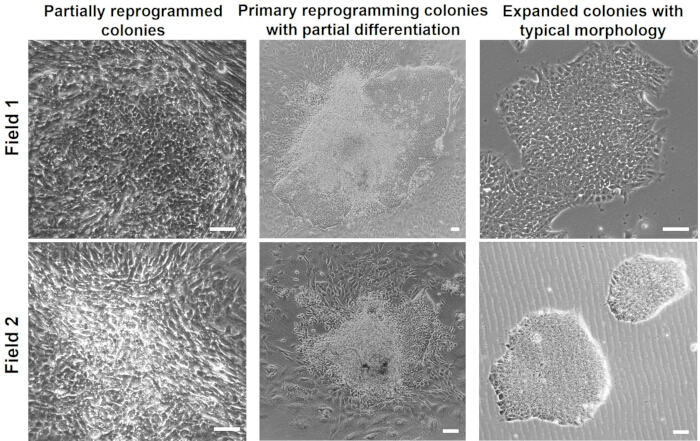
Figura 2: Confronto tra colonie completamente riprogrammate e colonie parzialmente riprogrammate. Sinistra: colonie parzialmente riprogrammate che mostrano aggregati dispersi e bordi irregolari. Centro: colonie primarie di riprogrammamento con regioni tipiche simili a iPSC accompagnate da aree di differenziazione spontanea. Destra: colonie espanse con morfologia tipica delle iPSC. Barre della scala, 100 µm. Cliccare qui per visualizzare una versione ingrandita di questa figura.
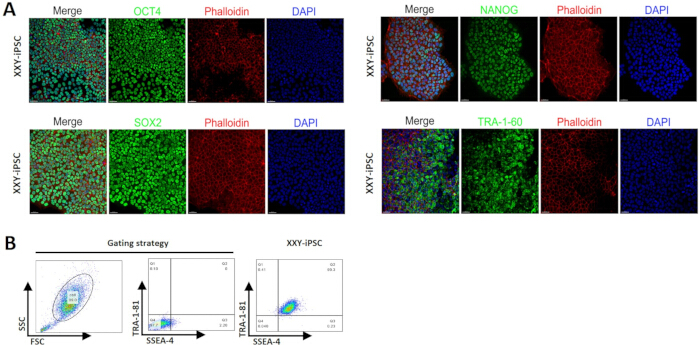
Figura 3: Analisi mediante immunofluorescenza dei marcatori di pluripotenza in iPSC aneuploidi. (A) Colorazione mediante immunofluorescenza di iPSC XXY per i marcatori principali della pluripotenza, inclusi OCT4, SOX2, NANOG e TRA-1-60 (verde). La struttura del citoscheletro è visualizzata con Phalloidina (rosso) e i nuclei con DAPI (blu). La barra della scala rappresenta 50 µm. (B) Analisi mediante citometria a flusso (FACS) che mostra la strategia di gating e l'espressione quantitativa di SSEA-4 e TRA-1-81 nella linea di iPSC XXY. Cliccare qui per visualizzare una versione ingrandita di questa figura.
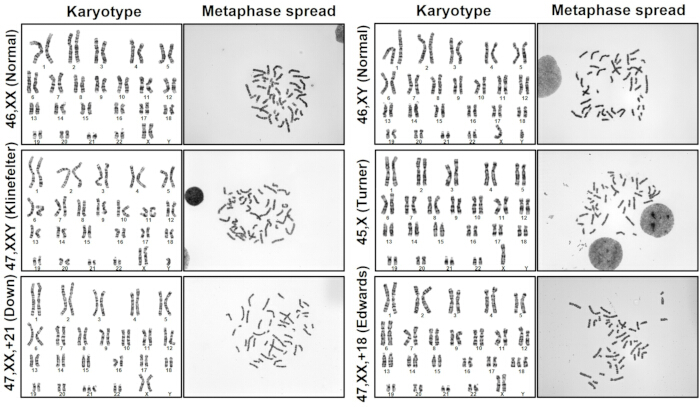
Figura 4: Analisi del cariotipo con bandeggio G di linee iPSC aneuploidi. Analisi del cariotipo con bandeggio G e corrispondenti allargamenti della metafase che confermano il mantenimento stabile di anomalie cromosomiche nelle linee generate, inclusi 46,XX (femmina normale), 46,XY (maschio normale), 47,XXY (sindrome di Klinefelter), 45,X (sindrome di Turner), 47,XX,+21 (sindrome di Down) e 47,XX,+18 (sindrome di Edwards). Cliccare qui per visualizzare una versione ingrandita di questa figura.
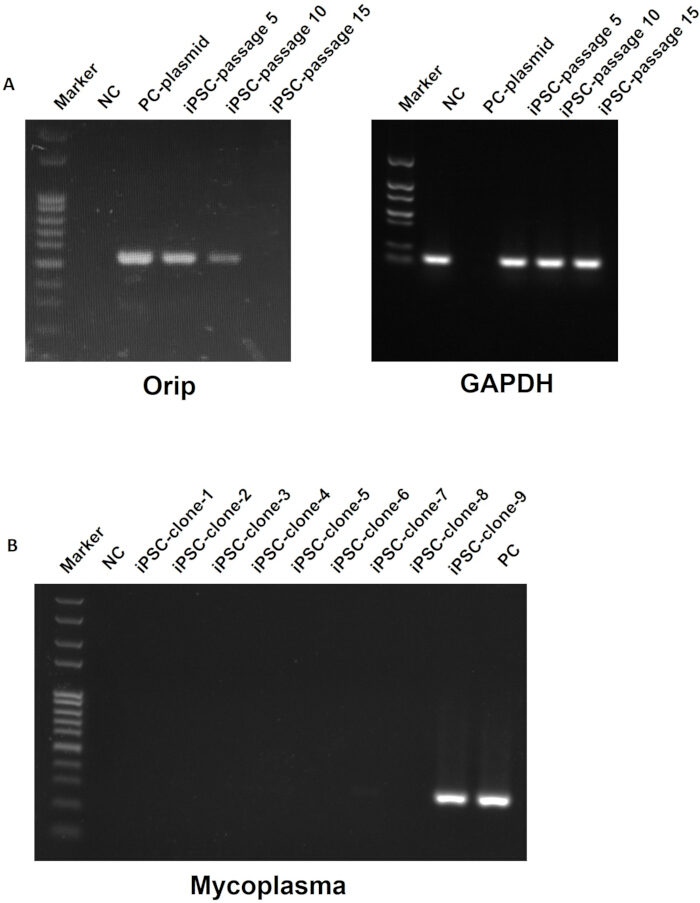
Figura 5: Rilevamento mediante PCR della rimozione del vettore episomale e test per micoplasma in linee di iPSC aneuploidi. Elettroforesi su gel di agarosio (2%) di prodotti PCR amplificati con primer per oriP/GAPDH o per micoplasma. (A) Rimozione totale del vettore nella linea clonale di iPSC a diversi passaggi. (B) Rilevamento mediante PCR della contaminazione da micoplasma in 9 cloni indipendenti. Il clone n. 7 (debole) e il clone n. 9 (intenso) mostrano contaminazione da micoplasma e devono essere scartati. PC, controllo positivo; NC, controllo negativo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
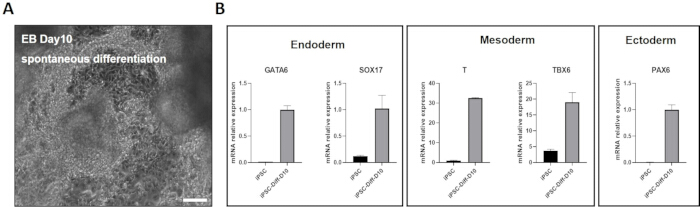
Figura 6: Differenziazione trilineare in vitro di iPSC aneuploidi. (A) Micrografia in contrasto di fase che illustra la morfologia dei corpi embrionoidi (EB) al Giorno 10 durante il processo di differenziazione spontanea successivo all'adesione a una superficie rivestita di gelatina. La barra della scala rappresenta 100 µm. (B) Analisi RT-qPCR per quantificare l'uscita dalla pluripotenza e il successivo impegno verso linee cellulari. I risultati mostrano un aumento significativo dell'espressione relativa di mRNA dei marcatori caratteristici dei tre strati germinativi embrionali al Giorno 10 rispetto alle iPSC indifferenziate: Endoderma (GATA6, SOX17), Mesoderma (T, TBX6), ed Ectoderma (PAX6). I dati sono presentati come media ± DS. Cliccare qui per visualizzare una versione ingrandita di questa figura.
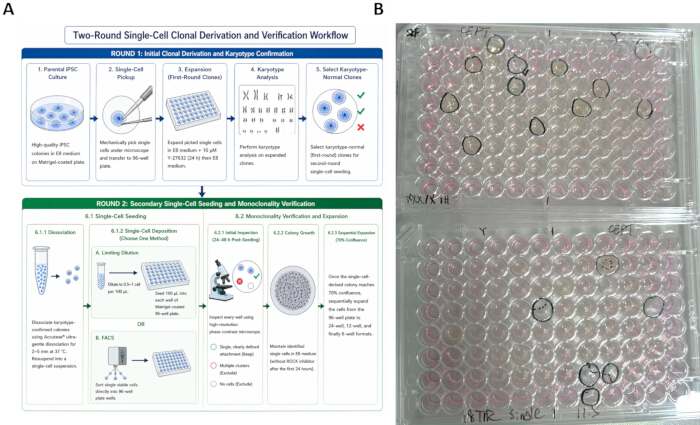
Figura 7: Flusso di lavoro per la derivazione monoclonale da singola cellula per linee iPSC aneuploidi. (A) Schema del flusso di lavoro che illustra il Round 1 (derivazione iniziale e conferma del cariotipo) e il Round 2 (semina secondaria da singola cellula mediante diluizione limite o FACS per garantire la monoclonalità) del processo di verifica clonale. Fase 1: Selezione meccanica di singole colonie iPSC, espansione in piastre a 6 pozzetti e verifica del cariotipo. Fase 2: Per i cloni aneuploidi con cariotipo confermato, semina da singola cellula mediante diluizione limite o FACS in piastre a 96 pozzetti per assicurare l'origine clonale da una singola cellula. Vengono espanse solo le pozzette con crescita di una singola colonia. (B) Immagine rappresentativa di piastre a 96 pozzetti durante la fase di espansione clonale, con le colonie derivate da singola cellula correttamente identificate cerchiate per l'espansione sequenziale. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Background genetico | Cariotipo | Numero di linee AFC testate | Numero di singole colonie selezionate dopo il riprogrammazione | Numero di cloni iPSC stabiliti con successo |
| Trisomia 21 | 47,XX,+21 | 2 | 48 | 9 |
| Trisomia 18 | 47,XX,+18 | 1 | 24 | 8 |
| Sindrome di Klinefelter | 47,XXY | 2 | 48 | 6 |
| Monosomia X | 45,X | 1 | 24 | 1 |
| Femmina normale | 46,XX | 1 | 24 | 2 |
| Maschio normale | 46,XY | 2 | 48 | 6 |
| Le singole colonie sono state selezionate manualmente in base alla morfologia delle colonie dopo il riprogrammazione ed espanse per ulteriori caratterizzazioni. Il numero di cloni iPSC stabiliti con successo indica le colonie che sono state espanse e mantenute dopo la selezione. | ||||
Tabella 1: Dettagli delle linee AFC utilizzate nel riprogrammazione delle cellule somatiche.
| Giorno | Composizione del mezzo | Osservazione chiave |
| 0 | Mezzo FC senza antibiotico + Y27632 | Electroporazione |
| 1 | Mezzo FC | Le cellule sopravvissute iniziano il recupero |
| 2 – 6 | Da FC a E8 (cambio parziale) | Inizio della MET; le cellule diventano compatte; compaiono cellule più piccole e rotonde in aggregati |
| 7 – 8 | E8 (cambio completo ogni due giorni) | Formazione iniziale di colonie |
| 9 – 14 (opzionale) | E8 (+ 25 μM NaB) | Aggregati simili a selciato con bordi poco definiti; dimensioni variabili |
| 15-18 | E8 (quotidiano) | Compaiono vere colonie di iPSC (giorno 18–25): colonie piatte, strettamente impacchettate con bordi netti e alto rapporto nucleo-citoplasma |
| 19 – 25 | E8 (quotidiano) | Le colonie superano i 400 μm di diametro; morfologia piatta e uniforme; pronte per essere selezionate |
Tabella 2: Riassunto della cronologia completa del riprogrammamento dal Giorno 0 alla selezione delle colonie.
| Marcatore | Localizzazione cellulare | Metodo di rilevamento |
| OCT4 | Nucleare | Immunofluorescenza / Citometria a flusso |
| NANOG | Nucleare | Immunofluorescenza / Citometria a flusso |
| SOX2 | Nucleare | Immunofluorescenza / Citometria a flusso |
| SSEA-4 | Superficie cellulare | Immunofluorescenza / Citometria a flusso |
| TRA-1-60 | Superficie cellulare | Citometria a flusso / Colorazione vitale |
| TRA-1-81 | Superficie cellulare | Citometria a flusso / Colorazione vitale |
Tabella 3: Profili previsti di espressione dei marcatori di pluripotenezza di clone iPSC stabiliti.
| Problema | Causa possibile | Soluzione |
| Bassa vitalità cellulare (< 40%) dopo elettroporazione | 1. Parametri dell'impulso troppo intensi per questa linea cellulare | 1. Testare parametri più delicati |
| 2. Le cellule erano troppo confluenti (> 90%) | 2. Assicurarsi una confluenza del 75–90% al Giorno 0 | |
| 3. Bolle d'aria hanno causato arco elettrico | 3. Aspirare lentamente; controllare l'estremità per bolle prima dell'impulso | |
| 4. Buffer di risospensione degradato o errato | 4. Utilizzare Buffer R fresco dal kit | |
| 5. Scarsa qualità delle cellule prima dell'elettroporazione | 5. Utilizzare solo cellule P3–P5 con morfologia sana | |
| Nessuna colonia di iPSC osservata entro il Giorno 25 | 1. Mezzo inattivo | 1. Utilizzare E8 appena preparato; aggiungere NaB a una concentrazione di 25–100 μM dal Giorno 9 al Giorno 14 |
| 2. DNA plasmidico degradato o scongelato in modo errato | 2. Verificare l'integrità del plasmide su gel all'agarosio | |
| 3. Cellule differenziate contaminanti in sovracrescita | 3. Rimuovere manualmente le aree differenziate prima che si diffondano; passare le cellule per ridurre la densità | |
| 4. Rivestimento della matrice fallito o deteriorato | 4. Preparare un nuovo rivestimento; mantenerlo sul ghiaccio | |
| Le colonie di iPSC si differenziano spontaneamente dopo il picking | 1. Le colonie sono state prelevate troppo presto (prima del Giorno 18) | 1. Attendere colonie > 400 μm con morfologia piatta e matura |
| 2. Rivestimento della matrice insufficiente o degradato | 2. Assicurarsi un rivestimento fresco; non farlo asciugare prima dell'uso | |
| 3. Passaggio come cellule singole senza inibitore di ROCK | 3. Utilizzare sempre Y-27632 per le prime 24 ore dopo il passaggio | |
| L'analisi del cariotipo mostra perdita dell'aneuploidia attesa (recupero della trisomia) | 1. Eliminazione spontanea del cromosoma intrinseca al processo di riprogrammazione | 1. Analizzare più cloni (≥ 5–10) per linea; i cloni recuperati possono essere usati come controlli euploidi isogenici |
| 2. Cellule iniziali a passaggio avanzato più soggette al recupero | 2. Utilizzare solo cellule P3–P5 con morfologia sana | |
| La PCR rileva sequenze episomiali a passaggi avanzati (P10+) | 1. Passaggi insufficienti dalla riprogrammazione | 1. Continuare i passaggi fino a P15–P20; ripetere il test PCR |
| 2. Espressione persistente di EBNA-1 che mantiene i plasmidi | 2. La coltura prolungata di solito risolve il problema; monitorare ogni 5 passaggi | |
| 3. Falso positivo dovuto a contaminazione residua di plasmide nella preparazione | 3. Includere controlli negativi appropriati; utilizzare una purificazione del DNA su colonna | |
| Arco elettrico/scintilla durante l'impulso di elettroporazione | 1. Bolle d'aria intrappolate nella punta | 1. Aspirare lentamente la miscela; battere sul tubo per eliminare le bolle prima del caricamento |
| 2. Alta concentrazione di sale nel campione di DNA | 2. Utilizzare una preparazione di plasmide priva di endotossine | |
| 3. Detriti cellulari che ostruiscono l'apertura della punta | 3. Filtrare la sospensione cellulare attraverso un filtro cellulare da 40 μm | |
| 4. Punta danneggiata o riutilizzata oltre il limite consentito | 4. Utilizzare ogni punta al massimo 2 volte; controllare per danni |
Tabella 4: Guida alla risoluzione dei problemi relativi a difficoltà comuni durante la riprogrammazione AFC e l'istaurazione di cloni iPSC.
| Caratteristica | Colony parzialmente riprogrammate | Colony iPSC completamente riprogrammate |
| Tempo di comparsa | Appaiono precocemente (giorno 7–10) | Variabile, in genere compaiono più tardi (giorno 14–18) |
| Bordo della colonia | Margini irregolari | Margini netti e ben definiti |
| Morfologia cellulare | Celle più grandi, eterogenee | Piccole, uniformi, alto rapporto nucleo-citoplasma |
| Disposizione cellulare | Disposte in modo lento | Strettamente impacchettate, aspetto a selciato |
| Nucleoli | Poco evidenti | Nucleoli prominenti |
| Marker di pluripotenza | Negativi o deboli/focali | Forti, uniformi |
| Stabilità della colonia | Degenerano o si differenziano al passaggio | Stabili, espandibili |
Tabella 5: Caratteristiche distintive delle colonie completamente riprogrammate vs. parzialmente riprogrammate.
Discussione
Questo protocollo descrive un metodo non integrante e privo di cellule feeder per generare iPSC umane aneuploidi a partire da cellule del liquido amniotico, utilizzando plasmidi episomiali trasferiti via elettroporazione. Diversi passaggi critici determinano il successo del riprogrammamento. Innanzitutto, la qualità della popolazione iniziale di cellule del liquido amniotico (AFC) è fondamentale. Nei laboratori clinici di citogenetica, le AFC vengono generalmente espanse in mezzi progettati per accelerare la proliferazione cellulare al fine di eseguire l'analisi del cariotipo prenatale piuttosto che per colture a lungo termine. L'impatto di questo approccio sull'efficienza successiva di generazione di iPSC non è ancora completamente compreso. Pertanto, la composizione del mezzo di coltura deve essere attentamente considerata durante la preparazione del campione, e popolazioni di AFC a basso passaggio e ad alta proliferazione devono essere arricchite dopo il scongelamento per garantire una qualità cellulare ottimale prima dell'elettroporazione. In secondo luogo, le condizioni di elettroporazione devono essere ottimizzate per massimizzare il trasferimento del DNA preservando al contempo la vitalità cellulare. Nel presente protocollo, l'elettroporazione a 1200 V, 20 ms e con 2 impulsi ha prodotto costantemente un'efficienza di trasfezione soddisfacente e una formazione riproducibile di colonie. Un'ottimizzazione minore potrebbe occasionalmente essere necessaria per campioni di singoli donatori. La morte cellulare eccessiva durante le prime 24–48 ore successive all'elettroporazione è spesso associata a una scarsa qualità iniziale delle cellule, alla rimozione incompleta del mezzo di coltura residuo prima della risospensione nel buffer di elettroporazione o a un'eccessiva manipolazione durante l'elettroporazione. In terzo luogo, il momento della selezione delle colonie è cruciale: le colonie che compaiono prima del Giorno 14 sono tipicamente parzialmente riprogrammate, mentre le vere colonie di iPSC emergono tra il Giorno 15 e il Giorno 25 e mostrano la caratteristica morfologia piatta e compatta con bordi ben definiti. La differenziazione spontanea dopo l'emergenza delle colonie è comunemente causata dalla selezione prematura delle colonie, dal ritardo nel rinnovo del mezzo o da un'elevata densità delle colonie; pertanto, una selezione tempestiva delle colonie contribuisce a mantenere la qualità delle stesse. Inoltre, il butirrato di sodio può essere incluso come ottimizzazione facoltativa tra il Giorno 9 e il Giorno 15 per linee di AFC che mostrano prestazioni di riprogrammazione relativamente scadenti23. Infine, dopo la verifica iniziale del cariotipo, è necessario eseguire un clonaggio monocellulare via diluizione limite o FACS in piastre a 96 pozzetti per garantire l'origine clonale.
Il ruolo di p53 nel riprogrammazione dipende dalla metodologia. Nel riprogrammazione episomale basato su OSKM, la soppressione transitoria di p53 migliora la sopravvivenza cellulare durante la risposta iniziale allo stress e facilita la MET27, mentre p53 agisce come protezione genomica nel riprogrammazione chimico28. Considerata l'efficienza del riprogrammazione OSKM basato su elettroporazione per campioni clinici rari, questo approccio rimane prezioso. Per minimizzare i potenziali rischi genomici, le linee iPSC stabilite dovrebbero essere sottoposte a cariotipizzazione di routine e, quando appropriato, analisi di CNV e WES/WGS prima delle applicazioni successive.
Un limite particolarmente importante nella generazione di iPSC aneuploidi è il fenomeno del recupero della trisomia durante la riprogrammazione. Akutsu et al.29 hanno dimostrato che la frequenza di recupero varia notevolmente in base al tipo di cromosoma. Questa variabilità implica che, per alcune aneuploidie, è necessario sottoporre a screening un elevato numero di cloni mediante cariotipizzazione, al fine di identificare quelli che hanno mantenuto l'aberrazione cromosomica originale. Al contrario, lo stesso fenomeno può essere sfruttato per generare linee di controllo euploidi isogeniche dallo stesso esperimento di riprogrammazione, fornendo un potente controllo interno per lo studio di fenotipi specifici dell'aneuploidia.
Il protocollo qui descritto fornisce una piattaforma solida e riproducibile per stabilire linee di iPSC aneuploidi specifiche per il paziente a partire da campioni diagnostici prenatali residui. Queste linee cellulari possono essere utilizzate in studi sulla biologia dei cromosomi, sui meccanismi dello sviluppo, sulla modellizzazione delle malattie, sulla genomica funzionale, sulla modifica del genoma e su schermate ad alto rendimento di farmaci, dopo differenziamento mirato in tipi cellulari rilevanti per la malattia. Nella medicina rigenerativa, gli iPSC privi di transgeni soddisfano i requisiti di sicurezza per una potenziale futura applicazione clinica. Questo protocollo, fornendo un flusso di lavoro standardizzato e riproducibile, facilita l'adozione più ampia della tecnologia degli iPSC aneuploidi in queste diverse applicazioni.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari in conflitto. L'illustrazione schematica in Figura 7A è stata generata utilizzando strumenti assistiti da intelligenza artificiale e successivamente rivista e modificata dagli autori.
Ringraziamenti
Questo lavoro è stato sostenuto dal Programma Nazionale Chiave per la Ricerca e lo Sviluppo della Cina (numero di concessione 2022YFA0913300) e dal Progetto Clinico Chiave dell'Ospedale Terzo dell'Università di Pechino (numero di concessione BYSY2022054) assegnati a Jianying Guo.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Tripsina-EDTA 0,25% | Thermo Fisher (Gibco) | 25200056 | Dissociazione cellulare per il passaggio delle AFC |
| Scala di DNA 100 bp Plus II | TransGen Biotech | BM321-01 | Scala di DNA |
| Freezer a -80 °C | Thermo Fisher | FDE60086fv | Conservazione a lungo termine di DNA plasmidico e campioni |
| Soluzione di distacco cellulare Accutase | StemCell Technologies | 07920 | Dissociazione delicata delle iPSC in piccoli aggregati |
| Acido acetico (glaciale) | Sigma-Aldrich | 338826 | Componente del fissativo per cariotipo (MeOH:AcOH 3:1) |
| Agarosio | Sigma-Aldrich | A9539 | Elettroforesi su gel per prodotti PCR (2%) |
| Mezzo AmnioType-1 | VivaCell BIOSCIENCES | C3620-0100 | Mezzo di coltura primario per le AFC |
| Contatore cellulare automatico / Emocitometro | Countstar | TC20 | Conteggio delle cellule vitali con esclusione del blu di tripano |
| Microscopio a campo chiaro (100x ad immersione) | Zeiss | Axiovert5 | Analisi di metafasi allargate per cariotipo |
| Centrifuga (rotore a cestello oscillante) | Eppendorf | 5810R | Formazione del pellet cellulare a 300 x g |
| Cappa di sicurezza di Classe II | ESCO | AC2-4S8-CN | Ambiente sterile per tutte le operazioni di coltura cellulare |
| Incubatore CO2 (umidificato) | Thermo scientific | 3131 | Mantenimento dell'ambiente a 37 °C e 5% CO2 |
| Colcemid (10 µg/mL) | Capricorn scientific | COL-H | Arresto in metafase per cariotipo (0,1 µg/mL, 2-4 h) |
| Mezzo di congelamento CryoStor CS10 | STEMCELL Technologies | 07959 | Mezzo di congelamento cellulare |
| DAPI | Merck Millipor | 10236276001 | Colorazione nucleare |
| DMEM (alto contenuto di glucosio) | Thermo Fisher (Gibco) | 11965092 | Mezzo base per il mezzo di coltura dei fibroblasti (FC) |
| DMEM/F-12 | Thermo Fisher (Gibco) | 11330032 | Tampone per diluizione di Matrigel (1:200) |
| DPBS senza Ca2+/Mg2+ | Thermo Fisher (Gibco) | 14190250 | Tampone di lavaggio |
| Plasmide episomale (pCE-GFP) | Addgene | #41858 | Vettore di riprogrammazione non integrante (controllo GFP) |
| Plasmide episomale (pCXLE-hOCT3/4-shp53-F) | Addgene | #27077 | Vettore di riprogrammazione non integrante (OCT4 + shp53) |
| Plasmide episomale (pCXLE-hSK) | Addgene | #27078 | Vettore di riprogrammazione non integrante (SOX2 + KLF4) |
| Plasmide episomale (pCXLE-hUL) | Addgene | #27080 | Vettore di riprogrammazione non integrante (L-MYC + LIN28) |
| Siero fetale bovino | HyClone | SH30071.03 | Supplemento sierico per l'espansione delle AFC (mezzo FC, 15%) |
| Microscopio a fluorescenza | Leica | Sp8 | Colorazione vitale e visualizzazione mediante IF per TRA-1-60/81 |
| Sistema di elettroforesi su gel | Bio-Rad | 164-5056 | Analisi su gel di agarosio di prodotti PCR |
| Gelatina (0,1%) | Sigma-Aldrich | G1393 | Rivestimento dei contenitori di coltura per l'adesione delle AFC |
| Kit di estrazione del DNA genomico | TIANGEN | 4992199 | Isolamento di DNA di qualità PCR da iPSC |
| Soluzione colorante Giemsa | Sigma-Aldrich | GS500 | Colorazione G-banding dei cromosomi (5%) |
| GlutaMAX (100x) | Thermo Fisher (Gibco) | 35050061 | Supplemento per il mezzo FC |
| Microscopio invertito a contrasto di fase | Zeiss | Axiovert5 | Monitoraggio quotidiano della coltura e della morfologia delle colonie |
| Serbaio di azoto liquido | Thermo Scientific | CY50985 | Criopreservazione delle cellule |
| Matrice della membrana basale Matrigel | Corning | 354230 | Rivestimento dei contenitori di coltura per l'adesione delle iPSC |
| Metanolo (anidro) | Sigma-Aldrich | 34860 | Componente del fissativo per cariotipo (MeOH:AcOH 3:1) |
| Anticorpo anti-NANOG (Coniglio) | Abcam | ab109250 | Immunofluorescenza; marcatore nucleare di pluripotenza |
| Kit di elettroporazione Neon NxT (100 µL) | Thermo Fisher (Invitrogen) | N10025 | Elettroporazione; contiene i tamponi R, T, E e punte da 100 µL |
| Sistema di elettroporazione Neon NxT | Thermo Fisher (Invitrogen) | NEON18S | Introduzione di plasmidi episomiali mediante elettroporazione |
| Aminoacidi non essenziali (NEAA, 100x) | Thermo Fisher (Gibco) | 11140050 | Supplemento per il mezzo FC |
| Anticorpo anti-OCT4 (Coniglio) | Abclonal | A7920 | Immunofluorescenza; marcatore nucleare di pluripotenza |
| PCR Master Mix (alta fedeltà) | TIANGEN | 4992920 | Verifica dell'eliminazione episomiale mediante PCR |
| pCXWB-EBNA1 | Addgene | #37624 | Espressione episomiale non replicante di EBNA1 |
| Anticorpo PE anti-umano TRA-1-81 | BioLegend | 330708 | Colorazione della pluripotenza |
| Penicillina-Streptomicina (100x) | Thermo Fisher (Gibco) | 15140122 | Supplemento antibiotico (NON utilizzato dopo elettroporazione) |
| Reagente Phalloidin-iFluor 647 | Abcam | ab176759 | Etichettatura dell'F-actina (filamenti di actina) |
| Cloruro di potassio (KCl) | Sigma-Aldrich | P5405 | Soluzione ipotonica per cariotipo (0,075 M) |
| Sistema di PCR in tempo reale | Thermo Fisher Scientific | QuantStudio3 | qPCR per la verifica dei geni marcatore |
| Butirrato di sodio (NaB) | Sigma-Aldrich | B5887 | Inibitore dell'HDAC; 25-100 µM per potenziare la riprogrammazione |
| Anticorpo anti-SOX2 (Topo) | R&D Systems | MAB2018 | Immunofluorescenza; marcatore nucleare di pluripotenza |
| Anticorpo anti-SSEA-4 | BioLegend | 330408 | Immunofluorescenza; marcatore di superficie cellulare della pluripotenza |
| Stereomicroscopio | Nikon | SMZ745 | Selezione meccanica delle colonie sotto ingrandimento |
| TeSR-E8 | STEMCELL Technologies | 05990 | Mezzo di mantenimento delle iPSC senza feeder |
| Anticorpo anti-TRA-1-60 | Merck Millipor | MAB4360 | Colorazione della pluripotenza |
| Trans DNA Marker II | TransGen Biotech | BM411-01 | Scala di DNA |
| TransDetect PCR Mycoplasma Detection Kit | TransGen Biotech | FM311-01 | Test per micoplasmi |
| Enzima TrypLE Select (1x) | Thermo Fisher (Gibco) | 12563011 | Dissociazione delicata delle AFC aderenti |
| Tripsina (0,025%) | Sigma-Aldrich | T4799 | Pretattamento per G-banding dei vetrini (30-60 s) |
| Ciclatore termico VeritiPro a 96 pozzetti | Thermo Fisher Scientific | A48141 | PCR per la verifica dell'eliminazione episomiale |
| Bagno termostatico (37 °C) | Shanghai Zhixin Experimental Instrument Technology Co., Ltd. | ZX-S22 | Scongelamento di mezzi e reagenti |
| Y-27632 Dicloridrato (inibitore ROCK) | Tocris | 1254 | Migliora la sopravvivenza delle iPSC dopo la dissociazione (10 µM) |
Riferimenti
- Gurdon JB. The developmental capacity of nuclei taken from intestinal epithelium cells of feeding tadpoles. Development. 1962;10(4):622-640.
- Evans MJ, Kaufman MH. Establishment in culture of pluripotential cells from mouse embryos. Nature. 1981;292(5819):154-156.
- Martin GR. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 1981;78(12):7634-7638.
- Thomson JA, Itskovitz-Eldor J, Shapiro SS, Waknitz MA, Swiergiel J, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145-1147.
- Takahashi K, Tanabe K, Ohnuki M, Narita M, Ichisaka T, et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 2007;131(5):861-872.
- Fusaki N, Ban H, Nishiyama A, Saeki K, Hasegawa M. Efficient induction of transgene-free human pluripotent stem cells using a vector based on Sendai virus, an RNA virus that does not integrate into the host genome. Proc Jpn Acad Ser B Phys Biol Sci. 2009;85(8):348-362.
- Warren L, Manos PD, Ahfeldt T, Loh YH, Li H, et al. Highly efficient reprogramming to pluripotency and directed differentiation of human cells with synthetic modified mRNA. Cell Stem Cell. 2010;7(5):618-630.
- Yu J, Hu K, Smuga-Otto K, Tian S, Stewart R, et al. Human induced pluripotent stem cells free of vector and transgene sequences. Science. 2009;324(5928):797-801.
- Hou P, Li Y, Zhang X, Liu C, Guan J, et al. Pluripotent stem cells induced from mouse somatic cells by small-molecule compounds. Science. 2013;341(6146):651-654.
- Guan J, Wang G, Wang J, Zhang Z, Fu Y, et al. Chemical reprogramming of human somatic cells to pluripotent stem cells. Nature. 2022;605(7909):325-331.
- Liuyang S, Wang G, Wang Y, He H, Lyu Y, et al. Highly efficient and rapid generation of human pluripotent stem cells by chemical reprogramming. Cell Stem Cell. 2023;30(4):450-459.e9.
- Wang Y, Peng F, Yang Z, Cheng L, Cao J, et al. A rapid chemical reprogramming system to generate human pluripotent stem cells. Nat Chem Biol. 2025;21(7):1030-1038.
- Li C, Zhou J, Shi G, Ma Y, Yang Y, et al. Pluripotency can be rapidly and efficiently induced in human amniotic fluid-derived cells. Hum Mol Genet. 2009;18(22):4340-4349.
- Slamecka J, Salimova L, McClellan S, van Kelle M, Kehl D, et al. Non-integrating episomal plasmid-based reprogramming of human amniotic fluid stem cells into induced pluripotent stem cells in chemically defined conditions. Cell Cycle. 2016;15(2):234-249.
- Li Q, Fan Y, Sun X, Yu Y. Generation of induced pluripotent stem cells from human amniotic fluid cells by reprogramming with two factors in feeder-free conditions. J Reprod Dev. 2013;59(1):72-77.
- Crosland BA, Hedges MA, Ryan KS, D'mello RJ, Mccarty OJT, Amniotic fluid: its role in fetal development and beyond. J Perinatol. 2025 Aug;45(8):1163-1170. doi: 10.1038/s41372-025-02313-1. Epub 2025 May 8. PMID: 40341778; PMCID: PMC12354197.
- Liu L, et al. Amniotic fluid stem cells in birth defects: integrated roles in disease modeling, prenatal diagnosis, and therapy. Stem Cell Rev Rep. 2026. doi:10.1007/s12015-026-11161-1.
- Antonucci I, Provenzano M, Rodrigues M, Pantalone A, Salini V, et al. Amniotic fluid stem cells: a novel source for modeling of human genetic diseases. Int J Mol Sci. 2016;17(4):607.
- Guillot PV. Induced pluripotent stem (iPS) cells from human fetal stem cells. Best Pract Res Clin Obstet Gynaecol. 2016;31:112-120. doi:10.1016/j.bpobgyn.2015.08.007.
- Lu HE, Yang YC, Chen SM, Su HL, Huang PC, et al. Modeling neurogenesis impairment in Down syndrome with induced pluripotent stem cells from trisomy 21 amniotic fluid cells. Exp Cell Res. 2013;319(4):498-505.
- Lee CC, et al. Establishment of a human trisomy 18 induced pluripotent stem cell line from amniotic fluid cells. Stem Cell Res. 2018;29:115-119.
- D'Aurora M, et al. Modeling Klinefelter syndrome using induced pluripotent stem cells reveals impaired germ cell differentiation. Front Cell Dev Biol. 2020;8:567454.
- Mali P, Chou BK, Yen J, Ye Z, Zou J, et al. Butyrate greatly enhances derivation of human induced pluripotent stem cells by promoting epigenetic remodeling and the expression of pluripotency-associated genes. Stem Cells. 2010;28(4):713-720.
- Guo J, Lee Q, Qiu H, Wei Y, Zhu X, et al. Patient-derived neural organoids reveal developmental impairments associated with a novel GJB1 mutation in X-linked Charcot-Marie-Tooth disease. Neurobiol Dis. 2026;220:107299.
- Nanbo A, Sugden A, Sugden B. The coupling of synthesis and partitioning of EBV's plasmid replicon is revealed in live cells. EMBO J. 2007;26(19):4252-4262.
- Chou BK, Mali P, Huang X, Ye Z, Dowey SN, et al. Efficient human iPS cell derivation by a non-integrating plasmid from blood cells with unique epigenetic and gene expression signatures. Cell Res. 2011;21(3):518-529.
- Okita K, Matsumura Y, Sato Y, Okada A, Morizane A, et al. A more efficient method to generate integration-free human iPS cells. Nat Methods. 2011;8(5):409-412.
- Cheng L, Wang Y, Yang Z, Cao J, Peng F, et al. p53 safeguards chemical reprogramming of human somatic cells toward pluripotency. Cell. 2026. doi:10.1016/j.cell.2026.03.038.
- Akutsu SN, Miyamoto T, Oba D, Tomioka K, Ochiai H, et al. iPSC reprogramming-mediated aneuploidy correction in autosomal trisomy syndromes. PLoS One. 2022;17(3):e0264965.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo