Questo protocollo descrive metodi per generare zebrafish transgenici composti, per l'analisi di immagini di cellule immunitarie associate a tumori in zebrafish larvali e adulti, e per quantificare la frequenza delle cellule immunitarie all'interno del microambiente tumorale.
Articolo metodologico
Imaging e quantificazione delle cellule immunitarie nel microambiente tumorale utilizzando un modello di neuroblastoma in zebrafish
* These authors contributed equally
In questo articolo
Sommario
Abstract
Il reclutamento delle cellule immunitarie nell'ambiente tumorale (TME) rappresenta un componente fondamentale della regolazione immunitaria e della progressione tumorale. Lo studio delle relazioni spaziali e temporali tra cellule immunitarie e cellule tumorali in vivo può fornire informazioni dettagliate sulle interazioni all'interno del TME. Tuttavia, la visualizzazione e la quantificazione di queste interazioni in organismi integri rimangono complesse con approcci convenzionali di imaging e istologici. I pesci zebra costituiscono un modello prezioso per la ricerca oncologica grazie alla loro facilità di manipolazione genetica, allo sviluppo rapido e alla trasparenza ottica nelle fasi iniziali dello sviluppo, che permette la visualizzazione di cellule marcate con fluorescenza in vivo. Qui, presentiamo un protocollo per generare, identificare, visualizzare e quantificare cellule immunitarie e tumorali marcate in modo differenziale con marcatori fluorescenti in un modello di neuroblastoma nel pesce zebra. Il protocollo comprende l’allevamento e il screening di pesci zebra transgenici composti, l’imaging in vivo di larve, la preparazione e l’imaging di adulti portatori di tumore e la quantificazione delle cellule immunitarie circostanti e all’interno delle regioni tumorali. Utilizzando linee trasgeniche reporter, CD4+ cellule immunitarie e MYCN- le cellule di neuroblastoma possono essere visualizzate e analizzate a diverse fasi di sviluppo. Il flusso di lavoro consente la valutazione della localizzazione delle cellule immunitarie rispetto ai tumori sia nei pesci larvali che adulti e può essere utilizzato per confrontare l'abbondanza delle cellule immunitarie attraverso le diverse fasi della malattia. Questo protocollo fornisce un approccio riproducibile per l'acquisizione di immagini e la quantificazione delle cellule immunitarie all'interno dell'ambiente tumorale (TME) in vivo utilizzando il pesce zebra e potrebbe facilitare studi sulle interazioni tra sistema immunitario e tumore in altri modelli di cancro.
Introduzione
L'ambiente microambientale del tumore (TME) è un ecosistema composto da cellule tumorali, immunitarie, fibroblasti e vascolari1. Il TME svolge un ruolo essenziale nella progressione del cancro, nella risposta terapeutica e nell'immunità antitumorale. All'interno del TME, le cellule immunitarie sono regolatori chiave del destino del tumore, partecipando sia alle risposte antitumorali sia all'induzione di immunosoppressione2. Comprendere il reclutamento, la distribuzione e la funzione delle cellule immunitarie all'interno del TME è fondamentale per chiarire i meccanismi attraverso cui i tumori eludono il controllo immunitario. Tuttavia, gli approcci convenzionali allo studio del TME, come l'istologia endpoint, la citometria a flusso e il sequenziamento a singola cellula, forniscono soltanto istantanee statiche e spesso richiedono la distruzione della struttura del tessuto, con conseguente perdita di informazioni spaziali e interazioni tra cellule3,4,5,6,7. Inoltre, questi metodi presentano limitazioni nella capacità di visualizzare e quantificare le cellule immunitarie all'interno del TME, specialmente nelle fasi iniziali dello sviluppo del tumore.
Il pesce zebra (Danio rerio) è un modello potente per la ricerca sul cancro grazie al basso costo, allo sviluppo rapido, alla trasparenza relativa e all'elevata conservazione genetica8,9. Questi vantaggi forniscono un sistema sperimentale riproducibile e scalabile che permette ampie dimensioni campionarie e un efficace screening microscopico in un breve lasso di tempo10. In particolare, il pesce zebra condivide una significativa conservazione immunologica con l'uomo, inclusi componenti chiave sia del sistema immunitario innato che adattativo, rendendo i risultati pertinenti alle malattie umane11. Queste caratteristiche sono particolarmente utili per lo studio dei tumori pediatrici come il neuroblastoma8. Di conseguenza, sono state sviluppate numerose linee di pesce zebra con reporter immunitari e modelli di cancro11. Pertanto, il pesce zebra rappresenta un modello in vivo prezioso per lo studio delle interazioni tra cellule tumorali e immunitarie, offrendo spunti su come la regolazione immunitaria influenzi lo sviluppo del tumore, specialmente nelle fasi iniziali.
Studi precedenti che indagano il microambiente tumorale (TME) nel pesce zebra si sono basati ampiamente su modelli di xenotrapianto tumorale combinati con imaging a tempo finale per valutare la localizzazione delle cellule immunitarie all'interno dei tumori12,13,14,15,16,17. Sebbene questi metodi forniscano informazioni utili, sono limitati dall'utilizzo di immagini bidimensionali, che non riescono a rappresentare completamente l'organizzazione tridimensionale del TME e le relazioni spaziali tra cellule tumorali e immunitarie durante lo sviluppo14. Inoltre, i modelli di xenotrapianto tumorale implicano il trapianto artificiale di cellule tumorali umane e potrebbero non riprodurre fedelmente l'insorgenza naturale del tumore18. Questi modelli sono inoltre generalmente a breve termine e non riescono a catturare appieno il progresso tumorale o i cambiamenti nelle relazioni spaziali tra cellule tumorali e immunitarie durante lo sviluppo14,19. Inoltre, questo approccio fornisce una rappresentazione limitata dell'organizzazione spaziale, del contesto dello sviluppo e della rilevanza fisiologica del comportamento delle cellule immunitarie all'interno del TME. Recentemente, noi e altri ricercatori abbiamo utilizzato pesci zebra transgenici composti, nei quali le cellule tumorali e quelle immunitarie sono etichettate in modo differenziale con marcatori fluorescenti, per visualizzare le cellule immunitarie associate ai tumori20,21. Questi pesci transgenici composti permettono lo studio del TME durante tutto lo sviluppo dell'animale e del tumore, facilitando l'analisi delle interazioni tra sistema immunitario e tumore in vivo.
In questo studio, presentiamo un metodo che utilizza la microscopia confocale per analizzare le cellule immunitarie all'interno dell'ambiente tumorale (TME) di un modello di neuroblastoma nel pesce zebra. In questo approccio, abbiamo utilizzato linee di pesce zebra reporter che marcano le cellule immunitarie e una linea di pesce zebra geneticamente modificata che sovraesprime l'oncogene umano MYCN sotto il controllo del promotore della dopamina-β-idrossilasi (dβh), inducendo lo sviluppo di un neuroblastoma simile alla malattia umana20. In questo modello transgenico composto, le cellule tumorali e le cellule immunitarie sono marcate in modo differenziale con EGFP e mCherry, rispettivamente. Il promotore dβh è attivo nelle cellule della linea simpato-surrenale ed è stato utilizzato in diversi modelli di pesce zebra per lo studio del neuroblastoma22,23,24,25. Inoltre, abbiamo utilizzato un promotore di Cd4 che esprime la fluorescenza di mCherry per visualizzare le cellule CD4+15. L'acquisizione di immagini confocali con stack in Z è stata impiegata per visualizzare l'TME in tre dimensioni in diverse fasi dello sviluppo tumorale, consentendo di valutare le relazioni spaziali tra cellule tumorali e cellule immunitarie all'interno di tessuti intatti. Questo metodo permette di analizzare l'organizzazione delle cellule immunitarie rispetto alle cellule tumorali durante le diverse fasi dello sviluppo del tumore.
Protocollo
All animal procedures were approved by the Institutional Animal Care and Use Committee (IACUC) at Boston University Chobanian & Avedisian School of Medicine under protocol PROTO202100001. The overall workflow for generation of compound transgenic zebrafish, larval imaging, adult tissue preparation, and image analysis is summarized in Figure 1.
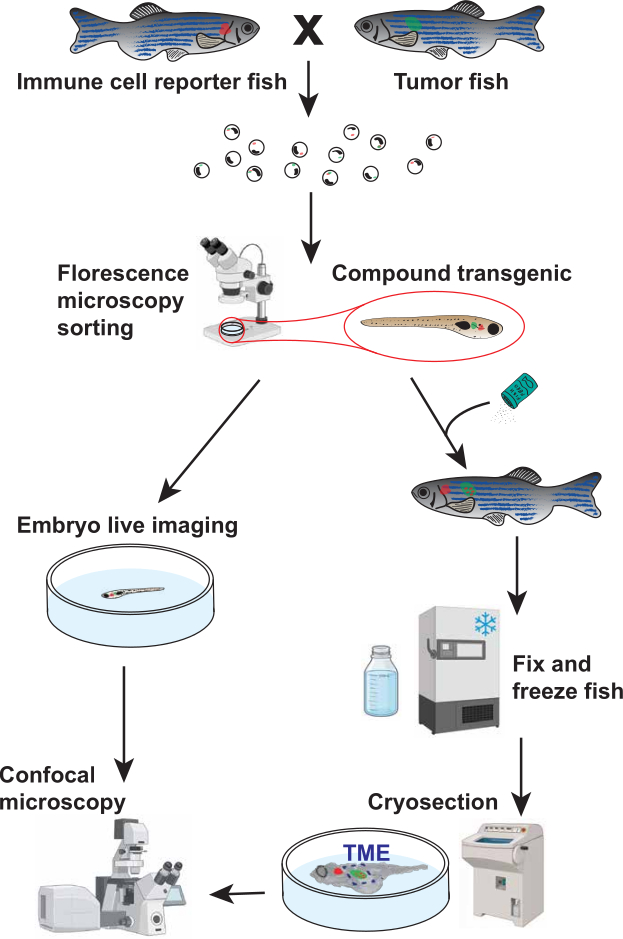
Figure 1. Workflow for visualization and quantification of immune cells within the zebrafish tumor microenvironment (TME). Schematic overview of the experimental workflow. Immune-reporter zebrafish were crossed with tumor-prone zebrafish to generate compound transgenic offspring expressing fluorescent markers in both immune cells (red) and tumor cells (green). Embryos were screened by fluorescence microscopy to identify compound transgenic fish. Selected fish were either subjected to live confocal imaging during larval development (<21 days post-fertilization [dpf]) or processed by fixation, cryosectioning, and confocal imaging for fish older than 21 dpf. This workflow enables visualization and quantification of immune cells associated with the TME across multiple developmental stages. Part of the illustration was created using BioRender. Please click here to view a larger version of this figure.
1. Generation of Compound Transgenic Zebrafish Lines Through Breeding
- Select adult immune-reporter fish and tumor fish that are at least 3 months old for natural breeding.
NOTE: For the representative results, Tg(cd4-1:mCherry) heterozygous fish were crossed with Tg(dβh:MYCN; dβh:EGFP) heterozygous fish to differentially label immune cells and tumor cells15,23. - On the evening before breeding, fill a two-chamber mating tank two-thirds full with fish water.
- Place a grated top insert into the mating chamber. Use dividers to separate one male from one or two females.
- Leave the dividers in place overnight. Add artificial plants or other enrichment items to simulate natural breeding conditions.
NOTE: A 1:2 male-to-female ratio increases the likelihood of successful spawning when breeding tumor male fish with immune-reporter fish. Do not breed two males with one female, as competition between males may occur. - On the following morning, remove the dividers after the facility lights turn on.
- Tilt the grated top chamber slightly using the divider as a wedge to create a shallow water area. Allow the fish to spawn for at least 1 h.
- Collect eggs from the bottom of the mating chamber by pouring the water through a fine-mesh net.
- Transfer the eggs to a sterile Petri dish containing fish water at a density no greater than 1 egg per 50 mm2 (approximately 200 eggs per 100 mm dish).
- Remove dead and unfertilized eggs.
NOTE: Healthy fertilized eggs are translucent and round. Remove cloudy, white, unfertilized, or deformed eggs. - Double-check the fish to avoid mixing sexes or cross-contaminating transgenic tanks.
- Return the males and females to their respective tanks.
- Place the embryos in a 28.5°C incubator overnight. Do not exceed the embryo density specified in Step 1.8.
- Bleach the embryos on the following morning to remove contaminants.
- Prepare a working bleach solution consisting of 100 µL bleach in 200 mL system water. Prepare a neutralization solution consisting of 0.5 g sodium thiosulfate in 150–200 mL system water.
- Sort and transfer viable embryos into a mesh-net well insert. Submerge the insert in the bleach solution for 5 min.
- Transfer the insert directly into the sodium thiosulfate solution. Incubate for 2 min to neutralize residual bleach.
- Rinse the embryos in a final bath of fresh system water. Use a squirt bottle to gently transfer the embryos into clean petri dishes containing fresh system water.
- Return the embryos to the incubator after bleaching.
- Transfer larvae at 5–7 days post-fertilization (dpf) or later to a larger tank containing 5 ppt rotifer water for rearing.
- Prepare 5 ppt rotifer water by mixing 1 part stock rotifer water (15 ppt) with 2 parts zebrafish system water.
- Verify that the final salinity is 5 ppt using a conductivity meter before transferring the larvae.
NOTE: Sorting EGFP+ MYCN larvae at 3–5 dpf facilitates identification of tumor-prone fish before rearing. Sorting MYCN embryos at this stage avoids false-negative identification because EGFP expression in neural crest cells may decrease later in development due to MYCN-induced apoptosis.
2. Screening Zebrafish for Fluorescent Markers
- Prepare a 0.4% (w/v) tricaine stock solution using system water.
- Transfer the fish to a clean petri dish containing only enough system water to cover the bottom.
- Add the tricaine stock solution to achieve a final concentration of approximately 0.005% (50 mg/L) for fish younger than 14 dpf or 0.012% (120 mg/L) for fish older than 14 dpf. Confirm adequate anesthesia by observing little to no voluntary movement.
- Remove excess water from the dish once the fish are anesthetized and no longer capable of swimming while maintaining visible opercular or cardiac movement.
- Screen the fish for fluorescence. Identify green or red fluorescence in the expected region (e.g., the interrenal gland region in MYCN fish).
- Separate the fish into groups using a stiff-bristled sorting tool.
NOTE: Sort tumor-prone fish as early as possible because MYCN-induced apoptosis during later developmental stages may result in false-negative identification. Sort immune-reporter fish immediately before imaging at the larval stage or between 2 and 4 months of age for adult studies. This approach minimizes handling-associated stress and maximizes survival. - Transfer positive and negative fish to separate tanks containing system water for continued rearing.
NOTE: Step 3 describes handling and imaging of larvae younger than 21 dpf. Steps 4–6 describe fixation, tissue preparation, imaging, and image analysis of older fish.
3. Larval Live-Mounting and Imaging
- Place sorted larvae in a 100 mm petri dish containing tricaine fish water (see Step 2.3 for age-appropriate concentrations).
- Transfer the sedated larvae to a glass-bottom imaging dish.
- Use only enough solution to cover the larva and maintain sedation.
- Prepare 1%–1.5% low-melting agarose in fish water. Heat the agarose solution until fully dissolved.
- Allow the agarose to cool for 1–2 min. Maintain the agarose at 30°C using a heat block to prevent solidification prior to mounting.
- Position each larva laterally in the imaging dish.
- Apply approximately 30–200 µL of agarose over the larva to immobilize it. Use larger volumes for larger larvae and smaller volumes for smaller larvae.
- Once the agarose has solidified, add approximately 100 µL of 0.005% tricaine solution over the agarose.
- Image the larvae using a confocal microscope.
- Use a standard laser-scanning confocal microscope with a resonant scanner. Use a 40× objective with a numerical aperture greater than 1.10.
- Set the pinhole to 1.0 Airy unit (AU) for all imaging channels.
- Use a 488 nm laser for EGFP excitation and a 594 nm laser for mCherry excitation. Keep laser output below 25 mW to minimize photobleaching and phototoxicity. Adjust detector gain and laser power using a range indicator lookup table (LUT) to avoid pixel saturation and black clipping. Do not exceed a detector gain of 800 V because higher voltages introduce excessive noise.
- Use a voxel size of 0.42 × 0.42 × 6.0 µm (x, y, z) at a resolution of 1024 × 1024 pixels and a Z-step interval of 6.0 µm. Acquire optical sections continuously through the full volume of interest, typically spanning 90–120 µm in total imaging depth. Use highly sensitive photodetectors operating in 16-bit acquisition mode.
- Acquire images using unidirectional line scanning at a resonant scan frequency of 33.3 kHz (approximately 1.58 µs pixel dwell time). Use 2× or 4× averaging to reduce motion artifacts while limiting laser exposure.
NOTE: Optimize tricaine exposure to maintain larval survival during imaging. After imaging, add fish water until the imaging dish is approximately half full.
- Add fresh fish water to the imaging dish immediately after imaging.
- Gently remove the larva from the agarose using a stiff-bristled stick and transfer the larva to a dish containing clean fish water for recovery.
- Return the fish to its original tank once normal swimming behavior resumes.
NOTE: For fish older than 21 dpf, the skin overlying the tumor must be removed by cryosectioning to enable high-resolution confocal imaging.
4. Fish Fixation and Cryosectioning
- Euthanize fish in accordance with approved institutional animal care guidelines.
- Make a ventral incision extending from the anal pore to the pectoral girdle to expose the abdominal cavity and facilitate fixative penetration into internal tissues.
- Transfer the fish using forceps into a 1.5 mL tube containing 4% paraformaldehyde (PFA) in phosphate-buffered saline (PBS) or a volume of fixative at least 10-fold greater than the tissue volume.
NOTE: Avoid handling the region containing the tumor to preserve tissue integrity. - Place the samples on a nutating rocker set to gentle continuous agitation (30 rpm) and incubate overnight for at least 12 h at 4°C.
CAUTION: PFA is hazardous, toxic, and potentially carcinogenic. Wear appropriate personal protective equipment, including gloves and eye protection. Perform all procedures involving PFA in a fume hood and avoid inhalation of vapors. - Remove the PFA and wash the samples at least four times with 1.5 mL of 1× PBS. Gently invert the tube two to three times during each wash.
- Transfer the fish to 30% sucrose prepared in PBS.
- Incubate the fish in a cold room overnight until the specimen sinks to the bottom of an upright tube (approximately 12 h), indicating adequate sucrose penetration.
- Remove excess sucrose solution by gently blotting the fish on a laboratory tissue.
- Transfer the fish to storage tubes.
- Store the samples at −80°C until imaging.
NOTE: Process samples within 3 months to minimize fluorescent protein degradation and signal loss. - Transport the fixed fish to the cryostat room on dry ice.
- Place the fish flat in a plastic mold with one sagittal side facing downward.
- Add Optimal Cutting Temperature (OCT) compound until the fish is fully covered.
- Freeze the mold at −20°C or in the cryostat until the OCT turns white.
NOTE: Position the fish as flat as possible before freezing to facilitate consistent sectioning. - Cryosection the zebrafish in the sagittal plane to remove the skin for subsequent whole-mount imaging.
- Cool the cryostat chuck.
- Apply room-temperature OCT to the chuck.
- Press the OCT fish block firmly into the OCT layer.
- Freeze the chuck and block until the newly applied OCT turns white.
- Mount the chuck in the cryostat.
- Cryosection the block at a thickness of 14 µm until the blade reaches the specimen.
NOTE: Specimen shifting may occur during freezing, causing the fish to sit higher in the block than expected. Entry into the specimen is indicated by the appearance of translucent tissue replacing the opaque OCT background. - Reduce the section thickness to 7 µm.
- Continue sectioning for one additional cut.
NOTE: This procedure removes the skin while preserving a uniform sagittal profile across the specimen. - Confirm the endpoint by identifying skin in the collected sections.
NOTE: Skin appearance in sections provides a more reliable indicator than eye morphology. Perform this procedure only when the skin obscures imaging of the tumor microenvironment.
- Warm the chuck gently with your hands.
- Remove the OCT block from the chuck using forceps. Avoid disturbing the cut surface of the specimen.
- Trim excess OCT surrounding the fish while the OCT remains frozen.
- Remove the fish from the OCT block using forceps once the OCT softens to a viscous consistency.
5. Mounting and Imaging of Fish with Skin Removed
- Place the fish in a glass-bottom dish with the sectioned sagittal side facing the glass surface.
NOTE: Maintain the orientation of the fish during handling. Identifying the sectioned side may become difficult after the fish is removed from the OCT block. - Prepare 1%–1.5% low-melting agarose.
- Apply approximately 30–50 µL of agarose to the dorsal and ventral sides of the fish to secure the sample.
NOTE: Avoid placing agarose beneath the fish because it can reduce image quality. Use only the minimum amount of agarose required for stabilization. - Keep the sample on ice during transport. Image the sample within 2 h of mounting.
- Transport the sample to the confocal microscopy facility.
- Image the sample using confocal microscopy.
- Use a standard laser-scanning confocal microscope with a resonant scanner. A two-photon microscope may be used when autofluorescence limits image quality. Use a corrected 20× objective lens with a numerical aperture of at least 0.80.
- Set the pinhole to 1.0 Airy unit (AU) for all imaging channels.
- Use a 488 nm laser for EGFP excitation and a 594 nm laser for mCherry excitation. Keep laser output below 25 mW. Adjust detector gain and laser power using a range indicator lookup table (LUT) to avoid pixel saturation and black clipping. Do not exceed a detector gain of 800 V because higher voltages introduce excessive noise.
- Configure image acquisition parameters as follows.
- Use a voxel size of 0.42 × 0.42 × 6.0 µm (x, y, z) at a resolution of 1024 × 1024 pixels and a Z-step interval of 6.0 µm.
- Acquire spectral image stacks through the full volume of interest, typically spanning a total Z-stack acquisition range of 90–120 µm (15–20 optical sections).
- Initiate image acquisition in the fluid space immediately above the tissue surface and continue through the full target imaging depth to ensure complete coverage of the specimen.
- Acquire images using highly sensitive photodetectors operating in 16-bit acquisition mode.
- Acquire images using unidirectional line scanning at a resonant scan frequency of 33.3 kHz (approximately 1.58 µs pixel dwell time) with 8× line averaging.
6. Image Analysis and Quantification
- Image visualization using Fiji (version 1.54p).
- Open the confocal z-stack images.
- Merge colors to see channel overlay by selecting Image > Color > Merge Channels.
- Generate a projection of the full z-range containing the imaging region by selecting Image > Stacks > Z Project. Enter the slice range of interest, as well as Max Intensity projection type. This will display the 2D projection of the image.
NOTE: For larval fish, it is feasible to capture the whole TME by confocal microscopy. Therefore, we recommend the volumetric normalization and quantification method for the TME analysis. For older fish, it is impossible to capture the whole TME by confocal microscopy; therefore, we recommend applying the area-based normalization and quantification method. Based on our analysis and quantification of the larval fish, both methods can provide reliable biological results.
- Volumetric normalization and quantification of the TME in the larval fish.
- Quantifying tumor volume using MATLAB R2022b (download the package from the Matlab website) and Bio-Formats package (download from the openmicroscopy website).
- The user runs a script that performs the following tasks:
- Prompt the user to select a .CZI file from their computer.
- Read the image and extract the data from the channel containing the tumor region.
- Identify the region for each slice that is the tumor region through a threshold of fluorescence (can be through user input or machine learning), keeping the same threshold for all analyzed images for consistency.
- Outline the tumor region and display the image with the tumor region outlined in a collage of all slices for user verification.
- Calculate the area of the tumor region per slice in pixels and convert to mm2 using the scale of the image and imaging settings.
- Multiply the area of the tumor region by the depth (stored in the file’s metadata) to get the volume of each slice.
- Sum the calculated values of each slice to obtain the total volume of the imaged tumor and its surrounding region in voxels or mm3.
- Scale both volume measurements by multiplying by 104 for tumor volume and 106 for the surrounding region. This will create a more reasonable cell number:volume ratio during normalization.
- Quantifying cell number.
- Open the confocal z-stack images.
- Merge colors to see channel overlay by selecting Image > Color > Merge Channels.
- Generate a 3D view of the full z-range containing the imaging region by selecting Image > Stacks > 3D Project. Select Brightest Point as the projection method and other settings to the desired values.
- Due to the small number of cells, manually count and tabulate the cells, separating cells located within the tumor boundary from those located outside the tumor boundary.
NOTE: Cells on the boundary of the tumor region are counted as being outside.
- Normalization.
- For infiltrating cells inside the tumor region, divide the number of cells by the scaled tumor volume. For the cells outside the tumor region, divide the number of cells outside the tumor volume by the scaled volume of the full image minus the tumor volume.
- Generate a table that includes the following headings: “fish identification”, “tumor volume”, “# of cells inside tumor region”, “# of cells outside tumor region”, “normalized cells inside”, “normalized cells outside”.
- Area-based normalization and quantification of the TME.
- Define the tumor region of interest (ROI) using the Rectangle or Freehand selection tool to outline the tumor.
- Add the ROI to the ROI Manager by pressing T or by selecting Analyze > Tools > ROI Manager > Add.
- Measure the ROI area using Analyze > Measure.
- Confirm that Area is selected under Set Measurements before recording measurements.
- Save the ROI in the ROI Manager.
- Apply the same ROI to all images using ROI Manager > More > Multi-Measure.
- Do not resize the ROI between images.
- Manually count cells within the ROI. If cells are more, count cells using the Cell Counter plugin by selecting Plugins > Analyze > Cell Counter.
- Mark each counted cell by left-clicking when its centroid falls within the ROI.
- Scroll through the z-stack to verify cell identity.
- Avoid counting the same cell more than once across multiple image planes.
- Count infiltrating cells separately if they contact or lie within the tumor boundary.
- Record infiltrating cells as a distinct category even when the cell centroid falls outside the ROI.
- Convert the ROI area from pixels to mm2.
- Obtain the pixel width, pixel height, and Z-step interval from Image > Properties.
- Calculation of normalized cell counts.
- Divide the raw cell count for each fish by the corresponding ROI area value.
- Record the resulting value as the normalized cell count.
- For absolute density measurements, calculate the physical area using the image calibration values obtained from Image > Properties.
- Divide the raw cell count by the calculated area (mm2).
- Record the result as cell density expressed as cells/mm2.
Risultati
Il flusso di lavoro sperimentale complessivo è mostrato nella Figura 1. Zebrafish adulti Tg(cd4-1:mCherry) sono stati incrociati con zebrafish Tg(dβh:MYCN;dβh:EGFP) per generare prole transgenica doppia in cui le cellule CD4+ e le cellule esprimenti dβh sono state etichettate in modo differenziale mediante fluorescenza mCherry ed EGFP, rispettivamente. Gli embrioni sono stati selezionati in base ai marcatori fluorescenti appropriati e successivamente analizzati mediante imaging confocale in vivo durante lo sviluppo larvale oppure mediante imaging confocale dopo fissazione e sezione criostatica in pesci più adulti (Figura 1).
Per valutare l'associazione delle cellule CD4+ con lesioni premaligne di neuroblastoma durante lo sviluppo larvale, pesci transgenici composti sono stati analizzati mediante imaging a 7 e 14 giorni dopo la fecondazione (dpf). I punti temporali sono stati scelti in base alle fasi dello sviluppo dei linfociti nel pesce zebra26,27. Immagini rappresentative ottenute mediante microscopia confocale sono mostrate in Figura 2A. A 7 dpf, le cellule CD4+ sono state osservate raramente all'interno o intorno alla regione esprimente dβh sia nei pesci di controllo che in quelli esprimenti MYCN (Figura 2A; Video Supplementari 1 e 2). A 14 dpf, i pesci esprimenti MYCN hanno mostrato un numero maggiore di cellule CD4+ associate al tumore premaligno derivato dalla cresta neurale, rispetto alla regione dei progenitori simpato-surrenalici derivati dalla cresta neurale nei pesci di controllo (Figura 2A; Video Supplementari 3 e 4).
Per tenere conto delle differenze nella dimensione del tumore e della capacità della microscopia confocale di acquisire l'intero tumore nei pesci larvali, abbiamo confrontato metodi di normalizzazione basati sul volume e sull'area. In modo significativo, i metodi di normalizzazione basati sul volume e sull'area hanno prodotto risultati comparabili nei pesci larvali, supportando l'utilizzo della normalizzazione basata sull'area per i tumori adulti quando il volume completo del tumore non può essere acquisito mediante microscopia confocale. La quantificazione ha mostrato nessuna differenza significativa nel numero di cellule CD4+ circostanti tra i gruppi in entrambi i tempi sperimentali (Figura 2B, in basso; n = 4 e 6 a 7 dpf e n = 4 e 5 a 14 dpf per i gruppi controllo e MYCN, rispettivamente). Al contrario, i pesci esprimenti MYCN hanno mostrato un'infiltrazione significativamente maggiore di cellule CD4+ all'interno della regione analizzata a 14 dpf rispetto ai pesci di controllo (Figura 2B, in alto; P < 0,05; n = 4 e 5 per i gruppi controllo e MYCN, rispettivamente). I dati sono presentati come conteggi cellulari normalizzati rispetto al volume tumorale (cellule/mm3) ed espressi come media ± SEM.
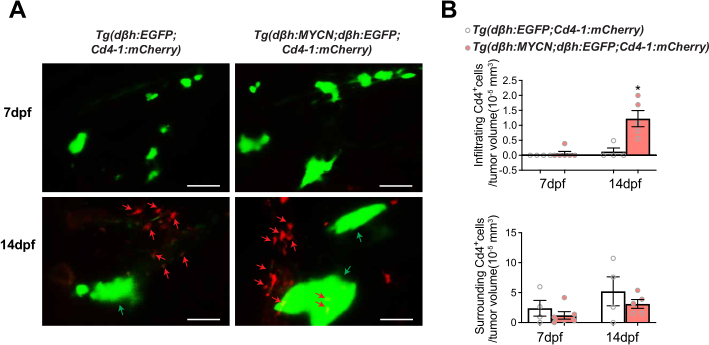
Figura 2. Maggiore associazione di cellule CD4+ con lesioni di neuroblastoma che esprimono MYCN a 14 giorni dalla fecondazione. (AImmagini confocali rappresentative di Tg(dβh:EGFP;Cd4-1:mCherry pesce di controllo e Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry pesce a 7 e 14 giorni dopo la fecondazione (dpf). Le cellule positive per EGFP (verdi) indicano dβh-cellule derivate dalla cresta neurale/neuroblastoma che esprimono CD4+ le cellule sono marcate con mCherry (rosso). Le frecce indicano esempi di CD4+ cellule associate alla regione della cresta neurale/tumore. Barre della scala = 50 µm. (B) Quantificazione di CD4+ cellule circostanti (in basso) e infiltranti (in alto) la regione della cresta neurale/tumorale nei pesci controllo e in quelli esprimenti MYCN a 7 e 14 dpf. Il numero di cellule è stato normalizzato rispetto al volume tumorale (cellule/mm3). I dati sono presentati come media ± SEM. Confronti statistici sono stati effettuati utilizzando un test t a due code non appaiato t-test. P < 0,05. n = 4 e 6 a 7 dpf e n = 4 e 5 a 14 dpf rispettivamente per i gruppi controllo e MYCN. Dati rappresentativi di tre esperimenti indipendenti. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Per esaminare l'associazione delle cellule CD4+ con tumori già stabiliti, pesci transgenici composti selezionati sono stati allevati fino all'età adulta e analizzati dopo fissazione, criosezionamento e imaging confocale (Figura 1). In Figura 3A sono mostrate immagini rappresentative di neuroblastoma localizzato e metastatico provenienti da pesci di 4 mesi. I tumori sono stati classificati come metastatici quando cellule tumorali positive per EGFP sono state rilevate al di fuori dei gangli simpatici periferici. È stato applicato un metodo di quantificazione basato sull'area poiché la microscopia confocale non riesce a catturare l'intero volume tumorale. L'analisi ha rivelato un numero significativamente maggiore di cellule CD4+ che circondano o infiltrano i tumori metastatici rispetto ai tumori localizzati (Figura 3B; P < 0,05; n = 4 per gruppo). I dati sono presentati come conteggi di cellule normalizzati per area tumorale (cellule/mm2) ed espressi come media ± SEM.
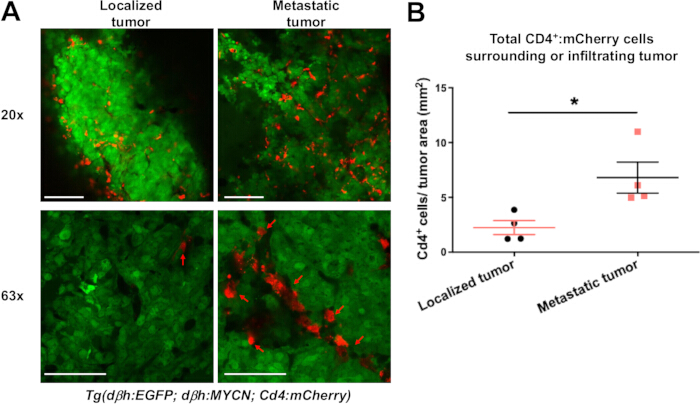
Figura 3. Il neuroblastoma metastatico presenta un aumento di CD4+ infiltrazione cellulare all'interno del microambiente tumorale (AImmagini confocali rappresentative di neuroblastoma localizzato e metastatico sviluppatosi in fratelli di 4 mesi Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry zebrafish. Le cellule tumorali sono marcate con EGFP (verde) e CD4+ le cellule sono marcate con mCherry (rosso). Le frecce indicano rappresentanti CD4+ cellule associate al tessuto tumorale. Immagini acquisite utilizzando 20× e 63× gli obiettivi sono mostrati come campi di vista indipendenti. Barre della scala = 100 µm (20×) e 50 µm (63×). (BQuantificazione di CD4 totale+ cellule che circondano o infiltrano tumori localizzati e metastatici. Il numero di cellule è stato normalizzato rispetto alle dimensioni del tumore come descritto nel protocollo. I dati sono presentati come media ± SEM. I confronti statistici sono stati eseguiti utilizzando test a due code non appaiati t-test. P < 0,05. n = 4 per gruppo. Dati rappresentativi di tre esperimenti indipendenti. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Questi risultati dimostrano che il protocollo può essere utilizzato per visualizzare e quantificare le cellule CD4+ associate a lesioni di neuroblastoma in diverse fasi dello sviluppo tumorale nel pesce zebra.
Video supplementare 1. Z-stack confocale rappresentativo di un pesce zebra di controllo a 7 giorni dalla fecondazione. Acquisizione confocale tridimensionale di un pesce zebra di controllo Tg(dβh:EGFP;Cd4-1:mCherry) a 7 giorni dalla fecondazione (dpf). Le cellule derivate dalla cresta neurale positive per EGFP sono mostrate in verde, mentre le cellule CD4+ sono mostrate in rosso. A questo stadio dello sviluppo, si osservano poche cellule CD4+ all'interno o in prossimità della regione che esprime dβh. Cliccare qui per scaricare il file.
Video supplementare 2. Z-stack confocale rappresentativo di un pesce zebra esprimente MYCN a 7 giorni dalla fecondazione. Acquisizione confocale tridimensionale di un pesce zebra Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) a 7 giorni dalla fecondazione (dpf). Le cellule premalignanti di neuroblastoma esprimenti MYCN positive per EGFP sono mostrate in verde, mentre le cellule CD4+ sono mostrate in rosso. Come nei pesci di controllo, a questo stadio precoce di sviluppo si osservano poche cellule CD4+ all'interno o intorno alla regione tumorale. Cliccare qui per scaricare il file.
Video supplementare 3. Z-stack confocale rappresentativo di un esemplare controllo di pesce zebra a 14 giorni dalla fecondazione. Acquisizione confocale tridimensionale di un pesce zebra controllo Tg(dβh:EGFP;Cd4-1:mCherry) a 14 giorni dalla fecondazione (dpf). Le cellule derivate dalla cresta neurale positive per EGFP sono mostrate in verde, mentre le cellule CD4+ sono mostrate in rosso. Le cellule CD4+ sono distribuite raramente e mostrano un'associazione limitata con la regione esprimente dβh. Cliccare qui per scaricare il file.
Video supplementare 4. Z-stack confocale rappresentativo di un pesce zebra esprimente MYCN a 14 giorni dalla fecondazione. Imaging confocale tridimensionale di un pesce zebra Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) a 14 giorni dalla fecondazione (dpf). Le cellule pre-maligne di neuroblastoma esprimenti MYCN positive per EGFP sono mostrate in verde, mentre le cellule CD4+ sono mostrate in rosso. Si osserva un accumulo e una infiltrazione aumentata delle cellule CD4+ in corrispondenza della regione tumorale ingrandita, rispetto ai pesci controllo di pari età, in accordo con la quantificazione mostrata nella Figura 2B. Cliccare qui per scaricare il file.
Discussione
Il protocollo descritto in questo articolo utilizza il pesce zebra come modello in vivo per visualizzare e quantificare le cellule immunitarie all'interno del microambiente tumorale (TME). Diversi fattori sono fondamentali per l'attuazione corretta di questo approccio. In primo luogo, è essenziale una selezione e una validazione adeguate di linee di pesci zebra transgenici composti. I larvi devono essere sottoposti a screening per verificare i pattern attesi di espressione fluorescente e, se necessario, confermati mediante genotipizzazione. L'espressione del reporter immunitario e dell'oncogene deve essere verificata prima dell'esperimento per garantire un'assegnazione accurata dei gruppi sperimentali e di controllo. In secondo luogo, un'identificazione precisa della regione di interesse è fondamentale durante l'acquisizione di immagini confocali. L'immagine in campo chiaro può essere utilizzata per identificare punti di riferimento anatomici e facilitare la localizzazione del tessuto bersaglio. Ad esempio, quando si acquisiscono immagini di tumori nella regione anteriore del corpo, l'occhio può essere usato come punto di riferimento per agevolare la localizzazione. In terzo luogo, un posizionamento corretto del pesce è essenziale per garantire un'adeguata esposizione della regione da immagineggiare. Un allineamento improprio può ridurre la qualità dell'immagine o oscurare il tessuto di interesse. Infine, un montaggio e un'immobilizzazione adeguati sono necessari per minimizzare gli artefatti dovuti al movimento durante l'acquisizione in tempo reale. La concentrazione di tricaina e la durata dell'acquisizione devono essere ottimizzate per mantenere la vitalità dei larvi preservando al contempo la qualità delle immagini.
La fototossicità può essere ridotta al minimo diminuendo l'intensità del laser e il tempo di esposizione durante l'acquisizione di immagini in tempo reale. Per i campioni adulti, i tessuti devono essere mantenuti sul ghiaccio durante la manipolazione e la preparazione per l'acquisizione, poiché scongelamenti ripetuti potrebbero alterare l'integrità del tessuto. Una manipolazione accurata del campione è particolarmente importante dopo la criosezionatura e la rimozione dal blocco di OCT.
L'interpretazione dei risultati ottenuti mediante imaging richiede una valutazione della specificità del reporter. Diverse linee di reporter immunitari etichettano più popolazioni di cellule immunitarie. Ad esempio, l'espressione di CD4 è stata riportata in popolazioni cellulari oltre ai linfociti T convenzionali, inclusi i macrofagi28. Inoltre, oltre ai macrofagi, l'espressione di mpeg è stata riscontrata anche nelle cellule B29. Lysc può etichettare sia neutrofili che macrofagi30. Di conseguenza, l'espressione del reporter fluorescente da sola potrebbe non essere sufficiente per assegnare in modo definitivo l'identità cellulare. Approcci aggiuntivi di validazione, come RNAscope, citometria a flusso, reazione a catena della polimerasi quantitativa con trascrizione inversa o sequenziamento dell'RNA a singola cellula, possono integrare le osservazioni basate sull'imaging e fornire una caratterizzazione molecolare più approfondita delle popolazioni cellulari marcate.
Questo metodo presenta diversi limiti. L'approccio si basa sull'espressione di un reporter fluorescente e quindi non può confermare in modo indipendente l'identità o lo stato funzionale delle cellule immunitarie. Inoltre, l'analisi delle immagini nel flusso di lavoro attuale per i pesci adulti si basa su dataset confocali proiettati con un numero limitato di strati e potrebbe non rappresentare pienamente le complesse relazioni cellulari tridimensionali all'interno del microambiente tumorale (TME). Infine, il metodo richiede anche la generazione e la manutenzione di linee di zebrafish transgenici composti, il che potrebbe limitare l'accessibilità per alcuni laboratori.
Nonostante questi limiti, il protocollo fornisce un approccio pratico per visualizzare le cellule immunitarie associate alle lesioni di neuroblastoma nel pesce zebra. Rispetto all'istologia tradizionale a punto terminale, il metodo preserva l'architettura tissutale e consente l'acquisizione di immagini di cellule marcate con fluorescenza all'interno di tessuti integri20,21. Il flusso di lavoro può essere applicato in diverse fasi dello sviluppo ed è adattabile ad ulteriori linee di reporter fluorescenti. Oltre al neuroblastoma, numerosi studi hanno analizzato il microambiente tumorale (TME) per osservare l'interazione tra melanoma e cellule immunitarie, inclusi linfociti CD4+, macrofagi e linfociti CD8+15,21,31,32. Nel complesso, queste caratteristiche rendono il protocollo una piattaforma utile per lo studio della localizzazione delle cellule immunitarie all'interno del microambiente tumorale del pesce zebra.
Dichiarazioni
Gli autori dichiarano di non avere interessi concorrenti.
Ringraziamenti
Ringraziamo per il sostegno fornito dagli Istituti Nazionali di Sanità (NIH; 1UL1TR001430, CA215059 e NS140967), dalla American Cancer Society (RSG-17-204-01-TBG), dalla National Science Foundation (1911253) e dalla Alex’s Lemonade Stand Foundation a H.F.; e da una Warren Alpert Distinguished Scholars Fellowship a X.Q. Y.W. ha ricevuto sostegno dal Boston University Undergraduate Research Opportunities Program (UROP) e dal programma della borsa estiva St. Baldrick’s. M.V. è stato sostenuto dal programma della borsa estiva St. Baldrick’s. Il contenuto di questo articolo è esclusiva responsabilità degli autori e non rappresenta necessariamente le opinioni ufficiali del NIH.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 200 µL Gel Loading Tip | MilliporeSigma | 1022-0600 | Utilizzato per la manipolazione delle larve |
| Piante Artificiali | The Hidden Reef | 62874200000000000 | Arricchimento riproduttivo opzionale |
| Ammoniaca Clorata | Fisher Scientific | 50371500 | Utilizzata per la decontaminazione degli embrioni |
| Plugin Contatore Cellule | National Institutes of Health (NIH) | N/A | Plugin Fiji utilizzato per la quantificazione cellulare |
| Computer e Monitor | HP | 2TB68A8#ABA | Utilizzati per l'acquisizione e l'analisi delle immagini |
| Microscopio Confocale | Zeiss | LSM 710 | Utilizzato per l'imaging di larve e adulti |
| Cassetta per Criomodellatura, in Plastica | Epredia | 22-050-160 | Utilizzata per l'inclusione in OCT |
| Criostato | Thermo Fisher Scientific | 95-664-0EC70 | Utilizzato per la criosezionatura |
| Ghiaccio Secco | Fisher Scientific | N/A | Utilizzato per il trasporto dei campioni |
| Software Fiji | National Institutes of Health (NIH) | Versione 1.54p | Software per l'analisi delle immagini |
| Rete a Maglia Fine | Carolina Biological | 651345 | Utilizzata per la raccolta degli embrioni |
| Incubatrice per Pesci | VWR | 35960-056 | Mantenuta a 28.5°C |
| Pinze | Fisher Scientific | 10-316B | Utilizzate per la manipolazione dei campioni |
| Piatto con Fondo in Vetro | IBIDI | 81218-200 | Utilizzato per l'imaging |
| Agarosio a Punto di Fusione Basso | Prolab Supply | 9012-36-6 | Utilizzato per il montaggio di larve e adulti |
| Acquario per Accoppiamento (serbatoio principale, divisore, sezione a griglia) | Carolina Biological | 161937 | Utilizzato per la riproduzione del pesce zebra |
| Agitatore Rotante | Midsci | R2D-30 | Utilizzato per la fissazione durante l'incubazione notturna |
| Composto OCT | Tissue-Tek | 4583 | Mezzo di inclusione per criosezionatura |
| Paraformaldeide (PFA) | Sigma Aldrich | 158127-500G | Fissativo |
| Piatto di Petri, in Plastica | MilliporeSigma | BR452000 | Utilizzato per la manipolazione di embrioni e larve |
| Soluzione Salina Fosfato-Tampone (PBS) | Gibco | 14080-055 | Utilizzata per lavaggi e procedure di fissazione |
| Pipetta di Trasferimento in Plastica | Fisher Scientific | 50-998-100 | Utilizzata per il trasferimento di embrioni e larve |
| Lama di Rasoi | Fisher Scientific | 12-640 | Utilizzata durante la preparazione dei campioni |
| Misuratore di Conduttività | YSI | EC300ACC-04 | Utilizzato per verificare la salinità dell'acqua per rotiferi |
| Rotiferi | The Hidden Reef | 116151603 | Utilizzati per l'allevamento delle larve |
| Tiosolfato di Sodio | Thermo Fisher Scientific | AAA1762936 | Utilizzato per la neutralizzazione dell'ammoniaca clorata |
| Saccarosio | Fisher Scientific | S25590A | Reagente crioprotettivo |
| Tricaina Metanosolfonato | Western Chemical | NC0872873 | Anestetico; venduto da Fisher Scientific |
| Pinzette | Fisher Scientific | 12-000-122 | Utilizzate per la manipolazione dei campioni |
| Microscopio Fluorescenza Upright | Leica | M165 | Utilizzato per la selezione mediante fluorescenza |
Riferimenti
- Anderson NM, Simon MC. The tumor microenvironment. Curr Biol. 2020;30(16):R921-R925.
- Kumagai S, Momoi Y, Nishikawa H. Immunogenomic cancer evolution: A framework to understand cancer immunosuppression. Sci Immunol. 2025;10(105):eabo5570.
- Keren L, et al. A structured tumor-immune microenvironment in triple negative breast cancer revealed by multiplexed ion beam imaging. Cell. 2018;174(6):1373-1387.e19.
- Gerner MY, et al. Histo-cytometry: A method for highly multiplex quantitative tissue imaging analysis applied to dendritic cell subset microanatomy in lymph nodes. Immunity. 2012;37(2):364-376.
- Pittet MJ, Weissleder R. Intravital imaging. Cell. 2011;147(5):983-991.
- Wienke J, et al. The immune landscape of neuroblastoma: Challenges and opportunities for novel therapeutic strategies in pediatric oncology. Eur J Cancer. 2021;144:123-150.
- Spitzer MH, Nolan GP. Mass cytometry: Single cells, many features. Cell. 2016;165(4):780-791.
- Roy D, et al. Zebrafish—A suitable model for rapid translation of effective therapies for pediatric cancers. Cancers (Basel). 2024;16(7):1361.
- White RM, et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2008;2(2):183-189.
- MacRae CA, Peterson RT. Zebrafish as tools for drug discovery. Nat Rev Drug Discov. 2015;14(10):721-731.
- Miao KZ, et al. Tipping the scales with zebrafish to understand adaptive tumor immunity. Front Cell Dev Biol. 2021;9:660969.
- Povoa V, et al. Innate immune evasion revealed in a colorectal zebrafish xenograft model. Nat Commun. 2021;12(1):1156.
- Wang J, et al. Novel mechanism of macrophage-mediated metastasis revealed in a zebrafish model of tumor development. Cancer Res. 2015;75(2):306-315.
- Loveless R, Shay C, Teng Y. Unveiling tumor microenvironment interactions using zebrafish models. Front Mol Biosci. 2020;7:611847.
- Dee CT, et al. CD4-transgenic zebrafish reveal tissue-resident Th2- and regulatory T cell-like populations and diverse mononuclear phagocytes. J Immunol. 2016;197(9):3520-3530.
- Murali Shankar N, et al. Preclinical assessment of CAR-NK cell-mediated killing efficacy and pharmacokinetics in a rapid zebrafish xenograft model of metastatic breast cancer. Front Immunol. 2023;14:1254821.
- Tan KE, et al. LMO1 expression in neuroblastoma cells reprograms tumor-associated macrophages to promote metastasis. iScience. 2026;29(3):115144.
- Fior R, et al. Single-cell functional and chemosensitive profiling of combinatorial colorectal therapy in zebrafish xenografts. Proc Natl Acad Sci U S A. 2017;114(39):E8234-E8243.
- Fazio M, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Qin X, et al. CKLF instigates a “cold” microenvironment to promote MYCN-mediated tumor aggressiveness. Sci Adv. 2024;10(11):eadh9547.
- Ludin A, et al. CRATER tumor niches facilitate CD8+ T cell engagement and correspond with immunotherapy success. Cell. 2025;188(24):6720-6736.e26.
- Zhu S, et al. LMO1 synergizes with MYCN to promote neuroblastoma initiation and metastasis. Cancer Cell. 2017;32(3):310-323.e5.
- Tao T, et al. The pre-rRNA processing factor DEF is rate limiting for the pathogenesis of MYCN-driven neuroblastoma. Oncogene. 2017;36(27):3852-3867.
- Zimmerman MW, et al. MYC drives a subset of high-risk pediatric neuroblastomas and is activated through mechanisms including enhancer hijacking and focal enhancer amplification. Cancer Discov. 2018;8(3):320-335.
- Dankert EN, Look AT, Zhu S. Unraveling neuroblastoma pathogenesis with the zebrafish. Cell Cycle. 2018;17(4):395-396.
- Langenau DM, et al. In vivo tracking of T cell development, ablation, and engraftment in transgenic zebrafish. Proc Natl Acad Sci U S A. 2004;101(19):7369-7374.
- Lam SH, et al. Development and maturation of the immune system in zebrafish, Danio rerio: A gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 2004;28(1):9-28.
- Zhen A, et al. CD4 ligation on human blood monocytes triggers macrophage differentiation and enhances HIV infection. J Virol. 2014;88(17):9934-9946.
- Ferrero G, et al. The macrophage-expressed gene (mpeg)1 identifies a subpopulation of B cells in the adult zebrafish. J Leukoc Biol. 2020;107(3):431-443.
- Hall C, et al. The zebrafish lysozyme C promoter drives myeloid-specific expression in transgenic fish. BMC Dev Biol. 2007;7:42.
- Lorenzini F, et al. Melanoma innervation, noradrenaline and cancer progression in zebrafish xenograft model. Cell Death Discov. 2025;11(1):260.
- Ramakrishnan G, et al. Real-time imaging reveals a role for macrophage protrusive motility in melanoma invasion. J Cell Biol. 2025;224(2):e202403096.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo