我々は、生理学的および病理学的に関連性の刺激と腺房細胞のカルシウムシグナルおよび細胞傷害を調べる目的で、マウスからマウスの膵臓腺房細胞を調製する再現性のある方法が記載されている。これらの細胞のアデノウイルス感染のための方法も提供される。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
膵臓腺房細胞は、膵臓外分泌の主な実質細胞であると膵管に膵酵素の分泌の主な役割を果たしている。また、膵炎の開始のための部位である。ここでは、全体の膵臓組織から分離され、細胞内カルシウムシグナルの測定方法腺房細胞説明する。さらに、in vitroでの腺房細胞傷害を誘導する条件の中に、アデノウイルス構築物で、これらの細胞をトランスフェクトし、その後乳酸脱水素酵素、細胞損傷のマーカーの漏れを測定する技術が記載されている。これらの技術は、腺房細胞生理学と病理学を特徴づけるための強力なツールを提供します。
概要
細胞質カルシウムの動的変化は、生理学的および病理学的両方腺房細胞のイベントのために必要である。カルシウム、これらの発散効果はカルシウムシグナリング1の明確な空間的および時間的パターンに起因すると考えられている。例えば、腺房細胞から酵素液分泌は、分泌が行わ2を取るアピカルポールの限定された領域からのカルシウムスパイクにリンクされています。これとは対照的に、強烈な非振動カルシウムシグナルが続くグローバルカルシウム波が急性膵炎3,4につながる初期の病理学的イベントに関連付けられています。これらは内腺プロテアーゼ活性化、減少酵素の分泌、および腺房細胞傷害が含まれています。私たちの研究室では、in vivoおよびin vitroで 5-7両方病気につながるこれらの初期の病理学的事象を研究するために分離された膵臓の腺房を使用しています。ここで詳述方法は、CYを測定するために一次腺房細胞の単離を記載tosolicカルシウムレベルと細胞傷害。これらの細胞のアデノウイルス感染のための方法も提供される。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
1。カルシウムイメージングの準備膵臓腺房細胞
- 20mMのHEPES、95 mMの塩化ナトリウム、4.7のKCl、0.6mMのMgCl 2を 、1.3 mMのCaCl 2を、10 mMグルコース、2mMグルタミン、および1×最小イーグル培地非必須アミノ酸を含有するHEPESインキュベーションバッファーを調製する。 NaOHでpHを7.4への最終的な解決策を調整します。
- HEPESインキュベーション緩衝液(上記)25 mlにBSA(1%w / vの最終的な)の添加によりBSAインキュベーションバッファーを調製する。
- 1.1 mg / mlの(200単位/ ml)のBSAのインキュベーション緩衝液(上記)を6mlのタイプ4のコラゲナーゼおよび1 mg / mlの大豆トリプシンインヒビターを添加することによりコラゲナーゼ消化緩衝液を調製する。
- 二つの部分HNO 3と2時間の一部HCl中に浸漬することにより、酸洗浄22x22のmmのカバースリップ。次いで、70%エタノールでDI水とストアを使用してデカント。
- CO 2窒息により1マウスを安楽死させる。オリエント仰臥位、動物、そしてCLEによって腹部の表面を準備70%エタノールでaning。腹腔を公開する開腹術を行います。膵臓を解剖するとすぐにコラゲナーゼ消化バッファの6ミリリットルを含む小さな量るボートにすすいでください。
- 脂肪や目に見える血管のいずれかの大規模な作品を離れて解剖し、コラゲナーゼ消化緩衝液5mlを除去し、15 mlコニカルチューブに戻ってそれを追加します。
- 細かい解剖はさみを使用すると、コラゲナーゼ消化緩衝液1mlを含む小さな計量ボートに膵臓をミンチ。得られた溶液が均一に分散されるまでミンチ。
- 125ミリリットルの三角プラスチックフラスコにひき肉製品を移し、コンテナにコラゲナーゼ消化バッファの残りの5 mlを加える。組織が完全にバッファーに沈めていることを確認します。
- 37℃の水浴中でフラスコを置き、30分間90 rpmで振る。ダウンタイムのこの短い期間の間に、カルシウム活性化アゴニスト( 例えばセルレイン、カルバコール)を調製し、22x22のmmの酸洗浄カバーをすすぐDI水でスリップ。乾燥した後、実験室の膜で裏打ち平らな面の上に置きます。
- 30分のダイジェストが完了した後15 mlコニカルチューブに戻って懸濁液を転送し、細胞が沈降することができます。慎重にコラゲナーゼ消化バッファーをピペットBSAインキュベーションバッファー6mlのと交換してください。精力的に小さいクラスターに細胞を分散させるために10秒間手でチューブを振る。すぐに揺れにより、不安定なメディアから任意の大規模な、浮遊ゴミを取り除く。
- 残りの細胞が落ち着く、と新鮮なBSAのインキュベーションバッファーでメディアを交換することができます。
- 懸濁液は肉眼だけ細かく見えるだけ小さなクラスターで構成されるまで、二回1.11を繰り返します。細胞は、 図1A(一番上の行)に描かれたもののようになります。
- BSAのインキュベーションバッファーを削除し、HEPESインキュベーションバッファーと交換してください。
- 750μM、10%DMSO中フルオ-4AMの100X株式を準備します。
- 細胞懸濁液とBSAフリーHEPESインキュベーションバッファーを含む15ミリリットルコニカルチューブ内のセルをロードします。これを行うために、細胞懸濁液を原液の適切な量(1:100希釈)を追加する。各22x22のmmのカバースリップの上に、この懸濁液を次にプレートを500μl。
- 室温で暗所でカバースリップを保管してください。最初のCa 2 +測定負荷後30分を取る。色素染料は、自動的に装填後30分発生した灌流を、起動時に媒体から除去される。
2。膵臓腺房細胞内カルシウムの測定
- DI水で各灌流セットアップをすすぎ、バッファまたはアゴニストの適切な量で埋める。適切な流れを確保するためのバッファまたはアゴニストと総理それぞれシリンジ。リングに注射器をクランプすると、顕微鏡ステージ上約1〜2フィートに立っている。
- 慎重に細胞懸濁液を含むその縁1カバースリップから把握する細かいピンセットを使用してください。カバーを傾け45°をスリップ、過剰バッファがオフに実行することができます。カバースリップの上に細胞とゴム製のガスケットの上にカバースリップを置き、室( 図2Aおよび2B)を組み立てる。
- ステージに灌流チャンバーを固定し、チャンバー( 図2C)の最初の入口にバッファが含まれているチューブを挿入します。シリンジ含むバッファの電源を入れ、バッファがカバースリップの表面全体に灌流することができます。バッファ室の反対側の端部に到達すると、真空入口に真空ラインを挿入する。チャンバーに沿ったそれらの適切な位置に任意の他のチューブ(アゴニストを含む、阻害剤など )を挿入します。
- 488nmの( 図1A、ボトム)の波長でのFluo-4AMの色素を励起するためにどちらかの200Xや400X、1.4開口客観的かつアルゴンレーザーを用いて細胞を可視化する。レーザの電力設定を調整する必要があり、そのような光電子増倍管(PMT)放出された光によって飽和していない。また、PMTの両端の電圧は最大光量検出のために最適化される必要がある。
- > 515ナノメートルのロングパス発光信号が2-5秒より速く、グローバルカルシウム波( 図3および図4)可視化のために低速振動パターンおよび0.2秒/フレームを可視化するための/フレームのフレーム速度で収集される。
- イメージングが完了した後、注射器を閉じ、すべてのチューブを取り外します。室と繰り返し2.2から2.4を分解します。
- 時間と画像Jへの転送(ソフトウェアパッケージは、国立衛生研究所によってフリーウェアとして提供され、で見つけることができる上に、蛍光強度の数値などのデータを収集しhttp://rsb.info.nih.gov/ij/ )。
- リアルタイム細胞の画像を表示し、関心領域(ROIを、すなわち核、基底、頂端など ) を識別
- これらのROIとrのための蛍光強度を取得蛍光強度/ベースラインの蛍光強度( すなわち F/F0)としてepresent。
- F / F 0対をプロットすることによってトレーシングを生成する時間。トレーシングに加えて、代表的な画像は、一般に擬似カラーを使用して提供され、表示される。
3。細胞傷害アッセイのための膵臓腺房細胞の調製
- 暖かいDMEM F-12培地(フェノールレッドなし)37℃
- DMEM F-12メディアにBSA(0.1%w / vの最終)、およびHCl(50μM最終)を追加します。
- コニカルチューブにDMEMのアリコート50ミリリットル。
- 添加したDMEM F-12培地を10 mlにコラゲナーゼタイプIVの0.5 mg / mlの(12 U / ml)を加えることによりコラゲナーゼバッファを準備します。
- CO 2窒息により1マウスを安楽死させる。オリエント仰臥位、動物、70%エタノールで洗浄することにより腹部の表面を準備します。腹腔を公開する開腹術を行います。膵臓を解剖するとすぐに小さな計量ボートcですすぎコラゲナーゼバッファ6mlのをontaining。
- 3-5分間または得られた溶液を均一に分散されるまで細かい解剖ハサミを使用して組織をミンチ。
- 5分間90 rpmで振とうしながら37℃の水浴中に追加のコラゲナーゼバッファ、その後場所5mlで125ミリリットルの三角フラスコにみじん切りの組織を移す。
- シェーカーから外し、細胞は簡単に解決することができ、新鮮なコラゲナーゼ緩衝液5mlとの交流。その後、90 rpmで振とうしながら37℃の水浴中でさらに35分間インキュベートする。
- サスペンションは明らかな細胞塊を均質に表示されるまで、精力的に転送ピペットを使用してダイジェストを再懸濁します。ゆっくりコニカルフラスコにプリウェットナイロンメッシュを介して細胞懸濁液をピペッティング。
- 精力的に残っているセルを強制するために、メッシュを通して新鮮DMEM F-12メディア(コラゲナーゼ付き)のさらに3ミリリットルピペット。
- 別の6-10 DMEM F-12メディアのml及び追加2-3分のために解決するために、細胞をLLOW。二回、この手順を繰り返して、最終洗浄の後、上清を除去します。
- 48ウェル組織培養プレートの各ウェルに新鮮なDMEM F-12媒体、細胞を再懸濁し、細胞懸濁液のプレート500μLを加える。細胞は、図1Bに示されたもののようになります。
- プレートはアゴニストを追加する前に、5分間90 rpmで37℃の水浴中で座ることができます。
- 2-4時間アゴニストを変えて細胞を刺激する。
- 細胞が落ち着くと慎重にメディアのアリコート(通常100μl)を、液体窒素でフラッシュ凍結をピペットできるように角度でプレートを傾けて。
- Flashには、残りの細胞懸濁液を凍結。フラッシュ凍結LDH測定のために必須ではない。それらは同じ日アッセイまたは長期保存のために-20°Cに格納されている場合、代替のサンプルを氷上に維持することができるように
4。乳酸脱水素酵素漏れを測定
- 測定乳酸脱水素酵素(LDH)漏出。
- アッセイ緩衝液(も提供)12mlを有する再構成LDH基板(キットに提供される)。
- 室温で水浴中で凍結した細胞懸濁液とメディアサンプルを解凍。
- 96ウェルプレート中の各メディアサンプルの50μlのプレート。
- 細胞懸濁液に、最終濃度が1×10倍となるように溶解緩衝液の必要量を加える。 60分間37℃でボルテックス簡潔とインキュベート。
- ペレット細胞の破片〜4分間、250×gで溶解したサンプルを遠心分離します。
- 細胞溶解物のために、96ウェルプレートの各ウェルに10倍希釈の50μlのプレート。
- 各ウェルに再構成された基板の50μlを添加し、30分間室温で暗所に静置します。
- て反応を停止させる各ウェルに停止液50μlのを(キットに付属)を追加。
- 490nmで吸光度を測定します。
- %LDH漏れを計算するには、次の式を使用します。下記の光学濃度はよくのみを含むPBS、基板からのブランクODの読みを差し引いて修正し、ソリューションを停止している。
メディア=中のLDH(メディアOD492)×(メディア希釈係数)×(メディアの体積)はメディアサンプルを希釈することは通常不要であるため*、希釈係数は意志最も頻繁に一律。
合計LDH =((ライセートOD 490)×(ライセートの希釈係数)×(細胞懸濁液中の体積))+((メディアOD 490)×(希釈倍率)×(サンプリング用小分けメディアの体積))
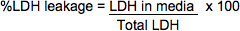
5。アデノウイルスによる感染膵臓腺房細胞
- 準備をするセクション3に記載されているよう膵腺房細胞。
- ステップ3.12続いて、細胞懸濁液にアデノウイルスの10 7感染単位(IFUs)を追加し、37℃で30分間インキュベート℃に
- 6ウェルプレート中の細胞懸濁液の均等板2 mlであった。
- 最も発現構築のために、細胞を十分に18時間以内に感染されるべきであるし、ちょうど6時間内のいくつかのルシフェラーゼコンストラクトのために。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
生理学的刺激に応答し腺房細胞のカルシウム測定の例を図3に設けられている。腺房細胞は、カルシウム染料のFluo-4にロードされ、アセチルコリンアナログカルバコール(のCCh; 1μM)を灌流した)8。細胞が頂端地域で開始し、基底地域3,9に伝播カルシウム波の形で答えた。 図3Bに示す代表的なトレーシングは、一般的に、1μMのカルバコールで観察された典型的なピーク高原パターンを示しています。逆に、コレシストキニンアナログセルレイン(10時)の準最大用量を使用すると、振動カルシウム応答( 図4)10 が得られます。
膵炎誘導アゴニストに応答して、腺房細胞からのLDHの漏出を図5に示されている。ここでは、セルレイン、カルバコール、またはTの存在下でLDHの漏れで濃度依存的増加を実証彼胆汁酸タウロリトコール酸-3硫酸塩(TLCS)。 LDHの最大漏れを誘発するのに必要な濃...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
細胞単離法およびその後のアッセイは、膵臓外分泌の生理学的および病態生理学的機能を研究するためにいるとの強力なツールを表してここに示されている。分散した膵腺房細胞を単離するための方法が1972年にアムステルダム11とジェイミソンによって記述されていた。ここで紹介する方法は、ヴァンアッカーら12によって記述より最近の分離方法から適応されている。これらの技術は、再現性の高い、容易に学習されていますが、正確に行わなければならないそれぞれの方法にはいくつかの重要な機能があります。これらの技術的な詳細を理解することは、トラブルシューティングが容易と改善アプリケーションが可能になります。
カルシウム測定用のセルを作成するにあたり、我々は若いげっ歯類からの膵臓は、より一貫性のある結果が得られることがわかりました。彼らは以下の線維脂肪組織が含まれている可能性があるので、腺房は、より均等に分散されています。のために Ca 2 +の測定値は、我々は最適な単一細胞イメージングのための小さい房を準備します。これは、LDH測定に使用...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
利害の衝突は宣言されていない。
謝辞
この作品は、健康グラントDK083327、及びDK093491(SZHまで)の国立研究所によってサポートされていました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| マウス | NCI | N / A | オス20-30グラム;事実上どの系統も同等の結果をもたらすはずです。 |
| HEPES | American Bioanalytical | S AB00892 | |
| 塩化ナトリウム | J.T. Baker | 3624-05 | |
| 塩化カリウム | J.T. Baker | 3040-01 | |
| 塩化マグネシウム | Σ M-8266 | ||
| 塩化カルシウム | Fischer | C79 | |
| デキストロース | J.T. Baker | 1916-01 | |
| L-グルタミン | Σ | G-8540 | |
| 1X minimum Eagle's medium nonessential アミノ酸 mixture | Gibco | 11140-050 | |
| 水酸化ナトリウム | EM | SX0593 | |
| ウシ血清アルブミン | Σ | A7906 | |
| コラゲナーゼ | Worthington | 4188 | |
| 大豆トリプシン インヒビター | Σ | T-9003 | |
| 二酸化炭素 | Mathesonのガス | 124-38-9 | |
| 125のmlのErlenmeyerのプラスチック フラスコ | Crystalgen | 26-0005 | |
| の解剖のキット | のファイン サイエンス ツール | 14161-10 | |
| 70%のエタノール | LabChem | LC222102 | |
| P1000、P100、P10ピペット | ギルソン | FA10005P | |
| 計量ボート | ヒースロー サイエンティフィック | HS1420A | |
| プラスチック トランスファー ピペット | USA Scientific | 1020-2500 | |
| 15 ml コニカル チューブ | BD ファルコン | 352095 | |
| 50 ml コニカル チューブ | BD ファルコン | 352070 | |
| 1.5 ml マイクロ遠心チューブ | フィッシャー | 05-408-129 | |
| 0.65 ml マイクロ遠心チューブ | VWR | 20170-293 | |
| 22 x 22 mm ガラス カバースリップ | フィッシャー | 032811-9 | |
| 硝酸フィ | ッシャー | A483-212 | |
| 塩酸フィ | ッシャー | A142-212 | |
| 脱イオン水 | N/A | N/A | |
| 18 x 18 mm カバースリップ | フィッシャー | 021510-9 | |
| ラボラトリー フィルム | パラフィルム | PM-996 | |
| Fluo-4AM | Invitrogen | F14201 | |
| ジメチルスルホキシド | Sigma | D2650 | |
| ルアーロック | ベクトン ディキンソン | 932777 | |
| 60 ml シリンジ | BD Bioscience | DG567805 | |
| 23 ¾ ゲージ針 | BD Bioscience | 9328270 | |
| PE50 チューブ | クレイ・アダム | PE50-427411 | |
| マイナスドライバー | N/A | N/A | |
| DMEM F-12、フェノールなし レッド | Gibco | 21041-025 | |
| 30.5 ゲージ針 | BD バイオサイエンス | 305106 | |
| 5 CC シリンジ | BD バイオサイエンス | 309603 | |
| 25 ml 三角フラスコ | フィッシャー | FB50025 | |
| ナイロン メッシュ フィルター | Nitex | 03-150/38 | 150 um 孔径 |
| 48 ウェル組織培養プレート | Costar | 3548 | |
| 96 ウェル組織培養プレート | Costar | 3795 | |
| 6 ウェル組織培養プレート | Costar | 3506 | |
| 液体窒素 | Matheson Gas | 7727-37-9 | |
| 細胞毒性アッセイキット | Promega | G1782 | |
| アデノ GFP | N/ | A N/A | J. Williams |
| Equipment | |||
| Ring クランプ付きスタンド | United Scientific | SET462 | |
| ペリフュージョンチャンバー | N/A | N/A | ェール大学のS.Z.Hらが設計 |
| 真空ライン マ | ノスタット | 72-100-000 | |
| シェーカー | 付きウォーターバス精密科学 | 51220076 | |
| 共焦点顕微鏡 | ツァイス | LSM 710 | |
| BioTek シナジー H1 プレート リーダー | BioTek | 11-120-534 | |
| 組織培養フード | Nuaire | NU-425-600 | |
| 組織培養インキュベーター | サーモ | 3110 |
参考文献
- Toescu, E. C., Lawrie, A. M., Petersen, O. H., Gallacher, D. V. Spatial and temporal distribution of agonist-evoked cytoplasmic Ca2+ signals in exocrine acinar cells analysed by digital image microscopy. Embo J. 11, 1623-1629 (1992).
- Ito, K., Miyashita, Y., Kasai, H. Micromolar and submicromolar Ca2+ spikes regulating distinct cellular functions in pancreatic acinar cells. Embo J. 16, 242-251 (1997).
- Husain, S. Z., et al. The ryanodine receptor mediates early zymogen activation in pancreatitis. Proc. Natl. Acad. Sci. U.S.A. 102, 14386-14391 (2005).
- Raraty, M., et al. Calcium-dependent enzyme activation and vacuole formation in the apical granular region of pancreatic acinar cells. Proc. Natl. Acad. Sci. U.S.A. 97, 13126-13131 (2000).
- Orabi, A. I., et al. Dantrolene mitigates caerulein-induced pancreatitis in vivo in mice. Am. J. Physiol. Gastrointest. Liver Physiol. 299, G196-G204 (2009).
- Shah, A. U., et al. Protease Activation during in vivo Pancreatitis is Dependent upon Calcineurin Activation. Am. J. Physiol. Gastrointest. Liver Physiol. , (2009).
- Muili, K. A., et al. Pharmacologic and genetic inhibition of calcineurin protects against carbachol-induced pathologic zymogen activation and acinar cell injury. Am. J. Physiol. Gastrointest. Liver Physiol. , (2012).
- Orabi, A. I., et al. Ethanol enhances carbachol-induced protease activation and accelerates Ca2+ waves in isolated rat pancreatic acini. J. Biol. Chem. 286, 14090-14097 (2011).
- Nathanson, M. H., Padfield, P. J., O'Sullivan, A. J., Burgstahler, A. D., Jamieson, J. D. Mechanism of Ca2+ wave propagation in pancreatic acinar cells. J. Biol. Chem. 267, 18118-18121 (1992).
- Reed, A. M., et al. Low extracellular pH induces damage in the pancreatic acinar cell by enhancing calcium signaling. J. Biol. Chem. 286, 1919-1926 (2011).
- Amsterdam, A., Jamieson, J. D. Structural and functional characterization of isolated pancreatic exocrine cells. Proc. Natl. Acad. Sci. U.S.A. 69, 3028-3032 (1972).
- Van Acker, G. J., et al. Tumor progression locus-2 is a critical regulator of pancreatic and lung inflammation during acute pancreatitis. J. Biol. Chem. 282, 22140-22149 (2007).
- Ito, K., Miyashita, Y., Kasai, H. Kinetic control of multiple forms of Ca(2+) spikes by inositol trisphosphate in pancreatic acinar cells. J. Cell Biol. 146, 405-413 (1999).
- Leite, M. F., Burgstahler, A. D., Nathanson, M. H. Ca2+ waves require sequential activation of inositol trisphosphate receptors and ryanodine receptors in pancreatic acini. Gastroenterology. 122, 415-427 (2002).
- Paredes, R. M., Etzler, J. C., Watts, L. T., Zheng, W., Lechleiter, J. D. Chemical calcium indicators. Methods. 46, 143-151 (2008).
- Schild, D., Jung, A., Schultens, H. A. Localization of calcium entry through calcium channels in olfactory receptor neurones using a laser scanning microscope and the calcium indicator dyes Fluo-3 and Fura-Red. Cell Calcium. 15, 341-348 (1994).
- Saluja, A. K., et al. Secretagogue-induced digestive enzyme activation and cell injury in rat pancreatic acini. Am. J. Physiol. 276, 835-842 (1999).
- Husain, S. Z., et al. Ryanodine receptors contribute to bile acid-induced pathological calcium signaling and pancreatitis in mice. Am. J. Physiol. Gastrointest. Liver Physiol. , (2012).
- Gurda, G. T., Guo, L., Lee, S. H., Molkentin, J. D., Williams, J. A. Cholecystokinin activates pancreatic calcineurin-NFAT signaling in vitro and in vivo. Mol. Biol. Cell. 19, 198-206 (2008).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
