膜輸送は、細胞膜から細胞内部へのタンパク質の輸送(すなわち、エンドサイトーシス)を含み、その後、分解のためにリソソームに輸送するか、またはリサイクルのために細胞膜に輸送します。この記事で説明する方法は、細胞膜タンパク質のエンドサイトーシスとリサイクルを研究するように設計されています。
この記事について
サマリー
要約
膜輸送は、細胞膜から細胞内部へのタンパク質の輸送(すなわち、エンドサイトーシス)を含み、その後、分解のためにリソソームに輸送するか、またはリサイクルのために細胞膜に輸送します。細胞ベースのL-グルタチオン保護アッセイは、細胞表面に局在するタンパク質受容体、チャネル、トランスポーター、および接着分子のエンドサイトーシスおよびリサイクルの研究に使用できます。エンドサイトーシスアッセイでは、ジスルフィド結合とN-ヒドロキシスクシンイミド(NHS)エステルを含む細胞膜不透過性ビオチンを、膜輸送が起こらない温度である4°Cで細胞表面タンパク質を標識する必要があります。ビオチン化原形質膜タンパク質のエンドサイトーシスは、37°Cでのインキュベーションによって誘導されます。次に、温度を再び4°Cに下げてエンドサイトーシスの輸送を停止し、原形質膜に残ったタンパク質に共有結合したビオチンのジスルフィド結合をL-グルタチオンで減少させます。この時点では、エンドサイトーシスされたタンパク質のみがL-グルタチオンから保護され、ビオチン化されたままになります。細胞溶解後、ビオチン化タンパク質をアガロースから溶出したストレプトアビジンアガロースで単離し、目的のビオチン化タンパク質をウェスタンブロッティングで検出します。リサイクルアッセイでは、ビオチン化細胞を37°Cでインキュベートしてエンドサイトーシス小胞にビオチン化タンパク質をロードした後、エンドサイトーシスアッセイと同様に、原形質膜に残っているタンパク質に共有結合したビオチンのジスルフィド結合をL-グルタチオンで4°Cで還元します。次に、細胞を再び37°Cでインキュベートして、エンドサイトーシス小胞からのビオチン化タンパク質を原形質膜にリサイクルします。その後、細胞を4°Cでインキュベートし、原形質膜にリサイクルされたタンパク質に結合したビオチン中のジスルフィド結合をL-グルタチオンで還元します。L-グルタチオンから保護されたビオチン化タンパク質は、原形質膜にリサイクルされなかったタンパク質です。
概要
すべての生細胞は、細胞外リガンド、微生物、栄養素、膜貫通タンパク質、脂質などの情報を原形質膜からエンドサイトーシス小胞に輸送することで情報を処理します(すなわち、エンドサイトーシス)。リサイクルと呼ばれる相互プロセスにより、エンドサイトーシスのバランスを取り、内在化した膜とカーゴの多くを細胞表面に戻します。エンドサイトーシスとリサイクルのバランスは、原形質膜の組成を制御し、時間と空間で解決された情報を細胞に提供します。エンドサイトーシスとリサイクルは、栄養素の取り込みと代謝、発生、増殖、分化と極性、リプログラミング、遊走、細胞接着と遊走、細胞質分裂、神経伝達など、多様な細胞機能のマスターレギュレーターです1-3。エンドサイトーシスおよびリサイクル経路は非常に動的で高度に協調しており、細胞は1時間に1〜5回、原形質膜全体に相当するものを回転させることができます。
細胞ベースのL-グルタヒオン保護アッセイは、上皮細胞および非上皮細胞における受容体、チャネル、トランスポーター、接着分子を含む膜貫通タンパク質のエンドサイトーシスおよびリサイクルの研究に有用です4-8。私たちはこれまでに、ヒト気道上皮細胞およびHEK293細胞9-15における嚢胞性線維症膜貫通コンダクタンスレギュレーター(CFTR)のエンドサイトーシスとリサイクルを研究してきました。本稿に記載されているビオチン化ベースのアッセイは、半透性増殖支持体上の分極条件下で培養された上皮細胞のエンドサイトーシスおよびリサイクルの検討に最適化されています。これらのプロトコルは、プラスチック組織培養皿または非上皮細胞で培養された上皮細胞におけるエンドサイトーシスおよびタンパク質のリサイクルを研究するために変更することができます。図 1 および 2 には、上皮細胞および非上皮細胞におけるエンドサイトーシスおよびリサイクルアッセイの例が含まれています。
エンドサイトーシスアッセイは、前述の9-15に従って実施されます。細胞は、コラーゲンでコーティングされた半透性増殖支持体11,14上で培養されます。あるいは、細胞をコラーゲン被覆プラスチック組織培養皿10,15で培養することができる。細胞を4°Cまで急速冷却して膜の輸送を止め、細胞膜タンパク質を細胞膜不透過性ビオチンで4°Cで標識します。ビオチンはリジン残基の>ε-アミンと反応し、ジスルフィド結合はチオール切断可能です。ビオチン化後、細胞を37°Cでインキュベートしてタンパク質輸送を誘導し、エンドサイトーシス小胞を2.5分、5.0分、7.5分、または10分間ロードします。その後、細胞を4°Cに冷却し、細胞膜タンパク質に共有結合したビオチン中のジスルフィド結合をL-グルタチオン(GSH)で減少させます。プロトコルのこの時点では、原形質膜からエンドサイトーシスされたタンパク質のみがGSHから保護されるため、ビオチン化のままです。ビオチン化後、37°CでのインキュベーションまたはGSH処理を行わずに4°Cに留置した細胞は、時間ゼロでビオチン化されたCFTRの量を決定するのに役立ちます。ビオチン化後、37°Cでのインキュベーションを行わずにGSH処理を施した細胞を4°Cに留置すると、ジスルフィド結合の還元効率を決定するのに役立ちます。上述の処理に続いて、細胞を溶解し、ビオチン化タンパク質をストレプトアビジンアガロースによって単離し、SDSサンプルバッファーに溶出し、SDS−PAGEによって分離する。目的のタンパク質は、ウェスタンブロッティングによりビオチン化サンプル中に検出されます。時間ゼロの4°Cでのビオチン化タンパク質の量(37°Cの温暖化なし)は100%と見なされます。4°CでのGSH処理後にビオチン化されたタンパク質の量はバックグラウンドと見なされ、さまざまな時点で37°Cに温まった後にビオチン化されたままのタンパク質の量から差し引かれます。タンパク質のエンドサイトーシスは、バックグラウンドを差し引いて計算され、37°Cに温暖化した後の各時点におけるビオチン化タンパク質の割合と、時間ゼロ時に存在するビオチン化タンパク質の量として表されます。
リサイクルアッセイは、前述の11,16に従って実行されます。細胞は、コラーゲン被覆半透性増殖支持体11上で培養される。あるいは、コラーゲン被覆プラスチック組織培養皿13上で細胞を培養することができる。ビオチン化後、細胞を37°Cに温め、ビオチン化タンパク質をエンドサイトーシス小胞にロードします。37°Cでの最初のインキュベーション時間は、エンドサイトーシスシグナルの線形増加中に目的のタンパク質のエンドサイトーシスが最大に達する時間によって決まります。この時間はタンパク質特異的であり、細胞の種類や細胞培養条件によって異なる場合があります。私たちの経験では、CFTR エンドサイトーシスは 5.0 または 7.5 分13,14 で最大に達しました (図 1 および 2)。その後、細胞を直ちに4°Cに冷却し、原形質膜タンパク質に結合したビオチン中のジスルフィド結合をGSHで減少させます。次に、細胞を溶解して目的のエンドサイトーシスタンパク質の量を決定するか、または再び37°Cまで異なる時間温めて、目的のエンドサイトーシスされたビオチン化タンパク質が原形質膜にリサイクルされるようにします。その後、細胞を再び4°Cに冷却し、原形質膜にリサイクルされたタンパク質に結合したビオチン上のジスルフィド結合をGSHで減少させます。目的タンパク質のリサイクルは、1回目と2回目のGSH処理後のビオチン化タンパク質の量の差から決定されます。
エンドサイトーシスアッセイとリサイクルアッセイの実現可能性は、いくつかの要因に依存します。まず、細胞単層の形成が前提条件であり、単層を形成しない細胞や多層として増殖しない細胞は、本稿で述べたアッセイには適していません。次に、細胞表面における目的タンパク質の存在量と、ウェスタンブロッティングによってタンパク質を検出する抗体の存在が重要です。タンパク質の定常状態の存在量は、まず全細胞ライセート(WCL)で測定することをお勧めします。第三に、特定の細胞表面タンパク質をビオチン化する能力をテストする必要があります。ビオチンはリジン残基に結合します。したがって、ビオチン化の効率は、タンパク質の細胞外ドメインのリジン残基の数に部分的に依存します。したがって、タンパク質配列をスクリーニングして、リジン残基が細胞外ドメインに存在するかどうかを判断することをお勧めします。すべての細胞外ドメインのリジン残基が、タンパク質のフォールディングによりビオチンに対して等しくアクセス可能であるとは限りません。したがって、定常状態でのタンパク質ビオチン化とそれに続くウェスタンブロッティングは、細胞表面でのタンパク質の定常状態の存在量を決定するだけでなく、目的のタンパク質に対するビオチン化ベースのアッセイの実現可能性を調べるためにも実行する必要があります。
このプロトコルは、ヒト気道上皮細胞CFBE41o-で培養された野生型CFTRのエンドサイトーシスとリサイクルを調べるために最適化されています。これは、空気と液体の界面9,10,13-15の24mm半透成長支持体で培養されています。CFTRは頂端膜ドメインに分極します。したがって、このプロトコルは、頂端膜ドメインのビオチン化について説明しています。基底外側膜ドメインのビオチン化は、基底外側膜に分極するタンパク質のエンドサイトーシスとリサイクルを研究するために必要になります。この原稿に記載されているエンドサイトーシスアッセイプロトコルには、6つの条件があります:ビオチン化のみ(BT =時間ゼロ;サンプルa);GSH制御(GSH;サンプルb);2.5分、5.0分、7.5分、または10分のエンドサイトーシス時間ポイント(サンプルC;表 1)。プロトコル内のエンドサイトーシスの時点の数および/または長さは、必要に応じて変更できます。
リサイクルアッセイは、エンドサイトーシスシグナルの線形増加中に目的のタンパク質のエンドサイトーシスが最大に達する時点を決定した後に実行されます。この時点は、リサイクルを誘導する前に、目的のタンパク質をエンドサイトーシス小胞にロードするために使用されます。この時間はタンパク質に依存し、細胞の種類や培養条件によって異なる場合がある15。私たちは以前に、CFTRエンドサイトーシスがヒト気道上皮細胞CFBE41o-で7.5分の時点でプラトーに達し、CFTR15を安定して発現していることを立証しました。対照的に、CFTRエンドサイトーシスは、CFTR13を安定して発現するHEK293細胞の5.0分時点にプラトーに達しました。この原稿に記載されているリサイクルアッセイプロトコルには、5つの条件があります:ビオチン化のみ(BT =時間ゼロ;サンプルa);GSH制御(GSH;サンプルb);5.0 分のエンドサイトーシス (Endo; サンプル c)、5.0 分のエンドサイトーシスに続いて 2.5 分または 5.0 分のリサイクル時間ポイント (Rec; サンプル d;表2)。プロトコル内のリサイクル時点の数や長さは、必要に応じて変更できます。
プロトコル
1. セルのシード
- 24 mmフィルターを10%コラーゲンIで前処理します(Minimal Essential Medium(MEM)で10%コラーゲンIを調製し、フィルターの表面全体をコラーゲン溶液で覆い、室温でUV光下で30分間インキュベートし、37°Cの細胞培養インキュベーターで1時間インキュベートし、インキュベーション後に余分なコラーゲンを吸引します)。
- 細胞培養培地を調製します(MEMをCO2で20分間ガス化、10%ウシ胎児血清(FBS)、50 U/mlペニシリン、50 U/mlストレプトマイシン、2 mM L-グルタミン、0.5 μg/mlピューロマイシン)
- CFBE41o-細胞を6つの24 mmフィルターに播種し、エンドサイトーシスとリサイクルをそれぞれ1 x 10⁶/フィルターで行います。
- 播種の翌日に頂端培地を取り外し、基底外側のみから毎日給餌します。
- 実験の24時間前に選択抗生物質陰性培地を給餌します。播種後6〜10日でCFBE41o-細胞で実験を行います。
2. 実験前の準備(エンドサイトーシスとリサイクルアッセイと同様)
- 冷蔵室にベンチスペースを設けます。エンドサイトーシスおよびリサイクルアッセイは、37°Cでのインキュベーションを除き、冷蔵室で実施する必要があります。24 mmフィルターを含むプレートは、冷蔵室のベンチトップに直接設置する必要があります。
- 37ºCインキュベーターの電源を入れます。
- 500 mLのPBS++、pH 8.2(ダルベッコリン酸緩衝生理食塩水(PBS)、1 mM塩化マグネシウム、および0.1 mM塩化カルシウム、pH 8.2)を調製し、250 mlを37°Cでインキュベーターで、250 mlを4°Cで冷蔵室で保存します。
- PBS++、pH 8.2、37°Cの6ウェルプレートにウェルを充填し、インキュベーターに37°Cで保管します。
- PBS++、pH 8.2、4°Cで別の6ウェルプレートにウェルを充填し、4°Cの冷蔵室に保管します。
- 100 mlのPBS++、pH 8.6、4°Cを調製し、冷蔵室で保管します。
- ジスルフィド結合とNHSエステルを含むビオチンを、PBS++、pH 8.2、4°Cの濃度0.8 mg/mlで、ビオチン化ステップから30分以内に調製します(ビオチンバッファーの容量はフィルターの全面を完全に覆う必要があります)、1.5 ml/24 mmフィルターをお勧めします。
- 100 mLのGSH緩衝液をpH 8.6の水に調製し、4°C(75 mM塩化ナトリウム、1 mM塩化マグネシウム、0.1 mM塩化カルシウム、50 mM GSH、80 mM水酸化ナトリウム、および10% FBS)に冷却します。GSHと水酸化ナトリウムは、実験の直前に添加する必要があります。pHを確認し、8.6に調整します。水酸化ナトリウムはカルボキシル基を中和し、グルタチオン中のシステイン残基の半分を脱プロトン化します。このシステインのpKaである8.64で強く緩衝されています。(リサイクルアッセイ用に同量のGSHバッファーを調製します)。
- 50 mLのLysis Bufferを調製し、pH 8.2で4°C(25 mM HEPES、pH 8.2、1% (v/v) Triton X-100、10% (v/v) glycerol)で保存します。Lysis Bufferの50 mLあたりにComplete protease inhibitor Cocktailを添加し、4°Cまで冷却します。Completeを添加した後は、pHが低下する可能性があるためpHを確認してください。
- Laemliサンプルバッファーを100 mM DTTで調製します。
- 1x Running buffer (10x Running buffer 100 mL、900 ml の水) を調製します。
- 1x Transferバッファーを調製し、4°C(ドデシル硫酸ナトリウム(SDS)を含まない10x Transferバッファー100 ml、メタノール200 ml、水700 ml)まで冷却します。
3. エンドサイトーシスアッセイ
CFTRは頂端膜ドメインに分極します。したがって、プロトコルは頂端膜ドメインのビオチン化を説明しています。基底外側膜に分極するタンパク質のエンドサイトーシスを研究するためには、基底外側膜ドメインのビオチン化が必要になります.
ワークフロー:4°Cでの細胞表面タンパク質のビオチン化 → 37°Cまで温めて、エンドサイトーシス小胞にビオチン化タンパク質をロード → 4°Cまで冷却してエンドサイトーシスの輸送を停止 → 細胞表面に残ったタンパク質に付着したビオチン中のジスルフィド結合の減少 → 細胞溶解→ ビオチン化(すなわち、ストレプトアビジンアガロースを含むエンドサイトーシス)タンパク質→ストレプトアビジンアガロースからのビオチン化タンパク質の溶出→タンパク質電気泳動およびウェスタンブロッティング。
- 細胞培養インキュベーターから6つの24 mmフィルター(表1:サンプルa-c)が入ったプレートを持参し、氷上に冷たく(4°C)PBS++、pH 8.2で満たされたプレートに素早く移します。
- PBS ++が頂端面をオーバーフローさせて、表面全体をすばやく覆います。氷上のプレートを冷蔵室に持って行き、ベンチトップに置きます。
- プレートを逆さまにして、フィルターを所定の位置に保持して脱落を防ぐことにより、PBS ++をすばやく取り外します。~2 ml の PBS++ を頂端側と基底外側に加えます。
- フィルターを~2mlの冷たいPBS++、pH 8.2 3xで2分間洗浄します。一度に片面、頂端または基底外側から洗浄液を吸引し、新鮮なPBS++、pH 8.2を一度に片面に加えます。
- 最後の洗浄液を吸引し、基底外側にPBS++、pH 8.2の1mlを加えます。ビオチン緩衝液1.5 mLを頂端側に加え、暗所で30分間インキュベートします。バッファーが反対側にこぼれないようにしてください。
- ビオチンバッファーを頂端側から吸引し、PBS++、pH 8.2 3xで2分間洗浄します。
- 別のプレートに2つのフィルター(表1:サンプルaおよびb)を置き、頂端側と基底側に~2 mlのPBS++、pH 8.2を加え、冷蔵室に保管します。残りの4つのフィルターを1つのプレート(表1:サンプルc)に保持し、各フィルターの頂端側と基底側に~2 mlのPBS++ pH 8.2を加えます。プレートを氷の上に置き、37°Cインキュベーターの隣のベンチトップに持ってきます。
- 予熱したPBS++ pH 8.2で満たされた37°Cインキュベーターで、氷からプレートにフィルターを迅速に移し、各フィルターの表面全体を温かいPBS++ pH 8.2で覆うように、1つのフィルターをそれぞれ正確に2.5分、5.0分、7.5分、または10分間インキュベー トします。
- インキュベーション中に、氷上のプレート内の4つのウェルを冷たい(4ºC)PBS ++ pH 8.2で完全に充填します。
- 指示されたインキュベーション時間の後、各フィルターを逆さまにして、温かい(37ºC)PBS ++、pH 8.2を排出し、氷上のプレートに移します。冷たいPBS ++、pH 8.2を追加して、頂端側をオーバーフローさせ、各フィルターの表面全体をすばやく覆います。
- フィルターを氷に移した後、プレートを冷蔵室に持って行き、ベンチトップにセットします。
- すべてのフィルター(サンプルa-c)の両面からPBS++を吸引し、基底外側に1mlのPBS++pH8.6を満たします。1.5 mLのPBS++、pH 8.6をフィルターaの頂端側に加えます(表1:サンプルa)。
- フィルターbおよびcのGSHバッファー(pH 8.6)を用いて、頂端膜タンパク質に結合したビオチン中のジスルフィド結合を減少させます(表1:サンプルbおよびc)。
- 1.5 mLのGSHバッファーを頂端側に加え、15分間インキュベートし、6回繰り返します。
- 基底外側にPBS++ pH 8.6 1 mlを保持します。バッファーを基底外側にこぼさないでください。
- 手順3.15を完了した後、すべてのフィルター(表1:サンプルa、b、およびc)をPBS ++ pH 8.2 2xで短時間洗浄し、頂端側と基底側から洗浄液を吸引し、フィルター付きのプレートを45°の角度でセットして、すべての洗浄と吸引を再度排出します。
- プレートをベンチトップに平らに置き、各フィルターの頂端側に500 μlの溶解バッファーを加え、冷蔵室で15分間振とうしながらインキュベー トします。
- ゴム製の警察官で細胞をこすり落とし、1.5mlのエッペンドルフチューブに集めます。
- 14,000 x gで4°Cで10分間遠心します。
- 上清を新鮮な1.5mlチューブに移し、ペレットを廃棄します。上清は現在、全細胞溶解物(WCL)と呼ばれています。
- DTT入りLaemliサンプルバッファー100 μlをWCL50 μl(WCL全体の10%)に加え、37°Cで30分間インキュベートします(WCLサンプル)。
- 50% ストレプトアビジンアガロースの 200 μl アリコートを調製し、吸引に 27 G の針を取り付けてすべての洗浄バッファーを除去します: 1 ml の PBS で 2x 洗浄し、洗浄の間にパルススピンでビーズをペレット化します。WCL を添加する前に 1 ml の溶解バッファーで 1 回洗浄して平衡化します。WCL を添加する前にアガロースを吸引乾燥させます。
- 残りのWCLを洗浄したストレプトアビジンアガロースとインキュベートします(溶解バッファーで容量を最大1.2 mLにし、暗闇で少なくとも2時間または冷蔵室でO / N回転させます)。
- ストレプトアビジンアガロース-ビオチン化タンパク質複合体を1 mLの溶解バッファーで3回洗浄し(洗浄中に溶解バッファーにCompleteを含有する必要はありません)、洗浄の合間にアガロースをパルス回転させ、最後の洗浄後に吸引乾燥させます。
- ストレプトアビジンアガロース-ビオチン化タンパク質複合体を、DTTを含む65 μlのLaemliサンプルバッファーと85°Cで5分間インキュベー トします。
- パルススピンし、溶出されたビオチン化タンパク質複合体を収集します。
- 7.5%ゲルに40 μlのWCLサンプルとウェルあたりのビオチン化(BT)サンプルの全容量をロードします。
- ランニングバッファーを含むSDS中で120 Vでゲルを泳動します。
- SDSなしの転写バッファーで、タンパク質を90〜95Vで1.5時間(<400Aまで)PVDFメンブレンに転写します。
- TBS-T 0.1% O/Nに5%無脂肪乳をブロックし、抗CFTRマウスモノクローナル抗体CFF596とヤギ抗マウスHRP標識二次抗体で両方の膜をブロットします。
- 化学発光を行います。両方のメンブレンを抗エズリン抗体または抗アクチン抗体でリブロットします。
4. リサイクルアッセイ
ワークフロー: 4°Cでの細胞表面タンパク質のビオチン化 → 37°Cまで温めて、エンドサイトーシス小胞にビオチン化タンパク質を負荷 → 4°Cまで冷却してエンドサイトーシスの輸送を停止 → 細胞表面に残ったタンパク質に付着したビオチン中のジスルフィド結合の減少 → 37°Cまで温めて、エンドサイトーシス小胞からのビオチン化タンパク質を細胞表面にリサイクルできるようにする → 4°Cに冷却エンドサイトーシス輸送を阻止する → 細胞表面にリサイクルされたタンパク質に結合したビオチン中のジスルフィド結合の減少 → 細胞溶解 → ビオチン化タンパク質(すなわち、リサイクルされていないもの)のストレプトアビジンアガロースによる単離 → ストレプトアビジンアガロースからのビオチン化タンパク質の溶出 →タンパク質電気泳動およびウェスタンブロッティング。
- エンドサイトーシスアッセイ(セクション3.1-3.6)に記載されている手順に従って、5つの24 mmフィルター(表2:サンプルa-d)で頂端表面タンパク質をビオチン化します。
- 冷蔵室で、新しいプレートに2つのフィルター(表2:サンプルaおよびb)をセットし、頂端側と基底側に~2 mlのPBS ++、pH 8.2を加え、冷蔵室に保管します。
- 残りの3つのフィルターを1つのプレート(表2:サンプルcおよびd)に保持し、各フィルターの頂端側と基底側に~2 mlのPBS++ pH 8.2を加えます。フィルターcとdを入れたプレートを氷の上に置き、37°Cインキュベーターの外のベンチに持ってきます。
- フィルターを氷上のプレートからインキュベーター内の予熱PBS++ pH 8.2で満たされたプレートにすばやく移し、5.0分間保持します。
- インキュベーション中に、プレートの3つのウェルを氷上に冷たい(4ºC)PBS ++ pH 8.2で満たします。
- 37°Cで5.0分間インキュベーションした後、フィルターを氷上のプレートに移します。冷たいPBS ++ pH 8.2を頂端側からオーバーフローさせ、各フィルターの表面全体をすばやく覆います。
- 氷上のプレートを冷蔵室に持って行き、ベンチトップに置きます。
- フィルターa、b、c、dの両面からPBS++ pH 8.2を吸引し、基底外側にPBS++ pH 8.6を1ml加えます。
- フィルターaとbはフィルターcとdとは別に保管し、フィルターaとbの頂端側にPBS++ pH 8.6の1 mLを加えます。
- エンドサイトーシスアッセイ(ステップ3.13-3.15)で説明されている手順に従って、フィルターb、c、およびdの細胞表面に残っているビオチン中のジスルフィド結合を減少させます。
- フィルターb、c、dをPBS++、pH 8.2 2xで短時間洗浄し、新しいPBS++、pH 8.2と交換します。フィルターdを新しいプレートに置き、37°Cインキュベーターの外側のベンチトップに氷を当てます。
- 氷上のプレートから、予熱したPBS++ pH 8.2で満たされたインキュベーター内のプレートにフィルターを迅速に移し、上記のステップ4.4〜4.9で説明したように、1つのフィルターをそれぞれ2.5または5.0分間正確にインキュベートします。
- 4.4で説明したように、フィルターdで37°Cで2回目のインキュベーションを行った後、GSHバッファーで頂端膜タンパク質に結合したビオチンのジスルフィド結合を減らします。ただし、このステップではGSHバッファーを使用した15分間のインキュベーションが3回のみ行われます。このステップでは、フィルターa、b、cをPBS++ pH 8.6のアピカル側とベースラテラル側に保ちます。
- 細胞溶解およびウェスタンブロッティングについては、エンドサイトーシスアッセイ(ステップ3.16-3.31)に記載されている手順に従ってください。
結果
CFTRのエンドサイトーシスは、コラーゲンコーティングフィルター上に培養したCFBE41o-細胞を用いて検討した(図1)。ビオチン化CFTRは、マウスモノクローナル抗体(クローン596)および抗マウスペルオキシダーゼ抗体を用いたウエスタンブロット検出系により化学発光法で可視化した。ビオチン化CFTRの定量は、フィルムの線形動的範囲内の露光条件下でデンシトメトリーにより行った。CFTRのエンドサイトーシスは、バックグラウンドを差し引いた後、37 ºCに加温してからの各時間点におけるビオチン化CFTRの量を時間ゼロにおける量に対してパーセントで表して算出した(図1Aおよび1B)。CFTRのエンドサイトーシスは0~7.5分の間で線形であった。GSH処理の不十分なためにバックグラウンドCFTRが>10%であった実験は除外した(図1D)。
CFTRのリサイクリングは、コラーゲンコーティングされた組織培養ディッシュで培養したHEK293細胞を用いて検討した(図2)。CFTRのエンドサイトーシスは0.0~5.0分の間で直線的に進行し、5.0分の時点で最大に達した(図2A)。したがって、エンドサイトーシス小胞にCFTRを含むビオチン化タンパク質を蓄積させるために、細胞を37 ºCで5.0分間インキュベートした(図2Bおよび2C)。エンドサイトーシスにより細胞内に取り込まれたCFTRのリサイクリングは、最初と2回目のGSH処理後のビオチン化CFTR量の差として算出した。
表1. 膜侵入検出法。
| エンドサイトーシス | BT | GSH | Endo-2.5 | Endo-5.0 | Endo-7.5 | Endo-10.0 |
| サンプル | a | b | c2.5 | c5.0 | c7.5 | c10.0 |
| ビオチン | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2.5 分 | 5.0 分 | 7.5 分 | 10 分 |
| GSH | (-) | + | + | + | + | + |
表2. リサイクルアッセイ。
| リサイクル | BT | GSH | Endo-5 | Rec-2.5 | Rec-5.0 |
| 試料 | a | b | c | d2.5 | d5.0 |
| ビオチン | + | + | + | + | + |
| 1回目 37 ºC | (-) | (-) | 5分 | 5分 | 5分 |
| 1回目 GSH | (-) | (-) | + | + | + |
| 2回目 37 ºC | (-) | (-) | + | + | + |
| 2回目 GSH | (-) | (-) | (-) | 2.5分 | 5分 |
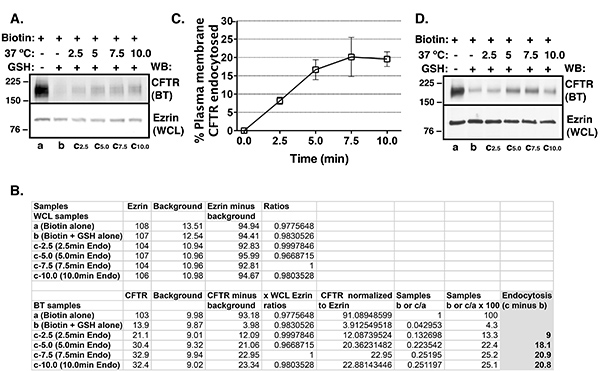
図1. CFBE41o-細胞におけるCFTRのエンドサイトーシスを評価するために実施したエンドサイトーシスアッセイの概要。 細胞はコラーゲンコーティングフィルター上で培養した。代表的なウェスタンブロット(A)、代表的な密度測定値(B)、および時間経過に伴うCFTRのエンドサイトーシスを示す実験のまとめ(C)。細胞表面の選択的ビオチン化およびウェスタンブロット法を用いて、細胞膜に存在するCFTRの量を評価した。タンパク質の量は、フィルムの線形動的範囲内での露光を用いた密度測定により定量した。時間ゼロでは、ビオチン化(BT)されたCFTRの量を100%とした(表1:試料a)。また、時間ゼロにおいて、GSH処理後に残存するBT-CFTRの量をCFTRのバックグラウンドとして定義した(試料b。なお、これは図1Bに示されるように、すべての試料から差し引かれる別のバックグラウンドとは異なることに注意)。解析に含まれた実験では、バックグラウンドCFTRは6.7 ± 0.9%(平均±S.E.M.)であった。37 ºCで2.5、5.0、7.5、または10分間の加温後に得られたBT-CFTRの量から、バックグラウンドCFTRを差し引いた(試料cから試料bを減算)。CFTRのエンドサイトーシスは、バックグラウンドCFTRを差し引いた後の、2.5、5.0、7.5、または10分時点でのビオチン化が維持されたCFTRの割合として示した。CFTRのエンドサイトーシスは、ゼロから7.5分の間で直線的であった。全細胞溶解物(WCL)中のエズリンの量をローディングコントロールとして使用した。各群で4回の実験を実施。バックグラウンドCFTRが>10%であった実験は、GSH処理が不十分であったため除外した(D)。除外された実験におけるGSHコントロール(試料b)のビオチン化CFTRの量は14.5%であった。
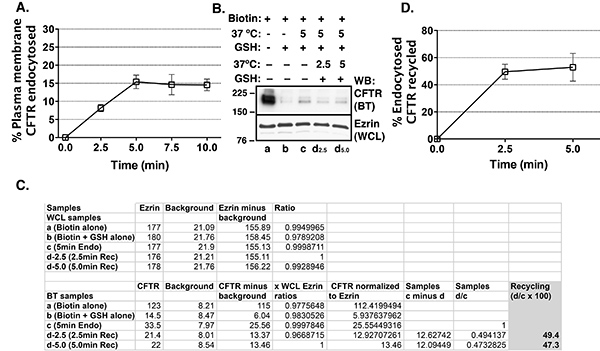
図2. CFTRを安定発現するHEK293細胞で行ったエンドサイトーシスおよびリサイクリングアッセイの概要。 細胞はコラーゲンコーティングした組織培養プレートで培養した。CFTRのエンドサイトーシスが0~5分の間で直線的であったことを示すデータのまとめ(A)。したがって、リサイクリングアッセイでは、エンドサイトーシス小胞に37 ºCで5分間加温することで、CFTRを含む生体素(BT)標識タンパク質を負荷した。タンパク質の発現量は、フィルムの線形動的範囲内の露光条件下で密度計測により定量した。代表的なウエスタンブロット(B)、代表的な密度計測値(C)、および時間経過に伴うCFTRリサイクリングを示す実験のまとめ(D)。時間ゼロでは、BT標識CFTRの量を100%とした(表2:サンプルa)。時間ゼロにおいて、GSH処理後に残存するBT標識CFTRの量は、CFTRのバックグラウンド値とした(サンプルb;なお、これは図Cに示されるようにすべてのサンプルから差し引かれるバックグラウンドとは異なることに注意)。バックグラウンドCFTRが>10%であった実験は、GSH処理が不十分と判断され除外した。エンドサイトーシス小胞へのBT標識タンパク質(CFTRを含む)の負荷は、37 ºCで5分間インキュベート後、細胞表面に残存するタンパク質の生体素をGSH処理により切断することで行った(サンプルcおよびd)。37 ºCで5分間加温後、GSH処理を行った時点のBT標識CFTRの量は、エンドサイトーシスされたCFTRを示す(サンプルc)。37 ºCで5分間加温後、最初のGSH処理を行った細胞をさらに37 ºCで2.5または5.0分間加温し、エンドサイトーシスされたタンパク質が細胞膜へリサイクリングするのを許容した後、リサイクリングしたCFTRの生体素を2回目のGSH処理により除去した(サンプルd)。この時点で、エンドソームから細胞膜へリサイクリングしなかったCFTRのみが生体素標識のままであった(サンプルd)。CFTRのリサイクリング量は、最初のGSH処理後のBT標識CFTR(サンプルc)と、2.5分または5.0分後の2回目のGSH処理後の値(サンプルd)との差として算出し、エンドサイトーシスされたCFTRの%として表した。CFTRのリサイクリングは急速であり、2.5分で最大に達した。全細胞溶解液(WCL)中のezrinの発現量をローディングコントロールとして用いた。各群で3回の実験を実施。
ディスカッション
エンドサイトーシスおよびリサイクルアッセイの成功は、原形質膜でのCFTRの効率的なビオチン化にかかっています。ビオチンは、NHS エステル部分が容易に加水分解され、反応性がなくなるため、使用直前に調製する必要があります。さらに、ビオチン化ステップでは、タンパク質の輸送を止めるために4°Cの厳密な温度制御が必要です。ビオチン化ステップ中に温度が上昇すると、4°Cを超えるとタンパク質輸送が発生し、さまざまな量のCFTRのビオチン化が発生する可能性があります。
エンドサイトーシスおよびリサイクルアッセイの成功は、原形質膜に残っているビオチン化CFTRのジスルフィド結合の効率的な還元にも依存します。GSH処理後にビオチン化されたままのCFTRの量は、タイムゼロでビオチン化CFTRの総量の<10%である必要があります。GSH対照サンプル中のビオチン化CFTRの量が >10%である実験は除外する必要があります。 図1Dは、GSHコントロールのビオチン化CFTRの量が14.5%であった「失敗した」実験を示しています。ビオチン化CFTR中のジスルフィド結合の不十分な還元は、実験中の温度制御の不十分に続発する可能性があります。GSH 処理中に温度が 4 ºC を超えると、タンパク質輸送が発生する可能性があり、意図しない温度上昇の結果としてエンドサイトーシスされたビオチン化 CFTR はバックグラウンド CFTR を増加させます。あるいは、ビオチン化CFTRにおけるジスルフィド結合の不十分な還元は、空気中の酸化または不適切なpHによって引き起こされる水溶液中のGSHの半減期の減少に起因する可能性があります。以前に決定されたように、GSHはpH 8.6で強力に緩衝されたままです4.私たちの経験では、GSHバッファーを使用した6回の15分間の処理により、ジスルフィド結合が90%以上減少し、1回の90分の処理よりも効率的に減少しました。
細胞培養には特別な注意が必要です。ビオチンは、目的のタンパク質が発現する無傷の細胞の原形質膜ドメインに到達する必要があります。ビオチン化に基づくエンドサイトーシスおよびリサイクルアッセイを使用して、頂端膜ドメインで発現するCFTRのエンドサイトーシスとリサイクルを研究しました。これらのアッセイは、半透性増殖支持体で培養された細胞の基底外側膜ドメインに位置するタンパク質のエンドサイトーシス輸送を研究するためにも使用できます。ビオチンとGSHバッファーは、頂端膜タンパク質を検出するために細胞の最上層にしか到達しないか、基底膜タンパク質を検出するために最下層にしか到達しないため、多層を形成する上皮細胞はこれらのアッセイには適していません。プラスチックで培養された上皮細胞は、アッセイ中に洗い流されやすい場合があります。実験中に細胞がランダムに失われると、結果が損なわれます。プラスチック組織培養皿で細胞を培養する実験では、顕微鏡下で単層の完全性を定期的に検査することをお勧めします。組織培養皿をコラーゲンでコーティングすると、細胞の接着性が向上する可能性があります。
ビオチン化タンパク質サンプルは、細胞内タンパク質による汚染について定期的に検査する必要があります。ビオチン化タンパク質サンプル中の細胞内タンパク質の検出は、WCLとのインキュベーション後のストレプトアビジンアガロース-ビオチン化タンパク質複合体の洗浄が不十分であることを示している可能性があります。したがって、最初のステップは洗浄効率を高めることです。さらに、原形質膜の完全性が損なわれている細胞が存在すると、細胞内タンパク質へのビオチンのアクセスが可能になります。小胞体などの細胞内コンパートメントでのみ発現するタンパク質のウェスタンブロッティングは、細胞内タンパク質のビオチン化を検出するために使用できます。あるいは、アクチンやエズリンなどの細胞骨格タンパク質を使用して、細胞内タンパク質によるビオチン化タンパク質サンプルの汚染を試験してもよい。細胞骨格タンパク質は膜貫通タンパク質と複合体を形成し、ビオチン化タンパク質サンプル中で少量の細胞骨格タンパク質が検出される場合があります。ただし、私たちの経験では、ビオチン化/WCLエズリンまたはアクチンの比率は<1:1,000であるため、これらのタンパク質は、ビオチン化ベースのアッセイにおける細胞膜の完全性の決定に適しています。
ビオチン化反応は、以前に報告されたように、グリシンまたはトリスで消光して、未反応のビオチン化試薬を除去することができる17。さらに、GSHはヨードアセトアミド6で急冷できます。私たちの経験では、未反応のビオチン化試薬とGSHは、急冷試薬を使用せずにPBS++で穏やかに洗浄することで効率的に除去できます。
ビオチン化タンパク質複合体を単離するためのストレプトアビジン とニュートラビジンアガロースの選択は、ケースバイケースで決定する必要があります。私たちの経験では、ストレプトアビジンアガロースは、非特異的結合がアッセイ結果を妨げるレベルで発生するニュートラビジンアガロースとは異なり、非ビオチン化タンパク質の結合を最小限に抑えてビオチン化タンパク質複合体を効率的に単離します(未発表の観察)。
開示事項
著者らは、競合する金銭的利益はないと宣言している。
謝辞
この研究は、米国国立衛生研究所(NIH)の助成金R01HL090767、R01HL090767-02S1、P30 DK06010、およびNepCure FoundationのEstablished Investigator New Direction Grant(A.S.-U.)の支援を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| CFBE41o- 細胞 | reference10,11,13,14,15 | ||
| HEK293 細胞 | reference13 | ||
| >Minimal Essential Medium (MEM) | Gibco | 11095 | |
| L-Glutamine | Cellgro | 25-005-CL | |
| Penicillin | Sigma | P0781 | |
| Streptomycin | |||
| ピューロマイシン | InvivoGen | ant-pr-1 | |
| PureCol ウシコラーゲン ソリューション タイプI | Advanced Biomatrix | 5005-B | |
| 培養試薬 | |||
| ダルベッコ'リン酸緩衝生理食塩水(PBS) | Gibco | 14190 | |
| 塩化カルシウム | Sigma | C3306 | |
| 塩化マグネシウム | Sigma | M2670 | |
| 塩化ナトリウム | Sigma | S3014 | |
| EZLink スルホ-NHS-SS-ビオチン | ピアス | 21331 | |
| L-グルタチオン還元 (GSH) | Σ | G6529 | |
| ストレプトアビジン-アガロース樹脂 | サーモフィッシャー | 20353 | |
| 水酸化ナトリウム | Σ | 224165 | |
| ウシ胎児血清 | ジェミニバイオサイエンス | 100-106 | |
| Milli-Q 水 | ミリポア | アドバンテージシステム | |
| HEPES | シグマ | H3375 | |
| トリトン X-100 | バイオラッド | 161-0407 | |
| グリセロール | フィッシャーサイエンティフィック | G33 | |
| Laemli サンプルバッファー | バイオラッド | 161-0737 | |
| ジチオスレイトール (DTT) | シグマ | 646563 | |
| コンプリートプロテアーゼ 阻害剤 カクテル | ロシュ | 1697498 | |
| ストレプトアビジン ビーズ | Thermo Scientific | 20353 | |
| 化学発光 | パーキン エルマー | NEL104001EA | |
| 試薬 | |||
| 脱脂粉乳 | カーネーション | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| トリス緩衝生理食塩水(TBS系) | BioRad | 170-6435 | |
| ウシ血清アルブミン (BSA) | Gibco | 15120 | |
| 一次および二次 | |||
| Western Blotting | |||
| Mouse monoclonal Anti-CFTR 596 | Cystic Fibrosis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| 用抗体 Anti-ezrin | |||
| ランニングバッファー 10x | BioRad | 161-0772 | |
| トランスファーバッファー 10x (SDSなし) | BioRad | 161-0771 | |
| メタノール | フィッシャー | A4129 | |
| コールターカウンター | ベックマンコールター | Z1コールター パーティクルカウンター | |
| スタンダードセル 培養機器 | |||
| UVライト | |||
| ストックフラスコ | |||
| トランズウェルフィルター-24mm | コーニング | 3412 | |
| 4 cm 細胞培養皿 | |||
| pHメーター | |||
| 15 mlおよび50 mlコニカルチューブ | |||
| 1.5 ml エッペンドルフ チューブ | |||
| ゴム 警官 | |||
| 冷蔵室 | |||
| アイス バケツと氷 | |||
| 27 G 針 | |||
| 37 & ordm;Cインキュベーター | |||
| 温度計 | |||
| ベンチトップ遠心分離機 | |||
| 冷却遠心分離機 | |||
| 泳動装置 | |||
| 開発者 | |||
| フィルム | GEアマシャム | 28-9068-36 | |
| PVDF膜 | Millipore | IPVH00010 | |
| ImageJソフトウェア | NIH |
参考文献
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
再版と許可
