カットオープンワセリンギャップアプローチは、高速チャネル動態の高解像度で、アフリカツメガエル卵母細胞で発現電位依存性イオンチャネルからのイオンおよびゲート電流の低ノイズの録音を得るために使用される。マイナーな変更を加えて、電圧クランプ蛍光法は、カットオープン卵母プロトコルに結合することができる。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
カットオープン卵母ワセリンギャップ(COVG)電圧クランプ技術は、卵母細胞における異種イオンチャネルの電気生理学的および動力学的特性の分析を可能にする。カットオープンセットアップからの記録は、低振幅ゲート電流、急速なイオン電流の活性化、および非アクティブ化を解決するために特に有用である。 2電極電圧クランプ(TEVC)技術上の主な利点は、増加したクランプ速度、改善された信号対雑音比、および細胞内および細胞外環境を調節する能力が挙げられる。
ここでは、人間の心臓のナトリウムチャネル(HNA V 1.5)を採用し、切り開い設定やプロトコルだけでなく、電圧クランプ蛍光測定機能を追加するために必要な変更を示すために、 アフリカツメガエル卵母細胞で発現。
このようなHNA V 1.5の速度で活性化イオンチャネルの特性は、完全にwhicで、TEVCを用いて室温付近では解決できないhは、卵母細胞膜の全体が電圧制御を困難にクランプされる。しかしながら、カットオープン技術では、細胞膜の小部分のみの単離は、パッチクランプ技術に関連するチャネルランダウンを防止しつつ、正確に速い反応速度を記録するために必要な迅速な締付けを可能にする。
COVG法、イオンチャネル動態及び電気生理学的特性に関連してさらにタンパク質の動きが細胞外に適用さフルオロフォア、遺伝的にコード化された蛍光タンパク質の挿入、または非天然アミノ酸の組込みのシステインコンジュゲーションを介して追跡される電圧クランプ蛍光法を用いてアッセイすることができる関心1の領域へ。この追加データは、蛍光分子を取り巻く微小環境の変化を介してタンパク質の電位依存性のコンホメーションの再編成についての速度論的な情報が得られます。
概要
特殊な電圧クランプ技法を制御膜電位におけるイオン電流の記録を可能にする。広く使用される2つの電極電圧クランプ(TEVC)およびパッチクランプ技術は、多くのイオンチャネルの電気生理学的特性に関する信頼できる情報を提供する。しかしながら、これらの方法の両方は、高速電位依存性ナトリウムチャネルおよびアフリカツメガエル卵母細胞のもののような膜における他の高速活性化チャネルに対する信頼性のあるデータの取得を妨げる欠点を有する。 Bezanillaとステファニー·ラボラトリーズは、結果的に卵母細胞2のカットのオープンワセリンギャップ電圧クランプ法(COVG)を開発しました。技術をNa +、K +、およびCa 2 +チャネル3-8を記録するために広く適用されている。
COVG記録中に、異種タンパク質を発現する卵母細胞膜は、3つの領域に分割されている。イオン電流のデータは次のように卵母細胞の上部領域から記録されている上部領域を取り囲む浴を容易かつ迅速に変更することができるコマンド電位にクランプされる。中間領域の頂部領域9と同電位にクランプされることにより、リーク電流を保護します。卵母細胞開度(カットオープン)サポニン溶液またはカニューレの使用を介して発生する場所底部領域である。化学的または底部領域での膜のマニュアル開はグランドにクランプされた内部電位の制御を可能にし、下部チャンバ溶液で細胞内部の連続をレンダリングする。上部チャンバー内の溶液交換は、外部環境を変えるのに対して、下室への解決策の灌流は、内部環境の特性を調整することができます。 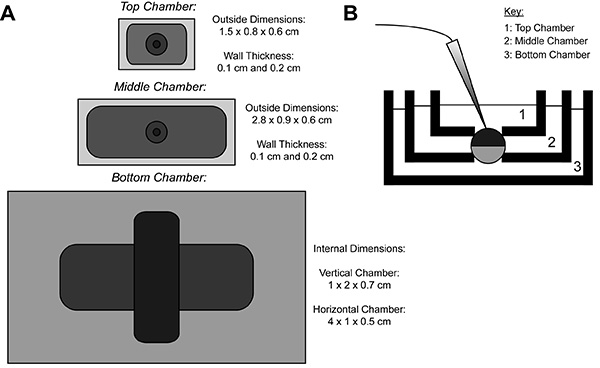
図1。卵母細胞のカット開放電圧クランプバースセットアップ図(A)トップ互いから分離された3つの浴のダウン図である。 COVG用チャンバーの寸法は、図に表示されます。 (B)試験位置にある風呂セットアップの側面図。 拡大画像を表示するには、ここをクリックしてください 。
COVG技術の利点は、低電流ノイズ(3 kHzでは1nA)、外部媒体のイオン組成、内部メディア、高速時間分解能(の減衰20-100秒の時定数を調節する能力の制御を含む容量過渡)、数時間9安定した録音。欠点は、それが特殊な装置を必要とし、2つの電極電圧クランプ(TEVC)10と比較して行うことはより困難であることである。
COVGアプローチは非常に特殊な装置や複雑な手順要素が必要ですが、それは貴重の取得を可能にすることができることができ、電気生理学的データ。このような高速の動態およびテール電流4に電流をゲートするように、このデータは、チャネルランダウンを含め、他の電圧クランププロトコルに関連する問題のいくつかがなく記録することができます。 COVGのセットアップへの軽微な変更は、温度コントローラと電圧クランプ蛍光法(VCF)の使用を可能にすることができる。 COVGアセンブリ内の電圧クランプ蛍光測定要素を含めることは、同時に、現在の11-13を記録しながら、タンパク質コンホメーション変化を監視する機能を付与することによりデータ出力を増大させることができる。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
1。初期の機器セットアップ
- 電気的および機械的ノイズを防ぐために、周囲のファラデーケージと振動絶縁システム( 例えば 、空気テーブル)上のステージと微小電極マニピュレータを配置します。
- 24 AWGワイヤの6インチの長さに6銀/塩化銀ペレットを半田付けします。これらの長さのいずれか(P1に接続される)は、「Y」を形成する第2の配線にスプライス。各ワイヤの端部にアンプに同梱された金のBNC端子は、はんだ付け。
- バス/ガードヘッドステージ(P1、P2、CC、GS1、およびGS2)に24 AWGワイヤに半田付け5銀/塩化銀ペレットを接続します。 「I」ヘッドステージとV2のヘッドステージにP1のオフに来て第2のワイヤに「I」銀/塩化銀ペレットを接続します。
- 装置説明書の指示に従って、データ収集ユニットにアンプを接続します。
- 置き、温度調節器サーミスタとエポキシ。金属scaffolの穴からブロックサーミスタスレッド直接加熱/冷却素子の中心より上dは。置き、非常に近いが、溶液に接触しない温度伝導下部チャンバーの本体に開けられた穴内の浴サーミスタとエポキシ。
2。卵母細胞と前準備
- このようなHNA V 1.5のような異種発現チャンネルを記録するには、(hSCN5a由来)mRNAを合成し、4〜5日間プロトコル4を実行する前に、 アフリカツメガエル卵母細胞に注入。 hSCN5aのために、ピークの発現は、19℃で4〜5日間培養した後に得られるリチャーズとDempski 14とCohen らを参照してください。15卵母細胞、mRNA調製し、卵母細胞注入の詳細な手順については。
- プロトコル4開始する前に、塩化銀ワイヤーと塩化銀ペレットを塩化。これを行うには、少なくとも20分間、漂白剤に一つのワイヤの端部ペレットを配置している限りO / NとしてペレットはクロリドされたらEDは、接着剤を使用してマニホールドに貼り付け。
注:ワイヤを通る電流を駆動すると、ワイヤ、ペレット塩化物に使用することができる。この技術は、chloridationの速度を増加させるだけでなく、より多くの機器を必要とする。さらに、命令16 銀線を塩化物化するための技術を参照してください。
3。寒天橋準備
- 中火でホウケイ酸キャピラリーチューブの一端を加熱することにより、少なくとも6つの寒天橋を作る。キャピラリーチューブの端が青い炎の上部にあることを確認してください。オリジナルの損傷の場合には、余分な橋を作る。
- キャピラリーチューブが加熱されると、チューブ内に90°の角度の曲がりを作るために鉗子を使用しています。滑らかな曲率で曲げるのではなく、急な角部を目指すか、有意に充填するがより困難になり、ブリッジの抵抗を増加させるガラスの内径を減少させることができる。
- 第90°曲げを作る同じ方向に第1の屈曲から毛細管ダウン25ミリメートル、同じ手順を使用して。
注:ブリッジの正確な長さであれば、ブリッジサイズが一貫しているように問題ありませんが、最終的には長さは、彼らが上で使用されるリグに適しているべきである。ブリッジ抵抗はその長さに比例し、最小限にすべきであることを覚えておいてください。 - 毛細管を冷却した後、約5ミリメートルにブリッジの「足」をトリミングするダイヤモンドチップ付きガラスカッターを使用しています。
- 寒天17の抵抗を減らすことでパフォーマンスを向上させるために3「通電」ブリッジのキャピラリーチューブに白金線の長さを挿入します。チューブの外側に露出なしワイヤーがないように、余分な白金線を切断。
注:ため、プラチナのコストが高いため、壊れた橋からの配線を取り出し、再利用する。 - このようなマイクロピペットtと実装、さらに先の細いキャピラリーチューブに白金線をプッシュ腹腔ワイヤが毛細管の両端のガラスよりも短い1mmであるように。
- HEPESの1.2グラムを用いて緩衝1MのNMDGの100ミリリットルを加えます。 pHメーターを使用し、7.4のpH(〜10グラム)が達成されるまでのMES水和物粉末を追加します。 7.4のpHに達した後、pH電極を除去する。ストレージソリューションとして維持するために確保溶液40mlを設定します。
- 2〜3%寒天混合物を製造する造粒寒天を追加する。寒天溶液が溶解して透明になるまで攪拌し、熱。過熱したり、過度に粘性や橋が困難になります充填になるように、解決策を沸騰させないでください。
- 新しいビーカーに寒天ソリューションを移動し、小さな撹拌棒を追加します。加熱中程度の速度で撹拌し続ける。
- キャピラリーブリッジを上に向けて足を一度に1を追加します。時間が経つにつれてブリッジは寒天でいっぱいになります。代わりに、小さなピペット先端に取り付けられたシリンジを用いて寒天ソリューションを押すことで、橋を埋める。
- 泡は、BRIではありませんしたら地区ガバナーエレクトは、寒天溶液から橋を取り出し、乾燥さペーパータオルの上に橋を置く。残留気泡を持つ任意のブリッジは、バブル出口を容易にするための鉗子で撹拌することができる。
注:泡定住寒天を完全に沸騰水中に浸漬することによって架橋を除去することができる。寒天が除去されると、残留水を除去するために真空ラインを使用する。ブリッジは、次いで寒天治療のために再利用することができる。 - ドライ橋から余分な寒天を削除します。 40ミリリットルご予約液に水60mlを加え、ストレージソリューションにブリッジを配置します。
4。カットオープンリグ準備
- 温度調節器のための水源と温度コントローラーに、電源スイッチをオンにします。お風呂の温度が所定の温度(19℃〜)に達するまで待ちます。
- 0.2〜0.5MΩの抵抗に微小電極プラーとホウケイ酸キャピラリーチューブから微小電極を引き出します。
注:下げるPIPディスケット抵抗は、クランプの速度が向上します。しかし、低い抵抗ピペットは、卵母細胞を損傷する可能性が高くなります。実験は、各アプリケーションのための最良のピペット抵抗値を決定する必要がある。 - 内部溶液50mlで乾燥サポニン0.125グラムを混合することにより、サポニン溶液を調製する。これは、0.25%の溶液につながる。混合する優しく反転。
- 解剖顕微鏡下で、非常に細いものと中間チャンバと上部チャンバの底部側の上面に穴の縁の周りにワセリンを少量適用する。
注意:ワセリンの「ドーナツ」は、穴の上の場所に卵母細胞を保つのを助けるとシールの形成を助けるでしょう。しかし、あまりにも多くのワセリンは、トラップの泡になり、卵母細胞の表面に到達するのソリューションを防ぐ。 - スロットからのオーバーフローが存在しないように銀/塩化銀ペレットを保持マニホールドスロットに3 M KCl溶液を追加したが、ペレットとブリッジ脚端は入り江です赤い。スロット間の不要な電気接続を防止するために余分のKCl液滴をクリーンアップします。
- 低·中入浴室に外部の溶液を加える。
- 橋ごとに1つの脚が各スロットになるように塩化銀ペレットマニホールド内のスロットに寒天ブリッジを配置します。ブリッジの他方の脚は後にそれぞれのチャンバに配置されます(P1、P2、CCトップ、GS1、GS2の真ん中(ガード)、私下)。白金線ブリッジはGS2、P2、およびIスロットにあることを確認してください。
注:ブリッジがチャンバー浴中に挿入する前に蒸留水と完全に乾燥で洗浄することを確認してください。 - データ収集システムとPCの電源を入れます。録音ソフトウェアを起動します。
5。カットオープン手順
- 卵母細胞なしでトップとミドル卵母室をインストールします。 2室の穴が重ならないように中心から外れ上部チャンバーをスライドさせます。外部溶液との全てのチャンバを記入し、それぞれのチャンバ内にすべての電極を配置。
注:チャンバーをインストールする際にすべての方法ダウン上部チャンバーを押さないでください。非常に小さな隙間が2室の間に残ることを確認してください。中心を外れた配置は、より良好な細胞の存在をシミュレートするためにチャンバシステムの抵抗を増大させる。 「橋のバランスを取る」と呼ばれるこのプロセスは、寒天橋の中の不均一性から生じる可能性のオフセット電位を補正します。- 外部コマンドとの両方のクランプをオフにします。アンプの現在の読みを確認してください。 Pはゼロ電流にバス/ガードヘッドステージの裏に小さなオフセットドライバーで調整してください。
- アクティブにアンプのバス/ガード·スイッチを切り替えて、ゼロ電流を得るために、オフセット、GSを調整します。
- どちらもゼロ(<100 NA)にかなり近いようになるまで「アクティブ」と「パッシブ」の間で繰り返します。
- 上部チャンバーを取り外し、ピペットポンプを使用して中間浴槽室に卵母細胞を移す。 oocyことを確認してくださいテ浴の中央の穴の上に配置される。
注意:VCFのため卵母細胞を調製する場合、上に向けて動物極(暗い側)をチャンバー内に標識された細胞を置く。 VCFが行われていない場合は、セルの向きは問わない。 - 卵母細胞および浴表面との間にシールを作成するために吸引器を用いたボトム風呂から過剰な外液を除去します。
- チャンバー内の穴が卵母細胞の上に中心になるように卵母細胞に対して最入浴室を配置します。親指と中指を使って、それは、卵母細胞に対してしっかり押されるまで孔を介して上部槽に膜のごく一部が露出するように、ゆっくりチャンバに圧力を適用するダウン。
注意:卵母細胞は、上部チャンバーからの圧力の下で膨らむことがあります。これは卵母細胞が破裂する原因になりますように、上部チャンバーに無理な力を加えないでください。上部チャンバーの対角に配置されたピンセット先端はAPPLに指の代わりとして使用することができますY下方圧力。 - 彼らはほぼ一杯になるまで上部と下部浴に外部溶液を加える。
- 図2(ブリッジの配置)に見られるように、各槽の外液に寒天橋の自由な足を置きます。各ブリッジは、正しいお風呂の場所で休んでいることを確認してください。 (上のお風呂の一番下の真ん中のお風呂での入浴、GS1とGS2ブリッジ、P1、P2、およびCCブリッジのI橋)。アクティブにアンプのバス/ガード·スイッチを切り替えます。
注:ブリッジ、彼らの井戸、記録室の間には、3MのKCl接続がないことを確認してください。さらに、それらを記録チャンバー·ソリューション上に上昇しているように、ブリッジが作られていることを確認します。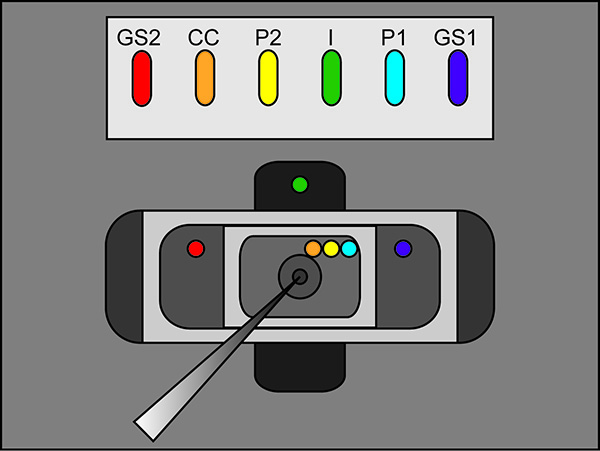
図2。寒天橋の自由端の寒天橋設置場所図は配置位置様々な浴中。 拡大画像を表示するには、ここをクリックしてください 。 - レコーディングソフトウェアで試験プロトコルを開始します。パルスがNA(パッシブでのバス/ガード0.3MΩに相当)が風呂カバーの気密性を高める100以上である100 mVのパルスを印加する際に2つのピーク間の水平部分の垂直方向の変位を示しています。理想的なテストパルスの例については、 図3を参照してください。
注:テストプロトコルは、バスカバーが十分にタイトであり、すべてのコンポーネントが正しく組み立てられているかどうかを確認するために電圧パルスを発する。あるいは、増幅器のテスト機能を使用することができる。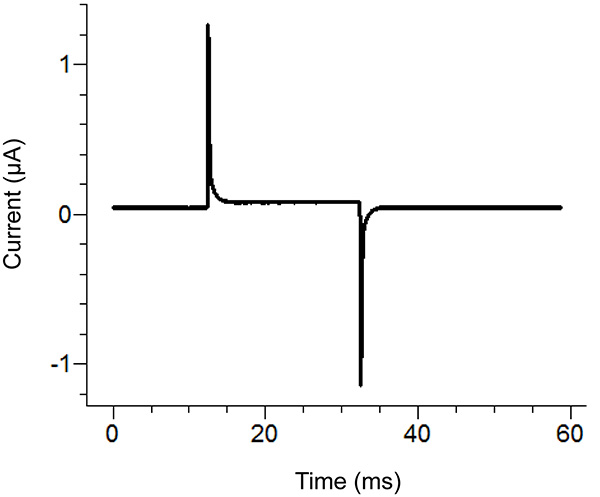
図3。レコーディングソフトウェアからの理想的なテストパルス。テストパルス適用プロトコルに応じて、上記パルスのようになります。保持電流(中央のベースライン)は、ゼロに近くなければなりません。 拡大画像を表示するには、ここをクリックしてください 。 - 下のお風呂に外部溶液を除去し、サポニン溶液と交換してください。サポニンを追加しているときに気泡を作成しないように注意してください。溶液を添加しながら、最大限の交換を確保するために、下のお風呂の反対側の端に吸引を適用します。
- サポニン溶液を添加した後、反復試験パルスを観察する。試験プロトコルのピークが減少または消失する場合、これは、卵母細胞の下に位置する気泡があるという印である。この場合、完全にサポニン溶液を除去し、それを交換してください。
注:透過処理は、一般的に、新鮮なサポニン溶液で30秒以内に完了します。閉じ込められた気泡が存在する場合の溶液は、細胞に到達する困難性を有していてもよいまたは濾胞層が不完全に消化された卵母細胞に残っている場合。電圧スパイクの傾きは(減衰の時定数の増加)を減少すると、卵母細胞は、(開)透過性にされている。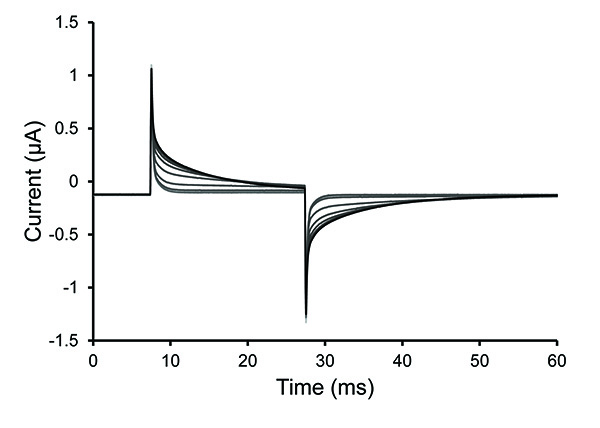
図4。試験パルスは、卵母細胞透過処理の間にトレースする。試験パルスプロトコルから選択されてトレースを0.25%サポニン溶液が底卵母細胞チャンバに導入した後。トレースで見られる減衰の時定数の増加は、卵母細胞の透過性の増加を示しています。 拡大画像を表示するには、ここをクリックしてください 。 - セルが透過処理された後、サポニン溶液を除去し、内部液でお風呂を埋める。試験プロトコルを停止します。
注意:サポニンがアクセスすることができたとしても膜透過性により、細胞の内部には、下バス、拡散による卵母細胞の細胞質の間のイオン濃度の平衡化は、非常にゆっくりとしたプロセスである。このプロセスは、( 図5)の条件に応じて数十分を要することができる。 - 浴場内の溶液のいずれか高いレベルをチェックし、これらが短絡し、不安定な動作の原因となりますのでマニホールドのウェル間のKClを結晶化した。
- 微小電極に3男のKClを注入するように変更された注射器を使用してください。他の指でブレースながら1本の指で微小電極を数回フリック。
注:このステップは、微小電極内の任意の閉じ込められた気泡を除去するために必要とされる。 - オープン微小電極先端にワイヤーフィラメントを挿入することにより、マイクロマニピュレータアームに塩化カリウムで満たされた電極をマウントします。フィラメントホルダーに微小電極の端を押して、電極が緩んでいないことを確認してください。電極ファスナーを締めます。
注:馬電極が正常に機能するために、ワイヤがあっても塩化銀コーティングされていることを確認しKE。 - 卵母浴場上の位置に、スイングアーム、さらに腕の動きを防ぐために、クランプを締めます。
- マニピュレータのノブを使って、お風呂に電極を歩く。全くテストパルスを印加しないと膜検査機能は、この時点で活性化されていないということを確認してください。
注:電極先端が液体内に挿入される前に、V1-V2は、電圧クランプに正の電圧を読み取る。電極先端が液体の中に挿入されると、電圧クランプの電圧計はゼロに近い値に変更する必要があります。 VCFの記録のために、電極は、客観的な余地を残すために、かなり浅い角度でセルにアプローチする必要があります。オフセンター電極を細胞に突き刺し、孤立した膜パッチのエッジ付近は、電極の対物の衝突を回避するのに役立ちます。 - 電極を歩いて停止します。オフセット電極を設定V1ボタンを押し、次いでV1を調整することによってゼロにV1の電圧を低減することによってゼロに電位がオフセット。また、V2の同じ調整を行う。電位差V1-V2は000 mVにをお読みください。
- 戻ってV1に切り替えて、電極抵抗を測定するために、Zテストを回す。値が徐々に低下し、実際の抵抗に近づく。 0.2〜0.5MΩの抵抗値を目指す。
- トップ浴中の卵母細胞の可視パッチに向けて電極を歩いて続行します。微小電極を卵母細胞に非常に近いと、電極が卵母細胞に入ると、V1-V2の読みが見て見て、微小電極が細胞に入ると、V1-V2電圧が負になります。
注:この時点で表示された値は、細胞の膜電位であり発現チャネルおよび使用される溶液によって影響される。遠く微小電極を挿入すると、細胞膜にダメージを与えます。 - データ収集プロトコルを開きレコーディングソフトウェア。
- 電圧クランプのクランプスイッチを反転し、「I」ヘッドステージ上にあるつまみを調整することで、コマンド( 例えば -100 MV)を一致させる可能性を調整します。
- 静電容量と抵抗補償スイッチをオンに反転します。
- "テスト"、電圧クランプの「コマンド」領域で上のスイッチを入れる。信号を視覚化するために、オシロスコープを使用しています。オシロスコープ上の容量のトランジェントを減らすためのシグナル·コンディショニング·セグメントにCmを補償ノブを調整します。追加の逆ピークが発生した場合、またはピークが記録にアーティファクトを導入することができる、S字状の湾曲を開発し始めるポイントにピークを補うオーバーしないでください。
- 容量は手動で満足できるレベルまで低減されると、テストスイッチをオフにしてください。
- 記録ソフトウェアでデータ記録·プロトコルを開始する。
6。クリーンアップ
- 録音は蜂を持っている場合N完了し、クランプとバス/保護スイッチを含む電圧クランプのすべての種々のスイッチをオフにしてください。
- 様々な浴から寒天橋を取り除くために鉗子を使用してください。
- トップ浴を取り除き、全てのバスからのすべてのソリューションや卵母細胞を吸引する。
- すべてのバスを洗い流してから、真空で風呂を吸引する脱イオン水のボトルを使用してください。このステップ3-5Xを繰り返します。
- 橋から結晶化した塩化カリウムを拭くとストレージソリューションにブリッジを配置します。ブリッジは限りが適切に保存されているように何週間も再利用できます。
- マニホールドウェルからKCl溶液を吸引し、脱イオン水で数回すすぎマニホールド。
- 温度制御とレコーディングソフトウェアを含むすべての様々な機器の電源をオフにします。
7。電圧クランプ蛍光測定の追加
- 以前に公開されたJoveのプロトコル16 Eに6を通じて第1の手順に従ってください部位特異的蛍光ラベル化したその場で膜タンパク質のコンフォメーションダイナミックスをxamining: ページを表示するには、ここをクリックしてください。
- 4X焦点に設定VCF顕微鏡を用いて、前述のCOVGプロトコルの5.22を通じて第4節の手順を実行します。
注意:VCFの記録がCOVG測定で必要とされるよりも、より大きな卵母浴室を必要とする。 (カスタムVCF室の寸法は、材料のリストにあります。)この大きなVCF室が同時に対物レンズ、微小電極、および寒天橋を収容することができなければならない。さらに、動物極(卵母細胞のダークサイド)は、低バックグラウンドのVCF記録のためにチャンバー内を上向きにする必要があります。 - 水浸対物レンズ40倍を使用して焦点に、卵母細胞の上部を持って来る。
注意:対物レンズ40倍に4倍から切り替えると、特定のGEが必要ですカットオープンコンポーネントと細心の注意のometry 40X目標を下げたとき、電極、ブリッジ、またはチャンバをヒットしないように。さらに、原因のトップガード増加のボリュームに、40倍の対物レンズを所定の位置に設定されている場合、トップガードからのバスボリュームはミドルガードに接続されていないことを確認してください。 - 卵母細胞の最上部がわずかに焦点面より上になるように、公開される卵母細胞表面の周囲のリングに焦点を当てています。
注視野は主に、膜ではなく、チャンバが充填されているように、xy面での調整が必要であり得る。 XY変換が最も容易並進ステージ上に顕微鏡を配置することによって達成される。 - 光路にフィルターキューブを移動し、検出器(ダイオード)に接眼レンズからの光路を切り替える。
- VCF光源をオンにします。
- 頭上の照明、ファイバー光照明、および他の光源をオフにします。
注:理想的には、VCF録音は完全に暗い部屋で行われるべきである。 - レコーディングソフトウェアで蛍光プロトコルを実行します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
図4のディスプレイは、サポニン溶液として卵母細胞の透過性の変化は、卵母細胞の底部に印加される。5サポニン透過化以下の拡散によって細胞内液交換の速度を示している図 。 20〜40分は、定常状態の2,18に来るために必要とされています。
記録プロトコルから生成された図6aショートレースします。図は、電圧プロトコル(挿入図)に応じて、イオン電流(P/-8リーク減算後)を示している。図中の各トレースは、異なる印加電圧を表す。最も遅い速度論とトレースはナトリウムチャネルを開くことができる最低の電位を表しています。内向き電流は、膜を脱分極するため、通常、伝統的な方法を用いて、これらの電位が低いために電圧制御を維持することは困難である。今度はこの脱分極は、正のフィードバックループを作成する複数のチャネルを活性化する 。カットのオープン技術の改良されたクランプ速度があってもこのような困難な電位でチャネルを記録するのに必要な電圧制...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
カットオープン卵母細胞ワセリンギャップ電圧クランプ法は、データの迅速な解決を可能にし、低ノイズで、比較的長いプロトコル19に係る内部液と外液組成を制御し、安定した録画を増加させた。これらの利点は別として標準の2電極電圧クランプおよびパッチクランプ技術から、この手法を設定してください。特殊な装置が必要であり、プロトコルが比較的困難であるされていますが、システムが最適化された後、非常にいくつかの問題が発生します。これは、ナトリウム(HNA V 1.5)と、他の高速活性化チャネルの再現性のある録音が可能になります。
プロトコルの中で最も重要なステップは、V1電極と卵母細胞と串刺しに上部チャンバーの配置である。細胞および室孔の縁部との間のシールの気密性は、記録品質に大きな影響を有する。上部チャンバーは、可能な限り最高の再を実現するために、セルを下にプッシュする必要があります卵母細胞にダメージを与えることなくsistance。これは、卵母細胞の膨らみを作る必要とし、フラット化が、細胞質の経験と配慮が破裂を防止するための最適な圧力を決定するために必要...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは、開示することは何もありません。
謝辞
セントルイス心臓分子工学研究所のワシントン大学のすべてのメンバー。 (JSに)1010299 - バロウズは科学的なインターフェイスで、基金のキャリア賞を歓迎します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 外部ソリューション | ブランド | カタログ番号 | [最終]、重量、または容量 |
| N-メチル-D-グルカミン (NMDG) | Sigma-Aldrich | M2004 | 25mM |
| MES ナトリウム塩 | Sigma-Aldrich | M5057 | 90mM |
| HEPES | 研究製品 International | H75030 | 20mM |
| 水酸化カルシウム | Sigma-Aldrich | 239232 | 2mM |
| MES ハイドレート | Sigma-Aldrich | M8250 | 変数 (pH から 7.4) |
| 内部溶液 | |||
| N-メチル-D-グルカミン (NMDG) | Sigma-Aldrich | M2004 | 105mM |
| MES ナトリウム塩 | Sigma-Aldrich | M5057 | 10mM |
| HEPES | 研究製品インターナショナル | H75030 | 20mM |
| エチレングリコール-ビス(2-アミノエチルエーテル)-N,N,N',N'-四酢酸 (EGTA) | Sigma-Aldrich | E4378 | 2mM |
| MES 水和物 | Sigma-Aldrich | M8250 | 可変 (pH 7.4) |
| 脱分極液 | |||
| KCl | Sigma-Aldrich | 221473 | 110mM |
| 塩化マグネシウム | Sigma-Aldrich | M8266 | 1.5mM |
| 塩化カルシウム | ケーソン | C021 | 0.8mM |
| HEPES | 研究製品 インターナショナル | H75030 | 10mM |
| ピペット溶液 | |||
| KCl | Sigma-Aldrich | 221473 | 3M |
| サポニン溶液 | |||
| サポニン | Sigma-Aldrich | 47036 | 0.125g |
| 内部溶液 | 参照 | 50mL | |
| 寒天ブリッジ溶液 | |||
| N-メチル-D-グルカミン (NMDG) | Sigma-Aldrich | M2004 | 100ml 1M |
| HEPES | 研究製品 インターナショナル | H75030 | 1.2g |
| MES ハイドレート | Sigma-Aldrich | M8250 | 変数 (pH 7.4) |
| 顆粒寒天 | 研究製品国際 | A20250 | 3% |
| NMDG貯蔵溶液 | |||
| NMDG、HEPES、MES、水和物溶液 | 上記 | 40ml | |
| 水 | 60ml | ||
| 材料/機器の名前 | 会社 | カタログ番号 | コメント/説明 |
| 高性能卵子クランプ | ダガン | CA-1B | |
| データ取得システム | Axon CNS | Digidata 1440A | |
| オシロスコープ | Tektronix | TDS 210 | |
| ラックパワー | フィルターAPC | G5 | |
| 加熱/冷却バス温度コントローラー | Dagan | HCC-100A | |
| PC | Dell | Optiplex 990 | |
| pCLAMP 10.3 Voltage Clamp Software | Molecular Devices, LLC | pCLAMP10.3 | |
| TMC 振動制御卓上プラットフォーム | TMC | 64 SERIES | |
| TMC 振動制御エアテーブル | TMC | 20シリーズ | |
| V1/I電極データコレクタ | CA-1B | ||
| MX10Lマイクロマニピュレータ | Siskiyou | MX10L | |
| バス/ガード(I / V) ヘッドステージ(適切なコネクタ付き) | CA-1B | ダガン | |
| オマノ | OM2300S-JW11 | ||
| 温度制御バス | カスタムまたはダガン | カスタムまたはHE-204C | Cool Polymers(Dシリーズ)の材料で作られたカスタムチャンバー。ダガンはまた、プレフェブリケーテッドステージ(HE-204C)を提供しています。 |
| カスタムAgClペレット容器 | カスタム | カスタム | 加工 |
| カスタム加工 Ag/AgCl電極、ペレット、2.0mm | ワーナーE-206 | ||
| 外部卵子バス | カスタムまたはダガン | カスタムまたはCC-1-T-LB | ダガンからカスタム加工または購入 |
| 内部卵子バス | カスタムまたはダガン | カスタムまたはCC-TG-ND | ガン |
| からカスタム加工または購入寒天ブリッジおよびプル電極用キャピラリー | ワー | ナーG150T-4 | |
| 顕微鏡、マイクロマニピュレーター、バス用回転マウント | シスキユー | SD-1280P | |
| ファイバーライト | ドーラン・ジェンナー | LMI-600 | |
| レギュラーブリーチ | クロロックス | 470174-764 | |
| Xenopus laevis 卵子 | Nasco | LM535M (性的に成熟した女性) | |
| 90 Na+ 外部ソリューション | ソリューション シート | ||
| 10 Na+ 内部ソリューション | シート | ||
| 3 M KCL | ソリューション シート | ||
| Saponin | Sigma-Aldrich | 47036 | |
| NMDG ストレージ ソリューション | シート | ||
| 5mLトランスファーピペット | SciMart | GS-52 | |
| 改質KCl電極インジェクター | BD | 309659 | プラスチックシリンジの先端を溶かして電極に溶液を注入できるようにしました。また、WPIのMicrofilを購入することもできます。 |
| Microvaccum | カスタム | カスタム | |
| 鉗子 | VWR63040-458 | ||
| 卵子ハンドリングツール(ピペットポンプ) | VWR53502-222 | ||
| イオン水噴出ボトル | VWR16649-911 | ||
| ワセリンワセリンフィッシャー | サイエンティフィック | 19-086-291 | |
| VCF記録に必要な追加材料: | |||
| VCF顕微鏡 | Nikon | Eclipse FN1 | |
| Nikon CFI APO 40XW NIR 対物レンズ | Nikon N40X-NIR | ||
| X-Y 固定ステージ直立顕微鏡用トランスレーターシステム | Sutter Instruments | MT500-586 | |
| External VCF Oocyte Bath | Custom | カスタム加工。チャンバーの寸法は2.7 x 1.9 x 0.4 cmです。 | |
| 内部VCF卵母細胞バス | カスタム | カスタム機械加工。チャンバーの寸法は1.6 x 1.6 x 0.4 cmです。 | |
| 改良型温度制御バス | カスタムカスタムチャンバーは、クールポリマー(Dシリーズ)の材料で作られています。変更された温度調節器の浴室の寸法は、水平チャンバーが2.7 x 1.9 x 0.3 cm、垂直チャンバーが1 x 2.5 x 0.5 cmです。 |
参考文献
- Kalstrup, T., Blunck, R. Dynamics of internal pore opening in KV channels probed by a fluorescent unnatural amino acid. Proc. Natl. Acad. Sci. U.S.A. 110, 8272-8277 (2013).
- Stefani, E., Bezanilla, F. Cut-open oocyte voltage-clamp technique. Methods Enzymol. 293, 300-318 (1998).
- Muroi, Y., Chanda, B. Local anesthetics disrupt energetic coupling between the voltage-sensing segments of a sodium channel. J. Gen. Physiol. 133, 1-15 (2009).
- Stefani, E., Toro, L., Perozo, E., Bezanilla, F. Gating of Shaker K+ channels: I. Ionic and gating currents. Biophys. J. 66, 996-1010 (1994).
- Wang, S., Liu, S., Morales, M. J., Strauss, H. C., Rasmusson, R. L. A quantitative analysis of the activation and inactivation kinetics of HERG expressed in Xenopus oocytes. J. Physiolt. 502 (Pt 1), 45-60 (1997).
- Neely, A., Garcia-Olivares, J., Voswinkel, S., Horstkott, H., Hidalgo, P. Folding of active calcium channel beta(1b) -subunit by size-exclusion chromatography and its role on channel function. J. Biol. Chem. 279, 21689-21694 (2004).
- Silva, J. R., Goldstein, S. A. Voltage-sensor movements describe slow inactivation of voltage-gated sodium channels I: wild-type skeletal muscle. Na(V)1.4. J. Gen. Physiol. 141, 309-321 (2013).
- Silva, J. R., Goldstein, S. A. Voltage-sensor movements describe slow inactivation of voltage-gated sodium channels II: a periodic paralysis mutation in Na(V)1.4 (L689I). J. Gen. Physiol. 141, 323-334 (2013).
- Taglialatela, M., Toro, L., Stefani, E. Novel voltage clamp to record small, fast currents from ion channels expressed in Xenopus oocytes. Biophys. J. 61, 78-82 (1992).
- Clare, J. J., Trezise, D. J. Expression and analysis of recombinant ion channels : from structural studies to pharmacological screening. , Wiley-VCH. (2006).
- Susan, G. A. Methods in enzymology. 296, Academic Press. 566-578 (1998).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. 3rd edn. , Springer. (2006).
- Cha, A., Bezanilla, F. Characterizing voltage-dependent conformational changes in the Shaker K+ channel with fluorescence. Neuron. 19, 1127-1140 (1997).
- Richards, R., Dempski, R. E. Examining the conformational dynamics of membrane proteins in situ with site-directed fluorescence labeling. J. Vis. Exp. , (2011).
- Cohen, S., Au, S., Pante, N. Microinjection of Xenopus laevis oocytes. J. Vis. Exp. , (2009).
- Techniques for Chloriding Silver Wires. , Available from: http://www.warneronline.com/pdf/whitepapers/chloriding_wire.pdf (1999).
- Raynauld, J. P., Laviolette, J. R. The silver-silver chloride electrode: a possible generator of offset voltages and currents. J. Neurosci. Methods. 19, 249-255 (1987).
- Gagnon, D. G., Bissonnette, P., Lapointe, J. Y. Identification of a disulfide bridge linking the fourth and the seventh extracellular loops of the Na+/glucose cotransporter. J. Gen. Physiol. 127, 145-158 (2006).
- Pantazis, A., Olcese, R. Cut-Open Oocyte Voltage-Clamp Technique. In: Roberts G. (Ed.) Encyclopedia of Biophysics: SpringerReference. Roberts, G. , Springer-Verlag Berlin Heidelberg. New York. (2013).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
