肺炎球菌は、重症市中肺炎、世界中200万人以上の死亡の原因を引き起こす主要な病原体である。フィットネスまたは病原性に関与する細菌性因子の影響は、生物発光細菌を用いて、マウスの急性肺炎または菌血症モデルにおいてリアルタイムでモニターすることができる。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
肺炎は、開発における主要なヘルスケアの問題や先進国の一つであり、かなりの罹患率と死亡率と関連している。この病気の知識、集中治療室(ICU)のアベイラビリティ、および強力な抗菌剤で効果的なワクチンの使用の進歩にもかかわらず、死亡率は1高止まり。 肺炎球菌は市中肺炎(CAP)の主要病原体であるおよびヒトにおける菌血症の最も一般的な原因の1。この病原体は、表面に露出した付着因子と肺炎や侵襲性肺炎球菌疾患(IPD)に貢献する毒性因子の装備一式が装備されています。細菌の毒性因子又は適応度のインビボでの役割の評価は、S.を解明するために最も重要である肺炎病原性メカニズム。肺炎、菌血症、および髄膜炎のマウスモデルは、DIFにおける肺炎球菌の因子の影響を決定するために使用されている感染の段階をferent。ここでは、鼻腔内、または生物発光細菌による腹腔内感染後のマウスでのリアルタイム肺炎球菌普及に監視するためのプロトコルを記述します。その結果、撮像システム及び添付分析ソフトウェアを用いて視覚化し、評価することができる下気道および血液中の乗算と肺炎球菌の普及を示す。
概要
ウイルスや細菌によって引き起こされる気道感染症は、世界中のすべての死の約3分の1を引き起こし、世界中の最も一般的な市中または臨床的問題の1つとなっています。キー細菌種は、 インフルエンザ菌と肺炎球菌 2である。しかし、これらの細菌種は、通常、自然な気道内細菌叢の一般的な構成要素である。このように、細菌の送料は侵襲性疾患および免疫状態や個人の素因に依存するため、特定の危険性もある。無症候性の保菌は、侵襲性感染症にトリガされます。 肺炎球菌は、市中肺炎(CAP)およびヒトにおける菌血症の最も一般的な原因の1の主要な病原体である。健常者におけるS.肺炎球菌 (肺炎球菌)は、多くの場合、彼らは非病原性細菌に直面している上気道の無症候性および無害植民ですだけでなく、 ヘモフィルス属などの病原体と常在菌叢の。または黄色ブドウ球菌とヒトの免疫防御システムの最初の行。キャリッジ率は幼児で最も高い(37%)と3-5(58%)混雑したデイケアセンター内でさらに高い。最年少の人口と高齢者は、担体及び鼻咽頭分泌物6からのエアゾール変速機を介して肺炎を受け、肺炎球菌コンジュゲートワクチン(成人では、子供と23価多糖PPSV23におけるPCV10またはPCV13)のいずれかを使用して、高リスク群とワクチン接種に属しアメリカ合衆国(米国)、多くの欧州諸国4で推奨されている。格納容器は、小児の最も一般的な血清型をカバーしながら、PPSV23は、成人では効率的に侵襲性肺炎球菌疾患(IPD)の防止、米国と欧州の菌血症肺炎球菌疾患の約90%を占める血清型をカバーしています。その結果、IPDは、ワクチンの種類(VT)にREDUです高病原性の可能性や抗生物質耐性を表示するCEDが、nonvaccine血清型が4,7-12浮上している。リザーバとして咽頭は、有害なローカル感染を開始する副鼻腔や中耳に広めるために肺炎球菌の出発点である。さらに重要なのは、肺炎球菌は、生命を脅かすCAP 4,13結果気管支や肺に気道から直接広がった。肺感染症は、多くの場合、このように血液中に広めるために、病原体を可能にし、IPDを引き起こし、組織およびバリア破壊に伴う。 CAPとIPDの発生率は、免疫不全の人で、年齢4,13の極値で最も高い。高病原性と病原体への共生の変換を担う状況が議論中である。しかし、より高い毒性および抗生物質耐性の増加を伴う宿主の感受性および進化適応の変化の他にPNEに決定的な影響を有することが示唆されているumococcal感染14〜16。
病原体は、上皮細胞の粘膜の密接な接触を仲介する付着因子の多様性に恵まれている。気道粘液を乗り越えた後、宿主細胞への肺炎球菌の付着は、細胞受容体との表面露出アドヘシンの直接的な相互作用を介して分子の4,17,18を架橋するように細胞外マトリックス成 分または血清タンパク質を利用することによって促進される。としての汎用性の高い病原体の肺炎球菌も宿主の免疫防御機構の回避に関与する因子を完備しています。さらに、それらは、それぞれ、肺、血液、および脳脊髄液(CSF)、5,17,19,20等の種々の宿主的環境に適応する能力を有する。
病因および炎症応答ホスト上の細菌の要因の影響は、肺炎、菌血症、髄膜炎または21〜25の実験動物モデルにおいて調査されている。ヒトの病原体であるにもかかわらず、これらのモデルは、我々はLL-確立肺炎球菌組織向性、病原性のメカニズム、または肺炎球菌ワクチン候補の保護性を解読する。近交系マウス系統の遺伝的背景は、肺炎球菌に対する感受性を決定します。 CBA / CaおよびSJLマウスは、肺炎球菌感染22に対してより感受性あったが、鼻腔内肺炎球菌に感染したBALB / cマウスを、耐性であることが見出された。これは、ヒト、遺伝的背景および宿主防御機構と同様の感染の結果を決定する、ことを意味する。したがって、さらなる努力が肺炎球菌感染症に対してより感受性マウスのゲノムに耐性座を解明するために必要である。知見は、 インビボ病原性プロトコルの変更につながっている。代わりに、多くの場合、過去に使用された近交系BALB / cマウスの、非常に敏感CD-1/MF1近交系マウス系統は、今日では、多くの場合、機能喪失肺炎球菌、病原性や適性26-28因子の影響を研究するために使用されています。また、可用性生物発光肺炎球菌および光学イメージング技術の感染症のリアルタイム生物発光バイオイメージングが可能になる。肺炎球菌では、最適化されたluxABCDE遺伝子カセット(プラスミドポール·Tnは4001たluxABCDEのKm r)は 、トランスポゾン突然変異誘発により染色体の単一の組み込み部位に挿入されている。生物発光肺炎球菌は病原性または適性の要因別26,28-31に1解剖学的部位からの転座を欠損肺炎球菌の変異体の減衰を評価するために使用されてきた。
ここでは、マウスの肺炎や敗血症モデルにおける肺炎球菌感染症のバイオイメージングのためのプロトコルを提供する。鼻腔内または腹腔内に感染させたマウスにおける増幅および生物発光肺炎球菌の普及が容易に異なる時点で撮像光学系と同じ動物を用いて経時的にモニターすることができる。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
ここで説明した動物感染実験は、脊椎動物動物の使用のために( 例えば実験動物学協会連合会の欧州衛生法(FELASA))のガイドラインや規制のローカルおよび国際的に厳密に従って実行する必要があります。実験は、地域の倫理委員会および動物実験委員会によって承認されなければならない。 Sにすべての実験実験室または動物の感染症、肺炎は、クラスIIバイオセーフティキャビネットで行われている。
1。生物発光Pneumococociの感染株式の準備
- 80℃(w / v)の酵母抽出物および保守のための20%グリセロールの最終濃度が1%を補充したトッド - ヒューイットブロス中の肺炎球菌株の培養物を調製
- 血液寒天プレート上に冷凍ストック肺炎球菌培養物の少量をプレートし、5%CO 2中37℃で10時間、細菌を培養する。 T彼血液寒天プレートがゲノムにたluxABCDE遺伝子カセットのトランスポゾン挿入のためのカナマイシン(150μg/ ml)を、適 切な抗生物質を含んでいます。
- 10時間の最大のための新しい血液寒天プレート上に新鮮なコロニーをサブ養う。
- 肺炎球菌とのウシ胎児血清(FBS)不活性化(v / v)の熱(56℃で30分)10%を補充したTHY培地に接種し、OD 600で0.05〜0.07の培養を開始。
- 培養がOD 0.35から0.40の600に到達するまで37℃で攪拌しながら、5%のCO 2なしで肺炎球菌を培養する。成長は3-4時間の間がかかります。
- 10分間3,750×gでの遠心分離によって収穫肺炎球菌および0.5%FBSを補充したリン酸緩衝生理食塩水pH7.4(PBS)中で生物発光肺炎球菌を再懸濁。
- PBS/10%FBS中で所望の濃度に接種材料を調整します。感染量は、使用肺炎球菌菌株とマイクの遺伝的背景に依存E。 Sで鼻腔内に異系交配CD-1マウスに感染させるために肺炎球菌 D39は、感染量は90単位ヒアルロニダーゼを補充した20μLの懸濁液中に1×10 7 CFUに調整する必要がありルクス 。これは自己分解をトリガーするため、肺炎球菌を振ったりボルテックスしないでください。
- 5%CO 2中37℃で一晩増殖させた後、血液寒天とコロニーの計数に10倍連続希釈をメッキすることにより接種濃度を確認してください。
- 光学撮像系を用いて生物発光を測定することにより、肺炎球菌の接種材料生物発光を確認する。
2。生物発光肺炎球菌による鼻腔内およびマウスの腹腔内感染
- 急性肺炎と敗血症モデルのために7月10日週の時代にメス交配マウスを使用してください。これらのマウスの重量は20〜30の間でGでなければなりません。
- ケタミンおよびキシラジンの腹腔内注射によりマウスを麻酔。混合物1.0 mgの準備100μlの滅菌0.9%ケタミンおよびキシラジン0.1mgの20グラムの体重を有するマウスについて(w / v)の塩化ナトリウム。これは、ケタミンおよびキシラジン5 mg / kg体重、50 mg / kg体重の用量と一致する。正確には、麻酔剤の注射前に、マウスを秤量する。
- 腹腔に混合物を注入し、麻酔薬が作用して、動物は、麻酔になるまでバックケージに動物を配置します。マウスの呼吸が非常に遅く、定期的になります。マウスは、細菌懸濁液の鼻腔内接種及び吸入が、それゆえ、くしゃみやで接種物の損失を生じないように、十分に麻酔しなければならない。これは、それらの尾の端にマウスを挟持することによって評価することができ、完全に麻酔したマウスでは応答性を欠くであろう。
- 優しく麻酔したマウスをピックアップし、アップライト( 図1)鼻と指と親指の間でマウスを押したままにします。
- 細長いチップ(ジェル·ローダーによるピペットを使用してくださいTIPS)とマウス26〜29の鼻孔(10μL/鼻孔)の上に複数の小滴中の生物発光肺炎球菌をドロップします。マウスが思わず菌を吸入します。直立マウス1〜2分間保持し、マウスがくしゃみや接種物を保持するかどうかを観察します。
- リアルタイムで感染を監視するために、それぞれ、歪D39とTIGR4の1×10 7または7.5×10 7肺炎球菌の感染量で鼻腔内7月10日週齢のCD-1マウスに感染する。宿主組織によって吸収されず、任意のシステムの検出限界は約1×10 6生物発光細菌である。
- 敗血症のマウス感染モデルにおいて肺炎球菌の病原性を評価し、バイオイメージする(IP)の腹腔内に感染する。ひずみD39とひずみTIGR4の1×10 4100μlの5×10 3 CFUを使用してください。 IPルートを使用するときにマウスを麻酔されていない。
- PBSで対照マウスに接種する。

図1。S.を収録したCD-1マウスの鼻腔内感染肺炎球菌 。 拡大画像を表示するには、ここをクリックしてください 。
3。イメージングシステムを用いて肺および血液中に肺炎球菌普及を可視化する
インビボイメージングシステムを用いてリアルタイムで雌非近交系CD1マウスの鼻腔内感染後の肺炎球菌の画像普及。
- イメージングシステムのスイッチを入れ、preconfiguratedコンピュータ上にある画像解析ソフトウェアを起動します。
- 撮像システムは、自動的に初期化し、CCDカメラが熱電活性される前に90℃に冷却する。
- 設定とビニングを測定したマウスの数に依存する同時かつ生物発光シグナルの強さ。動物の生物発光をモニターするための視野(FOV)は変数であり、倍率は胸のような動物のマウスのシングルまたは一部を測定するために、5匹のマウスを測定するために、22.5センチメートルの視野の範囲であり、3.9センチFOVまたは頭。
- 日常1分の露光時間、ビニング中程度、22.5センチメートル(集合D)のFOVを使用してください。まず、発光撮像モードを選択して撮像パラメータを設定する。
- シグナルの放出を用いた細菌株及びマウス株及びマウスの顔料に依存し得る。 例えば、C57BL / 6マウスを使用した場合、これらのマウスにおける肺炎の発生を撮像する場合に有利で あり得る、マウスの胸部を剃る。
- 画像はprechosen時間間隔でマウスを感染させた。最大8から12時間の時間間隔で、急性肺炎モデルにおけるマウスの生物発光を測定します。 observiによっても感染マウスの福祉を監視その外観、動作、および体重減少の決定をngの。
- 前にチャンバ内の測定に撮像装置の麻酔システムの麻薬チャンバ内にマウスを麻酔。イソフルランと酸素の混合物の吸入を開始し、マウスは徐々に、定期的に呼吸するまで待ちます。
- 系の結室に麻酔した動物を配置し、仰臥位でマウスを保持します。チャンバーの上部にCCDカメラますし、画像ネズミ気道。
- 麻酔薬の吸入を可能にするためにチューブにに自分の鼻を持つ動物を配置します。
- ガス配管を介して撮像チャンバ内へのエントリはイソフルラン麻酔を維持させる。
- イメージングソフトウェアでチャンバーの上部にCCDカメラを活性化し、生物発光光学イメージングを開始するには、押して「取得」。すぐに密閉チャンバー内のマウスの写真が画面に表示されます。の1分後に生物発光測定データのオーバーレイと写真が示されている。
- イメージオーバーレイは、ソフトウェアのウィンドウに表示された後、麻酔を停止し、戻って自分のケージにマウスを置く。
- マウスは、回復のために監視されています。
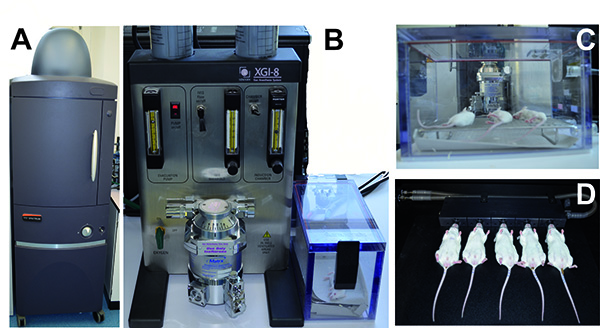
図2麻酔及びIVIS麻酔及びIVISスペクトル装置を用いて生物発光肺炎球菌に感染したマウスのモニタリング、それぞれA)IVISスペクトル撮像システム。B)インキュベーションチャンバーとIVIS麻酔システム。インキュベーションチャンバー内で麻酔C)マウス彼らの鼻は麻酔薬を吸入するとIVISスペクトラムイメージングチャンバー内に位置しています。D)マウス。_blank ">拡大画像を表示するにはここをクリックしてください。
4。生物発光Sで感染マウスの生物発光の定量化と評価肺炎球菌
- 画像解析ソフトウェアを用いて総光子放射(光子/秒)を定量化することによってマウス又はマウスの選択された領域の生物発光強度を決定する。
- グラフを作成するExcelのデータシートに記載されている光子放出の値を使用してください。データ変化は、多くの場合、グループ化されたマウス内で高いので、異なる肺炎球菌株に感染したマウスの違いを表示するためのボックスウィスカーグラフを生成する。
- マウス当たりの光子または選択した領域の放射輝度の平均値(光子/秒/ cm 2 / SR)として、代替的な結果を提供します。
- フォトンモードでROI(関心領域)の測定データを定量的に異なるインビボ撮像システムから他間で比較することができる来放射輝度の単位での測定が自動的に考慮カメラ設定を( 例えば積分時間、ビニング、F /停止、および視野)がかかるため、RAの設定、。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
メチオニンの取得及び取り込みは、そのホストのニッチ32,33内のフィットネスを維持するために、肺炎球菌のための中心的な重要性である。メチオニンABCトランスポーターリポ蛋白は、SPD _ 0151遺伝子(TIGR4:sp_0149)でD39でエンコードされており、MetQ 32という。 ( - ; TIGR4 Sp_0585 - Sp_0586、METEとMETF Spd_0511 Spd_0510 D39)肺炎球菌はさらに、メチオニン生合成酵素を生産する。合成培地中のメチオニンの不足が肺炎球菌の成長と同じような、メチオニン32,33のリポMetQ障害者の取り込みを結合メチオニンの不足に影響を与えます。この不具合は、メチオニンの高濃度の添加により回復することができた。共感染実験で示されているようで示すように、MetQの欠如は、敗血症や肺炎のマウスモデルにおいて肺炎球菌を弱めた状態でマウスのコロニー形成実験でMetQが欠損した変異は、同質遺伝子野生型と病原性で弱毒化されなかった細菌負荷32を決定...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
動物を用いて実施し、すべての実験は、地方自治体や倫理委員会によって承認されなければならない。 インビボ感染実験において、感染した動物の種々の宿主ニッチにおける細菌負荷は、様々な時点で、感染後に決定されなければならない。これらの実験条件下での動物は前の血液、咽頭、bronchoalvelar洗浄、あるいは、肺、脾臓、および脳などの臓器からの細菌の単離犠牲にしなければならない。ホスト·ニッチあたりの細菌数を計算し、病原性細菌に対する因子の効果を評価するために、血液または臓器は、細菌を回収し、固形培地上にプレーティング、続いて単離する必要がある。細菌負荷は、次いでCFUの計数により定量する。統計的に、各時点は、特定の実験条件下によるマウスの高い数に実験を処理する際の困難さをもたらすマウスの群を、必要とする有意データに到達する。
対照的にove_content ">、リアルタイムバイオイメージング法は、より少ない時間が要求するアプローチであり、それぞれの個々の細菌に感染したマウスは、ある期間にわたって複数回モニターすることができる。撮像技術は、異なる時に動物内細菌の可視化を可能にする時間は、...アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは、開示することは何もありません。
謝辞
研究室での研究は、SHにドイツ学術振興(DFG HA 3125/3-2、DFG HA 3125/4-2)と、教育研究連邦省(BMBF)医療感染ゲノミクス(FKZ 0315828A)からの補助金によって支えられている。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| トッド・ヒューイット・ブロス | カール・ロス、カールスルーエ、ドイツ | X936.1 | |
| 酵母抽出物 | カール・ロス、カールスルーエ、ドイツ | 2363.2 | |
| 血液寒天プレート | Oxoid、Wesel、ドイツ | PB5039A | |
| Kanamycin | Carl Roth, カールスルーエ, ドイツ | T832.2 | |
| エリスロマイシン | Sigma-Aldrich,Taufkirchen, Germany | E6376 | |
| ウシ胎児血清(FBS) | PAA Laboratories, Coelbe, Germany | A11-151 | |
| CD-1マウス、雌 | のチャールズリバー、ズルツフェルト、ドイツ | CD1SIFE06W08W | 雌のCD-1マウス、6〜8週齢 |
| ケタミン500 mg、キュラメッド注射液 | シュワーベ・キュラメッド、カールスルーエ、ドイツ | ||
| ロンプン2%、注射液 | バイエルアニマルヘルス、モンハイム、ドイツ | ||
| BD Plastipak 1 mlシリンジ | ベクトン・ディキンソン、ハイデルベルク、ドイツ | 300015 | ニードル付き無菌ルアーロックシリンジ |
| ゲルローダーチップ | PeqLab | 81-13790 | MµltiFlex Tips |
| ヒアルロニダーゼ | Sigma-Aldrich | H3884-100mg | ヒアルロニダーゼ IV-S 型 牛試験 |
| 酸素 | エア リキード、Düドイツ、ッセルドルフ | M1001L50R2A001 | |
| イソフルラン | バクスター、Unterschleißハイム、ドイツ | ||
| pGEM-T Easy | Promega、マンハイム、ドイツ | ||
| オリゴヌクレオチド | Eurofins MWG, Ebersberg, Germany | ||
| Qiaprep Spin Midiprepキット | Qiagen、ヒルデン、ドイツ | 27104 | |
| PCR DNA精製キット | Qiagen, Hilden, Germany | 28106 | |
| Living Image 4.1ソフトウェア | Caliper Life Sciences/PerkinElmer, Rodgau, Germany | ||
| XGI-8 ガス麻酔システム | キャリパーライフサイエンス/PerkinElmer, Rodgau, Germany | ||
| IVISスペクトラムイメージングシステム | Caliper Life Sciences/PerkinElmer、ドイツ、 | ||
| バイオフォトメーター | Eppendorf AG, ハンブルク, ドイツ |
参考文献
- Niederman, M. S., et al. Guidelines for the management of adults with community-acquired pneumonia. Diagnosis, assessment of severity, antimicrobial therapy, and prevention. Am. J. Respir. Crit. Care Med. 163, 1730-1754 (2001).
- WHO, The global burden of disease: 2004 update. World Health Organization. , (2008).
- Bogaert, D., et al. Colonisation by Streptococcus pneumoniae and Staphylococcus aureus in healthy children. Lancet. 363, 1871-1872 (2004).
- Gamez, G., Hammerschmidt, S. Combat pneumococcal infections: adhesins as candidates for protein-based vaccine development. Curr. Drug Targets. 13, 323-337 (2012).
- Mook-Kanamori, B. B., Geldhoff, M., vander Poll, T., Dvan de Beek, D. Pathogenesis and pathophysiology of pneumococcal meningitis. Clin. Microbiol. Rev. 24, 557-591 (2011).
- Musher, D. M. How contagious are common respiratory tract infections. N. Engl. J. Med. 348, 1256-1266 (2003).
- Brueggemann, A. B., Pai, R., Crook, D. W., Beall, B. Vaccine escape recombinants emerge after pneumococcal vaccination in the United States. PLoS Pathog. 3, (2007).
- Munoz-Almagro, C., et al. Emergence of invasive pneumococcal disease caused by nonvaccine serotypes in the era of 7-valent conjugate vaccine. Clin. Infect. Dis. 46, 174-182 (2008).
- Whitney, C. G. Impact of conjugate pneumococcal vaccines. Pediatr. Infect. Dis. J. 24, 729-730 (2005).
- Whitney, C. G., et al. Decline in invasive pneumococcal disease after the introduction of protein-polysaccharide conjugate vaccine. N. Engl. J. Med. 348, 1737-1746 (2003).
- Lynch, J. P. 3rd, Zhanel, G. G. Streptococcus pneumoniae: epidemiology and risk factors, evolution of antimicrobial resistance, and impact of vaccines. Curr. Opin. Pulm. Med. 16, 217-225 (2010).
- Singleton, R. J., et al. Invasive pneumococcal disease caused by nonvaccine serotypes among Alaska native children with high levels of 7-valent pneumococcal conjugate vaccine coverage. JAMA. 297, 1784-1792 (2007).
- Dockrell, D. H., Whyte, M. K., Mitchell, T. J. Pneumococcal pneumonia: mechanisms of infection and resolution. Chest. 142, 482-491 (2012).
- Lieberman, T. D., et al. Parallel bacterial evolution within multiple patients identifies candidate pathogenicity genes. Nat. Genet. 43, 1275-1280 (2011).
- Yang, J., Tauschek, M., Robins-Browne, R. M. Control of bacterial virulence by AraC-like regulators that respond to chemical signals. Trends Microbiol. 19, 128-135 (2011).
- Young, B. C., et al. Evolutionary dynamics of Staphylococcus aureus during progression from carriage to disease. Proc. Natl. Acad. Sci. U.S.A. 109, 4550-4555 (2012).
- Kadioglu, A., Weiser, J. N., Paton, J. C., Andrew, P. W. The role of Streptococcus pneumoniae virulence factors in host respiratory colonization and disease. Nat. Rev. Microbiol. 6, 288-301 (2008).
- Voss, S., Gamez, G., Hammerschmidt, S. Impact of pneumococcal microbial surface components recognizing adhesive matrix molecules on colonization. Mol. Oral Microbiol. 27, 246-256 (2012).
- Koppe, U., Suttorp, N., Opitz, B. Recognition of Streptococcus pneumoniae by the innate immune system. Cell. Microbiol. 14, 460-466 (2012).
- Paterson, G. K., Mitchell, T. J. Innate immunity and the pneumococcus. Microbiology. 152, 285-293 (2006).
- Gerber, J., et al. A mouse model of Streptococcus pneumoniae meningitis mimicking several features of human disease. Acta Neuropathol. 101, 499-508 (2001).
- Gingles, N. A., et al. Role of genetic resistance in invasive pneumococcal infection: identification and study of susceptibility and resistance in inbred mouse strains. Infect. Immun. 69, 426-434 (2001).
- Holmes, A. R., et al. The pavA gene of Streptococcus pneumoniae encodes a fibronectin-binding protein that is essential for virulence. Mol. Microbiol. 41, 1395-1408 (2001).
- Koedel, U., Klein, M., Pfister, H. W. New understandings on the pathophysiology of bacterial meningitis. Curr. Opin. Infect. Dis. 23, 217-223 (2010).
- Medina, E. Murine model of pneumococcal pneumonia. Methods Mol. Biol. 602, 405-410 (2010).
- Hartel, T., et al. Impact of glutamine transporters on pneumococcal fitness under infection-related conditions. Infect. Immun. 79, 44-58 (2011).
- Hermans, P. W., et al. The streptococcal lipoprotein rotamase A (SlrA) is a functional peptidyl-prolyl isomerase involved in pneumococcal colonization. J. Biol. Chem. 281, 968-976 (2006).
- Jensch, I., et al. PavB is a surface-exposed adhesin of Streptococcus pneumoniae contributing to nasopharyngeal colonization and airways infections. Mol. Microbiol. 77, 22-43 (2010).
- Kadioglu, A., et al. Pneumococcal protein PavA is important for nasopharyngeal carriage and development of sepsis. Mol. Oral Microbiol. 25, 50-60 (2010).
- Orihuela, C. J., Gao, G., Francis, K. P., Yu, J., Tuomanen, E. I. Tissue-specific contributions of pneumococcal virulence factors to pathogenesis. J. Infect. Dis. 190, 1661-1669 (2004).
- Francis, K. P., et al. Visualizing pneumococcal infections in the lungs of live mice using bioluminescent Streptococcus pneumoniae transformed with a novel gram-positive lux transposon. Infect. Immun. 69, 3350-3358 (2001).
- Basavanna, S., et al. The effects of methionine acquisition and synthesis on Streptococcus pneumoniae growth and virulence. PLoS One. 8, (2013).
- Hartel, T., et al. Characterization of central carbon metabolism of Streptococcus pneumoniae by isotopologue profiling. J. Biol. Chem. 287, 4260-4274 (2012).
- Hammerschmidt, S., et al. The host immune regulator factor H interacts via two contact sites with the PspC protein of Streptococcus pneumoniae and mediates adhesion to host epithelial cells. J. Immunol. 178, 5848-5858 (2007).
- Voss, S., et al. The choline-binding protein PspC of Streptococcus pneumoniae interacts with the C-terminal heparin-binding domain of vitronectin. J. Biol. Chem. , (2013).
- Cartwright, K. Pneumococcal disease in western Europe: burden of disease, antibiotic resistance and management. Eur. J. Pediatr. 161, 188-195 (2002).
- vander Linden, M., Al-Lahham, A., Nicklas, W., Reinert, R. R. Molecular characterization of pneumococcal isolates from pets and laboratory animals. PLoS One. 4, (2009).
- Brehm,, et al. Sequence of the adenine methylase gene of the Streptococcus faecalis plasmid pAM beta 1. Nucleic Acids Res. 15, 3177 (1987).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
