心臓弁内皮細胞(VEC)を分離する能力は、弁の発生、維持、および疾患のメカニズムを理解するために重要です。 ここでは、FACSを使用した胚および成体のTie2-GFPマウスからのVECの単離について説明します。これにより、発生および疾患プロセスにおけるVECの寄与を決定する研究が可能になります。
この記事について
サマリー
要約
正常な弁構造は、弁間質細胞(VIC)が散在し、弁内皮細胞(VECs)の単層に囲まれた特殊な細胞外マトリックス(ECM)の層状層から構成されています。VECは、胚発生時に弁の構造を確立する上で重要な役割を果たし、生涯にわたる弁の完全性と機能を維持するために重要です。健康な弁尖の表面上に連続した内皮があるのとは対照的に、VEC の破壊は機能不全の弁で一般的に観察され、弁の病気や機能障害を促進する病理学的プロセスに関連しています。臨床的関連性があるにもかかわらず、VECの発生および疾患プロセスへの寄与を決定する焦点を絞った研究は限られています。動物モデルからVECを単離することで、細胞特異的な実験が可能になります。VECは大型動物の成体モデルから単離されていますが、その小さな集団サイズ、脆弱性、および特定のマーカーの欠如のために、胚または成体小動物モデルでのVEC単離の報告は報告されていません。 ここでは、胚期および成体期のマウスからVECを直接単離できる新しい方法について説明します。 すべての内皮細胞を緑色蛍光タンパク質(GFP)で標識するTie2-GFPレポーターモデルを利用して、蛍光活性化細胞選別(FACS)を使用して、半月弁領域および房室弁領域からGFP陽性(および陰性)細胞を単離することに成功しました。単離されたGFP陽性VECは、CD31やvon Willebrand Factor(vWF)などの内皮マーカーに濃縮されており、培養時に内皮細胞の発現を保持します。一方、GFP陰性細胞は、VIC表現型と一致する分子プロファイルと細胞形状を示します。胚性および成体マウスのVECを単離する能力により、これまで達成できなかった特定の弁細胞集団に対する分子的および機能的研究が可能になり、弁の発生と疾患のメカニズムについての理解が大幅に向上します。
概要
成熟したバルブは特殊な細胞外マトリックス(ECM)バルブ間質 細胞(VICの)が点在し、心臓弁内皮細胞(vecSを1)の単層によってカプセル化された三層状の層から構成されている。 ECMの役割は、心周期中に血行力学的力の一定の変化に耐えるために必要なすべての生体力学的特性を提供することにある。成人弁における弁ECMのターンオーバーは、緊密疾患の非存在下で大幅に静止し、線維芽細胞様であるのVICによって調節される。 VIC集団に加えて、心臓弁内皮細胞(vecSを)は、弁尖2の表面上中断されない内皮を形成する。弁の構造と機能のためのECMおよびVICの重要性は、米国及び他によって説明してきたが、vecSをの役割はあまりよく知られている。しかし、この比較的小さな細胞集団は、胚における弁形成に重要であり、バルブ内の機能不全として記載されている病気。
房室運河と流出管領域内の内皮細胞のサブセットは、(EMT)間葉転換に内皮を受け、心内膜クッション1,3として知られる隆起を形成する。胚における心臓弁の形成が始まるこれらの構造内に、新たに変換された間葉系細胞は、後のVICに分化し、成熟したバルブを形成している。 EMTが完了すると、クッションの周囲の内皮細胞は、vecSをと呼ばれる傷害に対する成熟弁を保護する中断の内皮細胞層を形成する。また、vecSをは血行動態環境を感知し、分子的なECMホメオスタシス1,3を調整するために、基礎となるのVICと通信することが示されている。病気のバルブでは、VEC単層のECM組織内の異常な変化と変更された生体力学4,5に関連して破壊されている。また、マウスモデルにおける研究は、VEC機能不全弁dの根本的な原因であることを示唆しているisease 1,6-9。 vecSをバルブの開発、維持、および疾患において重要な役割を果たしているように、私たちは完全にフィールドを進め、病気のメカニズムを理解するために、それらの時間的表現型を定義することが重要である。
いくつかの研究室による以前の研究は、成功したブタおよびヒツジモデル10-12からvecSを単離しました。によるこれらのバルブのサイズが大きいため、磁気ビーズ細胞分離し、単一細胞クローン性増殖純粋な集団11-13を生成するのに効果的であるなど、異なる分離方法の数、続いて、スワブおよび/ または酵素消化を介して単離。しかしながら、これらのモデルは、高いコストに加えて、分子ツールの利用可能性を制限するブタ及びヒツジゲノムの不完全なアノテーションに限定的であることができる。そのため単離後ブタおよびヒツジvecSをの実験は、制限することができます。マウスモデルは、遺伝子manipulaための多くの可能性に好ましいると胚および成人における分子ツールは、今日まで、小動物モデルにはVECアイソレーションは報告されていない。これは、現在、それによって抗体ベースの単離方法を防ぐ、VEC特異的マーカーの一意の識別情報を欠いている少数の細胞集団を含む小さな組織サンプルでの作業の困難性がある。
本稿では、胚および成体段階でのネズミvecSを直接単離するための新しい方法を報告している。このプロトコルは、すべての内皮細胞型においてGFPを発現し、広範囲の内皮細胞集団14を研究するために使用されているのTie2-GFPマウスを利用する。しかし、この現在の研究の新規性は、初めて、これらのマウスは、バルブから内皮細胞を単離するのに利用されていることである。弁組織及びFACSソーティング続い9の酵素消化の一連の慎重な切開により、vecSを単離することができるとにおけるさまざまな実験手法のために使用直接仕分け以下、RNA抽出と文化をcluding。
プロトコル
機器·ソリューションの調製
- 大人の心と弁膜症の領域の解剖のための2細かい鉗子を抽出するために、微細組織はさみ - - オートクレーブで覆われた楽器トレイに解剖ツールを滅菌する。解剖の前に70%エタノール(エタノール)とツールをスプレーしてください。
- 実験前に、すぐにすべてのソリューションを用意し、滅菌0.2μmのフィルターに通して解決策を滅菌する。使用するまで氷上で解決してください。
- 無菌解離バッファー (15ミリリットル合計/サンプル)。 1.2ミリリットルコラゲナーゼIV、300μlの2.5%トリプシンおよび150μlのニワトリ血清を結合します。ハンクス液(HBSS)で15ミリリットルにボリュームを起動します。
- 無菌ソーティングバッファ (12ミリリットル合計)。 25μlの0.5Mのエチレンジアミン四酢酸(EDTA)および12μlのDNase I(RNaseフリー)を結合します。 HBSSで12ミリリットルまで容量を持参してください。
- VEC培養培地。ミックス内皮GROメーカーの指示に従ってメディアWTH(材料のスプレッドシートを参照してください)EBM2培地の500mlにキットから等分のコンポーネントを追加します。
- GFP陰性培養培地 (非内皮細胞培地)。ペニシリン/ストレプトマイシン(ペニシリン/ストレプトマイシン)を5ml(1%最終濃度)と50ミリリットルのFBS(10%最終濃度)で培地199 1倍の445ミリリットルを混ぜる。
成体マウスおよびE14.5胚からの弁膜地域の2解剖
- 全ての動物手順は承認され、全国小児病院研究所IACUCガイドラインに従って実施した。
- のTie2-GFPマウスは、ジャクソン·ラボラトリーズ(ストック番号003658)14から購入し、FVB / Nバックグラウンドのホモ接合体の遺伝子型として維持したので、確実にそののTie2陽性内皮細胞におけるすべてのオフスプリング急行GFP。
- FACSソーティングのために、1歳の一致した負のSAMPを準備ルFACSソーティングのためのGFPゲートパラメータを設定するようなC57BL / 6として、GFPを含まない。注:このプロトコルと代表的な結果は3、4ヶ月齢の成体マウスまたは胚日(E)14.5一つのごみを使用してに基づいています。
- 成体マウス:CO 2酸素欠乏によるすぐに次の犠牲は、静かに胸腔を開いて、心臓と肺を露出させ解剖ハサミを使用しています。一度、露出した大血管でピンセットでグリップの心を、身体から引き離す。無傷の場合は、肺組織を取り出し、すすぐために冷HBSSに心を置く。心室を取り出し、無傷の房室運河 'リング'と大動脈領域を残して、心房を引き離す。 「リング」を開いて、弁膜構造を露出する房室運河の側を下に1切開を加えます。静かにピンセットで離れてからかっによって心筋および近位大動脈領域を削除します。ピンク心筋オーバーホワイト、密な組織として弁尖を特定します。そっとDETA房室弁から腱索をCHおよび可能な限り、残りの心筋の多くを削除します。 vecSをが外れている可能性がありますので、このプロセスの間に弁尖を引っ張ったりこすっないように注意してください。 1ミリリットルのHBSSを含む1.5ミリリットルエッペンドルフチューブ内でトリミングされた弁膜領域を配置し、氷上に置きます。注:慎重解剖サンプルを汚染する可能性があり、非弁膜内皮細胞を除去することが重要です。
- 胚:交尾プラグは(交尾栓の朝= 0.5日)が観察された14.0日後に雌マウスを生け贄に捧げる。
- 直後に犠牲以下、子宮を解剖(胚を含む)および冷HBSS中に洗ってください。子宮からの個別の胚を解剖し、各胚を取り巻く胚卵黄嚢を取り除く。胚のそれぞれから心を外し、ステップ2.1に従ってください。 (注:優しくちょうどアッパー付属の下に鉗子で胚を圧迫する心臓を露出し、除去を容易にするために役立つはずです。)
- 無菌のピペットチップを使用して、弁膜領域を含むエッペンドルフチューブからHBSSを除去します。
- 1ミリリットル解離緩衝液および4μlのDNA分解酵素Iと交換してください
- 7分間37℃でチューブを回転させます。
- 上下に3回、その後ピペット、サンプルが15秒のために解決しましょう。 15ミリリットルコニカルチューブに(解離した細胞を含む)上清を収集する。
- コラゲナーゼ反応を停止するには、コレクションチューブにウマ血清125μlのを追加します。氷上でコレクションチューブを保管してください。
- 繰り返し解離段階(3.2から3.5)の9倍上清の9画分を収集する。
- 埃や塊を除去することによって、単一細胞懸濁液を確保するために、新しいコレクションチューブに70μmのナイロンフィルターを通して分画しコレクションを渡します。
- 細胞をペレットに5分間400gでサスペンションスピン。
- 1ミリリットル並べ替えバッファに細胞ペレットを再懸濁しFACSまで氷上に保つ。
GFP陽性vecSをソート4。FACS
- 破片を除外し、単一細胞を捕捉するために前方および側方散乱のためにゲートを設定します。ダブレット識別ゲーティングを使用してダブレットを除外する。陰性対照サンプルを記録及びTie2-GFP試料中のGFP陽性細胞集団を比較し、正確に定義するために、ゲートの設定を定義する。
- FACSを経由して、GFP陽性細胞を分析し、ゲート設定を調整。
- のTie2-GFPサンプルをソートし、GFP陽性およびGFP陰性細胞の両方を収集します。細胞は、ソート、直接並べ替えバッファに、RNA抽出のために使われます。 FACS後の培養細胞に、1ミリリットルFBSで1ミリリットルVECメディアを含む滅菌チューブ中のGFP陽性細胞を収集し、1ミリリットルFBSを非内皮培地1ml中のGFP陰性細胞を収集します。細胞生存率を向上させるために、この50%の培地/ 50%血清の組合せを使用する。ポストFACS分析まで氷上で保管してください。
5。ポストFACS Analysisの
- RNA抽出:
- すぐに8分間、FACS、1500×gで遠心分離GFP陽性と陰性細胞を次に示します。
- 注意深く上清(ソートバッファ)ピペットと捨てる。
- 200μlのトリゾール中(ペレットは、ここで推奨されるサンプルサイズに表示されていない)細胞ペレットを再懸濁します。
- -80℃で凍結、または以前に私たちの研究室15で説明したように全mRNAを単離するために、標準的なフェノール-クロロホルム抽出を開始します。
- 製造業者の指示に従ってマスターミックスを使用してcDNA合成のためにRNAの50〜200 ngのを使用する。
- マウス内皮細胞マーカー(CD31、フォンヴィレブランド因子(VWF))、バルブ間質 細胞マーカー(α-平滑筋アクチン(α-SMA)、ペリオスチン(POSTN))に対するIDTのプライムタイム定量PCRプローブを用いた定量的PCR増幅、筋細胞に従うことを条件のcDNAマーカー(Mhc6、Mhc7)およびGAPDH。
- ネズミVECの培養:
- FACSソーティングおよび細胞収集(ステップ4.3)、5分間300×gで遠心分離後、細胞。
- 注意深く上清(ソートバッファー+メディア)をオフピペットと捨てる。
- VECメディア1ml中のGFP陽性細胞ペレット及び1ミリリットル非内皮メディアにおけるGFP陰性ペレットを再懸濁。
- プレートの各サンプルのプラスチックチャンバースライドの1つのウェル中で、コンフルエントになるまで成長する。 GFP陰性細胞(3、成体マウスのサンプルから)コンフルエントになるまでコンフルエントになり、GFP陽性細胞について2週間以上するのに約1週間培養。日おきのメディアを変更します。
- 免疫蛍光染色:
- 細胞から培地を除去し、RTで30分間4%パラホルムアルデヒド(PFA)で固定する。リン酸緩衝生理食塩液(PBS)で各5分間固定した細胞を3回洗浄する。
- 室温で1時間、5%ウシ血清アルブミン/ 1×PBS中のスライドとブロックからチャンバ井戸を削除します。
- 培養する一次抗体(1,000またはα-平滑筋アクチン(α-SMA)、1:100、CD31、1)でO / N、4℃でスライドします。 PBS中で5分間3回洗浄する。
- PBSで400スライドに追加し、室温で1時間インキュベート:二次抗体(アレクサ·フルーア568ヤギ抗ラット)1に希釈する。リンススライドをPBS中で5分間3倍。
- ベクタシールド含有DAPIでのマウントと前の表示に4℃で1時間インキュベートする。
結果
のTie2-GFP細胞は、胚および成体心臓弁の内皮細胞マーカーと共局在。
胚および成体マウスからvecSをにおけるTie2-GFP発現の特異性を確認するために、免疫蛍光、内皮細胞マーカーとの共局在を決定するために行った、CD31 E14.5および3月齢の成体のTie2-GFPから調製した組織切片中以前に私たちの研究室16で公開された方法を使用してマウス。 図1に示すように、vecSを共発現するGFP( 図1のA、B、E、F)の両方の成人における、およびCD31(C、D、E、F、図1)(図1のB、D、F)および胚(そのため、その後のVEC離のために私たちのモデルを検証図1のA、C、E)のステージ、。
FACS分析は、Tie2の-GFPマウスから単離した胚および成体心臓弁における別個のGFP陽性及びGFP陰性細胞集団を同定した。
ワイルドトンYPE C57BL / 6マウスは、GFPパラメータを設定するために使用された及びTie2-GFPマウスから単依存性細胞の約2%が( 図2)胚および成体サンプルの両方におけるFACS分析によるGFP陽性細胞の有意な濃縮を示している。 図1に示す共局在研究に基づいて、これらの細胞はvecSをを考慮し、61,800全細胞の平均が得ている成人サンプルにおける(n = 3)を、及び8928細胞(8,015-(サンプルは39,000-77,000細胞/サンプルの範囲で) E14.5胚1リットルから11000個/リットル)。
PCR分析は、GFP陽性細胞及びTie2-GFPマウスから単離したGFP陰性細胞における弁間質細胞マーカー、内皮細胞マーカーの濃縮を確認する。
qPCRの次FACSによってGFP陽性および陰性細胞集団の遺伝子発現解析は、異なる分子プロファイルを示す。 のTie2-GFPの胚とADULから分離されたGFP陰性の細胞集団と比較するとtsは、GFP陽性細胞は、内皮細胞マーカーCD31およびvWF( 図3)の発現について富化されている。さらに、これらの細胞集団における筋細胞マーカー(MYH6、MYH7)の発現は、非内皮細胞の最小限の汚染を示す、非常に低い。これとは対照的に、成人のTie2-GFPマウス及びE14.5胚から単離されたGFP陰性細胞は、弁間質細胞(VIC)マーカー、α-SMAおよびペリオスチン(POSTN)GFP陽性細胞と比較のために濃縮される。これらのマーカーの濃縮は、成人のVICの静止表現型および活性化マーカーの、したがって低発現のために、大人に比べてE14.5試料から単離したGFP陰性細胞に高い。
のTie2-GFP成体マウスから単離したGFP陽性細胞は、 インビトロで培養することができる。
大人の試料から単離し文化GFP陽性およびGFP陰性細胞への能力がベースを調べた細胞形態及び免疫組織化学染色の研究開発。以前に私たち17で記載されたプロトコルを使用して、私たちは、GFP陽性細胞が培養2週間後( 図4C)の後に、内皮細胞のマーカーであるCD31と形態が円形( 図4A)と共発現GFPを表示されていることを図4に示している。対照的に、非内皮細胞は、GFP陰性で、間葉系様の形態( 図4B)を表示し、9日間( 図4D)の後にVICマーカーα-SMAを発現する。

1のTie2-GFP陽性細胞は、胚および成体心臓弁においてCD31と共局在図。内皮細胞マーカー(Tie2-)GFP発現(A、B)との関連を示す免疫蛍光、CD31(C、D)でsのE14.5(A、C、E)および成人における僧帽弁の弁尖eptal(B、D、F)段階。バルブ領域は、A、C、E(E、F)合併の画像で強調表示され、この図の拡大版をご覧になるにはこちらをクリックしてください。

図2のTie2-GFP陽性vecSを、FACSにより同定することができる。年齢適合C57 / BL6コントロール(A、C)と比較して、Tie2の-GFPの胚(B)および成人(D)から単離されたバルブは異なるGFP-を含んで緑色で示されているように、正の細胞集団。赤色で示さGFP陰性のイベントは、コントロールとして採取した。 (B)および(D)内の数値は、GFP-pの平均%を示すFACSにより選別イベントの合計数からositive細胞(n = 3)。 この図の拡大版をご覧になるにはこちらをクリックしてください。

GFP陰性細胞は、弁間質細胞に関連する遺伝子を発現のに対し、図3にGFP陽性細胞は、内皮細胞マーカーについて濃縮されている。内皮細胞マーカー(CD31、フォンヴィレブランド因子(VWF))と成人(MYH6)および胎児の代表的な定量PCR( E14.5(A)の弁膜領域および成人(B) のTie2-GFPマウスから単離したGFP陽性細胞におけるMYH7)筋細胞マーカー。内皮細胞マーカーおよび筋細胞関連遺伝子の非常に低いレベルのノート濃縮。(C、D)茶を折るE14.5(C)および成人(D) のTie2-GFPマウスから単離したGFP陰性細胞におけるα-SMAおよびPOSTN弁間質細胞マーカーの発現のNGES。 この図の拡大版をご覧になるにはこちらをクリックしてください。
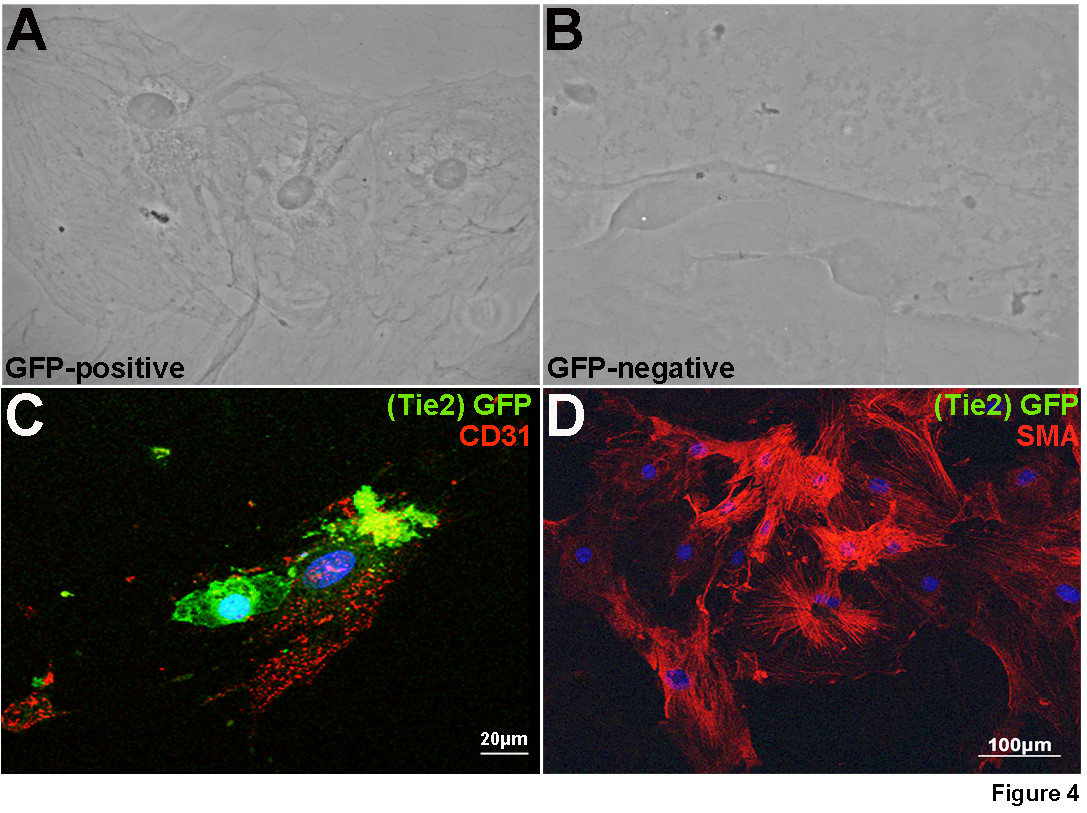
図4のTie2-GFP陽性細胞は、 インビトロで内皮細胞マーカーの発現を維持する。成体マウスからFACS、GFP陽性(A、C)および陰性(B、D)の細胞集団に続いてコントラスト撮影を位相コンフルエントと被写体まで培養した。 (A、B)と蛍光免疫染色(C、D)。 GFP陽性細胞は後にCD31(赤)(C)を発現10日間の培養。対照的に、GFP発現は、α-SMA、活性化のVIC(D)のマーカーについて陽性に染色陰性細胞集団では検出されなかった。
ディスカッション
ここでは、初めてのTie2-GFPマウスから胚および成体マウスvecSを単離するための新規な方法を説明します。このマウス系統は広範に内皮細胞集団の単離のために使用されているが、これはvecSを選択的に単離を示す最初の報告である。原因VEC人口の脆弱性に、私たちは胚および成体マウスの心臓弁からのGFP陽性(及びGFP陰性)細胞の単一細胞の単離を可能にする厳格なプロトコルを開発した。のTie2-GFPマウス14からの全胚または臓器を使用して、元の出版物と比較して、私たちは、細胞の選択集団を単離するために、この脆弱な内皮細胞集団の低量に基づいて、コラゲナーゼおよび解剖の手順を最適化した。
VECアイソレーションは、以前は限られた遺伝的および生体分子ツールを使用して大規模な動物モデルで報告されている。これらのツールは、よく、したがって、ABIをマウスで確立され、マウスvecSをを単離するのリティは、心臓弁の研究に使用される実験デザインの拡張セットを可能にする。したがって、このアプローチの重要な利点は、vecSを、野生型マウス、および弁疾患および傷害のモデルから時間的に分離することができることである。第二の利点は、vecSをより正確インビボでの状況を反映した発現パターンを維持し、ほぼ直後に切開した後に単離し、分析することができることである。さらに、この分離プロトコルは、数拡張のための細胞培養物を排除するのに十分であり、したがって、 インビトロ環境によって誘発される潜在的な表現型の変化が防止される。
ノベルティとこのプロトコルの実験的な利点にもかかわらず、私たちは制限が依然として存在することを認識している。まず、マウスバルブ内VEC集団のサイズが非常に小さいので、複数の時限胚性同腹仔を、遺伝子発現分析のための十分なRNAを生成するために必要とされる。 THIながらsは複数のブリーダーを使用して克服することができ、それはいくつかのポストの分離解析ツールの適用に影響を与える可能性があります。この制限は、特に分子プロフィールおよび機能アッセイを含む、VECの表現型のより完全な分析を実行するために、GFP陽性vecSをの密集培養を確立するための課題となっている。そこで私たちはすべての困難は私たちのアプローチによって克服されたことを認めますが、これは私たちが克服するために努力している関心のある分野である。
弁膜地域からvecSをを分離するこのアプローチは、心室心筋内の心内膜、または血管構造の提携GFP陽性、非弁膜内皮細胞からの汚染の可能性を紹介します。今日まで、他の心臓の内皮細胞集団からvecSを分子区別が同定されていない。しかしのNFATc1遺伝子のエンハンサー領域を同定し、特にそうでないvecSをラベルを付けることが示されているEMTを受けず、心臓18内には他の内皮細胞集団。 のCreモデル(NFATC1 承諾 ) が利用可能であるため、今後の研究では、汚染リスクを最小限に抑えるために、この行の特異性を利用することができる。非弁膜のTie2-GFP-陽性細胞に加えて、弁尖が中隔や壁画、心筋壁の環状領域にアタッチするポイントで筋細胞からの汚染の可能性が常にあります。ここでは図示していないデータでは、最初に抗GFPおよび抗CD31でコーティングされた抗体結合ビーズを用いて解剖し弁膜地域からvecSをを分離するために研究を始めた。このアプローチは内皮細胞を単離するために成功したが、私たちは、隣接する、非内皮細胞型、したがって、VICの、私たちの実験試料を汚染された心筋細胞から顕著な細胞凝集を経験した。これは、パラメータが、単一細胞懸濁液を分離するために設定されているように、FACS分析を使用して回避された筋細胞特異的遺伝子の発現を検出するためのsおよびPCR分析は、この制限( 図3)を制御している。私たちの汚染が最小限とみなすことができるが、それはGFPおよび内皮細胞特異的表面マーカーの二重選択を将来的に避けることができる潜在的な実験複雑残る。
このプロトコルを用いて、正常胚および成体マウスからvecSを単離し、このアプローチはGFP陽性およびGFP陰性細胞集団のRNAの単離および細胞培養のために使用することができる方法の例を提供している。しかし、このアプローチは、これらの用途に限定されるものではなく、分子、細胞および機能的なアプローチの過多のために使用することができる。また、Tie2の-GFPの背景は、健康および疾患におけるVEC集団の比較研究を可能にする遺伝的マウスモデルと交配することができます。この新規方法論の開発は、最初に、集中的研究を可能にするバルブの開発と保守におけるvecSをの寄与を調べ、内皮依存性の弁疾患の以前に正しく評価されていないメカニズムを解明できた。
開示事項
著者らは、開示することは何もない。
謝辞
私たちは、FACS分析と技術支援のためのオハイオ州立大学総合がんセンターの分析サイトメトリーコアファシリティ、特にカトリーナ·ムーアに感謝。さらに、私達は彼らの科学的な洞察のために博士ウィリアムPu及び彼のグループを認識しています。この作品は、NIH HL091878(JL)と全国小児病院ハートセンターによってサポートされていました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Alexa Fluor 568 ヤギ抗ラット IgG (H+L) | Life Technologies | A-11077 | |
| 70 μm ナイロン細胞ストレーナー | BD Falcon | 352350 | |
| 2.5% Trypsin | Invitrogen LT | 15090-046 | |
| ウシ血清アルブミン (BSA), フラクション V, ヒートショック処理 | Fisher Scientific | BP1600-100 | |
| CD31 ラット抗マウス抗体 | BD Pharmingen | 553370 | |
| Chick Serum | Invitrogen LT | 16110-082 | |
| コラゲナーゼIV | Invitrogen LT | 17104-019 | 製造元の指示に従って調製 |
| DNase I, RNase free (10,000 Units) | Roche | 4716728001 | |
| EBM-2 | Lonza | CC3156 | VEC 培地 |
| EDTA, 0.5 M 溶液 | Hoefer | 03-500-506 | |
| EGM2 SingleQuot、Bulletkit | Lonza | CC-4176 | VECメディア用 |
| 、ウシ胎児血清(FBS)、熱不活性化 | ハイクロン | SH3007103IH | |
| ハンクスバランス塩溶液(HBSS) | Life Technologies | 14025-092 | |
| Horse Serum | Invitrogen LT | 16050-130 | |
| ブリダイゼーションオーブン | VWR | 230301V | |
| Medium 199 1X | Corning cellgro | 10-060-CV | |
| パラホルムアルデヒド 16% 溶液 EM グレード | 電子顕微鏡 科学 | 15710 | |
| Pen/Strep | MP-Biomed | ICN1670049 | |
| Permanox 滅菌チャンバースライド カバー付き | Thermo-Scientific | 177429 | |
| Phosphate-Buffered Saline, 1X | Corning cellgro | 21-040-CV | |
| PrimeTime Mini qPCR Assay | Integrated DNA Technologies | Acta2 (αSMA), GAPDH, Myh6, Myh7, POSTN, CD31, vWF | |
| StepOnePlus Real-Time PCR System | Applied Biosystems | 4376600 | |
| SuperScript VILO Mastermix | Invitrogen LT | 11755050 | |
| [header] | |||
| Tie2-GFP マウス | ジャクソン研究所 | 3658 | |
| 組織鉗子 #5 11 cm | デュモン | 14096 | |
| トリゾール | アンビオン | 15596018 | |
| α-SMA 抗マウス抗体 | Sigma-Aldrich | A2547 | |
| VECTASHIELD HardSet 埋込用メディウム DAPI | Vector Laboratories | H-1500 |
参考文献
- Tao, G., Kotick, J. D., Lincoln, J. Heart valve development, maintenance, and disease: the role of endothelial cells. Current topics in developmental biology. 100, 203-232 (2012).
- Lincoln, J., Yutzey, K. E. Molecular and developmental mechanisms of congenital heart valve disease. Birth defects research. Part A, Clinical and molecular teratology. 91, 526-534 (2011).
- Tao, G., Levay, A. K., Gridley, T., Lincoln, J. Mmp15 is a direct target of Snai1 during endothelial to mesenchymal transformation and endocardial cushion development. Developmental biology. 359, 209-221 (2011).
- Weinberg, E. J., Mack, P. J., Schoen, F. J., Garcia-Cardena, G., Kaazempur Mofrad, M. R. Hemodynamic environments from opposing sides of human aortic valve leaflets evoke distinct endothelial phenotypes in vitro. Cardiovasc Eng. 10, 5-11 (2010).
- Hinton, R. B. Jr Extracellular matrix remodeling and organization in developing and diseased aortic valves. Circulation research. 98, 1431-1438 (2006).
- Gould, S. T., Srigunapalan, S., Simmons, C. A., Anseth, K. S. Hemodynamic and cellular response feedback in calcific aortic valve disease. Circulation research. 113, 186-197 (2013).
- Bosse, K., et al. Endothelial nitric oxide signaling regulates Notch1 in aortic valve disease. Journal of molecular and cellular cardiology. 60, 27-35 (2013).
- Laforest, B., Andelfinger, G., Nemer, M. Loss of Gata5 in mice leads to bicuspid aortic valve. The Journal of clinical investigation. 121, 2876-2887 (2011).
- Hofmann, J. J., et al. Endothelial deletion of murine Jag1 leads to valve calcification and congenital heart defects associated with Alagille syndrome. Development. 139, 4449-4460 (2012).
- Wylie-Sears, J., Aikawa, E., Levine, R. A., Yang, J. H., Bischoff, J. Mitral valve endothelial cells with osteogenic differentiation potential. Arteriosclerosis, thrombosis, and vascular biology. 31, 598-607 (2011).
- Gould, R. A., Butcher, J. T. Isolation of valvular endothelial cells. Journal of Visualized Experiments : JoVE. , (2010).
- Butcher, J. T., Penrod, A. M., Garcia, A. J., Nerem, R. M. Unique morphology and focal adhesion development of valvular endothelial cells in static and fluid flow environments. Arteriosclerosis, thrombosis, and vascular biology. 24, 1429-1434 (2004).
- Cheung, W. Y., Young, E. W., Simmons, C. A. Techniques for isolating and purifying porcine aortic valve endothelial cells. The Journal of heart valve disease. 17, 674-681 (2008).
- Motoike, T., et al. Universal GFP reporter for the study of vascular development. Genesis. 28, 75-81 (2000).
- Peacock, J. D., Lu, Y., Koch, M., Kadler, K. E., Lincoln, J. Temporal and spatial expression of collagens during murine atrioventricular heart valve development and maintenance. Developmental dynamics : an official publication of the American Association of Anatomists. 237, 3051-3058 (2008).
- Levay, A. K., et al. Scleraxis is required for cell lineage differentiation and extracellular matrix remodeling during murine heart valve formation in vivo. Circulation research. 103, 948-956 (2008).
- Lincoln, J., Alfieri, C. M., Yutzey, K. E. BMP and FGF regulatory pathways control cell lineage diversification of heart valve precursor cells. Developmental biology. 292, 292-302 (2006).
- Wu, B., et al. Nfatc1 coordinates valve endocardial cell lineage development required for heart valve formation. Circulation research. 109, 183-192 (2011).
再版と許可
