ここでは私たちはドナーとアクセプターフルオロフォアサイト間のプロテアーゼ切断部位を導入する改良された発光共鳴エネルギー移動(LRET)方法を記載している。この修飾は、タンパク質精製せずに膜タンパク質の研究を可能にする、目的の膜タンパク質から生じる特定のLRET信号を得ることを可能にする。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
発光共鳴エネルギー移動、またはLRETは、10〜100オングストロームの距離範囲内のタンパク質内の2つのサイト間の距離を測定するために使用される強力な技術である。さまざまなライゲーション条件下での距離を測定することにより、タンパク質のコンホメーション変化を容易に評価することができる。 LRET、ランタニド、最も頻繁にキレート化テルビウムにより、そのような長いドナーのみの発光寿命は、複数のアクセプターフルオロフォアを使用するには、柔軟性、および簡単な方法として、感作されたアクセプター発光を検出するための機会としての利点を与える、ドナー蛍光体として使用されているまた、ドナーのみの信号を検出するリスクなしに、エネルギー移動を測定した。ここでは、インタクトな哺乳動物細胞の表面上で発現され、アッセイされた膜タンパク質にLRETを使用する方法を記載する。私たちは、LRET蛍光団ペア間のプロテアーゼ切断部位を導入する。元のLRET信号を取得した後、その部位での切断は、タンパク質の特定のLRET信号を除去私たちは、定量的に切断した後に残る背景信号を減算することを可能に関心。この方法は、タンパク質の精製を必要とせずに行うべき複数の生理学的に関連性の測定を可能にする。
概要
発光共鳴エネルギー移動(LRET)は、周知の蛍光共鳴エネルギー移動(FRET)技術1の誘導体である。 FRETと同様に、LRETは10〜100オングストローム〜3の範囲内で、目的のタンパク質上の特定の部位に結合したドナーとアクセプターフルオロフォア間の距離と距離の変化を測定するために使用することができる。 LRETの原理は、その共鳴エネルギー移動にFRETに類似しているドナーフルオロフォアの発光スペクトルがアクセプターフルオロフォアの吸収スペクトルと重なった場合2近位の蛍光団の間で起こる。この移動の効率は、次式による二フルオロフォア間の距離に関係する。
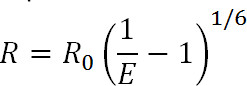 式1
R二つのフルオロフォア間の距離であり、Eは、専用の効率である以下に説明ギー転送、およびR 0は 、転送の効率が最大半減する距離、すなわち 、フルオロフォアペアのフェルスター半径である。この式から、人はその効率は逆6乗1に上げ、距離の大きさに関係して見ることができます。これは、FRETとLRET測定があっても、FRET対のR 0に近い小さな距離の変化に絶妙に敏感であることが可能になり、この逆6乗依存性である。具体的にはタンパク質または他の巨大分子上の所望の部位を標識する能力は、一方が立体構造変化を監視するには、この感度を活用することができる。
従来の有機色素分子を使用して、FRET、と比較すると、LRETは追加の利点を提供しています。 LRETでは、代わりにドナーフルオロフォア、ランタニド系列の陽イオン、典 型的には、Tbの3+かのEu 3 +などの有機色素を使用するのではなく、1,4-6使用されている。 uの秋フルオロフォアそれらはアクセプターフルオロフォアの広い範囲で使用できるように、このカテゴリ、 例えば 、テルビウムキレートファインダーも非常に汎用性があります。キレート化ランタニドの発光スペクトルがアクセプターフルオロフォアの多種多様のいずれかで使用されるドナーフルオロフォアの単一種を可能にする、複数の鋭い発光ピークが含まれているので、この柔軟性が可能となる。このように、増感アクセプター発光はドナー発光5からのブリードスルーを汚染を恐れることなく検出することができる。実験者は、2つのフルオロフォア( 図1および表1)との間の予想される距離に基づいて、特定の受容体を選択する。これらのキレート化ランタニド蛍光団で、金属イオンが高分子1上の特定の官能基にイオンを係留するために生物反応性官能基と同様に励起するために、通常、難吸収性のランタニドを感作アンテナグループを含む分子によってキレート化され、 5,6。 ONC電子励起し、ランタニドは、ミリ秒の範囲の減衰率を持つ光子の放出を介して基底状態に緩和する。減衰は一重対一重緩和も三重項対一重緩和でもないので、光子の放出を適切に蛍光または燐光を呼び出すことはできませんが、より適切にルミネ1と呼ばれる。ランタニド発光の長い減衰が大幅に寿命測定に役立ちます。寿命測定は、以下の関係を介して効率を決定するために使用することができる。
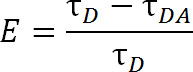 式2
ここで、Eは、伝達の効率であり、τDは、エネルギー移動に関与していないドナー(キレート化ランタニド)の寿命であり、アクセプターとのエネルギー伝達に関与するときτDAは、ドナーの寿命である。 LRET付き、τDAがアル缶テルビウムの寿命はそんなに大きな有機アクセプターフルオロフォアよりもあるので、そのように感作されたアクセプター発光の寿命として測定する。アクセプターは、その扇動励起(ドナーランタニド)と同じ寿命で発光し、アクセプタ自身の固有の蛍光寿命から寿命への寄与は相対的に無視できる。アクセプター、ドナーの1の比率:むしろドナー発光よりも感作された放射を測定することにより、私たちも正確に1にラベル付けを確保する必要がなくなります。タンパク質の代わりに受容体および供与体フルオロフォアの両方で同時に標識することができる。不均一に標識人口はなりますが、二重ドナー標識タンパク質は、アクセプター波長で発光せず、二重受容体標識されたタンパク質は、励起されることはありません。さらに、フルオロフォアの間の距離は同じであるべきであるにかかわらず、どのシステイン部位の特定のフルオロフォアはドナーとしての等方性ランタニドを使用する場合は特に、に付着するので、旧姓ドナーまたはアクセプタのいずれかを受信するために特定のサイトを指定するには、dは不要です。強度が不均一な集団で影響を受ける可能性があるが、依然として検出されるのに十分すぎるほどであるべきである。
実験を計画する際には、フルオロフォアの選択は、一組のR 0の値だけでなく、測定中の予想される距離範囲によって決定されるべきである。 R 0値は、次式で定義される。
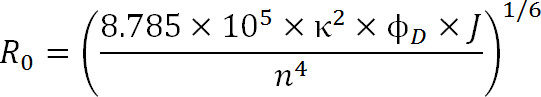 式3
ここで、R 0はオングストロームでフェルスター半径、2κは(通常は3分の2であると仮定)は、2つの色素間の配向因子であり、φDは 、ドナーの量子収量であり、Jはドナーの間の積分スペクトルの重なりがある1 - Mにおける発光スペクトルとアクセプターの吸収スペクトル-1〜4nm であり、nは媒質1の屈折率である。
当研究室では、プローブさ、タンパク質上のドナーとアクセプターラベル部位の間にプロテアーゼ認識部位を導入することにより、従来のLRET手法への変更を追加しました。この変更は、全哺乳類の細胞7などの非精製されたシステムでの調査が可能になります。標識化のための部位としてシステインを使用する場合に、システインのスルフヒドリル基に結合したマレイミド共役色素で標識する過程で、システインを有する細胞上の他のタンパク質も標識されているので、この技術は、特に有用である。しかし、目的のタンパク質に対するプロテアーゼ切断部位を含む、および切断前後の寿命を測定することにより、実験者は、定量的に生の信号からプロテアーゼ切断後のバックグラウンドシグナルを差し引くことができる。この減算は、( 図興味のあるタンパク質から生じる特定の信号を分離するURE 2)。上記の変法を用いて、LRETは、タンパク質上のテルビウムキレートドナーおよびアクセプタープローブとの間の距離の変化を測定するため、精製を必要とせずに、タンパク質の近くの生理学的状態の立体配座の変化を監視するために使用することができる。

赤図1。吸収と発光スペクトル黒でキレート化テルビウムのと同様に、代表的なアクセプター、アレクサ488、。複数の発光ピークとテルビウムキレートの各ピークシャープ、狭い発光範囲を注目してください。このパターンは、テルビウムアクセプターフルオロフォアの多様で使用することが可能となり、テルビウムには発光を示していないこれらの範囲内で感作された放射の測定を容易にする。 Aで非常によく重なって波長486におけるテルビウムの発光ピーク 2のフルオロフォアの間で発生する共鳴エネルギー移動を可能にするアレクサ488のbsorptionピーク、。 515の波長は、テルビウムの発光ピークの間の谷にあり、非常に520ナノメートルのアレクサ488の発光ピークの近くに、このペアに対して感作された放射を検出するための優れた選択肢です。アクセプターピーク付近であることが望ましいものの、必要とされていない-565 nmは、まだまたテルビウム発光を検出することなく、アレクサ488放射を検出することが可能であることに注意してください。
| アクセプターフルオロフォア | R 0(Å) | 発光波長(nm) |
| アトー465 | 36 | |
| フルオレセイン | 45 | 515 |
| アレクサ488 | 46 | 515 |
| アレクサ680 | 52 | 700 |
| アレクサ594 | 53 | 630 |
| アレクサ555 | 65 | 565 |
| 65 | 575 |
表1 LRETドナー11としてテルビウムキレートを使用するための一般的に使用されるアクセプターフルオロフォアのリスト 。ドナーおよびアクセプターは、AMPA受容体の可溶性アゴニスト結合ドメインに結合させた場合には、R 0値を測定した。それは、それぞれの新しいシステムが研究されて、再びR 0の値を測定することが理想的である。

図2に示さLRET方法の概要。(A)AMPA受容体は、リガンド結合時にコンフォメーション変化を受ける膜タンパク質である。クラムシェル形のリガンド - ビndingドメインはここに赤で丸で囲まれている。 (B)タンパク質に結合していない、AMPAのリガンド結合ドメインは、オープン構造(左)に存在します。グルタミン酸をリガンドに結合すると、タンパク質は、そのリガンド(右)を中心に閉じます。 LBD上の証拠のサイトでフルオロフォアを確定すると、このコンフォメーション変化の性質は、その後、蛍光寿命に影響を与えるフルオロフォアの変化との間の距離として見ることができます。 (C)全細胞を標識する場合、目的のタンパク質と同様に、バックグラウンドの膜タンパク質の両方の標識(左)起こり得る。プロテアーゼ切断した後、目的のタンパク質からLRET信号はそのままバックグラウンド信号(右)を残し、原因可溶性フラグメントが放出されなくなります。このバックグラウンド信号は、原信号から減算することができる。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
1目的のタンパク質を含む構築を作成
適当なベクターに目的のタンパク質を発現する遺伝子をクローニングします。彼らは、HEK293およびCHO細胞のような哺乳動物系における発現のために非常に適しているなどのpcDNAシリーズやのpRK5などのベクターを使用してください。
フルオロフォアでタグ付けするために、タンパク質上のサイトを選択します
- タンパク質内の可能なコンホメーション変化を反映することができますラベリングサイトを選択してください。可能な場合は、この決定を行う手助けするタンパク質または相同タンパク質の結晶構造を使用する。利用可能な結晶構造が存在しない場合、タンパク質の可能な構造を予測するので、適切な部位への洞察を受け取るためのオンラインソフトウェアを使用する。
- タンパク質を標識することができるように、選択された残基の側鎖は表面に露出し、フルオロフォアにアクセス可能であるような残基を選択する。
- その残留物を選択してくださいリガンド結合に関与しない例サイトの、タンパク質の機能にとって重要ではない。
- システイン変異を導入することで、タンパク質構造に最小限の摂動を引き起こすこと、例えばセリン、類似している部位に優先権を与える。
- ラベリングサイトを選択した後、タンパク質はこれらのみ意図されたサイトからのLRETを与えることを確実にするために突然変異を作る。離れた潜在的にマレイミド結合体化するために蛍光タグを結合することができた非ジスルフィド結合システインを変異させる標準的な部位特異的変異誘発プロトコルを使用してください。これらは、タンパク質の折り畳み形状の蛍光色素と反応してはならないので、離れてジスルフィド結合のシステインと埋め込み、遊離システインを変異しないでください。
- 標準的な部位特異的突然変異誘発プロトコルを用いて点変異を作製することにより、所望の部位でのシステイン残基を導入する。
- 特にタンパク質からシステインの1を切断することができ、プロテアーゼ切断部位を含めます。場合それは、保守的(認識配列はLVPRGS)またはトロンビンを有するように、タンパク質を突然変異させることによって部位を導入するためにタンパク質配列が可能Xa因子(認識配列IDGRまたはIEGR)導入されたシステイン周辺の配列およびプロテアーゼ切断するためにアクセス;さもなければテトラ - またはヘキサ - ペプチド配列は、全体として挿入することができる。導入されたシステインの開裂一つは、タンパク質中の特定のケースの他の部分から解離すると、これが変異システインに隣接する2つの切断部位を必要とすることができるように、サイトを選択してください。
3試験タンパク質の発現と機能
- 突然変異したタンパク質の発現を確認するためにウエスタンブロットを実行します。
- 全然、機能不全のタンパク質の立体構造変化を研究避けるためにも、変異は最小限しかタンパク質の機能を変更したことを確認するために、タンパク質の機能アッセイを実行します。
注:全てのタンパク質は、異なる機能を有するので、単一のfは存在しない LRETのために特別に使用されているunctionalアッセイ;しかしながら、機能的アッセイのいくつかの例は、イオンチャネルのための酵素、受容体に対するリガンド結合アッセイおよび電気生理学的研究のための酵素活性アッセイが含まれる。
4、使用するフルオロフォアを選択
範囲は、フルオロフォアペアの0 R 0.5-1xとの間にあるように測定されている予想される距離範囲に基づいて蛍光団を選択します。
注:これは一般的にはるかに長い寿命を持つ背景、より容易に減算することができます。測定中の予想される距離範囲は約35オングストロームである場合は、このペアに対するR 0は 53 A( 表1)であるため、例えば、使用する適切なフルオロフォアペアは、アクセプターとしてドナーおよびAlexa 594などのテルビウムキレートであろう。
5。一過哺乳動物細胞の必要量をトランスフェクションすることにより、プロテインエクスプレス
ntent ">一過、典型的には、共通のトランスフェクション試薬のいずれかを用いて選択された哺乳動物細胞に関心対象のタンパク質をトランスフェクトHEKおよびCHO細胞株についてLRET実験ごとに4つの10cmディッシュを使用しているが、この量は、タンパク質の発現に依存して変化し得る、安定性、 等 。細胞は、収穫前に36〜48時間、タンパク質を発現するようにします。6タンパク質を標識
- 培養皿から細胞を切り離します。単純に皿の底に対する緩衝ピペッティングしてHEK細胞を切り離します。細胞外の緩衝液を用いてメディアを洗い流し、細胞スクレーパーでCHO細胞を切り離します。
- 3分間の1100×gでの遠心分離によって細胞を回収します。標識後だけでなく、その後の洗浄の後に細胞を収集するためにこれらの同じ遠心機の設定を使用してください。
- その後100〜300 nMの最終濃度までの等モル量でドナーとアクセプターフルオロフォアを追加、細胞外液3ml中の細胞を一時停止します。回転子fにインキュベートまたはRTで1時間。
- LRET測定のための細胞外緩衝液(通常2ml)にこれらの細胞を懸濁その後、未結合の蛍光団を除去し、細胞外緩衝液を用いて、これらの標識された細胞を3〜4倍洗う。
- 対照として、いずれかのアクセプターフルオロフォアを添加せずにのみドナー·フルオロフォア(テルビウムキレート)を用いた細胞の別のセットにラベルを付ける。
注:これらのドナーのみの実験からのデータは、分析を完了するために必要である。これらの実験は、同一または異なる日に行うことができる。 - ラベリング処理も標識に用いられる部位に応じて機能を妨害する可能性がある場合も、標識された変異体タンパク質と、今回の機能検証を行う。
注:これらの実験は、同一または異なる日に行うことができる。
7。LRET実験をセットアップします
- 1ミリリットルの最小容積の石英キュベット中の懸濁した細胞を配置します。
- コンピューターと機器の電源をオンにし、DATのパラメータを調整それに応じて取得プログラム。
- ドナーフルオロフォア(テルビウムキレートに適していますnmの330から340)の吸光度の範囲に励起波長を設定します。
- アクセプター発光を使用アクセプタに基づいて変化していることを念頭に置いて、適切に発光波長を設定します。重要なことは、唯一のアクセプター発光を測定し、いずれのブリードスルードナーの放出から含まれていません検出波長を選択します。例えば、アクセプタ表1のようにアレクサ555用の565ナノメートルの波長を使用しています。タンパク質は唯一のドナーであるが、アクセプタずに標識したドナーのみ の測定のために、テルビウムキレートの排出を測定するための波長545nmを使用しています。
- 長寿命部品を逃しされないことを確実にするための少なくとも3倍と予想LRET寿命であることが発光検出の長さを設定します。
- スキャンを実行します。結果の一貫性を確保するために、99スイープの少なくとも3つのスキャンを行います。番目の保存テキスト·ファイル(* .txt)など、電子結果。
- (そのようなリガンドの添加のような)異なる条件に関して、タンパク質の立体構造変化を測定するには、それらの条件を変更して、再度、この新しい条件の下で同じ試料について99スイープそれぞれの少なくとも3つのスキャンを実行します。グルタミン酸受容体の立体配座に対するグルタミン酸の影響を研究した場合、例えば、ステップ7.3でスキャン同じサンプルに1 mMのグルタミン酸を追加してから、もう一度スキャンします。
- 適切なプロテアーゼの5台まで追加して、切断が完了し、これ以上の変更は三つの連続スキャンの一生の間に見られなくなるまで継続的にスキャンしてください。通常、切断は、2〜3時間で完了します。第Xa因子切断部位は、プロテアーゼ切断に使用されている場合、例えば、試料に第Xa因子の3μlを添加し、3時間30分毎に走査する。
8。得られたデータを分析します
- データ解析ソフトウェアを開きます。
- 蛍光寿命をロードテキストファイルを開くために、インポートASCIIを使用してデータ。一つのファイルに、すべての複製だけでなく、最終的なバックグラウンドの測定値をロードします。
- 最終的なデータを取得するために、各実験条件についてすべてのスキャンからのデータを平均化。そのためには、個別の臨床試験を含む列を強調表示し、メニューバーの[データ]メニューの下に、臨床試験からの平均蛍光強度だけでなく、標準偏差と標準誤差を表示する行に統計をクリックしてください。
- アクセプターの増感発光の寿命を表す曲線を作成するためのX軸上のマイクロY軸および寿命に蛍光強度線グラフとして平均値をプロット。データのより良い視覚化を可能にするために、対数スケールにプロットのY軸を変更します。
- 完全な切断を示す重複を示し、最終的なスキャンを平均バックグラウンド測定データ上の手順を繰り返し8.3。
- 上の平均バックグラウンドデータを表示します平均化された生データを含む同じプロット。そのためには、プロットメニューの下にある[レイヤ管理]ダイアログボックスを開きます。次に、意味レイヤの内容のリストに背景を含むデータを転送します。
- 平均生データに対する平均背景データの位置を合わせます。そのためには、乗算や背景の末尾には、生データの最後尾と重複するまで、必要に応じてバックグラウンドデータを分割するために数学のメニューの下に簡単な数学関数を使用します。
注:このテール終了時に、目的のタンパク質からの寿命はすでに完全に離れて減衰しているはずです。何整列していることは、単にプロテアーゼ切断前と後の両方に存在するバックグラウンドシグナルである。 - もう一度簡単な数学関数を使用して、初期の生のLRET信号から整列背景信号を引きます。
- (サイトや実験計画に応じて、単一または複数の指数)指数関数的減衰にデータを合わせる。
- 終了後に開始するように装着するための開始境界を設定するレーザパルスの。後続のすべてのカーブフィッティングのためにこの同じ始点を使用してください。
- セレクトフィット関数]ダイアログボックスで、単一の指数関数的減衰のため、以下の式に寿命が適合するように指数関数的な減衰を選択します。
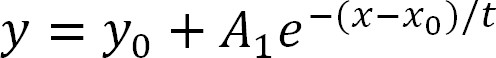 式4
ここで、yは蛍光強度を表し、yは0によるシステムからのノイズバックグラウンド強度を表し、1は信号強度であり、tは蛍光寿命であり、xは時間であり、x 0時間がオフセットされる。 - で、x 0から0修正フィット関数を起動し、データに合わせて。
注:実験のみサイトの一つ対からの信号を有するように設計されている場合、結果のデータは容易に単一指数関数的減衰8によって適合すべきである。フィットの残差は適合度を決定するための優れた方法であり、追加の減衰寿命はrequirある場合エド。
- フェルスターの式(式1および上記2の再配置)を使用して、蛍光団との間の距離を計算するためにデータから得られた寿命を使用します。
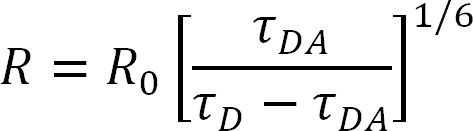 式5
注:DAは 、感作アクセプター発光寿命として測定されたτして前述したように、すべての変数である。 R 0及びRの測定に関するさらなる詳細および実施例は、他の場所7,9,10-見出すことができる。 - 再現性を確実にするために、少なくとも三回の実験及びデータ分析を繰り返す。同じ測定の個別の反復の間に矛盾が問題とデータの有効性を呼び出す。追加の制御実験や繰り返しを使用しています。エラーを伝播(博士トーマス·フーバーによって開発された)自由グスターヴォエラー解析計算または同様のシステムを使用して測定誤差を計算する一生に一度のフィット。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
ランタニドドナーで成功LRET測定がミリ秒の時間範囲内にドナーだけの寿命を持っている必要があります。ドナーとアクセプターの両方で標識されたタンパク質の感作LRET発光の寿命は、バックグラウンド減算後の図3マイクロ秒の範囲の寿命を有する、特に短くなる。経時的に安定になるはず寿命の増加を切断結果をプロテアーゼ( すなわち、もはやプロテアーゼ切断が完了し、図4であることを示す、)を変更することはありません。LRET信号はサイトの一組だけから来る場合、バックグラウンドを差し引いた後の結果の発光寿命は、単一指数寿命を与える必要があります。
コンフォメーション変化を測定する場合、特定のLRET信号が測定図3の誤差の外側寿命の変化を示すはずである。測定の誤差は誤差の伝播によって計算することができる。寿命のフィット感と関連するの。方程式4に記載の指数関数的減衰関数の最小数にデータをフィッティングした後、寿命τを決定することができる。 LRET対が試験された条件下で二つの蛍光の間の...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
LRETは、科学者が単一のタンパク質内だけでなく、多量体タンパク質中のサブユニットの間のドメイン間の距離を測定することができる強力な手法です。このように、LRETは、タンパク質または他の巨大分子の立体構造変化とダイナミクスを調べることに適しています。上記のプロトコルは、簡単に自分の仮説をテストするために、適切に装備ラボを許可する必要があります。しかし、新しい研究者を悩ま可能性があるエラーの多くの一般的な情報源があります。ほとんど、あるいは全くLRET信号が見られる場合は、最初に使用される波長の設定を確認してください。励起は、テルビウム(330〜340 nm)での吸光度の範囲であるべきである。ドナー-アクセプター測定のために、発光波長がアクセプターフルオロフォアと一致している必要がありながら、サンプルだけドナーフルオロフォアとアクセプターフルオロフォアなしで標識されたドナーのみ 測定のために、発光波長は、 図1に示されるピークの一つであるべきである表1を使用している。waveleた場合ngth設定が正しいか、バッファの互換性をチェック。いくつかのフルオロフォアは、特...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは、開示することは何もない。
謝辞
この作品は、健康グラントGM094246、米国心臓協会グラント11GRNT7890004、国立科学財団助成MCB-1110501の国立研究所によってサポートされていました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| LanthaScreen チオール反応性 TB キレート | ライフ テクノロジー | ズ PV3579 | |
| アクセプター フルオロフォア-フルオレセイン-5-マレイミド | ライフ テクノロジーズ | F-150 | セプターの選択は、特定の実験に依存します |
| アクセプターfluorophore-Alexa Fluor 488 C5 Maleimide | Life Technologies | A-10254 | アクセプターの選択は特定の実験に依存します |
| アクセプター蛍光色素-Alexa Fluor 555 C2 Maleimide | Life Technologies | A-20346 | アクセプターの選択は特定の実験によって異なります |
| アクセプターfluorophore-Alexa Fluor 594 C5 Maleimide | Life Technologies | A-10256 | アクセプターの選択は特定の実験によって異なります |
| アクセプター蛍光色素-Alexa Fluor 680 C2 Maleimide | Life Technologies | A-20344 | アクセプターの選択は、特定の実験に依存します |
| QuantaMaster 3-SS | Photon Technology International | Spectrofluorometer は、ミリ秒の範囲で寿命を測定する能力を持つパルス励起を持っている必要があります | |
| FluoreScan 2.0 | Photon Technology International | Data Acquisition Software 原稿で使用されます。蛍光装置 | |
| Origin 8.6 | OriginLab | Originは、プロトコールで使用されるデータ解析ソフトウェアです。他の同様のデータ分析ソフトウェアを使用できます | |
| 石英キュベット | Starna Cells, Inc | 3-Q-10 | |
| 攪拌子 | Bel-Art Products | F37119-0007 | 細胞を懸濁液に保つためにキュベットで使用されます。キュベットに合う任意の攪拌棒を使用できます |
参考文献
- Selvin, P. R. Principles and biophysical applications of lanthanide-based probes. Annual Review of Biophysics and Biomolecular Structure. 31, 275-302 (2002).
- Stryer, L., Haugland, R. P. Energy transfer: a spectroscopic ruler. Proceedings of the National Academy of Sciences of the United States of America. 58, 719-726 (1967).
- Stryer, L. Fluorescence energy transfer as a spectroscopic ruler. Annual Review of Biochemistry. 47, 819-846 (1978).
- Selvin, P. R., Hearst, J. E. Luminescence energy transfer using a terbium chelate: improvements on fluorescence energy transfer. Proceedings of the National Academy of Sciences of the United States of America. 91, 10024-10028 (1994).
- Chen, J., Selvin, P. R. Thiol-reactive luminescent chelates of terbium and europium. Bioconjugate Chemistry. 10, 311-315 (1999).
- Ge, P., Selvin, P. R. Thiol-reactive luminescent lanthanide chelates: part 2. Bioconjugate Chemistry. 14, 870-876 (2003).
- Gonzalez, J., Rambhadran, A., Du, M., Jayaraman, V. LRET investigations of conformational changes in the ligand binding domain of a functional AMPA receptor. Biochemistry. 47, 10027-10032 (2008).
- Ramaswamy, S. S., Maclean, D. M., Gorfe, A. A., Jayaraman, V. Proton mediated conformational changes in an Acid Sensing Ion Channel. J. Bio. Chem. 288, (2013).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Conformational changes at the agonist binding domain of the N-methyl-D-aspartic acid receptor. The Journal of Biological Chemistry. 286, 16953-16957 (2011).
- Rambhadran, A., Gonzalez, J., Jayaraman, V. Subunit arrangement in N-methyl-D-aspartate (NMDA) receptors. The Journal of Biological Chemistry. 285, 15296-15301 (2010).
- Kokko, T., Kokko, L., Soukka, T. Terbium(III) chelate as an efficient donor for multiple-wavelength fluorescent acceptors. Journal of Fluorescence. 19, 159-164 (2009).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
タグ
