シナプス前放出面膜でのCa2+電流の記録は、Ca2+の侵入と神経伝達物質の放出を正確に理解するための鍵となります。ヤツメウナギの脊髄の急性解離を示し、機能的な孤立した細網脊髄軸索を生成し、個々のシナプス前末端の放出面膜から直接記録できるようにします。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
シナプス伝達は非常に迅速なプロセスである。シナプス前末端へのCa 2 +の流入を駆動する活動電位は、リリースの顔膜に位置する電位依存性カルシウムチャネル(VGCCs)を介して、小胞融合及び神経伝達物質の放出のためのトリガーである。シナプス伝達の迅速性に不可欠な活動電位、VGCCsの到着と、神経伝達物質放出機構との間の空間的および時間的な同期性がある。直接個別のシナプス前終末の放出面膜からのCa 2 +電流を記録する機能は、シナプス前のCa 2 +および神経伝達物質放出の間の関係を正確に理解するために不可欠である。電気生理学的記録のためのシナプス前のリリースの顔膜へのアクセスは、ほとんどの準備とシナプス前カルシウムでは使用できません2+エントリはイメージング技術と巨視的現在measuremeを使用して特徴付けられているNTS - CA 2 +エントリーを視覚化するのに十分な時間分解能を持っていない技術。直接単シナプス前終末でのVGCCsの特徴付けは中枢シナプスでは不可能であったため、これまで成功した唯一のニワトリ毛様体神経節の萼型シナプスにおいて、ラットの腎杯に達成されている。私たちは、成功したシナプス後構造を欠いた機能的なシナプス前終末の孤立網様体軸索をもたらす脊髄の急性解離準備を開発することにより、ヤツメウナギの脊髄の巨大な網様体シナプスでこの問題に対処してきた。私たちは、蛍光標識し、個別のシナプス前終末を識別し、記録のためにそれらをターゲットにすることができます。この調製物を用いて、免疫組織化学および電気生理学的手法を用いて個別のシナプス前終末の放出面に直接VGCCsを特徴としている。のCa 2 +電流は、リリースの顔膜Oに直接記録されていますfは個別のシナプス前終末、中枢シナプスで実施された最初のこのような記録。
概要
シナプス伝達は非常に迅速で正確なプロセスである。シナプス前終末の活動電位侵入は、シナプス前カルシウム結果として生じる増加、レリーズ顔膜に位置VGCCsの開口部につながる2 +小胞融合および神経伝達物質の放出1のトリガとして機能する。これらのステップのすべてがマイクロ秒2、数百内で発生するため、小胞融合機構3にVGCCsの緊密な空間結合を必要とします。シナプス前のCa 2 +フラックスは、主にカルシウム2 +感受性色素4を用いてアプローチ撮影により特徴付けられている。シナプス前ニューロン中のCa 2 +を調節組み込むのCa 2 +緩衝液は、間接的に、シナプス前カルシウムおよび神経伝達3との間の関係を特徴付けるために使用されている。また、カルシウム2 + 5アンケージングまたはmacroscopiを記録することにより、シナプス前遊離Ca 2 +濃度を調節することのCa 2 + cの電流は小胞融合および/ または放出の尺度と組み合わせて使用されている;そのような静電容量測定6または後シナプス応答と同じ問題に対処するために2。しかし、カルシウムを直接解放面で2 +電流、膜の脱分極は、シナプス小胞融合及び神経伝達物質の放出をトリガするのCa 2 +電流に変換されるシナプス前膜の特殊なセクションを特徴付ける、カルシウムの正確な測定値を得るために不可欠な2+シナプス小胞の融合のための要件。また、直接小胞融合および放出の正確な同時測定と相まって個体シナプス前終末でのCa 2 +電流を特徴付ける能力は、活動電位、シナプス前のCa 2 +電流の時間的経過の間のタイミング関係の正確な解明を可能にし、小胞融合および放出。リリース面膜へのアクセスシナプス後樹状突起により並置を閉じるによるシナプス前末端の大部分では使用できません。それは個人のシナプス前終末での電流を直接測定を防ぐため、このアクセス不能にVGCCsの特性評価における主要な障害となっている。個別のシナプス前終末におけるシナプス前のCa 2 +電流の直接の特徴付けは、これまで中枢シナプスでは不可能であった2つだけ腎杯型シナプス前終末に達成された。ニワトリ毛様体神経節7-10およびラット腎杯11,12の萼型シナプス。ヤツメウナギの脊髄13内の巨大な網様体シナプスを含む他のすべてのシナプス前終末では、シナプス前のリリースの顔膜へのアクセスの欠如は、シナプス前のCa 2 +フラックスを研究するために、例えばCa 2 +イメージングなどの間接的なアプローチの使用を必要としている。
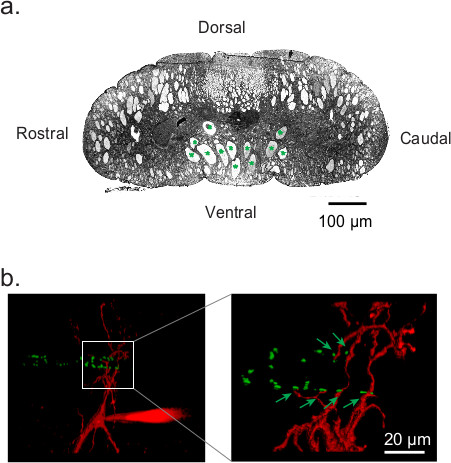 図1:ヤツメウナギ巨人網様体シナプス。(a)はヤツメウナギの脊髄の断面は背腹方向を示す。網様体軸索は緑のアスタリスクでマークされます。シナプス後ニューロン13の上に(緑色の矢印で示される)シナプス前網様体軸索パッサン接点EN数多くのことを示すヤツメウナギの脊髄における網様体シナプスの(b)の 3次元復元。シナプス後ニューロンがアレクサフルオロ568ヒドラジド(赤)で満たされているが、シナプス前終末には、アレクサフルオロ488ヒドラジド結合ファロイジン(緑色)で標識されている。
吻側-尾側軸を図1aに脊髄並列の腹側領域に位置ヤツメウナギ巨大な網様体軸索、ニューロン上にパッサンシナプスの連絡先専用のフォームに複数の脊髄前角14 図1bは 13。巨視的全細胞のCa 2 +電流は、無傷の脊髄13,15に網様体軸索から記録されています。しかし、Caを直接測定で前回のブラインドの試みは、細胞結合型パッチクランプ法を用いて、無傷のヤツメウナギの脊髄における網様体軸索内2 +電流が原因の対向シナプス後のプロセスによるシナプス前のリリースの顔膜へのアクセスの欠如に13失敗したことが証明されている図1b。レリーズ顔膜は以前に、シナプスの機械的摂動前に12を記録するか、機械的解離16と連結酵素処理にシナプス後ニューロン11を除去することによってアクセス可能とされています。脊髄の複雑な組織を考慮すると、シナプス後ニューロンを識別し、機械的にそれを撤回または番目を撹乱することは極めて困難で証明する電子シナプス。したがって、私たちは機械的解離に続いて酵素処理17を使用することにしました。
このアプローチを使用して、私たちはそれによって個人のシナプス前終末への無制限のアクセスを提供し、あらゆるシナプス後のプロセスを欠いた機能的なシナプス前終末で実行可能な孤立網様体の軸索が得ヤツメウナギの脊髄の急性解離準備を開発しました。標準の倒立顕微鏡と蛍光画像と一緒に、それが細胞-を使用して記録するためのCa 2 +電流は図4c及び図4dに分離する記録液を含んだパッチピペットを用いて、同定および個別の蛍光同定シナプス前終末を標的にすることを可能添付の電圧クランプ法。のCa 2 +電流は、個別のシナプス前終末図4fのシナプス前のリリース面膜に直接記録されている。これはsignificaですそれは中枢シナプスで実施された最初のこのような記録であるので、シナプス伝達の分野では画期的なヌクレオチド。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
ポリ-D-リジン臭化水素酸塩の調製
- 0.1Mホウ酸緩衝液(pH8.5)で1 mg / mlのポリ-D-リジン臭化水素酸塩を準備します。
- -20℃で分注し店。
カバーガラスの2。ポリリシンコーティング
注:層流チャンバー内のすべてのクリーニングおよびコーティングステップを実施する。
- 2時間、1N塩酸(HCl)を含むペトリ皿にカバースリップを置きます。
- 吸引し、すべてのHClおよび70%エタノール(エタノール)2〜3倍で洗い流して。
- 1時間70%エタノールにしておきます。
- 吸引するすべての70%エタノール、100%エタノール2〜3倍でリンスすること。
- 2時間の100%EtOH中のままにしておきます。すべてのエタノールを吸引。
- 数秒間濾紙空気乾燥で乾燥したブロット。
- 1 mg / mlのポリ - リジン溶液中の場所O / N。
- ミリポア水4-5x翌日カバーグラスをすすぐ。
- エアドライポリリジンは、クリーンシャーレにガラスローラーのカバースリップをコーティングした。
- immunohistochemistr用yは、35×10ミリメートルペトリ皿の蓋を使用します。 0.3センチメートルの厚さに皿に30°CO / Nに設定することができます:SYLGARDを準備(polydimethylsilioxane、PDMS)は、PDMS(1重量エラストマーを、エージェント10を硬化させること)に注ぐことによって料理を並んでいた。これが設定された後、PDMSにはめ込み1センチメートルによって2cmにカット。カバースリップのために上記と同様の手順に従ってポリリジンで清掃やコートのインセット。
- 使用するまで層流室内に覆われた店舗ポリリジンコーティングしたカバーガラスや食器(2週間までが、3〜4日ごとに定期的に調製することにより、最良の接着剤の結果を得る)。
- 振動組織スライサーで脊髄ピンに、PDMSブロックを準備します。 1重量:エラストマーAとエラストマーB 1を混ぜる。 100×15mmのペトリ皿に注ぎ、30℃でO / Nを設定することを可能にする。 PMDSの長方形の部分をカットし、エポキシ接着剤を使用して、スライスベース板に接着する。接着剤が所定の位置に、PDMSを固定設定することができ、フラットを取得するために表面から複数の薄い部分をスライス上の組織をピンするために表面。
ヤツメウナギ脊髄の3。急性解離は孤立網様体軸索を得た
- トリカインメタンスルホネート(; 100 mg / LのMS-222)とammoecoeteまたは成体ヤツメウナギ(Petromyzonマリナス ) を麻酔。犠牲にするヤツメウナギを含む、蓋で覆われたプラスチック製のカップに、水の中に麻酔薬を追加します。
- のCaCl 2、1.8 130のNaCl、2.1のKCl、2.6のMgCl 2、4、HEPES、4ブドウ糖液(pH7.6、浸透圧270 mOsmで)と本体を削除します(単位:mm)以下の組成の低温(4℃)リンゲル液でヤツメウナギを斬首壁の筋肉は、脊髄の背側表面を露出させる。
- 細かい鉗子を用いて脊髄の後面から髄膜のプリミティバを削除します。この段階では腹側髄膜のプリミティバを削除しないでください。
- 1cmの長さの断片に脊髄を切断します。
- PDMSはベースナンプラーをスライス並んで、背側を上に向け、細かい虫ピンを使用して、脊髄片をピン氷のように冷たいリンゲル溶液を含む振動組織スライサー室のTE(2.12を参照)。
- 解離プロセス図2aと図2b中にハンドルとして機能するように終わり頭側と尾側に無傷の背柱部を残して、ブレードで吻側-尾側軸に沿ってスライスして、脊髄の後柱の中央部分を削除します。スライスとその下の網様体、軸索損傷のない列図2bを残すのみ脊柱を除去し、深さの設定を可能にする最も遅い速度設定を使用してください。
- エルManira&Bussièresから適応(リンゲル液に1 mg / mlのプロテアーゼ(ストレプトマイセス·グリセウスからタイプXIV)および(クロストリジウムヒストリからタイプI-A)調製した1 mg / mlのコラゲナーゼのカクテルで45分間RTでスライスし、脊髄片をインキュベート、1997 17)。
- PDMS微細ピンを使用してピン酵素処理脊髄片をシャーレコンタライニングining冷(4℃)リンゲル液。
- 細かい鉗子で腹髄膜のプリミティバを削除します。
- 脊髄図2dに無傷の網様体の軸索の中央列を残してスライスした背側部分の中間に外科用メスの刃で脊髄の横管をカット。
- レンズにイマージョンオイルの滴を置きます。
- 記録チャンバー図3のスロットにポリリジンコーティングしたカバーガラス( 図3a、トップピース、赤い四角形)を配置し、シールを容易にするために、すべてのエッジ( 図3aの赤と青の矩形間の空間に真空グリースを適用します。ネジ所定の位置にトップは、記録リグ上の挿入図にチャンバーを配置します。
- パスツールピペットを用いて記録チャンバにリンゲル液を加える。
- 熱電冷却デバイスの入力チューブに不凍液を含む耐圧ビンの流出チューブを接続します。 OUTPを接続します外側冷却ジャケットの入力端とリザーバ図3bの出力端に熱電冷却素子のut個のチュービング。
- 記録チャンバーで一度に脊髄の一枚を置き、静かに軸索が分離されるまで、 図2eおよび図2fはテフロンコーティングされた鉗子を用いてすべての回でカバーガラスに沿って、それを維持し、脊髄を分離する。
- 記録チャンバー図3bの外側の冷却ジャケットを介して、熱電冷却装置を介して、(置換により)不凍液加圧(ボトル内に押し込まれる窒素ガス)を通過させることにより10°Cまで記録液温度をもたらす。
- 軸索は10℃で1時間後に解離回復できるようにします。
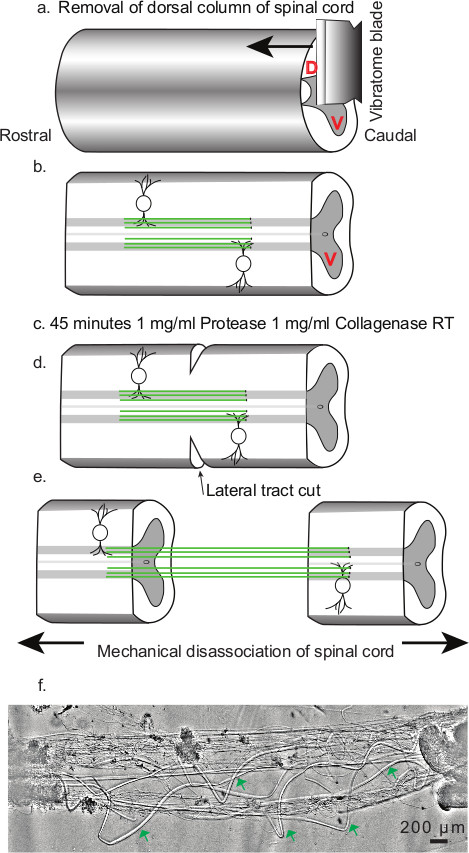
(a)の除去。矢印は、組織のスライスの方向を示している。アルファベットのV(赤フォント色)による腹側角ながら背側ホーンは、アルファベットのD(赤フォントの色)でマークされています。(b)の後柱は網様体軸索(緑の線が露出脊髄の中央部分では削除)。スライス工程後に無傷のまま腹側角は、アルファベットV(赤のフォント色)によってマークされている。(c)のプロテアーゼおよびコラゲナーゼで45分間処理はカクテル(1mg / ml)を酵素。横管(d)の切断脊髄;位置、方向、横方向の切り込みの程度を示す。(e)の脊髄の機械的解離。矢印は、鉗子および解離時の剥離力の方向の位置を示す。(f)に Representati解離した網様体軸索準備の例をVEの。緑の矢印は、任意のシナプス後のプロセスなしに急性解離し網様体の軸索の領域をマークします。
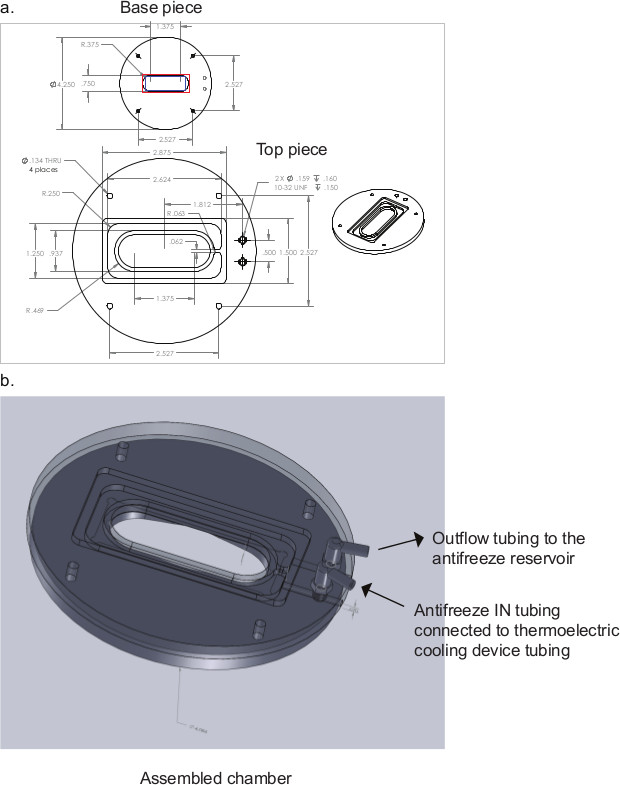
電気生理学実験用のチャンバーを記録する図3の回路図。提供さ寸法はインチです。 (a)は basepiece図に示されている赤い長方形がbasepieceにおけるカバースリップの溝にカバースリップの位置を示している。高真空グリースを適用した場合の(a)basepiece図に示す赤と青の長方形の間の領域であり、(b)は、組み立てられた記録チャンバーを示している。
FM 1-43と4。標識およびシナプス前終末の同定
- VへのFM 1-43を組み込むことによって、シナプス前終末にラベルを付ける高K +脱分極時にシナプスエキソサイトーシスの間にesicles。 (30 mMのKClを含む5ミリリットルリンゲル溶液中)、5μMのFM 1-43と準備を灌流。
- 1 mg / mlのAdvasep-7(5ミリリットルリンゲル溶液中で)過剰FM色素を除去する)18を有する調製物を灌流。
- どんなremant染料とAdvasepをウォッシュアウトするための15分間のリンゲル液で準備を灌流。
- デジタルCCDカメラおよび画像取得ソフトウェア细と組み合わせて倒立蛍光顕微鏡上で100×の油浸レンズ(NA 1.25)を有する画像、標準的な蛍光イメージングプロトコルを使用して。
- 図4c及び図4dを記録するために標的とするように、蛍光標識されたシナプス前終末を特定します。
孤立網様体軸索の5。免疫組織化学
- 二価イオン(カルシウム2 +およびMg 2 +)を無料でディッシュインセット(プロトコルセクション2.10。)フィルリンゲル液。
- P-87マイクロピペットプラーでパッチピペットを作製。 (シリコーンチューブを0.89ミリメートル吸引端に取り付けられたマイクロピペットチップと内径を用いて)パッチピペット(外径1.5mmのガラス)と吸引を使用して、ポリリジンインセットの一方の端部に縫合糸少量の接着剤を配置する。
- プロトコルセクションで3 図2のように同じ手順を使用して解離を行ってください。やさしく表面に強く接着させる鉗子で縫合糸糊とプレスで脊髄の一方の端を置きます。インセットのもう一方の端に縫合糸接着剤の別のドロップを置き、静かに軸索が解離されるまで、脊髄を伸ばし、縫合のりの上に静かにドラッグすることで自由な脊髄端を接着する。穏やかに鉗子で押し下げて所定の位置に固定してください。
- 為替価は、灌流による定期的なリンゲル液でリンゲル液を解放する。
- 軸索は20分後にdissoc回復することを許可する10℃でiation。
- 4%パラホルムアルデヒド(PFA)中で解離軸索を修正20分間{リン酸緩衝生理食塩水(PBS、(mM)の塩化ナトリウム137、塩化カリウム2.7のNa 2 HPO 4 10 KH 2 PO 4 1.8、pH7.4)中で調製した}。 0.2μMのシリンジフィルターを通過することによって使用前にPFA溶液を濾過する。
- 10分間(PBS中)0.1Mグリシンを灌流することにより、PFAを洗浄する。
- 10分間(PBS中)0.1%トリトン-Xでインキュベートする。
- 20分間、PBSを灌流することによって洗浄する。
- 4℃で6時間(PBS中)を5%無脂肪乳でブロックする。
- 興味のあるVGCCに一次抗体で[追加(PBS中1:200希釈)と4℃で20時間インキュベートする。
- 20分間、PBSを灌流することによって洗浄する。
- 4℃で10分間(PBS中)の5%無脂肪乳でブロックする。
- 二次抗体で[追加(PBS中1:400希釈)と4℃で2時間、暗所でインキュベートする。
- 20分間PBSで灌流により洗浄する。
- 1%ウシ血清Albuでブロック20分間分(PBS中)。
- アレクサフルオロ488ファロイジン(5単位/μlの作業濃度を、メタノール200単位/ mlの準備の株式)を追加します。
- 20分間PBSで灌流により洗浄する。
- 共焦点顕微鏡で100倍の水浸レンズを用いた画像。
6。電気生理学的記録
- P-87マイクロピペットプラーでアルミノシリケートガラスパッチピペット(ピペット抵抗2-5MΩ)を作製。ピペットチップ全体シナプス前終末径を包含するように、設計上のパッチピペット。
- PDMS 23に50〜60 psiの圧力下でパッチピペットを浸漬することによってPDMS被覆パッチピペット(パッチピペットのバックエンドへの窒素ガスシリンダに接続された内径を、シリコンチューブを取り付け0.89ミリメートル)および熱を使用して乾燥させる銃。代わりに、手動で複合顕微鏡の下で可能な限り先端に近いコーティングを適用したPDMSでコーティングピペット、。
- MICRを使って火ポリッシュパッチピペットoforge(複合顕微鏡のステージに取り付けた特注のプラチナフィラメント)。
- 蛍光顕微鏡でラベルされたシナプス前終末を示す孤立軸索を識別します。
- 記録液を充填します。注射器を使用したパッチピペットに(CA 2 +電流を分離するために設計された電荷キャリアとして10mMのCaCl 2または90 mMののBaCl 2を 、HEPESは、pH 7.6、浸透圧270 mOsmでバッファリング)。
- 電動マニピュレータMP225を使用して、お風呂の上にピペットホルダーとの位置にパッチピペットを挿入します。静かに、蛍光識別されたシナプス前末端の顔に対してバス、所定の位置にパッチピペットを下げる。
- 接触が膜で行われるまで、ゆっくりとパッチピペットを進める。この時点で、ピペットホルダに取り付けられたチューブを介して穏やか口吸引によりギガオームのシールを達成する。
- Aを使用する、単一チャンネルのCa 2 +電流を記録するのに必要な極めて低いバックグラウンドノイズレベルを達成するために録音のために冷却ヘッドステージとxopatch 200B。 5kHzのベッセルフィルタを用いて、20〜50 kHzとフィルタのサンプルデータ。 Axograph Xを使用してデータ収集を行う
- 刺激としては10mV刻みで、標準的な段階プロトコルを使用してください。のCa 2 +チャネルの最大活性化を確実にするために、段階プロトコルの前に、プロトコルにプレパルスを組み込む。リーク電流の分析後の減算ステッププロトコルに10 mVのリークステップを組み込む。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
この解離プロトコル利回り健康的で機能的な孤立網様体シナプス後突起図2fの欠いた軸索が、それにもかかわらず、誘発シナプス小胞のエキソサイトーシスおよび図4cと図4d可能な官能シナプス前終末を保持している。網様体軸索の隔離領域の切片は、明らかに網様体軸索膜図2fにへの無制限のアクセスを可能にする任意の他の神経のプロセスを明確になるように光学顕微鏡下に同定することができる。軸索は、解離後の構造的完全性を保持している。単離された軸索は、細胞全体の構成でパッチを適用し、アレクサフルオロ488ヒドラジドを充填した。軸索のない色素漏出内に均一に分布色素は、軸索図4aから観察された。
/ftp_upload/51925/51925fig4highres.jpg "幅=" 500 "/>
図孤立網様体軸索から4。代表的な録音。全細胞構成におけ...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
当社の解離プロトコルは、シナプス後突起図2fの欠い孤立網様体の軸索を生じすることによって重要であるが、それでも機能的なシナプス前終末の図4c及び図4dに保持している。シナプス前終末に反対するシナプス後のプロセスが存在しないことは、以前に、中枢シナプスの可能性に成功のみ2腎杯型シナプス前終末に達していない単一のシナプス前終末におけるシナプス前のリリースの顔膜への直接記録へのアクセスを許可する。ニワトリ毛様体神経節7-10およびラット腎杯11,12の萼型シナプス。電子顕微鏡レベルでの単純な単一の活性領域21を提示することが示されている個別のシナプス前終末には、FM 1-43で標識リサイクル小胞のクラスターによって識別され、記録図4c及び図4dの対象とすることができる。カルシウムまでの電流は、個別のシナプス前終末図4fの放出面膜に記録することができる。これ...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者には、開示すべき競合する金銭的利益やその他の利益相反はありません。
謝辞
この作業はNINDS、RO1NS52699、MH84874からSAによってサポートされています。
免疫組織化学の研究で使用した縫合糸を提供してくださったDave Featherstone博士(イリノイ大学シカゴ校生物科学部)に感謝いたします。Michael Alpert氏には、原稿のコメントと校正に感謝します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.2 &マイクロ;m シリンジフィルター | EMD ミリポア | SLGV004SL | |
| 22 x 60 mm カバーガラス | フィッシャーブランド | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 結合ヤギ 抗ウサギ二次抗体 | Invitrogen/Life Technologies | A21070 | |
| 不凍 | プレストン | ||
| ホウ酸 | Sigma-Aldrich | B7660 | |
| ウシ血清アルブミン | Sigma-Aldrich | A7906 | |
| 明視野光源 | Dolan-Jenner | Fiberlite 180 | |
| 塩化カルシウム | Sigma Aldrich | C4901 | |
| Cloristridium Histolyticum由来のコラゲナーゼIA型 | Sigma-Aldrich | C9891 | |
| カバースリップ | Fisher-Scientific | 12-545-J | |
| デキストロース | Sigma-Aldrich | D9559 | |
| デジタルCCDカメラ | 浜松 | C8484-03G01 | |
| 解剖ファイン | サイエンスツール ファインサイエンスツール | 91150-20 | |
| 解剖鉗子 | ファインサイエンスツール | 11251-20 | |
| 解剖顕微鏡 | ライカバイオシステムズ | ライカMZ 12 | |
| 解剖ハサミ | ファインサイエンスツール | 15025-10 | |
| 解剖ハサミ ファイン | サイエンスツール | 91500-09 | |
| 解剖ハサミ 超微細 | ファインサイエンスツール | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| グリシン | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| 高真空グリース | ダウ-コーニング | ||
| 塩酸 | フィッシャーブランド | SA-56-500 | |
| 浸漬油 | フィッシャーサイエンティフィック | M2000 | |
| 工業グレードの窒素ガスタンク | Praxair | UN1066 | |
| 昆虫ピン | Fine Science Tools | 26002-10 | |
| 液体縫合糸接着剤 | Braun Veterinary Cair Division | 8V0305 | 実験で使用した縫合糸接着剤は、別の研究室から提供されたものです。製造は終了しています。私たちは、Aesculap(Ts1050071FP)から将来の使用のためのHistoacryl縫合糸接着剤を調達 |
| 塩化マグネシウム | Sigma-Aldrich | M2670 | |
| メタノール | Sigma-Aldrich | 154903 | |
| 無脂肪粉ミルク | 細胞シグナル技術 | 9999S | |
| P-87 マイクロピペットプーラー | サッター機器 | ||
| パラホルムアルデヒド | Sigma-Aldrich | P6148 | |
| 灌流ポンプ | コール・パーマー | マスターフレックス C/L | |
| ペトリ皿 100 x 15 mm | フィッシャー・サイエンティフィック | ・サイエン | |
| ペトリ皿 35 x 10 mm | フィッシャー・サイエンティフィ | 875712 | |
| ポリ-D-リジン臭化水素酸 | Sigma-Aldrich | P1024 | MW > 300,000 |
| 塩化カリウム | Sigma-Aldrich | P9333 | |
| リン酸カリウム 一塩基性 | Sigma-Aldrich | P5379 | |
| 一次抗体 R型カルシウムチャネル | Alomone Labs | ACC-006 | |
| ストレプトマイセス由来プロテアーゼ XIV型 グリセウス | Sigma-Aldrich | P5147 | |
| メスの刃 | World Precision Instruments | 500240 | |
| Schot Duran 圧力ボトル | フィッシャー・サイエンティフィック | 09-841-006 | |
| 接着剤塗布用シリコーンチューブ | コール・パーマー | 07625-26 | |
| スライシングベースプレート | ライカバイオシステムズ | 14046327404 | |
| スライシングチャンバー | ライカバイオシステム | 14046230132 | |
| 塩化ナトリウム | シグマ・アルドリッチ | S7653 | |
| 水酸化 | S8045 | ||
| リン酸ナトリウム二塩基性 | Sigma-Aldrich | S9763 | |
| 四ホウ酸ナトリウム | Sigma-Aldrich | B3545 | |
| Sylgard 160 シリコーンエラストマーキット | ダウ コーニング | SYLGARD® 160 | 調製するには、エラストマーAとエラストマーBを混合する 重量で10:1 |
| Sylgard 184シリコーンエラストマーキット | ダウ・コーニング | SYLGARD® 184 | 調製するには、エラストマーと硬化剤を重量で10:1に混合 |
| テフロンコーティング鉗子 | ファインサイエンスツール | 11626-11 | |
| トリカイン、メタンスルホン酸 | 、シグマ・アルドリッチ | A5040 | |
| ビブレータブレード | ワールドプレシジョン機器 | BLADES | |
| キセノンランプ | ニコン |
参考文献
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
