8日齢マウスの神経網膜を4%ゼラチンブロックの上にある。ビブラトームによる光受容体層(200ミクロン)の単離後、感光体は文化のための機械的および酵素的解離後に播種する。感光層は、分子、生化学的分析または移植のために使用することができる。
この記事について
サマリー
要約
網膜は、光受容体からの層のニューロンと、光の方向を考慮して、網膜上の最も離れた部分における網膜色素上皮と接触している両方の桿体および錐体のアーキテクチャを組織した中枢神経系の一部であり、かつ最も近い距離の神経節細胞。このアーキテクチャは、ビブラトーム切片により、感光層の単離を可能にする。 8日齢マウスの解剖神経網膜は、下向きに20%ゼラチン感光層のスライスの上に4%ゼラチンでフラット包埋ある。ビブラトームと両刃のカミソリの刃を使用して、厚さ100μmの内側の網膜は、区分されている。このセクションでは、神経節細胞と、特に双極細胞と内層が含まれています。光受容体を含む外側の網膜の200程度が回復される前に、15μmの中間の部分は破棄されます。ゼラチンは、37℃で加熱することにより除去される。外層の小品はincubaです37℃で20分間活性化したパパインの2ユニットとのリンゲル液の500μlのテッド。反応は、ダルベッコ改変イーグル培地(DMEM)中で500μlの10%ウシ胎児血清(FCS)を添加することにより停止させ、その後、DNアーゼIの25単位は、室温で遠心分離前に添加され、血清を除去するために数回洗浄し、細胞が中に再懸濁するDMEM500μlの1×10 5細胞/ cm 2で播種。細胞は、in vitroで 5日間まで成長させ、彼らの生存率は生/死アッセイを使ったスコア。培養物の純度は、最初の実験の間、顕微鏡観察により決定される。純度は、その後播種し、組織学的スライド上で細胞を固定し、ウサギポリクローナル抗SAG、感光体マーカーとマウスモノクローナル抗RHO、桿体特異的マーカーを用いて分析することによって検証される。代替的に、光受容体層(97%の棒)は、遺伝子またはタンパク質発現分析のために移植のために使用することができる。
概要
網膜は、脊椎動物間で保存されたアーキテクチャを有する中枢神経系の不可欠な部分である。神経網膜の神経細胞は、眼の奥の網膜色素上皮(RPE)に密着した感光層は、入射光に対して最も遠いと、レイヤーで構成されている。ロッドとコーンphotorecptorsは、光子捕獲のためオプシン敏感な分子に依存している光感受性細胞である。これらの分子は、RPE 1の方向を指す光受容体の外節に位置するセル構造のディスク膜に囲まれている。ほとんどの場合、非常に初期の感光体変性の場合の影響を受けて、この構造は、10%の毎日の割合で更新される。いわゆる内層は光受容体、双極、アマクリン及び水平細胞、ならびに神経節細胞からの受信信号を計算する他のニューロンの大部分を含んでいる。その軸索を有するこれらの後者視神経あるビームを形成する。この階層化は、細胞が内網状層2の外に発見されたときに生物用語変位アマクリン細胞を使用しているように保存されている。神経細胞の層は、ラジアルミュラーグリア細胞の電機子内に分布している。双極細胞は、神経節細胞への光受容体をリンクします。これらは、外部網状層及び内網状層の間に配置される。神経節細胞、双極細胞と接続内網状層を形成する。 amacrin細胞は双極細胞および神経節細胞との間の内網状層に位置する関連細胞として命名される。外網状層は、水平細胞が含まれています。中枢神経系のニューロン層のこのユニークな配置はビブラトームを用いてフラットマウント網膜をスライスして内側の細胞層から感光層の単離を可能にする。
元々、この技術は、トラン用感光体を単離するために使用したRD1のマウス、ヒト網膜色素変性症 (RP)3のモデルの目でsplantation。 RD1マウスはロッド特異的ホスホジエステラーゼβサブユニットをコードするPDE6B遺伝子に劣性突然変異を運ぶ。人間4内のRPにおけるこの遺伝子結果の劣性の突然変異。桿体が縮退した後、患者は夜間視力を失い、第二段階として突然変異遺伝子、縮退を発現しない、驚くほどの円錐光受容体、。コーンは色覚と視力のために必要とされるので、患者は徐々に盲目になり、病気のための有効な治療法はまだ開発されていない。野生型マウスからの感光層をグラフト化することによって宿主マウスの円錐変性3,5-遅延される。ロッドと双極細胞間のシナプス接続はRのみの特定の段階で得ることができるので、ロッド·コーン退行モデルで失われたロッドは、移植で置き換えることができませんでしたNRL式 6の開始によってマークさetinal開発、。光受容体の層は、RPEと残りの光受容体、錐体のわずか3%に相当する網膜の外側との間で、ロッドレスRD1網膜の網膜下空間での手術によって導入されている。内網膜細胞の正常な層を移植した動物に、または偽手術動物と比較して、手術の2週間後に、通常の光受容体層を移植した動物からの錐体の40%が生存した。コーン生存のトポグラフィは、広がっアウトグラフト化組織の位置に変異した網膜上の全面には、保護効果は、拡散性分子7によるものであることを示している。
次に、保護効果は、ロッド8,9によるタンパク質の分泌に依存していることを検証するために共培養系ならびに馴化培地を使用した。私たちは、exprはこのタンパク質がされるという仮説を立て非細胞自律的に10で棒からの保護、信号の損失によって二次コーン変性をトリガーする疾患の第1フェーズ彼らの死のロッドによって、その継続的かつ明確にessed。このため、推定タンパク質霊長類において中心的なビジョンを仲介コーンの重要性RPのための非常に関連治療ツールとなります。 RPでコーンを保持すると、理論的に11盲目になるために世界で150万人の患者の合計を妨げる。我々は、網膜cDNAライブラリー12からロッド由来コーン生存因子(のRdCVF)をコードするcDNAを同定するために高含量スクリーニングアプローチとコーン富化培養モデルを使用している。のRdCVFは、興味深いことに、酸化還元ホメオスタシス13に関与チオレドキシン蛋白質をコードする遺伝子に相同であるNXNL1遺伝子のスプライシングされた製品です。遺伝子の第2スプライスさ製品は、RdCVFLはそのターゲット、酸化Dに対してタウタンパク質を保護する酵素である14 amage。のRdCVFの投与は、コーンの二次変性し、RP 12,15の劣性、および支配的なモデルでの視覚機能の喪失を防ぎます。これは、この革新的な治療戦略16の二つの重要な側面を示しています。まず、遺伝子に依存しない方法でRPのほとんどの場合に適用することができる。第二に、競合因子CNTFに反し、のRdCVF生存を、視覚機能17のメンテナンスに関連している。機能的効果がないことは、RP患者18へのCNTFの投与の臨床的利益が存在しないことの理由を説明することができる。 in vitroでのコーン救助はのRdCVFの免疫除去12によって阻害されるためのRdCVFが最も可能性の高いロッドとコーンの間の重要な生存シグナルの一つです。また、ロッド由来錐体生存性遺伝子の破壊は、酸化ストレス19に障害および感受性を感光体に導く。
使用感光層のRdCVFの特定の原点および神経変性疾患に関与する新規20レドックス信号である。この原稿は、分離するために、感光層からの培養細胞は、のRdCVFの活性を特徴付けるために使用されるプロトコルを記述する。光受容体は、5~7日21培養で維持することができる。この技術は、光受容体特異的遺伝子の発現を研究するために使用することができる。
プロトコル
注:手順は大学ピエール·マリー·キュリー(CE5 / 2009/048)から倫理委員会ダーウィンによって承認された
ゼラチン溶液、楽器、ビブラトーム、文化メディアと培養プレートの1.準備
- 少なくとも1日の実験の前に20%のゼラチン溶液を準備します。
- ボンネットの下では、CO 2の独立した培地を含む500ミリリットル瓶(CO 2 -i)にゲンタマイシン[10 mg / mlの]の500μlを添加する。
- 別のビーカー中で、15分間絶えず撹拌しながら加熱ブロック上で95℃で20 CO2-I( ステップ1.1.1)からの溶液と熱を加える。溶液はさらなる使用のために準備ができていることを示す黄色に色の変化を観察する。
- 黄色の溶液を得、45分間95℃で増加攪拌および加熱しながら4ゼラチンgの上記で調製した溶液に徐々に悪い( ステップ1.1.2)を秤量する。ゼラチン溶液は、下で冷却することを許可する約5分間のフード。
- 気泡を導入することなく、直径35mmの培養皿にゼラチン溶液4mlを注ぐ。 30分間21℃で料理をしてください。プラスチックフィルムで皿をカバーし、そして逆さま料理を断る。必要に応じて、使用前に最大2ヶ月間、4℃で料理を保管。
- 4%ゼラチン溶液を準備します。
- ボンネットの下では、加熱ブロックに42℃でCO 2 -i滅菌プラスチック容器中での媒体、及び熱の25ミリリットルを追加します。加熱ブロックから培地を除去し、徐々に熱い中、撹拌にゼラチンの1グラムを追加します。素早く加熱ブロック(42℃)でコンテナを返し、処理中にそれを暖かく保つ。
- 設定アップビブラトーム装置:
- 4℃で保存し、20%ゼラチン溶液を含む皿を外し。メスでゼラチンをカット。ゼラチンスライスをフリップとsのドロップを使用しビブラトームの黒い支持ディスクに貼り付けのスーパーグルー。
- 半分にカミソリの刃をブレークし、ビブラトーム保持容器に半分を挿入します。ビブラトーム装置上に黒のサポートディスクを挿入します。右側に黒いノブをオンにします。ビブラトームの頭の上に保持レセプタクルを修正。ゼラチンブロックをカバーするためにビブラトーム槽にCO 2 -i媒体の十分な量を加える。
- ビブラトームに切り替えて、ゼラチンブロックの3100μmのスライスをカット。さらに使用するためのゼラチンブロックしてください。
- 培養液の40ミリリットルを準備します。
- ボンネットの下にウシ胎児血清(FCS)の10%ダルベッコ改変イーグル培地(DMEM)を準備します。リン酸緩衝生理食塩水(PBS)pH7.4のを使用して、1mg / mlのポリ-D-リジンを調製する。
- 96ウェルプレートにコートしたウェルの底部をポリ-D-リジンを2μg/ cm 2で加える。 5%CO 2インキュベーター内で37℃で45分間静置します。インキュベーション後、PBSを除去し、200μlと交換/ウェルのDMEMおよび使用する前に、5%CO 2インキュベーター中、37℃で再び配置します。
網膜全体の2解剖
- マウスを脱核:
- 欧州指令63分の2010に従ってマウスを生け贄に捧げる:頸椎脱臼により。湾曲した-はさみで頭をカットし、消毒剤で目を消毒した後に100ミリメートルの直径のペトリ皿に入れてください。
- 非常に慎重に湾曲したグリップを使用して、それを区画することにより視神経を切り離した後に目を削除します。その後、21℃で滅菌したCO 2 -i培地を含む35ミリメートルペトリ皿に両眼を置く。
- 網膜を削除する:
- 眼の地球儀にハサミを導入することができるように18 G針の助けを借りて、目の四肢のレベルで穴を作る。穴の内側ストレートはさみを紹介し、慎重に毛様体を除去するための眼球のすべての周囲にアイリス下の強膜をカット。
- 角膜とレンズを取り外し、強膜に網膜の連続で目の房を保つ。 2細かいグリップを、網膜を損傷することなく、後部室内に位置して硝子体を除去する。網膜の平坦化を可能にするために4ラジアルカット(網膜/強膜)を実行します。
- 眼球を好転と「オレンジ」としてそれをはがします。強膜と網膜色素上皮(RPE)から網膜を切り離します。まだ細かい曲面ハサミで非常に慎重に視神経のレベルで添付の網膜を切り離します。
- 2細かいグリップと網膜の中心に向かって周囲から残りの硝子を外します。すべての硝子体が網膜の平坦化を可能にする完全に除去されていることを確認してください。
- プラスチックピペットの先端をカットし、プラスチックピペットとCO 2 -i培地を含む直径35mmのペトリ皿に網膜を転送する。
フラットmounte 3.シールゼラチンブロックの上にD網膜
- フラットマウント型網膜のシールを可能にするために(ゼラチンブロックは無料です)ビブラトームタンクからのCO 2 -i培地30ml - 20を削除します。
- プラスチックピペットを用いてガラススライドに網膜を転送し、感光体がゼラチンスライスを下に向けた状態でゼラチンスライスに転送する前に、CO 2 -i媒体のドロップを追加。
- 優しく網膜とゼラチンブロックと同時に反対側の温かいゼラチンを排出する間のブロックの片側に4%のゼラチンを温め注入することにより、ゼラチンブロックに網膜を取り付けます。
- パスツールピペットで吸引し、4%のゼラチン。合計シーリングを可能にするために10分間待ちます。完全にブロックし、ブレードを浸漬することがCO 2 -iメディアを追加します。
4.網膜をセクショニング
注:このステップは、他の網膜細胞なし視細胞の層を得るために重要である( 図1)。
- ゼラチンブロックの上から順に、網膜に到達するために100μmの連続切片をカット。内層の120μmのセクション - その後、100を切った。用途に応じて、この層は廃棄してもよいし、液体窒素中で保存した。ビブラトームの速度が内側の層または光受容体層の切片中に(1または2で)非常に遅いことを確認してください。
- 内側と外側の網膜の間のインタフェースに対応する網膜の中間15μmのセクションを実行します。顕微鏡下でこのセクションを確認します。血管が存在しないことは、網膜の外側に達したことを示す。
- ゼラチンと外側の網膜の200ミクロン(光受容体層)をカットし、それをCO 2 -i培地3mlで満たされた直径35mmの皿に移す。すべての網膜のすべての光受容体層部分が得られるまで氷の上に保管してください。
5.解離光受容細胞
- (ディッシュを取る複数の)光受容体層(複数可)を含有し、10分間37℃のインキュベーター中でそれ(それら)を置く。
- 鉗子を使用すると、静かにゼラチンから光受容体層を分離し、リンゲル液の3ミリリットルで満たされた新しい皿にそれを転送する。各光受容体層の製造のために、この段階(5.2)を繰り返します。
- 5ミリリットルのポリプロピレン、滅菌チューブに、5%CO 2インキュベーター内で37℃で、それを30分間インキュベート活性剤溶液の25μL(60μMのβメルカプトエタノール; 5.5 mMのL-システイン1.1 mMのEDTA)とパパインの2台をインキュベート。パパインの活性化は、37℃で達成される。このインキュベーションの間、2ミリメートル2枚( 小さ すぎない )に光受容体層をカットし、5ミリリットルチューブにこれらの作品を移す。
- 重力沈降に続くソリューションリンゲル液の1.5ミリリットルで二回網膜をすすぐ。検体とチューブから残りのすべてのリンゲル液を除去します。
- 活性化したパパインとミックスを含むチューブにリンゲル液の475を添加する。網膜を含むチューブにこのソリューションを追加します。
- 5%CO 2インキュベーター内で37℃で20分間網膜にチューブをインキュベートします。 DMEM、10%FCSを1 ml添加することにより反応を停止する。死細胞からDNAを消化するためにデオキシリボヌクレアーゼの25 U I(DNアーゼI)を追加します。注意深くた1mlピペットを用いて細胞懸濁液を均質化する。 RTで6分間50×gでスピン。
- 血清の痕跡を除去し、細胞ペレットに(特定reagents_equipmentの表を参照してください)サプリメントを含むDMEM培地を追加し、慎重に1ミリリットルピペットで細胞懸濁液を再懸濁し、上清を捨てる。 RTで6分間50×gでスピン。この工程(5.7)をもう一度繰り返します。
6培養視細胞
- PN8でのマウスの光受容体層は、この技術を使用して約1から1500000の細胞が含まれています。 1における光受容体細胞を播種×10 5細胞/培地および培養を5%CO 2インキュベーター内で37℃で5日間、細胞と培養プレート中cm 2である 。 5日目に、免疫化学及び抗体サプライヤーが提供してウエスタンブロット法の研究は、次の方法に進みます。
注:文化と予備試験を停止する手順は、参照21に記載されている。
結果
別に移植から、感光層は、感光体の培養物12,22を作るために細胞を播種することによって細胞シグナル伝達を研究するために使用されてきた。さらに、それらは、遺伝子発現及び概日リズム23,24を研究するために使用される。我々は、5%CO 2( 図1Eインキュベーター中で37℃で5日間FCSの不在下で、感光体の培養物を調製するために出生後8日目の野生型マウスからの細胞光受容体層を使用し、細胞を維持している)。次いで、細胞を4%パラホルムアルデヒドを用いて固定した後、いずれかのマウスモノクローナル抗RHO(1:250、ミリポアMab5316)を有する抗体サプライヤーが提供した方法を用いて免疫細胞化学分析のために進めたか、ウサギポリクローナル抗SAG(1:200、寛大なをイガル·ジェリーとデビッドヒックスの贈り物)。我々は、使用される抗Rhoと抗SAG(ただし抗SAGラベルコーンと棒)抗SAGは抗RHOより前のマーカー、であるという事実に起因するが。 CELの割合抗RHO抗体について陽性lsが抗SAG抗体( 図2)に陽性のものより低い。これは、SAG、ロッドアレスチンはまた、単離された層に光受容体の3%を作る円錐によって、あるいは網膜の出生後の成熟の間に、SAGの発現があることに先行するという事実によって発現されるという事実によって説明することができるRHO 25,26の。
感光層は、RNAは塩化セシウム超遠心分離法27を用いて調製し、マウスDNAチップアレイにハイブリダイズさせた35日齢の動物の野生型網膜と脳の光受容体による遺伝子の特異的発現をモニターした。ロドプシン(ロー )、S-アレスチン(SAG)と円錐デュー(Gnat2)のためのメッセンジャーは、脳( 図3A)と比較して、網膜に特異的に発現している。式が含まれる全体の網膜よりも光受容体層(PR)において顕著である内網膜層は、これらの遺伝子が光受容体によって実際に発現されることを示す。 Gnat2ために、Rhoとサグと比較して、相対的な発現は、それが単離された感光層中に含まれるコーンで表されることを示している。全網膜と比較して、感光層中のリカバリン(Rcvrn)の発現は( 図3B)が増加する。
感光層は、RHOとGNAT2抗体の供給者により提供される方法に従って、ウェスタンブロットを使用しての発現を監視し、内網膜層( 図4)に比較した。それぞれのロッドとコーンのマーカー全体の網膜における及び出生後35日目ののrd1マウスの網膜において、RhoとGNAT2 28が存在しないことに注意してください。
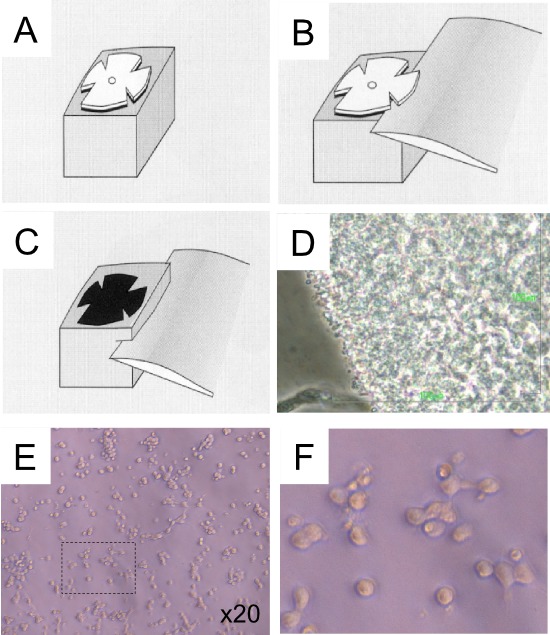
Fiのグレ1.マウス網膜のビブラトーム切片の模式図。の(A)ビブラトーム刃と内網膜の光受容体は、ゼラチンスライスを下に向けてフラットマウント網膜の設置。(B)セクション。網膜外層の(C)節は、ゼラチンを添加。(D)コントロール光受容体層の単離後の網膜の断片の端にある光受容体の存在。緑色蛍光のために使用されるスケールバーは、白色光顕微鏡を用いている。光受容体は、画面の端に位置しています。(E)培養光受容細胞(ポスト5日)。(F)パネルEの高倍率
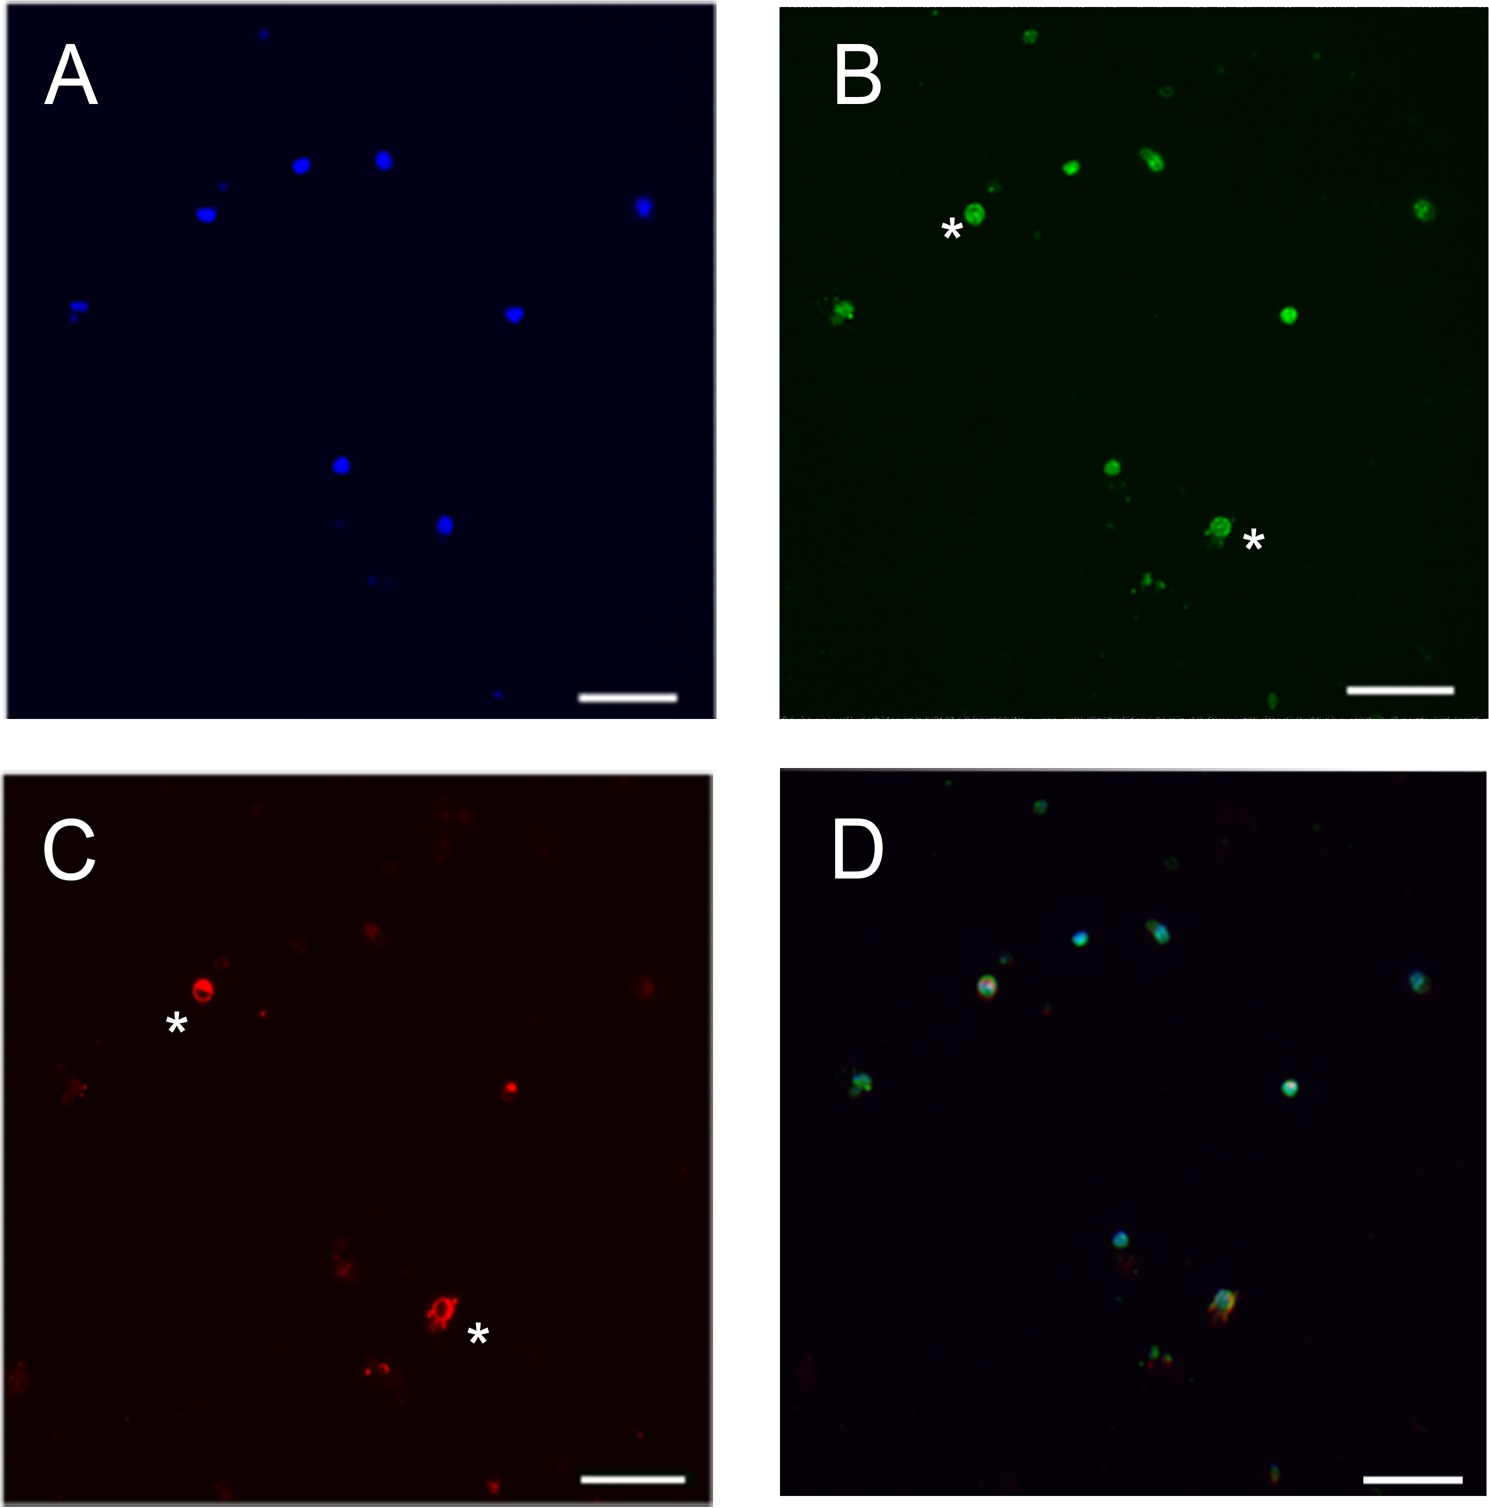
マウスの光受容体培養におけるRhoとSAGの図2.差動式。核の(A)染色(青)、(B)SAG染色(緑)、(C)RHO染色(赤色)。(D)マージ画像。 SAGの染色は、以前のRHO染色よりも発現されるので、唯一つのセルは二重SAGとRHO(*参照)のラベルが付いています。スケールバー:23μmで、この図の拡大版をご覧になるにはこちらをクリックしてください。
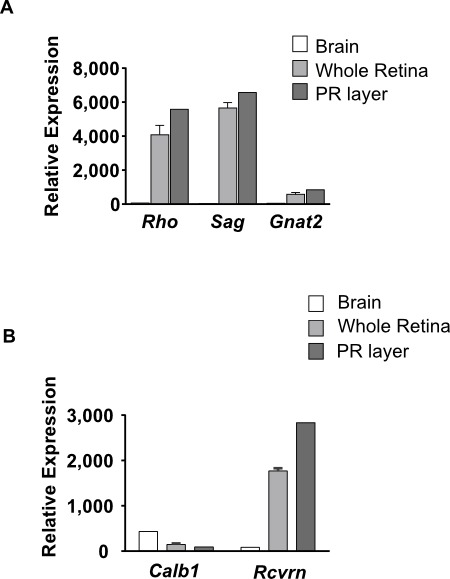
脳全体の網膜および35日齢の野生型動物の光受容体における3つの遺伝子の発現の3の比較図。 (A)ロドプシン(ロー )、S-アレスチン(SAG)と円錐デュー(Gnat2)。(B)カルビンジン(Calb1)とリカバリン(Rcvrn)。データは、相対的な表現として表示されます。相対式は、式の値であるKBaSS(http://kbass.institut-vision.org/KBaSS/)知識データベースで利用可能なソフトウェア堅牢なマルチアレイ平均(RMA)とnormaliszation後にマイクロアレイデータから得られた。

内側の網膜における及び出生後35日目ACTB、ベータでのrd1マウスの網膜におけるそれらの発現の出生後35日目不在での野生型網膜から外側の網膜におけるRhoとGNAT2の図4.式アクチン。 この図の拡大版をご覧になるにはこちらをクリックしてください。
ディスカッション
網膜は、生物学のモデル器官である。網膜の研究は、生物学の6つの主要な発見につながった。これは、最初の腫瘍抑制遺伝子RB1の原点にある。それは、sevenlessの息子との相互作用を介して受容体チロシンキナーゼおよびMAPキナーゼの間の分子のリンクを明らかにしている。それは、PAX6、臓器の形態形成のための最初のマスター制御遺伝子の発見に関与していた。これは、加齢性黄斑変性症(AMD)、ゲノムワイド関連画面(GWAS)によって同定された最初の疾患感受性遺伝子と補体因子H(CFH)の遺伝的関連の中心にある。最後に、レーバー先天性黒内障のために最初に成功した遺伝子治療、すべての遺伝性疾患の人間の最初の矯正遺伝子治療臨床試験につながった。この器官の構造は、ほとんどの脊椎動物種において保存されている。 生体内での操作のためのアクセシビリティセントのこの不可欠な部分で機能ゲノミクスの調査に早期に奨励してきた神経系をRAL。
私たちは、ビブラトーム切片によって網膜の内層から光受容体層を分離する方法をここに示しています。このステップでは、純粋な光受容体培養を得るために重要である。私たちの解剖プロトコルは、RPE細胞による汚染が非常に低いことができます。
主要な課題の一つは、セクション適切に内側と外側の網膜に必要である網膜の平坦化である。網膜の切片は、げっ歯類からのもののように小径の網膜上で最高であり、この直径は、現在入手可能な材料と技術の制限です。
これは、網膜のサンプルで練習するために、生物学的に意味のある実験を開始する前にお勧めします。我々は、mRNAおよびタンパク質の両方の発現研究を実行するための材料を用いて、培養された光受容体細胞から得られた代表的な結果によって方法を説明する。発現研究もsectioで交互に行うことができますナノ秒レーザーキャプチャーマイクロダイセクションにより得られたが、培養物は、最高のビブラトーム切片を用いて行われる。私たちは完全な別の戦略に顕微解剖レーザーの技術を使用することもできました。しかし、培養のためのマイクロダイ装置を用いて感光層を収集するために、それは、固定液を回避するために、これはかなり現在の方法が複雑になることが必要であろう。
私たちは、網膜色素変性症のモデルにおける光受容体の変性の間にビブラトームのセクションの遺伝子およびタンパク質発現の動力学を研究することを目的としたプロトコルを開発している。私たちは、プロトコルの詳細な説明は、網膜生物学の分野の研究者にとって有用であり、最も特にプロテオミクスやメタボロミクス研究のためになると信じています。
開示事項
著者らは開示するものは何もない。
謝辞
Igal GeryとDavid Hicksは抗SAG抗体です。原稿を読んでくれたラム・フリドリッヒ。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| シチジン 5′-ジホスホコリン* | Sigma-Aldrich | C0256 | 4.7 µM シチジン 5′-ジホスホコリン |
| Cytidine 5′-ジホスホエタノールアミン* | Sigma-Aldrich | C0456 | 2.7 µMシチジン5′-ジホスホエタノールア |
| ミンリノールïc 酸/ウシ血清アルブミン (BSA)* | Sigma-Aldrich | L8384 | 100 µg / mlリノールïc 酸/ウシ血清アルブミン (BSA) |
| トリヨード-L-チロニン* | Sigma-Aldrich | T6397 | 0.03 µM Triiodo-L-thyronine |
| 96-well plates | Greiner bio-one | 655-095 | |
| 双眼顕微鏡 | ライカ | MZ-75 | |
| CO2 independent (CO2-i) | Life Technologies | 18045054 | |
| DMEM | Life Technologies | 41966029 | |
| Forceps n°5 デュモン | バイオニック | 11254-20 | |
| ゼラチン 豚皮 A 型 | Sigma-Aldrich | G2500 | |
| GeneChip | Affymetrix | U74v2 | |
| ゲンタマイシン溶液 | Life Technologies | 15710049 | |
| Hydrocortison* | Sigma-Aldrich | H0888 | 0.55 & micro;M ヒドロコルチソン |
| インスリン* (I) | Sigma-Aldrich | I1884 (ITS) | 0.86 µMインスリン (I) |
| Papain | Worthington-biochem | WOLS03124 | |
| Poly-D-lysine | Sigma-Aldrich | P-6407 | |
| Progesterone* | Sigma-Aldrich | P7556 | 2.0 &マイクロ;Mプロゲステロン |
| プロスタグランジン* | Sigma-Aldrich | P5172 | 0.28 µMプロスタグランジン |
| プトレシン* | シグマアルドリッチ | P5780 | 182 µM putrescine |
| Scalpel Albion | EMS | 72000 | |
| Scissor | Moria | 15396-00 | |
| ピルビン酸ナトリウム* | Sigma-Aldrich | S8636 | 1 mM ピルビン酸ナトリウム |
| 亜セレン酸ナトリウム* (S) | Sigma-Aldrich | I1884 (ITS) | 0.29 & micro;M Na2SeO3 (S) |
| タウリン* | Sigma-Aldrich | T8691 | 3 mM タウリン |
| トランスフェリン* (T) | Sigma-Aldrich | I1884 (ITS) | 0.07 µMトランスフェリン (T) |
| ビブラトーム装置 | ライカ | VT1000-S | |
| * サプリメント |
参考文献
- The Organization of the Retina and Visual System. Webvision. Kolb, H., Nelson, R., Fernandez, E., Jones, B. , (2014).
- Perez De Sevilla Muller, L., Shelley, J., Weiler, R. Displaced amacrine cells of the mouse retina. J Comp Neurol. 505 (2), 177-189 (2007).
- Mohand-Said, S., et al. Photoreceptor transplants increase host cone survival in the retinal degeneration (rd) mouse. Ophthalmic Res. 29 (5), 290-297 (1997).
- Daiger, S., Sullivan, L., Bowne, S. RetNet, the Retinal Information Network. , The University of Texas Health Science Center. Houston, TX. Available from: https://sph.uth.edu/retnet (2014).
- Mohand-Said, S., Hicks, D., Dreyfus, H., Sahel, J. A. Selective transplantation of rods delays cone loss in a retinitis pigmentosa model. Arch Ophthalmol. 118 (6), 807-811 (2000).
- MacLaren, R. E., et al. Retinal repair by transplantation of photoreceptor precursors. Nature. 444 (7116), 203-207 (2006).
- Yang, Y., et al. Transplantation of photoreceptor and total neural retina preserves cone function in P23H rhodopsin transgenic rat. PLoS One. 5 (10), (2010).
- Mohand-Said, S., et al. Normal retina releases a diffusible factor stimulating cone survival in the retinal degeneration mouse. Proc Natl Acad Sci USA. 95 (14), 8357-8362 (1998).
- Fintz, A. C., et al. Partial characterization of retina-derived cone neuroprotection in two culture models of photoreceptor degeneration. Invest Ophthalmol Vis Sci. 44 (2), 818-825 (2003).
- Cronin, T., Leveillard, T., Sahel, J. A. Retinal degenerations: from cell signaling to cell therapy; pre-clinical and clinical issues. Curr Gene Ther. 7 (2), 121-129 (2007).
- Wright, A. F. A searchlight through the fog. Nat Genet. 17 (2), 132-134 (1997).
- Leveillard, T., et al. Identification and characterization of rod-derived cone viability factor. Nat Genet. 36 (7), 755-759 (2004).
- Lillig, C. H., Holmgren, A. Thioredoxin and related molecules--from biology to health and disease. Antioxid Redox Signal. 9 (1), 25-47 (2007).
- Fridlich, R., et al. The thioredoxin-like protein rod-derived cone viability factor (RdCVFL) interacts with TAU and inhibits its phosphorylation in the retina. Mol Cell Proteomics. 8 (6), 1206-1218 (2009).
- Yang, Y., et al. Functional cone rescue by RdCVF protein in a dominant model of retinitis pigmentosa. Mol Ther. 17 (5), 787-795 (2009).
- Bennett, J. Strategies for delivery of rod-derived cone viability factor. Retina. 25 (8 Suppl), S47(2005).
- Komaromy, A. M., et al. Transient photoreceptor deconstruction by CNTF enhances rAAV-mediated cone functional rescue in late stage CNGB3-achromatopsia. Mol Ther. 21 (6), 1131-1141 (2013).
- Birch, D. G., Weleber, R. G., Duncan, J. L., Jaffe, G. J., Tao, W. Randomized trial of ciliary neurotrophic factor delivered by encapsulated cell intraocular implants for retinitis pigmentosa. Am J Ophthalmol. 156 (2), 283-292 (2013).
- Cronin, T., et al. The disruption of the rod-derived cone viability gene leads to photoreceptor dysfunction and susceptibility to oxidative stress. Cell Death Differ. 17 (7), 1199-1210 (2010).
- Leveillard, T., Sahel, J. A. Rod-derived cone viability factor for treating blinding diseases: from clinic to redox signaling. Sci Transl Med. 2 (26), 26ps16(2010).
- Fontaine, V., Hicks, D., Dreyfus, H. Changes in ganglioside composition of photoreceptors during postnatal maturation of the rat retina. Glycobiology. 8 (2), 183-190 (1998).
- Fontaine, V., Kinkl, N., Sahel, J., Dreyfus, H., Hicks, D. Survival of purified rat photoreceptors in vitro is stimulated directly by fibroblast growth factor-2. J Neurosci. 18 (23), 9662-9672 (1998).
- Reichman, S., et al. The homeobox gene CHX10/VSX2 regulates RdCVF promoter activity in the inner retina. Hum Mol Genet. 19 (2), 250-261 (2010).
- Sandu, C., Hicks, D., Felder-Schmittbuhl, M. P. Rat photoreceptor circadian oscillator strongly relies on lighting conditions. Eur J Neurosci. 34 (3), 507-516 (2011).
- Dorrell, M. I., Aguilar, E., Weber, C., Friedlander, M. Global gene expression analysis of the developing postnatal mouse retina. Invest Ophthalmol Vis Sci. 45 (3), 1009-1019 (2004).
- Brooks, M. J., Rajasimha, H. K., Roger, J. E., Swaroop, A. Next-generation sequencing facilitates quantitative analysis of wild-type and Nrl(-/-) retinal transcriptomes. Mol Vis. 17, 3034-3054 (2011).
- Delyfer, M. N., et al. Transcriptomic analysis of human retinal surgical specimens using jouRNAI. J Vis Exp. (78), (2013).
- Ying, S., et al. A CAT reporter construct containing 277bp GNAT2 promoter and 214bp IRBP enhancer is specifically expressed by cone photoreceptor cells in transgenic mice. Curr Eye Res. 17 (8), 777-782 (1998).
再版と許可
