bm12リンパ球のC57BL/6レシピエントへの移植は、全身性エリテマトーデスの確立されたモデルです。ここでは、このモデルを使用して疾患を開始する方法と、フローサイトメトリーによってT濾胞ヘルパー細胞、胚中心B細胞、および形質細胞を特徴付ける方法について説明します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
全身性エリテマトーデス(SLE)は、多様な臨床的および免疫学的症状を伴う自己免疫疾患です。いくつかの自発的で誘導可能な動物モデルは、bm12トランスファーモデルを含む、ヒト疾患の一般的な要素を反映しています。bm12脾細胞または精製CD4 T細胞を移植すると、C57BL/6マウスは、T濾胞性ヘルパー細胞(Tfh)、胚中心(GC)B細胞、および形質細胞を高頻度で急速に発達させ、続いて高レベルの循環抗核抗体を産生します。このモデルは純粋なC57BL/6バックグラウンドのマウスを使用しているため、研究者は比較的短期間でトランスジェニックマウスまたはノックアウトマウス系統の疾患進行を迅速かつ容易に研究できます。ここでは、モデルの誘導と、マルチカラーフローサイトメトリーによるTfh、GC B細胞、および形質細胞の定量のためのプロトコルについて説明します。重要なことに、これらのプロトコルは、SLEのほとんどのマウスモデルで疾患を特徴付け、他の疾患モデルでTfh、GC B細胞、および形質細胞を同定するためにも使用できます。
概要
全身性エリテマトーデス(SLE)は、抗核抗体(ANA)の生産及び糸球体腎炎によって原型特徴複雑な自己免疫疾患です。多数の他の皮膚などの後遺症、心肺、および肝病変はいくつかの個体における疾患と関連しています。米国での有病率の推定値は、女性やマイノリティ3で特に高頻度で、150,000-1,500,000 1,2から、大きく異なります。 SLEの病因を識別することは困難であったが、それは全身性自己免疫で終わる様々な遺伝的及び環境的要因の相互作用から生じると考えられています。
多数の動物モデルは、疾患の発症と進行をもたらす因子を研究するために使用されてきました。 SLEのクラシックマウスモデルは、PなどNZWのF1モデルとそのNZM誘導体、MLR / LPR株、およびBXSB /のYaa株、および誘導系NZB Xを含む遺伝的素因のマウス系統を含み、ristaneおよび慢性移植片対宿主病(cGVHDの)モデル4。 GVHDモデルにおける自己抗体の産生の初期の報告では、F1の転送5に親のための様々なマウス系統またはハムスター株を使用- 8。ループス様疾患を研究するために使用されるより一般的な方法は、現在、DBA / 2親→(C57BL / 6×DBA / 2)F1を含み、BM12伝達モデルは、ここで説明します。各モデルは、独自の警告を持っていますが、それらは一般にヒトの疾患の臨床的特徴と相関機能の共通セットを共有しています。マウスモデルの中で最も頻繁に報告されたパラメータは、脾腫、リンパ節症、腎炎、ANAの生産、および細胞レベルで、T濾胞ヘルパー細胞(TFH)、胚中心(GC)B細胞および形質細胞の増殖が含まれます。
H2 - - Ab1のBM12 / KhEgJ(BM12)マウス、系統iは、誘導性BM12モデルは、IA BM12 B6(C)からのリンパ球の養子移入することによって達成されますIA bはC57BL / 6(B6)マウスに、MHCクラスII上の3個のアミノ酸置換を除いて、C57BL / 6にdentical。受信者APCによるドナーCD4 T細胞のAlloactivationは密接にSLEに似た症状をcGVHDのにつながります。具体的には、これらはドナー由来TFH、レシピエント由来のGCのB細胞および形質細胞の増殖、及び抗dsDNA、抗ssDNAを、抗クロマチン、及び抗RBC抗体9を含むアナスの生産の拡大を含みます。時間が経つにつれて、レシピエントマウスは、糸球体、間質中のIgG沈着、腎臓10の血管領域に関連する糸球体腎炎を発症します。我々は最近、ヒト疾患と同様に、私はこのモデル11で型IFNの重要な役割もある、ということを示しています。注目すべきは、人間SLEの定義基準は、このマウスモデルの顕著な特徴であり、どちらも抗dsDNA抗体12の存在下で、SLEと互換性腎炎の開発が含まれています。
SEがあります自発的なモデルの上にBM12モデルのveral利点。 SLEのような兆候を開発するクラシックモデルは、自然にノックアウトするために交差またはその他の遺伝的に改変されたマウスは難しく、時間がかかる行うハイブリッドマウス系統、近交系マウス系統ではないB6の背景に、またはB6の背景に大きな遺伝子座のいずれかに依存しています。 BM12誘導モデルでは、遺伝的に改変されたマウスは、特定の遺伝子が疾患のために重要であり得る、細胞コンパートメントのより迅速な同定を可能にする、ドナーまたはレシピエントのいずれかとして機能することができます。また、BM12モデルにおける疾患の発生は、ほとんどの自発的なモデルのために数ヶ月に比べ、アナスの出現まで、わずか2週間を必要とする、はるかに高速です。また、異なる時点で疾患を発症する自発的なモデルとは対照的に、BM12ー→B6モデルにおける疾患の発症および進行は非常に同期化されます。これは、bのできる適切なサイズのコホートの生成を可能にしますeは、疾患の発生の任意の段階で介入または治療戦略のために使用されます。
以下は、B6の背景に、C57BL / 6マウスにBM12リンパ球の養子移入、または遺伝的変異によって、SLEのような自己免疫を開始するための詳細なプロトコルです。さらに、我々はTFH、GC B細胞、およびヒト疾患に関連する形質細胞 - 細胞タイプを列挙するためのフローサイトメトリー染色プロトコルを記述する。重要なことは、これらのプロトコルはまた、SLEのほとんどのマウスモデルにおける疾患を特徴付ける、および他の疾患モデルでTFH、GC B細胞および形質細胞を同定するために使用され得ます。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
動物の仕事を評価し、実験動物のケア・インターナショナルと私たちの施設内動物管理使用委員会(IACUC)の認定のための協会によって設定されたガイドラインに従って、特定の病原体を含まない条件下で行いました。
注:これは、ドナーの移植効率、ドナーCD4 + T細胞集団の具体的な展開の監視を可能にしますので、可能な場合は、ドナーまたは受信者のいずれかの動物で、そのようなCD45.1としてコンジェニックマーカーを発現するマウスを組み込みます。ドナーまたは受信者などの他の方法で遺伝的に改変されたマウスの使用を考慮した場合、歪みが適切B6背景に戻し交配されていることを確認、または導入細胞は拒否-これをすることができる代表的な結果とディスカッションセクションでより詳細に対処されることになります。
注:12-16マウスを注入するために十分な細胞が得られるはずマウスBM12収穫4ドナーは、次の手順の詳細ボリューム。シックス12週齢BM12マウスに約25%のCD4 T細胞をおよそ100から140000000リンパ球を得ました。それに応じて上下にマウスの異なる数、または異なるマウス系統、スケールのボリュームで始まる場合。 C57BL / 6マウスは、一般的には20%CD4 T細胞に近づくと同様な収率を与えます。
注:RTですべてのステップを実行し、暑さと寒ショックを回避するために、RTのメディアを使用し、長期的なリンパ球の生存率を損なう可能性があります。無菌技術を用いて組織培養フードで組織収穫と組織処理の手順を実行します。このプロトコルのすべてのメディアは、特に断らない限り、10%の熱不活性化FBSを含むIMDMであり、単にと呼ぶことにする「完全培地」。
ジェノタイピングBM12マウス1.新しい方法
注:ジェノタイピングのための簡単な制限消化ベースのプロトコルは現在、公開された遺伝子型判定法である、シークエンシングに簡単かつ安価な代替手段として、ここで提供されますこれらのマウスのために。
- マウスの尾からゲノムDNAを分離します。 13を消化尾からのマウスの尾のクリッピングおよびcDNAの生成に詳細なプロトコルは、前のJoveの記事を参照してください。
- 表1に列挙したプライマー及び熱サイクル条件を用いてBM12 MHC-II IA bおよびIAから共通の474 bpのDNA断片を増幅するために、逆転写酵素重合連鎖反応(PCR)14を実行します 。
- 制限〜7酵素PsuIを使用して、PCR産物のμL、またはそのアイソシゾマー(BstX2I、BstYIの、MflI、またはXhoII)の1、野生型IA bをカットではなく、IA BM12の変異体でダイジェストを実行します。水、緩衝液と酵素の混合物を指定します製造元によって提供されたプロトコル、および5分間のインキュベーションを消化従ってください。 37℃の15で数時間に。
- ロード製品を消化し 、30〜45分間、臭化エチジウム14で1%のポリアクリルアミドゲル上で実行されます。 1で50V-かかわらず最適な電圧と時刻の設定は、使用したPCRゲル装置によって異なります。紫外線照射器でDNAバンドを可視化。代表的な結果を図1に示します 。
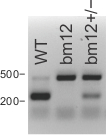
遺伝子型判定結果BM12図1.代表。
IA BM12 / BM12についてホモ接合性マウスを同定するために、尾部DNAをPCR /制限は遺伝子型判定(ステップ1)を消化することによってBM12についてスクリーニングしました。ホモ接合野生型(IAのB / B)DNAが227で二つのバンドと(〜250塩基対で、1本の太いバンドとして可視化)247塩基対を生成します。ホモ接合BM12(IA BM12 / BM12)DNAは、474塩基対で一つのバンドをもたらします。およびヘテロ接合(IA BM12 / b)の DNAが〜250で二つのバンドと474塩基対を生成する。 この図の拡大版をご覧になるにはこちらをクリックしてください。
2.収穫ドナー細胞
- 施設内動物管理使用委員会(IACUC)を使用して犠牲ドナーマウスは、プライマリとセカンダリの安楽死法を承認の。例えば、頸椎脱臼に続いてCO 2で窒息によりマウスを安楽死させます。
- 11〜13のように10ミリリットルを含む15ミリリットルチューブに完全なメディアを無菌操作、収穫脾臓およびリンパ節(浅頸部、下顎、上腕、腋窩、腸間膜、及び鼠径部)を使用。
注:詳細なリンパ節郭清プロトコル16は、前のレポートを参照してください- 18。このモデルは、転送のためにのみ、マウス脾細胞を用いても成功しているが、リンパ節の添加は、有意にドナーマウスの必要数を減少させます。 - シリンジからプランジャーを用いて、70μmのセルストレーナーを介してステップ2.2に集めリンパ組織を叩解して、単一細胞懸濁液を生成します。すべての4のためのより良い利回りについては、オーバーロードしないでくださいストレーナーを使用は〜6ストレーナーマウスは処理され、処理中に頻繁にストレーナをすすぎます。 400×gで5分間、その後、2 50mlコニカルチューブに4匹のマウスから遠心分離機の細胞を組織を結合し、上清をデカント。
- 50ミリリットルの完全なメディアと新しいコニカルチューブへの転送の両方の円錐管から細胞を再懸濁し。 RTでこのチューブを保管してください。
注:脂肪は、チューブの側面に付着し、チューブを交換されていない場合、最終的な細胞の収率が低下する可能性があります。
3.ドナー細胞の計数
注:サンプル全体の最高の生存率、赤血球(RBC)溶解を維持するためには推奨されません。
- よくステップ2.4からの単一細胞懸濁液を混ぜ、1ミリリットルを削除し、別の50mlの円錐に転送します。カウントしながら室温で脇残り、手付かずの細胞(49ミリリットル)を設定します。
- 1 mlのドナー細胞試料に塩化アンモニウムベースの赤血球溶解緩衝液3 mlで加えます。 1分間静かに混和。ロッキングによって、完全なメディア、Aで50mlに記入ND 5分間遠心します。 400 XGとデカント上清に。
- 10ml中に再懸濁RBC-溶解した細胞を完全培地と(血球計数器を用いて、トリパンブルーで、例えば )カウント。 49-このことにより、乗算結果を取っておいた非溶解サンプルに残っている細胞の総数です。 RBC-溶解した細胞を捨てます。
4.ドナー細胞の標識および/またはCD4 + T細胞の精製
- 所望であれば、これは必要ではないが、この段階でCD4 T細胞を精製します。 19のようにCFSEで標識細胞、または他の細胞追跡色素、所望であればさらに、その一例は、代表的な結果のセクションの図4に示されています。
注:それは高純度を達成することができるように、CD4 T細胞の精製の ために、負の磁気選択は、推奨されており、20で説明したように高い生存率手付かずの細胞を残します。これは、エンドトキシンフリーバッファが使用されていることが重要です。そのため、代わりにBSAの、分離バッファウィットを作りますH 2%のFBS及びEDTAの推奨濃度。
ドナーBM12細胞の5インジェクション
- 400×gで5分間、ステップ3(および精製または所望に応じて、ステップ4のように標識された)で遠心細胞をドナーリンパ球を計数しました。 1ml当たり1.2億リンパ球(または1mlあたり3000万精製されたCD4 T細胞)でPBSに上清を再懸濁細胞をデカントします。滅菌5ミリリットル簡単27.5 G×13ミリの針を取り付けた1 mlシリンジを収納丸底チューブ、または他の滅菌チューブに細胞を移します。
- ドナー試料内のCD4 T細胞のパーセンテージを決定するために、フロー染色のために4℃で別にステップ5.1からのドナー細胞の小サンプルを設定、注射の前に。最小限の抗体パネル( 表2)を使用して、手順8で説明したように、これらのサンプルを染色します。
注:異なるマウス株からの細胞は、別個のドナーとして使用される場合、これは重要な考慮事項であり、CD4 T細胞の割合は、実質的に変化する場合、PURificationが必要になることがあります。 - 静かに、しかし完全に細胞を混ぜます。これは、最大及び取り付けられた針なし1mlシリンジを使用してダウン細胞をピペッティングすることによって行うことができます。混合した後、1mlシリンジに細胞を描きます。任意の気泡を除去した後、針を取り付けます。注射器をプライミングしながら針をオフに保つことは、細胞の生存率を維持するのに役立ちます。
- 21で説明したように、腹腔内(3000万リンパ球、またはマウス当たり750万精製されたCD4 T細胞に等しい)マウスあたり250μLを注入します。
注:ここに示した実験では、我々の以前の研究11に、各マウスは、BM12のドナーは30万人のリンパ球ではなく、伝統的に使用億総脾臓細胞を注射します。私たちの研究室からの未発表データでは、違いは、マウスあたり30または億リンパ球の注射後14日目に、血清抗dsDNAでは観察されませんでした。これは著しく、腎炎ウィットの開発を実験に必要とされるマウスの数を減少させながらhがこの細胞の数は、評価されていません。
6.グラフト効率決定
注1:このセクションでは、次善の注射を受けた可能性のあるマウス( 例えば、1マウスにおける移植片が中に見られるものの<10%であり、特定するために、3日目にレシピエントにおけるドナー細胞移植の程度を決定する方法について説明します同じグループの他のすべてのマウス)。これらのデータはまた、遺伝的に改変されたマウス株からの細胞は(詳細については、代表的な結果セクション、 図6を参照)、後の時点で拒否されているかどうかを判断するのに役立ちます。
注2:このセクションでは、CD45.1 BM12ドナーおよびCD45.2 C57BL / 6受信者を使用した場合のドナーとレシピエントが異なるコンジェニックバックグラウンド、 例えば、上のマウスからのものである場合にのみ可能である、またはドナー細胞は、細胞追跡色素で標識されている場合。重要なことには、3日後に注射で、CD4 T細胞は最小限の拡張を受けた(SEグラフト率で観察された違いは、注射の変動に拡大によるものではないので、電子の代表的結果セクション、 図4)。
- 4%のイソフルランまたは他のIACUCが承認した方法でマウスを麻酔。マウスが正しく採血に進む前に、麻酔されていることを確認するために後足の反射神経をテストします。
- 22のように、このような眼窩穿刺などIACUCが承認した方法を使用して、収穫100〜200μlの血液。そのような凍結乾燥二カリウム、EDTAを含む材料表で参照血漿採取チューブ、などの抗凝固剤を含む個々の0.5ミリリットルマイクロ遠心チューブに血液を採取します。採血後、出血の停止を確実にするために、滅菌タオルやガーゼを使用して、マウスの目に穏やかな圧力を適用し、それが最終的な組織の収穫(ステップ7)まで残るそのホームケージに戻ってマウスを置きます。
注:マウスが十分に意識を取り戻してきた無人までマウスを置いたままにしないでください腹側横臥位を維持し、完全に回復するまで、他の会社にマウスを返しません。 - 21℃のPBSで500μlに血液量を持参し、円錐形の底のマイクロチューブに移し、ゆっくり(二相間の混合を最小化するように注意して、21℃、200μlのピペットで高密度の細胞分離溶液200μlをアンダーレイ)推奨される解決策のための材料表を参照してください。低く設定遠心ブレーキと20〜25℃で20分間700×gで遠心分離細胞。
- 800μLを含む新しいマイクロ遠心チューブに1ミリリットルピペットと転送にリンパ球を含む上層完全なコールドメディアを取り出します。細胞を穏やかに混合するボルテックス。 5 4℃で分とデカント上清700×gで遠心細胞。
- 200μl中に再懸濁細胞トンを決定するために、最小限の抗体パネル( 表2)を使用して、手順8に記載のフローサイトメトリーのように、フローのための完全なメディア、96ウェルU底プレートへの転送、および染色彼のPBMCの割合のようなCD4 T細胞の移植片の相対量。
7.最終的な組織の収穫
注:これらはTFH細胞および形質細胞の初期の開発に焦点を当てるように、結果のセクションに記載の実験は、14日目のドナー細胞(または場合によってはより短い時間)の注射後に回収しました。このモデルでは、SLEの慢性GVHDモデルであるので、この疾患は、ずっと後の時点でモニターすることができます。最適なタイムフレームは、個々の実験で提起研究課題に依存します。
- BM12ドナー細胞(ステップ5.4)を注入した後の所定の時点で、安楽死のIACUCが承認した方法を用いて、マウスを生け贄に捧げます。放血続くCO 2で窒息することをお勧めします。頸椎脱臼で安楽死の第二の方法として機能することができるが、これは、採血の収率を減少させることができます。
- 70%を含むスプレーボトルで軽くマウスの腹部を濡らしエタノール。約1cmの性器の上に手術用ハサミで小さな、浅切開を行います。そのまま腹膜筋膜を維持するように注意しながら、胸骨に向かって腹部の皮膚を引きます。
注:それはまだ十分に特徴付けされていないが、14日目で0.5から3までmlの腹水と通常存在罹患マウスは、追加の疾患パラメータとして測定し、分析することができます。 - 18 G針で5 mlシリンジを取り付けます。動物の頭に向かっておよび筋膜の面に対して15°の角度にまで向けられた針で腹部の右下の象限に針を挿入します。腹水を吸引しながら、腸に詰まっなってから針を防ぐために盲腸の近くに針の先端の位置を調整します。
- 慎重にゆっくりとシリンジに腹水を描き、その側にマウスを回転させます。腹水を回収した後、注射器を取り外し、シリ側の体積マーキングに基づいて吸引量を記録NGE。
- 後の処理のために氷上で5ミリリットル丸底チューブやストアに放電腹水。
- 基本的に22のように、下大静脈(IVC)からドローを経由して収穫血。鈍い鉗子を使用して、静かにIVCを暴く、マウスの左側に腸を動かします。 IVCに1mlシリンジに取り付けられた27.5 G針を挿入し、ゆっくりと血液の400〜500μLを描きます。
- 溶血を最小限に抑えるために、ゆっくりと0.5 mlのマイクロ遠心血清または血漿収集チューブに血液を注入します。 ELISAによるアナスの後の血清分析のために、氷上で血液を保ちます。
- (後の時点と糸球体腎炎で収集記録される場合は特に、脾臓および、必要に応じて、リンパ節および腎臓)解剖と追加の関連組織を得ます。優しく腸バック動物の右側に配置し、脾臓の主な結合組織である膵臓、引っ張ることにより、脾臓を除去します。
- 重その後、残りの任意の膵臓を削除すぐに解剖した後、高精度のバランスに脾臓、総脾腫は、SLEのマウスモデルにおいて、一般的に報告されたパラメータであるとして。氷上で1ミリリットルの完全なメディアで満たされ、個々の1.5ミリリットルチューブにリンパ組織を置きます。 10%中性緩衝ホルマリン中に腎臓を修正するか、または23のように、後に組織学のために腎臓を凍結スナップ。
- 3分間のコレクションの2時間以内に遠心血液。万XG(4℃)で。 ELISAによるANAの後の分析のために-80℃で血清およびストアを削除します。詳細ANA ELISAプロトコル24,25のためのこれまでの報告を参照してください。複数の10〜20μlの分量を保存血清は凍結/融解サイクルを最小限に抑え、将来のアッセイのより多くを可能にします。
- 遠心分離を5分間400×gで腹水。いくつかの0.5ミリリットルチューブに1ミリリットルピペットとアリコートで上清を取り除きます。抗核抗体(アナス)または他の可溶性の炎症性メディエーターの後の分析のために-80℃で上清を凍結。
- 再懸濁細胞のFRACT約1ml中のイオンの完全なメディアと(ステップ8のように)流れ染色のために96ウェルU底プレートに200μlのを転送します。
- 別々のチューブに70μmのセルストレーナーを介して各脾臓をつぶし、完全なメディアで洗い流してください。 1分間、1 mlの冷RBC溶解緩衝液を用いて脾細胞を再懸濁します。揺動により穏やかに混合します。 400×gで5分間冷たい完全なメディアや遠心分離で10mlにボリュームを持参し、上清をデカント。
- 5ml中に再懸濁細胞ペレットを完全培地とは、血球計数器を使用してカウントします。完全培地200μlの1〜3万個の細胞を含むように音量を調整します。ドナーCD4 T細胞およびレシピエントB細胞の分化および増殖を定量するために、拡張パネル( 表2)を用いたフローサイトメトリー(ステップ8)について染色始めます。
注:どのようなレーザによっては、光電子増倍管(PMT)、およびフィルタセットの組み合わせが利用可能である、複数のパネルにT及びB細胞分析パネルを分離する必要があるかもしれません。
- 個々の5ミリリットル丸底チューブに、または96ウェルU底プレートの別々のウェルに200μl中100〜300万の脾臓細胞に完全なメディアを転送します。
注:96ウェルプレートを使用して複数のサンプルを染色するための効率的な方法ですが、交差汚染を防止するために、他のすべてのウェル中のサンプルをプレートに注意してください。一つの96ウェルプレートは、それに応じて24のサンプルを保持することができます。 - 3分間500×gで遠心プレート。プレートから、その後フリック上清適切な(バイオハザード)容器に。
- 1μg/ mlのメーカーの推奨濃度および精製された抗CD16 /抗CD32抗体カクテルで固定可能な実行可能性色素を含む流動緩衝液100μl(PBS中1%FBS)で細胞ペレットを再懸濁します。その後、生存性色素を消光するために、100μlの冷たい完全なメディアを追加、20〜25℃で10分間インキュベートします。
注:病気のマウスからの脾細胞は、通常、死亡または死細胞の比較的高い数値が含まれています。そのため、実行可能性色素を含めることは、よりクリーンで信頼性の高いデータが得られ、死細胞の非特異的抗体標識を避けることをお勧めします。同様に、抗CD16 /抗CD32カクテルは、Fc受容体による非特異的蛍光標識抗体をブロックすることが含まれます。 - 3分間500×gで遠心プレート。、その後、プレートからフリック上清バイオハザード容器に。 200μlのフローバッファーで細胞を再懸濁し。 3分間500×gで遠心プレート。、その後、プレートからフリック上清バイオハザード容器に。
- 抗体カクテル( 表2)を含有する 50μlのフローバッファーで再懸濁細胞。 4℃で20分間インキュベートし、その後150μlのフローバッファを追加します。繰り返し洗浄ステップ8.4。
- PBS中の100μlの2%パラホルムアルデヒドで細胞を再懸濁します。 4℃で30分間インキュベートし、その後100μlのフローバッファを追加します。 3分間500×gで遠心プレート。、その後、プレートからフリック上清バイオハザード容器に。
- ResuspeND200μlの流れバッファに、チューブの挿入または標準の流管を流れるフローサイトメーターで取得まで暗所で4℃でさらに100〜200μlのフローバッファ、およびストアを追加する転送します。
- 染色の数日以内に選択された抗体のパネルのための適切なレーザーと光電子増倍管を装備したフローサイトメーター上で取得します。加えて録音前方散乱幅および/または高さは、散布面積、側方散乱領域と、利用蛍光パラメータのエリアを転送します。信頼性の高い結果を得るためには、≥1,000ドナーそれぞれのWT試料中の細胞、または非常に多くのイベントのコレクションが実行可能ではないかもしれないドナー細胞の最小限の拡張を示す遺伝的に改変されたまたは他の方法で操作したマウスにおける総リンパ球と同等の番号を取得。
注:分析が代表的な結果のセクション( 図3から6)に詳細に記載されているフローサイトメトリー。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
罹患マウスは、質量および細胞性( 図2)の面で健康なマウスの脾臓2-3倍のサイズを示す、わずか14日間で脾腫を開発しています。
脾細胞を順次光散乱(SSC-AによるFSC-A)にゲートされ、ダブレット(FSC-AによるFSC-Wまたは-H)、生細胞(生存性染料の低い染色)、 および CD4 +TCRβ+( 図の排除図3(a))。ドナー細胞は、CD45.1およびCD45.2( 図3B、左下)に基づいて、レシピエント細胞から区別されます。 PD-1、CXCR5、のBcl-6、およびICOS( 図3B、C)のアップレギュレーションにより特徴付けられるドナー細胞は、主に、T濾胞ヘルパー(TFH)細胞表現型を採用します。レシピエントCD4 T細胞集団の一部はまた、TFH( 図3B、右下)に分化します。導入細胞の初期ダイ・オフおよび/または移行後に、...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
BM12誘導モデルは、SLEの細胞および分子プロセスを研究するための比較的容易かつ効率的な方法です。自己抗原に対する養子移入CD4 T細胞の慢性的活性化は、ここで説明したように、フローサイトメトリーによって測定することができるTFH、GC B細胞および形質細胞の蓄積につながります。このモデルを使用して、将来の研究は、迅速かつ容易にSLEを有する患者において生じるものに似ていると、最終的に自己抗体の病理学的蓄積を支配する自己免疫胚中心プロセスにおける候補遺伝子および新規治療薬の役割を調べることができます。さらに、ここで説明したフローサイトメトリー分析は、以下を含む免疫グロブリンの開発を必要とする追加のマウスモデルを研究するために使用されるが、自己免疫、感染症、およびアレルギーに限定されないことができます。
ヒトの疾患のすべての動物モデルと同様に、このモデルは、その制限を有します。疾患develのスピードを考えますOPSとその大きさは、SLEの発症に関与する全ての遺伝子は、このモデルにおける病原性のために必要である可能性が高いではありません。データは遺伝的に改変されたレシピエントにお...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは開示するものは何もない。
謝辞
この作業は、Lupus Research Institute、NCI助成金CA138617、NIDDK助成金DK090978、Charlotte Schmidlapp Award(E.M.J.へ)、およびAlbert J. Ryan Fellowship(J.K.へ)によって部分的に支援されました。シンシナティ小児病院医療センターのリウマチ科のResearch Flow Cytometry Coreが提供し、NIH AR-47363、NIH DK78392、NIH DK90971が一部支援してくれたことに感謝しています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| B6です。SJL-Ptprca Pepcb/BoyJ | ジャクソン研究所 | 001162 | CD45.1+ BoyJ マウス B6 |
| (C)-H2-Ab1bm12/KhEgJ | ジャクソン研究所 | 001162 | Bm12 マウス |
| FastDigest PsuI | Life Technologies | FD1554 | ジェノタイピング用制限消化酵素 |
| 1X RBC Lysis Buffer | eBioscience | 00-4333-57 | |
| IMDM | GE Healthcare | SH30228.01 | |
| 血漿分離チューブ (PST) | BD | 365974 | 採血チューブ EDTAジカリウム |
| 血清分離チューブ (SST) | BD | 365967 | 血栓活性化剤付き採血チューブ / SST ゲル |
| フィコール | GE ヘルスケア | 17-1440-02 | 高密度細胞分離ソリューション |
| Lympholyte-M | Cedarlane | CL5030 | 細胞分離溶液 |
| GL-7-ビオチン | |||
| ストレプトアビジン-BUV395 | BD | 564176 | |
| CD138-BV421 | BioLegend | 142508 | |
| CD4-BV510 | BioLegend | 100559 | |
| TCRβ-BV605 | BD | 562840 | |
| CD45.1-BV711 | BioLegend | 110739 | |
| CD45.2-FITC | BioLegend | 109806 | |
| PD-1-PE | BioLegend | 135206 | |
| CD19-PerCP | BioLegend | 115532 | |
| Fas-PE-Cy7 | BD | 557653 | |
| CXCR5-APC | BioLegend | 145506 | |
| 固定可能な生存率色素 ef780 | eBioscience | 65-0865-18 | |
| CD4-BV421 | BioLegend | 100443 | |
| 1.2 ml FACS チューブインサート、ラックされた | USAサイエンティフィック | 1412-1400 | |
| BDファルコン&トレード;丸底チューブ | BD | 352017 |
参考文献
- Helmick, C. G., Felson, D. T., et al. Part I. Arthritis Rheum. Estimates of the prevalence of arthritis and other rheumatic conditions in the United States. 58, 15-25 (2008).
- Lupus Foundation of America Web Site. , Available from: http://www.lupus.org/answers/entry/what-is-lupus (2015).
- Somers, E. C., Marder, W., et al. Population-based incidence and prevalence of systemic lupus erythematosus: The Michigan lupus epidemiology and surveillance program. Arthritis and Rheumatol. 66, 369-378 (2014).
- Perry, D., Sang, A., Yin, Y., Zheng, Y. -Y., Morel, L. Murine models of systemic lupus erythematosus. J Biomed Biotechnol. 2011, 271694(2011).
- Lindholm, L., Rydberg, L., Strannegård, O. Development of host plasma cells during graft-versus-host reactions in mice. Eur J Immunol. 3 (8), 511-515 (1973).
- Fialkow, P. J., Gilchrist, C., Allison, A. C. Autoimmunity in chronic graft-versus-host disease. Clin Exp Immunol. 13, 479-486 (1973).
- Streilein, J. W., Stone, M. J., Duncan, W. R. Studies on the Specificity of Autoantibodies Produced in Systemic Graft-vs-Host Disease. J Immunol. 114 (1), 255-260 (1975).
- Gleichmann, E., Gleichmann, H. Diseases caused by reactions of T lymphocytes to in compatible structures of the major histocompatibility complex. I. Autoimmune hemolytic anemia. Eur J Immunol. 6 (12), 899(1976).
- Morris, S., Cohen, P. L., Eisenberg, R. Experimental induction of systemic lupus erythematosus by recognition of foreign Ia. Clin Immunol Immunopathol. 57 (2), 263-273 (1990).
- Chen, F., Maldonado, M., Madaio, M., Eisenberg, R. The Role of Host (Endogenous) T Cells in Chronic Graft-Versus-Host Autoimmune Disease. J Immunol. 161 (11), 5880-5885 (1998).
- Klarquist, J., Hennies, C. M., Lehn, M. A., Reboulet, R. A., Feau, S., Janssen, E. M. STING-Mediated DNA Sensing Promotes Antitumor and Autoimmune Responses to Dying Cells. J Immunol. 193, 6124-6134 (2014).
- Petri, M., Orbai, A. -M., et al. Derivation and validation of systemic lupus international collaborating clinics classification criteria for systemic lupus erythematosus. Arthritis Rheum. 64 (8), 2677-2686 (2012).
- Zangala, T. Isolation of genomic DNA from mouse tails. J Vis Exp. (6), e246(2007).
- Lorenz, T. C. Polymerase Chain Reaction: Basic Protocol Plus Troubleshooting and Optimization Strategies. J Vis Exp. (63), e3998(2012).
- Product information: Thermo Scientific FastDigest PsuI. , Thermo Scientific. Available from: https://tools.lifetechnologies.com/content/sfs/manuals/MAN0012567_FastDigest_PsuI_UG.pdf (2012).
- Matheu, M. P., Parker, I., Cahalan, M. D. Dissection and 2-photon imaging of peripheral lymph nodes in mice. J Vis Exp. (7), e265(2007).
- Harrell, M. I., Iritani, B. M., Ruddell, A. Lymph node mapping in the mouse. J Immunol Methods. 332 (1-2), 170-174 (2008).
- Covelli, V. Chapter 3, Internal examination. Guide to the necroscopy of the mouse. , Available from: http://eulep.pdn.cam.ac.uk/Necropsy_of_the_Mouse/index.php?file=Chapter_3.html (2009).
- Quah, B. J. C., Parish, C. R. The use of carboxyfluorescein diacetate succinimidyl ester (CFSE) to monitor lymphocyte proliferation. J Vis Exp. (44), e2259(2010).
- Matheu, M. P., Cahalan, M. D. Isolation of CD4+ T cells from mouse lymph nodes using Miltenyi MACS purification. J Vis Exp. (9), e53319(2007).
- Machholz, E., Mulder, G., Ruiz, C., Corning, B. F., Pritchett-Corning, K. R. Manual Restraint and Common Compound Administration Routes in Mice and Rats. J Vis Exp. (67), e2771(2012).
- Hoff, J. Methods of Blood Collection in the Mouse. Lab Animal. 29 (10), 47-53 (2000).
- Cohen, M., Varki, N. M., Jankowski, M. D., Gagneux, P. Using Unfixed, Frozen Tissues to Study Natural Mucin Distribution. J Vis Exp. (67), e3928(2012).
- Cohen, P. L., Maldonado, M. A. Animal models for SLE. Curr Protoc Immunol.. Chapter 15, Unit 15.20(2003).
- Seavey, M. M., Lu, L. D., Stump, K. L. Animal models of systemic lupus erythematosus (SLE) and ex vivo assay design for drug discovery. Curr Protoc Pharmacol. Chapter 5, Unit 5(2011).
- McKenna, K. C., Vicetti Miguel, R. D., Beatty, K. M., Bilonick, R. A. A caveat for T cell transfer studies: generation of cytotoxic anti-Thy1.2 antibodies in Thy1.1 congenic mice given Thy1.2+ tumors or T cells. J Leukoc Biol. 89 (2), 291-300 (2011).
- Scott, D. M., Ehrmann, I. E., et al. Identification of a mouse male-specific transplantation antigen H-Y. Nature. 376, 695-698 (1995).
- Joly, E., Hudrisier, D. What is trogocytosis and what is its purpose. Nat Immunol. 4 (9), 815(2003).
- Brown, D. R., Calpe, S., et al. Cutting edge: an NK cell-independent role for Slamf4 in controlling humoral autoimmunity. J Immunol. 187 (1), 21-25 (2011).
- Morris, S. C., Cheek, R. L., Cohen, P. L., Eisenberg, R. A. Allotype-specific immunoregulation of autoantibody production by host B cells in chronic graft-versus host disease. J Immunol. 144 (3), 916-922 (1990).
- Choudhury, A., Cohen, P. L., Eisenberg, R. A. B cells require “nurturing” by CD4 T cells during development in order to respond in chronic graft-versus-host model of systemic lupus erythematosus. Clin Immunol. 136 (1), 105-115 (2010).
- Slifka, M. K., Antia, R., Whitmire, J. K., Ahmed, R. Humoral immunity due to long-lived plasma cells. Immunity. 8 (3), 363-372 (1998).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
