成体幹細胞の生物学を研究するための理想的なモデルは、マウスの毛包です。ここでは、マウスの背側皮膚の酵素消化とそれに続くFACS分析を使用して、毛包幹細胞と表皮ケラチノサイトの異なる集団を分離するためのプロトコルを紹介します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
毛包(HF)は、成体幹細胞(SC)の生物学と調節を研究するための理想的なシステムです。このダイナミックなミニ臓器は、膨らみとして知られる領域であるHFの永久部分に位置するSCの明確なプールによって補充されます。これらの多能性バルジSCは、当初、スローサイクリングラベル保持細胞として同定されました。しかし、CD34やケラチン15(K15)などの特定の細胞マーカーを同定することで、その単離が可能になりました。ここでは、蛍光活性化セルソーティング(FACS)技術を用いて、マウスHFからバルジSCおよび表皮ケラチノサイトを単離するための頑健な方法について説明します。単離された毛包SC(HFSC)は、さまざまなin vivoグラフトモデルに利用でき、多能性、静止、活性化を支配するメカニズムを研究するための貴重なin vitroモデルです。
概要
成体幹細胞(SCS)は、死細胞を置き換えることにより、組織の恒常性を維持し、けがの際に損傷した組織を修復するために不可欠です。これらのSCは、継続的な自己再生を受けると、様々な細胞系列1-3に分化する能力によって定義されます。その補充のための成人のSCに依存している最も研究システムは、造血系、腸及び皮膚1,2,4を含みます。
胚発生の間、皮膚は、表皮細胞の単層として始まります。間葉系細胞は、皮膚を移植し、下層のコラーゲン性真皮5を形成する場合、毛包(HF)の形態形成が開始されます。下向き6を成長し始める毛プラコードを形成するために、後に、真皮乳頭(DP)を構成する表皮層の直下に整理し、上皮を刺激する間葉系細胞を、専門に。高いHFの底部に位置するマトリックス細胞を、増殖、内層が毛幹(HS)と周囲の内毛根鞘(IRS)2,3を形成するために、同心円筒に分化し始める一方で、これらの間葉系細胞を包むと毛球を形成します。
毛包間表皮(IFE)、皮脂腺(SG)およびHF:出生後の生活の中で、皮膚の表皮には3つの区画で構成されています。恒常性の一定の状態にあるIFEとSGとは対照的に、HFは、持続的な成長のサイクル(成長期)、破壊(退行期)、残り(休止期)4,7を受ける動的なミニ臓器です。毛包幹細胞(HFSCs)、燃料、この永久サイクルは、バルジ4として知られているHF内に特殊なニッチに存在します。 HFSCsが膨らみを終了する成長期の間に、DPからの起動信号以下、増殖し始めると下向きの下降従って、外毛根鞘として知られている細胞の長い直線状の軌跡を作成する(ORS)8-10。マトリックス細胞、すなわちHF、急速サイクルの基部にDPを囲むので、HSとIRS 10( 図1)を生成する最終分化を受けて上方へ移行します。成長期の持続時間は、毛髪の長さを決定し、マトリクスのセル6の増殖および分化能力に依存します。 HFが退行期に入ると、バルブ止めにおけるトランジット増幅マトリックス細胞は、増殖、アポトーシスを起こし、それがHF 8,11の非循環部に達するまで上方DPを引きながら完全に退行します。この後退の間、HFは退行期の特徴である上皮鎖として知られる一時的な構造を形成し、多くのアポトーシス細胞が含まれています。マウスでは、退行期は3-4間日間持続し、非常に最初の毛周期に同期されます。 HFは休止期に達すると、すべてのHFSCsが静止状態になります。 HFサイクルの異なる段階はまたメートルのため、マウスの皮膚の色の変化によって特徴付けられますelanin生産。退行期中の濃い灰色に成長期の間に黒から皮膚の変化は、休止期6,7,12,13の間にピンクに。
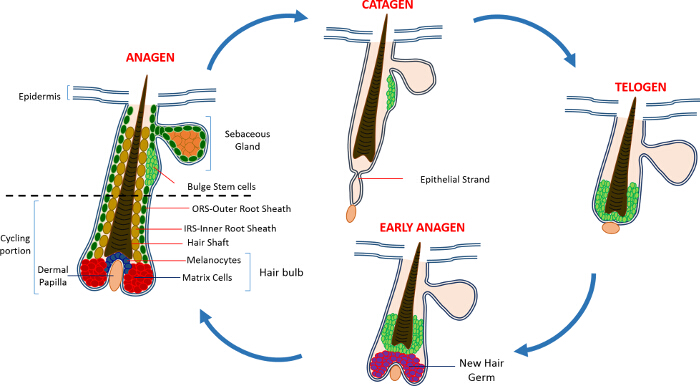
図1:毛包サイクル 。 HFは永久上部と急速な成長(成長期)、破壊(退行期)および相対的静穏期や休符(休止期)の連続的なサイクルを経る下絶えず改造、サイクリング部で構成されている。 大きい方を表示するには、こちらをクリックしてください。この図のバージョン。
HFを維持するのSCは、最初だけSG 14の下方HFの恒久的な地域に住んでスローサイクリングラベル保持細胞(LRC)の人口を明らかにしたトリチウム化チミジンで、チェイス実験を用いて同定しました。 HFSCの進歩特徴付けは、HFのニッチ15からの特定のSCを同定および単離するために使用することができるマーカーの数が少ないことが明らかになりました。おそらくHFSCsの濃縮のための最良のマーカーは、CD34、また、ヒト16中の造血SCマーカーとして同定された細胞表面マーカーです。このCD34 +集団内の2つの異なる集団はまた、α6インテグリンの発現2に基づいて単離されています。他のマーカーは、CD34発現と共局在し、K15プロモーターは、標的化およびトランスジェニック動物15,17-19にHFSCsを単離するために使用され、ケラチン高いバルジ領域で発現される15(K15)です。過去10年間でHFSCsおよび前駆細胞の他のいくつかの異なる集団はまた、HF 17,20-27内に存在することが報告されています。
HFSCsの追加の刺激的な特徴は、皮膚修復への貢献です。通常の条件下ではHFSCsは、HFを補充し、IFEの恒常性に関与しません。ハウ版、創傷に応じて、これらの細胞はIFE 9を再増殖にそのSCのニッチや援助を終了します。我々は最近、マウスがプロアポトーシスSept4 / ARTS遺伝子の表示のために、アポトーシスに対する耐性を実証CD34、K15およびSox9を+ HFSCs、数の増加を削除することを実証しました。 HFSCsはSept4 / ARTSから単離した- / -背部皮は蛍光活性化細胞選別(FACS)を利用し、CD34 +およびK15 + HFSCsの数の2倍を超える増加がありました。これらのSept4 / ARTS - / - HFSCsが、 インビトロで拡大していなかっただけでそれ以上のコロニーを生じたが、対照28と比較しても過酷な条件に耐えることができました。
HFSCs数が増加した結果、Sept4 / ARTS - / -マウスは、皮膚切除損傷に応答して有意に速く治癒します。驚くべきことに、Sept4 / ARTS - / -マウスdisplayeダ創傷床から再生されたHFSの数が多い、とかなり小さい傷跡。さらに、XIAP(アポトーシスのX連鎖阻害剤)、ARTSの生化学的目標のために削除されたマウスは、治癒障害28を実証しました。
我々の結果と他の研究室で行われた作業はHFSCsは大人のSCの生物学と機能を研究するための理想的なモデルとして役立つことが示されています。ここでは、4つのマーカーの発現に基づいてHFSCsと表皮角化細胞の濃縮及び単離するための方法論について説明します。インテグリンα6。インテグリンβ1; SCA-1(表皮角化細胞のマーカー)およびCD34。 K15 + HFSCsの同様の分離はまた、K15-GFPレポーターマウス19を用いて行うことができます。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
この研究は健康のイスラエルの省の実験動物の管理と使用に関するガイドに記載勧告に厳密に従って行きました。動物のすべてが承認された制度的動物管理プロトコルイスラエル工科大学のIL-02302から2015に従って取り扱われました。
1.実験の準備
- キレート化されたウシ胎児血清の調製
注:カルシウムに対するこれらの細胞の露出を制御することが重要ですので、上皮細胞は、カルシウムに対して非常に敏感です。細胞は、単離プロセスキレート中カルシウムに暴露されないことを確実にするために、ウシ胎児血清は、染色バッファ29の調製のために使用されるから残留カルシウムを除去するために使用されます。以下のプロトコルは、準備FACS染色バッファーに必要なカルシウムを含まないウシ胎児血清の約1 Lを用意します。- ドライキレート材料、 例えばの400グラムを追加します。4リットルのビーカーに、キレックス、全量4 L.カバーを蒸留H 2 Oを添加し、マグネチックスターラーを用いて連続的に撹拌します。
- 撹拌しながら10 N HCl溶液を用いてpHを7.4に調整します。 pHが20分以上のための安定したままになるまで20分間攪拌し続け、必要に応じてpHを再調整します。
- キレート物質がコンパクトペレットを形成できるようにするために、4℃で一晩ビーカーをインキュベートします。慎重にH 2 Oを吸引し、4 Lの全体積に新鮮な蒸留H 2 Oを追加
- ステップ1.1.2のようにpH調整を繰り返します。
- コンパクトなペレットを形成するためのキレート材料を可能にするために、1時間4℃でビーカーを置きます。注意深く吸引H 2 O
- ゆっくりキレート材料にウシ胎児血清の2 500ミリリットルのボトルを追加します。速度設定は、泡を生成しないことを確実に1時間4℃でゆっくり撹拌します。
- COMPを形成するためのキレート物質を可能にするために1時間4℃でビーカーを置きペレットを行動します。
- 注意深く1Lのガラス製ボトルに血清を移し、無菌条件下でボトルトップフィルターを介して濾過します。 -20℃でキレート化された血清を保存するか、すぐに使用しています。
- 染色緩衝液の調製
- 2+ の Ca 2+およびMgを含まないPBSでFBSをキレート化し、3%の100ミリリットルを用意し、氷上に保ちます。
大人の表皮からの毛包の2の単離
- インダクションボックスを用いて、5%イソフルランを用いてマウスを麻酔。ここで説明するプロトコルは、HFサイクルの休止期である50から80日齢のマウスを使用して最適化しました。
- 標準的な実験手順に従ってマウスを安楽死させます。ここでは、安楽死のチャンバー内でCO 2過剰投与を使用して、マウスを安楽死させます。
- 電気バリカンを使用して背部皮膚からすべての毛を剃ります。頭や手足を避けてください。皮膚にできるだけ近いバリカンを保管してください。皮膚や皮下層にダメージを与えることは避けてください。
- すべての毛が除去されると、任意の髪の残留物を除去し、背部皮膚を消毒するために70%エタノールを使用します。
- 解剖パッドの上にマウスを置き、使用する鉗子は、尾近くの皮膚を引き上げ、はさみを使って小さなニックを作ります。慎重に皮膚を切り欠いおよび筋膜からそれを分離することによって、後方、前方方向の全背部皮膚をカット。皮下層に損傷を与えないようにしてください。
- 、髪の面を下に解剖マットの上に皮を置き、所定の位置に固定するために、皮膚の二つの隣接エッジを突き止めます。ゆっくり真皮が明確かつ端正になるまで鈍メスを用いて、脂肪を削り取ります。
注意:脂肪を掻き落とすときは、肌に穏やかな圧力を適用するように湾曲した鉗子を使用しています。鉗子の湾曲した側面を使用して皮膚に圧力を適用します。これは、引き裂きから肌を防ぐことができます。 - 、真皮が100mm無菌培養皿に、ダウンサイド肌を置き、何の折り目がないことを確認するために皮膚をまっすぐ。カルシウムを含まないPBSの10ミリリットルを追加2+ - SUP>およびMg 2+(PBS)。
- PBSを吸引し、0.25%トリプシンの10ミリリットルを追加します。皮膚が展開され、自由に浮遊していることを確認してください。 0.25%トリプシンの10ミリリットルあたりの皮膚の一枚をインキュベートします。
- 30から120分間、または4℃で一晩、37℃でサンプルをインキュベートします。
毛包からの単一細胞懸濁液の調製
- 後方方向に前方に湾曲鉗子やメスを用いて皮膚からすべての髪を、こすり。鉗子の湾曲した側面を使用して所定の位置に皮膚を持ち、髪を掻き取るメスを使用しています。
注:ステップ2.8で追加されたトリプシン溶液中に髪を削り取ります。尾でスタートし、髪の成長の方向に従ってください。髪の成長の方向に対してスクレイピングは、細胞収率の実質的なHFSの損失と減少します。 HFSは共にそれぞれに付着し、小さな凝集塊を形成する傾向があります。目を低減するためにHF塊のEサイズは、一度に小さな領域を削り取るしてみてください。 - 新しい培養皿に毛のない皮膚を移し、10mlのPBSを追加-乾燥からそれを防ぐために。皮膚を点検し、残りの髪を掻き落とします。
- 単一のHF懸濁液が得られるまでメスや鉗子を使用してHFSを打破します。積極的にすべての髪の塊を破壊するために数分間10ミリリットルピペットを用いてHF懸濁液を粉砕します。
注:氷の上で、次のすべての手順を実行します。 - 前標識された50ミリリットルチューブにHF懸濁液を転送します。
- ;皮膚からとHFのサスペンションを含んでいた細胞培養皿を洗うためにそれを使用- PBSを吸引50mlのチューブに移します。
- 洗浄
- 50mlのチューブに装着70μmのセルストレーナーを通過することによってサスペンションをフィルタリングします。 ( - FBSキレート化3%PBS)染色緩衝液10mlで最初の50ミリリットルチューブとストレーナーを洗ってください。
- 渡すことによって、サスペンションをフィルタリング40μmのセルストレーナーを通して50mlのチューブに装着。すべての細胞が新しいチューブに転送されていることを確認するために、染色緩衝液5〜10 mlのチューブを洗浄します。すべての動物が処理されるまで氷上にサスペンションを保管してください。
- 4℃で300×gで15分間遠心分離します。慎重に染色緩衝液5mlにペレットを再懸濁ペレットを乱すことなく、上清を吸引除去します。
- 4℃で5分間300×gで遠心します。注意深く上清を吸引し、染色緩衝液800μlの中で細胞ペレットを再懸濁します。
注:上記の指定されたボリュームは、2つの成体マウス由来の細胞を染色するために十分です。
- 前標識されたFACSチューブにサスペンションを転送します。
- コントロールチューブについて、細胞懸濁液(または細胞懸濁液からの任意の残留左)の25-50μLを取り、染色バッファーで300μlの総体積を作ります。
注:(未染色のための制御管(総容量300μl)を準備しない抗体はありませんなしDAPI)。のみDAPI;インテグリンβ1;インテグリンα6。 SCA-1; CD34。
- コントロールチューブについて、細胞懸濁液(または細胞懸濁液からの任意の残留左)の25-50μLを取り、染色バッファーで300μlの総体積を作ります。
- 適切なチューブに所望の濃度の一次抗体およびDAPIを(適切な希釈のための材料の表を参照)を追加します。静かに細胞懸濁液を混合するためにチューブをフリック。氷上に戻り、光から保護するためにアルミホイルでカバーしています。
- 氷上で30分間インキュベートし、穏やかに細胞を懸濁状態に維持されることを保証するためにチューブを10分ごとにフリック。
- 染色緩衝液(チューブあたり約4ml)で、各FACSチューブを充填することにより細胞を洗浄。 4℃で300×gで5分間遠心します。
- 注意深く上清を吸引し、染色緩衝液800μlの中で細胞ペレットを再懸濁します。
- 単一細胞懸濁液を確実にするために、セルストレーナーキャップでFACSチューブに細胞懸濁液を移します。
4.フローサイトメトリー分析
- Signaのための適切なフィルタを用いて、フローサイトメーターを使用して、すぐに細胞選別に進んでくださいリットル検出。 (DAPIの測定用)405 nmの紫、(APCの励起用)と633nmの赤色のレーザー(FSC、SSC、PE、PE-Cy7のとFITCの測定用)488 nmの青を使用します
注:機器はすべての3つの蛍光チャネル用の検出器から記録されていることを確認。 - 未染色試料および単一染色されたコントロールを使用して、スペクトルのオーバーラップの補償に基づいて設定された蛍光ゲート。
注:蛍光シグナルの任意の重複を排除するために、チャンネル間の補償を調整するための単一の染色されたコントロールを使用します。補償調整は使用FACSソーターに依存します。 - 死細胞を排除するためにDAPIに基づいて、プライマリゲートを設定します。
- 一重のイベントを選択するために散布図(FSC-A対SSC-A)を調整します。
- ダブレットのために排除し、一重イベントを識別するためにFSCとSSCの高さと幅のパラメータを設定します。
- 高α6およびβ1発現を有するとCDのいずれかで、この集団のゲート細胞からのゲート細胞34高発現またはのSca1高発現。
- 予め標識FACSチューブにソート細胞。
注:細胞の二つの一般的な集団を単離することができます。 α6+ /β1+ / CD34 + / SCA-1 -及びα6+ /β1+ / SCA-1 + / CD34 - 。それらは、細胞培養またはRNAの単離などの下流のアプリケーションが使用されるまで、選別された細胞は、常に氷上で維持されるべきです
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
このプロトコルは、詳細に濃縮し、集団の2つのタイプの分離について説明します。バルジのSC及び表皮角化細胞を2プロトコルの主要なステップを示しています。バック8週齢のマウスの背部摘出皮膚を用いて、我々は唯一のHFSCsで表現されているCD34マーカーを使用して、バルジのSCを豊かに。およびSCA-1、表皮ケラチノサイトにラベルを付けます。3は、皮膚上皮細胞のα6+ /β1+集団内のCD34およびSCA-1の発現の異なるパターンを示しています。細胞は、最初のインテグリンα6の発現に応じてゲートしました そして、図3にP1として指定されているインテグリンβ1、。α6/β1expressionに対する陽性と細胞の集団は、その後CD34およびSCA-1細胞の発現に応じてゲートされました。細胞の二つの異なる集団は、SCA-1プロット対CD34に見られて...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
ここで説明するプロトコルは、よく成体マウスの背部皮膚からHFSCsを単離するための確立されていますが、同じように、マーカー2,16,23,28,29の選択に基づいて、HF構造内の他の集団の単離のために適用することができます。特定の細胞型は、不均一な細胞集団の混合物から選択され、収穫することができるという点で、この方法は、組織解離、細胞単離の他の方法、上特に有利です。さらに、ここで説明した方法は、迅速かつ信頼性があり、使用されるマーカーの差次的発現レベルに基づいて、4つの異なるHFSC集団まで単離することができます。このようなRNA-のSeqまたは質量分析などのさらなる分子分析のためだけでなく、その後の細胞培養および拡張のためおよびin vivoグラフトで HFSCsの濃縮および単離に使用することができます。
高品質の調製は、単一細胞懸濁液は、SUCの必須成分であります成功なFACS 29。このプロトコルの効率もHFの分離のために使用される出発材料に依存します。出発物質のケアの非上皮組織の量を最小限にする...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者には宣言するものは何もありません
謝辞
この研究は、NIH助成金RO1GM60124(H.S.へ)によって部分的に支援されました。H.S.は、ハワード・ヒューズ医学研究所の研究者です。Y.F.は、Deloro Career Advancement Chairおよびドイツ・イスラエル財団(I-2381-412.13/2015)の支援を受けています。D.S.は、Coleman-Cohenポスドクフェローシップの支援を受けています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| イソフルラン | プライマル・クリティカル・ケア | 66794-017-10 | |
| 二酸化炭素 | - | ||
| 電気シェーバー | オスター | ゴールデンA5 | シェーバーは、 |
| 70%エタノール | Gadot Lab | 830000051 | 96%エクタノールを使用できます |
| 解剖マット | 任意のプロバイダからの解剖ツールは、 | ||
| 鉗子 | デュモン | 11251-10 | レセスを使用することができ |
| はさみ | デュモン | 14094-11 | 他の会社からのはさみは |
| 針/ピン- | メス | ||
| アルビオン | 10 | メスの端が鈍い端を持っていることを確認してください | |
| 組織培養皿 60 mm x 15 mm | シグマ-アルドリッチ | CLS430166 | |
| PBS | - | カルシウムとマグネシウムを含まない社内PBS | |
| 0.25% トリプシン/EDTA | 生物産業 | 03-050-1A | 会社から得られるトリプシンは、トリプシン消化物の異なる活動と持続時間を持っている可能性がありますそれに応じて調整する必要があります |
| ペット10ミリリットル | シグマアルドリッチ | コーニング、4488 | |
| アイス | - | ||
| 50ミリリットル滅菌遠心分離管ミン | プラストアインシェマー35050-43 | ||
| 70 & マイクロ;m セルストレーナー | Fisher | 22362548 | |
| 40 & micro;m 細胞ストレーナー | Fisher | 22362549 | |
| 染色バッファー | - | ||
| 遠心分離 | Eppendorf 5804 R 5805 | 000.017 | |
| FACS チューブ セルストレーナーキャップ付き | ファルコン | ||
| FACSチューブ | ファルコン | ||
| インテグリン&ベータ;1 | eBioscience | 25-0291 | 1:400 |
| インテグリン&アルファ;6 | eBioscience | 15-0495 | 1:600 |
| Sca I | eBioscience | 11-5981 | 1:200 |
| CD34 | eBioscience | 9011-0349 | 1:300 |
| DAPI | Sigma-Aldrich | D9542 | 50 ng/ml |
| Dry Chelex | BioRad | 142-2842 | |
| Beaker | ピレックス | ||
| 蒸留H2O | - | - | |
| 攪拌子 | - | - | |
| NHCl | BioLab | 1903059 | |
| Fetal wevine serum (FBS) | Beit Haemek Biological Industries | 400718 | FBSは、別の会社から入手した1 |
| Lガラス瓶 | Ilmabor | Boro 3.3 | |
| ボトルトップ | フィルターAutofil | 1102-RLS |
参考文献
- Wagers, A. J., Weissman, I. L. Plasticity of adult stem cells. Cell. 116, 639-648 (2004).
- Blanpain, C., Lowry, W. E., Geoghegan, A., Polak, L., Fuchs, E. Self-renewal, multipotency, and the existence of two cell populations within an epithelial stem cell niche. Cell. 118, 635-648 (2004).
- Fuchs, E. Scratching the surface of skin development. Nature. 445, 834-842 (2007).
- Hsu, Y. C., Fuchs, E. A family business: stem cell progeny join the niche to regulate homeostasis. Nat Rev Mol Cell Biol. 13, 103-114 (2012).
- Blanpain, C., Fuchs, E. Epidermal homeostasis: a balancing act of stem cells in the skin. Nat Rev Mol Cell Biol. 10, 207-217 (2009).
- Alonso, L., Fuchs, E. The hair cycle. J Cell Sci. 119, 391-393 (2006).
- Muller-Rover, S., et al. A comprehensive guide for the accurate classification of murine hair follicles in distinct hair cycle stages. J Invest Dermatol. 117, 3-15 (2001).
- Zhang, Y. V., Cheong, J., Ciapurin, N., McDermitt, D. J., Tumbar, T. Distinct self-renewal and differentiation phases in the niche of infrequently dividing hair follicle stem cells. Cell Stem Cell. 5, 267-278 (2009).
- Ito, M., et al. Stem cells in the hair follicle bulge contribute to wound repair but not to homeostasis of the epidermis. Nat Med. 11, 1351-1354 (2005).
- Hsu, Y. C., Pasolli, H. A., Fuchs, E. Dynamics between stem cells, niche, and progeny in the hair follicle. Cell. 144, 92-105 (2011).
- Fuchs, E. The tortoise and the hair: slow-cycling cells in the stem cell race. Cell. 137, 811-819 (2009).
- Plikus, M. V., Chuong, C. M. Complex hair cycle domain patterns and regenerative hair waves in living rodents. J Invest Dermatol. 128, 1071-1080 (2008).
- Ito, M., Kizawa, K., Hamada, K., Cotsarelis, G. Hair follicle stem cells in the lower bulge form the secondary germ, a biochemically distinct but functionally equivalent progenitor cell population, at the termination of catagen. Differentiation. 72, 548-557 (2004).
- Cotsarelis, G., Sun, T. T., Lavker, R. M. Label-retaining cells reside in the bulge area of pilosebaceous unit: implications for follicular stem cells, hair cycle, and skin carcinogenesis. Cell. 61, 1329-1337 (1990).
- Cotsarelis, G. Epithelial stem cells: a folliculocentric view. J Invest Dermatol. 126, 1459-1468 (2006).
- Trempus, C. S., et al. Enrichment for living murine keratinocytes from the hair follicle bulge with the cell surface marker CD34. J Invest Dermatol. 120, 501-511 (2003).
- Morris, R. J., et al. Capturing and profiling adult hair follicle stem cells. Nat Biotechnol. 22, 411-417 (2004).
- Lyle, S., et al. The C8/144B monoclonal antibody recognizes cytokeratin 15 and defines the location of human hair follicle stem cells. J Cell Sci. 111 (Pt 21), 3179-3188 (1998).
- Liu, Y., Lyle, S., Yang, Z., Cotsarelis, G. Keratin 15 promoter targets putative epithelial stem cells in the hair follicle bulge. J Invest Dermatol. 121, 963-968 (2003).
- Vidal, V. P., et al. Sox9 is essential for outer root sheath differentiation and the formation of the hair stem cell compartment. Curr Biol. 15, 1340-1351 (2005).
- Snippert, H. J., et al. Lgr6 marks stem cells in the hair follicle that generate all cell lineages of the skin. Science. 327, 1385-1389 (2010).
- Nijhof, J. G., et al. The cell-surface marker MTS24 identifies a novel population of follicular keratinocytes with characteristics of progenitor cells. Development. 133, 3027-3037 (2006).
- Jensen, U. B., et al. A distinct population of clonogenic and multipotent murine follicular keratinocytes residing in the upper isthmus. J Cell Sci. 121, 609-617 (2008).
- Jensen, K. B., et al. Lrig1 expression defines a distinct multipotent stem cell population in mammalian epidermis. Cell Stem Cell. 4, 427-439 (2009).
- Jaks, V., et al. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat Genet. 40, 1291-1299 (2008).
- Horsley, V., et al. Blimp1 defines a progenitor population that governs cellular input to the sebaceous gland. Cell. 126, 597-609 (2006).
- Goldstein, J., Horsley, V. Home sweet home: skin stem cell niches. Cell Mol Life Sci. 69, 2573-2582 (2012).
- Fuchs, Y., et al. Sept4/ARTS regulates stem cell apoptosis and skin regeneration. Science. 341, 286-289 (2013).
- Nowak, J. A., Fuchs, E. Isolation and culture of epithelial stem cells. Methods Mol Biol. 482, 215-232 (2009).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
