ショウジョウバエの卵形成は、ミトコンドリアの増殖と遺伝の研究において非常に有用であり続けています。この原稿では、ショウジョウバエの成体卵巣の複製ミトコンドリアDNA(mtDNA)を5-エチニル-2'-デオキシウリジン(EdU)で標識するために使用される詳細なプロトコルについて説明しています。これにより、以前は議論の余地があったミトコンドリア遺伝に関連するメカニズムの解明が容易になります。
この記事について
サマリー
要約
ミトコンドリアゲノムは、母系を通じてのみ受け継がれます。ミトコンドリアとそのゲノムがどのように増殖し、女性の卵子を通じて世代から世代へと伝わるのかを理解することは、基本的に重要です。遺伝的な扱いやすさと、卵子の発達が進行するエレガントで秩序あるシンプルさのために、ショウジョウバエの卵形成はミトコンドリア研究にとって非常に貴重なシステムとなっています。EdU(5-エチニル-2'-デオキシウリジン)標識法を利用して、ショウジョウバエ卵巣のミトコンドリアDNA(mtDNA)複製を検出しました。この方法は、BrdU(5-ブロモ-2'-デオキシウリジン)標識法よりも優れており、良好な構造保存とホールマウント組織の蛍光色素の効率的な浸透を可能にします。
ここでは、ショウジョウバエの成体卵巣における複製ミトコンドリアDNAをEdUで標識するための詳細なプロトコルについて説明します。卵巣の生存率を改善し、準備中に卵巣の健康を維持し、高品質のイメージングを確保するために、いくつかの技術的解決策が提供されています。卵巣で新たに合成されたmtDNAを可視化することで、卵子形成によるmtDNA複製の顕著な時間的および空間的パターンが明らかになるだけでなく、さまざまな遺伝的および薬理学的摂動下でのmtDNA複製の簡単な定量化も可能になります。
概要
核ゲノムのほかに、各真核細胞はまた、ミトコンドリアマトリックス中の小さな環状DNAのコピー数千人が含まれています。ミトコンドリアDNA(mtDNAの)は電子伝達鎖の必須のサブユニットをコードするが、ミトコンドリアDNAの複製および転写のためのすべての因子を含むミトコンドリアプロテオームの大部分は、核ゲノムによってコードされています。継承のメンデル法則を次の核ゲノムとは対照的に、動物のミトコンドリアゲノムは母方の家系が独占的に継承されます。したがって、ミトコンドリアDNAが増殖し、女性の卵母細胞を介して、世代から世代へと伝達され、どのように理解することが基本的に重要です。しかし、ミトコンドリアDNAの複製は女性の生殖細胞系列に調節されている方法を超える継続的な議論があります。また、mtDNAの伝送のための広く受け入れられたmtDNAのボトルネック理論は、始原生殖細胞におけるミトコンドリアDNAの集団は比較的少数ドゥリンにサブサンプリングされることを示唆していますグラムの開発1 2。また、ミトコンドリアDNAの複製は、時間的および空間的に卵形成の間に調節されることを意味します。したがって、生殖系列発達中のミトコンドリアDNA複製のその場での検出は、ミトコンドリアDNAの継承のメカニズムの理解を容易にします。
ショウジョウバエの卵形成は、ミトコンドリアDNAの複製および送信を研究するための遺伝的に扱いやすいシステムを提供します。 2 ショウジョウバエ卵巣の各々において、産卵の機能単位であるovarioles 3と呼ばれる卵室16-20独立した文字列は、( 図1Aを参照)があります。各卵巣管は、前方先端が胚腺と呼ばれる構造で構成されている卵形成の漸進的な線形組織を、含まれています。胚腺はさらに、異なる発生段階の胚細胞を含む4つの領域に分割されています。領域1においては、生殖細胞系列幹細胞は、Cとして知られている娘細胞を産生するために、非対称分裂を経ますystoblasts。領域2aは、それらの最終的な分裂を完了したcystoblastsが含まれています。 Cystoblasts除算産16セル群の4ラウンドを受けます。 16細胞は、リング運河と呼ばれる細胞質ブリッジによって相互に接続されたまま。他の15の倍数体ナース細胞として発展しつつ細胞のみの1は、卵母細胞などの分化にコミットします。 fusomeとして知られている本質的な細胞質の構造は、リング運河の形成を促進する嚢胞極性及びナース細胞-卵母細胞相互作用4,5を決定することが提案されています。嚢胞は、領域2bに向かって移動すると、嚢胞構造が胚腺の幅全体に及ぶ、そしてより多くの毛包細胞に関連になります。胚腺の構成は、第1の新進卵室を含む領域3で終了します。その後、卵室は14の形態学的に異なる段階で卵巣管を経て進行胚腺の後端に組み付けられています。卵母細胞の成長はWH、ナース細胞に依存します卵母細胞へリング運河を経由してICH輸送タンパク質、mRNAおよび内膜構造( 例えば 、ゴルジ)。 ショウジョウバエの卵形成時には、それが各16セル嚢胞内のミトコンドリアの画分はfusomeに関連していたことが判明した、リング運河を通って移動し、Balbiani本体6と呼ばれる大きな塊で、単一の卵母細胞に送達しました。この現象は、女性の卵巣を介してミトコンドリア遺伝の品質管理に貢献することが提案されました。
ミトコンドリアDNA合成の検出は、細胞DNAへの標識DNA前駆体の取り込みに依存しています。伝統的に、チミジン、5-ブロモ-2'-デオキシウリジン(BrdU)のヌクレオシド類似体は、組織培養細胞7,8内のmtDNAの複製を標識するために使用しました。しかし、抗体ベースのBrdU標識は、特に、全マウント組織染色のために、いくつかの制限を示します。 BrdU標識の1つの主要な欠点は、それが露出するようにDNAの変性を必要とすることですBrdUのエピトープは、抗BrdU抗体によって検出することができます。試料は、化学物質( 例えば、塩酸またはメタノールと酢酸の混合物)のような過酷な変性条件下で処理する必要があり、熱、または消化試料の構造を破壊し、以下の染色手順9を複雑にし得るDNアーゼと、 10。
ここでは、代替チミジンアナログ5エチニル-2'-デオキシウリジン(EDU)は、ショウジョウバエの大人の卵巣で複製ミトコンドリアDNAを標識するために使用されます。この方法は、より速く、より高感度です。 EDUを容易にDNA複製の間に細胞のDNAに組み込まれます。以下の検出を「クリック」反応に基づいており、銅(I)は、末端アルキン基と蛍光アジド10との間の共有結合反応を触媒による。反応は、試料の変性を必要としないので、それは良好な構造保存を可能にします。色素Aのさらに、サイズzideは1/500ホールマウント組織の迅速かつ効率的な浸透を可能にする抗体分子10のそれのです。私たちは、 ショウジョウバエの卵形成時にミトコンドリアDNAの複製を検出するために、このメソッドを使用し、複製依存ミトコンドリアDNAの選択的継承機構を提案する私たちを導くショウジョウバエ卵巣 11、の胚腺領域での印象的な空間パターンを発見しました。ここでは、ショウジョウバエの卵巣におけるミトコンドリアDNA複製のEDUのラベリングに関する詳細なプロトコルを提示します。 11、ならびにミトコンドリア膜電位を放散し、潜在的にミトコンドリアDNAの複製を妨害するミトコンドリア脱共役剤の多様な治療で:プロトコルの適用を実証するために、我々はまた、ミトコンドリアDNAの変異体ショウジョウバエ (COI T300I MT)でのmtDNAの複製をテストしました。
プロトコル
1.組織収集および解剖
- 乾燥酵母を含む各バイアルにおいて、培養10成人女性は、2〜3日間10雄と飛びます。
注:よく給餌女性のハエを維持することは、全体的な品質と卵巣生産の歩留まりを向上させ、解剖を容易にするであろう。 - 二酸化炭素(CO 2)のメスのハエパッドフライ麻酔。
- ステレオスコープの下で、RT媒体解剖パッド上の(10%ウシ胎児血清(FBS)を補充したシュナイダーのショウジョウバエ培地)の数滴を置きます。生きていると健康な組織を維持するために培地中のすべての解剖の手続きを行っています。
- 肥育女性がその下胸部に鋭い微鼻の鉗子で飛ぶグラブ。腹部の組織が露出するまでフライの極端な後方で軽く引っ張るために鉗子の別のセットを使用してください。他の組織( 例えばガッツ)から2卵巣を外します。
注:各卵巣は、コンポーズある不透明な構造が表示されます16-20添付ovariolesのd-。 - 試薬の浸透を高めるために、それらを離れて引っ張り、数回卵巣管各々の間に鉗子の先端を渡すことによって卵巣を開きます。以下の手順の間に組織の損失を最小限にするために卵巣内で接続ovariolesを保管してください。
- 10%FBSとシュナイダーのショウジョウバエ培地500μlを含む1.5 mlのマイクロ遠心チューブにすぐに卵巣を転送します。
- 解剖を繰り返し、各マイクロチューブに10-15卵巣を集めます。
2. EDUのラベリング
- 各チューブ内の培地を吸引し、7μMのアフィディコリンを含む10%FBSをシュナイダーのショウジョウバエ培地500μlと交換してください。
注:アフィジコリンがミトコンドリアDNAの複製7,12に影響を与えることなく、DNAポリメラーゼαを阻害することにより、核DNA合成をブロックするために使用されます。アフィジコリン濃度までを増加させることが可能です70μMに優れた抑制を実現しています。アフィジコリンDMSO中3-30 mMのストック溶液は、最大6週間-20℃で暗所に保存することができます。 - 健康卵巣を維持するために、培地を交換しながら、彼らはソリューションの下に浸漬されていることを確認してください。ステップ2.6を介して10%FBSとシュナイダーのショウジョウバエ培地を使用してください。
- 穏やかに回転とベンチトップロッカー上で室温で3時間、卵巣をインキュベートします。
- 薬物治療のために、 例えば、ミトコンドリア脱共役剤カルボニルシアニド4-トリフルオロメトキシフェニルヒドラゾン(FCCP)、アフィディコリン処置の2時間後に培地中への薬剤の適切な濃度( 例えば、10μMのFCCP)を追加します。さらに1時間インキュベートし続けます。
- または薬剤を含まない培地を含むアフィジコリンを削除します。簡単に言えば二回(アフィジコリンは必要ありません)媒体と卵巣をすすぎます。
- 10μMのEDUを含む1ミリリットル中・7μMのアフィジコリンを追加し、incubatinを続けます2時間室温でグラム。 -20℃(DMSO中)の10mM EDU原液を保管してください。
- EDUとアフィジコリンを含む培地を除去します。 3分間ずつ二回(アフィジコリンなし)培地で洗浄します。
3.組織固定および透過処理
- リン酸緩衝生理食塩水(PBS、pH7.4)中の4%パラホルムアルデヒド溶液を調製します。
注:私たちは、事前に決めたアンプルに保存されている市販のパラホルムアルデヒドを使用していました。新しいアンプルを開き、使用前に4%に希釈します。
注意:ホルムアルデヒドは有毒です。それは、皮膚や眼の保護とドラフト内で処理する必要があります。 - 穏やかに回転させながら室温で20分間、4%パラホルムアルデヒドで卵巣を修正しました。
- 固定液を取り出して、5分間、PBS中3%BSAの1ミリリットルで2回、時間を卵巣を洗います。
- 組織を透過性にするために、洗浄溶液を除去し、PBS中の0.5%トリトンX-100の1ミリリットルを追加します。 RTで20分間インキュベートします。
- 透過性溶液を除去し、1ミリリットルで二度洗いPBS中3%BSAの。
4. EDU検出
注:EDU検出を「クリック」化学に基づいており、銅(I)は、EDUの末端アルキン基に蛍光アジドを追加し、[3 + 2]環13を 、 -触媒、および蛍光分子は、その後の検出に供されます。簡単に非触媒のCu(II)種に酸化されたCu(I)は、反応を触媒するために必要とされるので、銅(I)を得るために、 その場でのCu(II)、硫酸を低減することが推奨されます。それは、Cu(II)、硫酸銅(I)を生成する(本明細書では「バッファー添加剤」)、アスコルビン酸などの還元剤の存在下で使用されます。
- 実験の前に、(「染料アジ」以下のように命名されている好適なフルオロフォア、に応じて、アレクサフルオロ488アジ、アレクサフルオロ555アジ等)エドゥ反応バッファーとEDUバッファの添加剤をアレクサフルオロアジドのワーキング溶液を調製メーカーのに従って指示。
- 70μlのDMSO中の色素アジドを再構成します。 1年まで-20℃での作業溶液を保管してください。
- 脱イオン水で10倍EDU反応緩衝液を希釈することにより、新鮮なエドゥ反応緩衝液を準備します。
注意:使用後、4℃で、残りの1倍のソリューションを格納します。 1X溶液は、最大6ヶ月間安定です。 - 完全に2ミリリットルの脱イオン水に粉末を溶解させてEDUバッファ添加物の10倍のストック溶液を作ります。
注:このストック溶液は-20℃で最長1年間安定です。ソリューションは茶色を開発した場合、それが劣化していると、廃棄されるべきです。
- 新鮮なたびにEDUの反応カクテルを用意し、準備の15分以内に使用します。再現性のある結果を達成するために、反応成分が同じ比率で維持されていることを確認してください。
- 新鮮な1×EDUが10倍原液(ステップ4.1.3で調製した)を脱イオン水で1:10に希釈して添加液をバッファリングしてください。これはSが使用さ同じ日にolution。
- 860μlの1×EDU反応緩衝液、40μlののCuSO 4、2.5μlの色素アジ、100μlの1×EDUバッファ添加物:順序で以下の成分を組み合わせることにより、EDUの反応カクテルの1ミリリットルを準備します。
注:成分が最適な性能を確保するために添加されることが重要です。
- 3%BSAを含むPBSを削除し、各チューブにEDUの反応カクテルの0.5ミリリットルを追加します。穏やかに回転させながら室温で30分間インキュベートします。光から保護されたサンプルを保管してください。
- EDUの反応カクテルを削除し、PBS中3%BSA 1mlで1回洗浄。
- 1mlのPBSで一回のサンプルを洗ってください。
5.抗体ラベリング
注:EDU染色した後、抗体標識を実行します。追加の染色が必要ない場合は、1が直接取り付けおよびイメージングに進むことができます。サンプルはすべて、以下の手順で光から保護することが重要です。
- 洗浄液を除去します。 30分間、PBS中0.2%BSAおよび0.1%トリトンX-100を含むブロッキング溶液1mlに卵巣を遮断します。
- ブロッキング溶液を除去し、ブロッキング溶液中で希釈した一次抗体(抗体α 例えば、マウスのATP合成酵素サブユニット、1:1,000希釈)と交換してください。 4°CO / Nの暗所でインキュベートします。
- ブロッキング溶液の1ミリリットル3回、10分ずつでサンプルを洗浄します。バックグラウンドを最小限にするために、30分毎にさらに2回洗浄します。ブロッキング溶液を除去します。
- 室温で2時間(200希釈例えば、ヤギ抗マウスアレクサフルオロ568二次抗体を、1)ブロッキング溶液で希釈した二次抗体と共にインキュベートします。
注:EDUに結合された1つとは異なる色を使用してください。 - ステップ5.3で行われた洗浄手順を繰り返します。
- 界面活性剤を除去するためにPBSで1回の1ミリリットルで洗い流してください。
6.取付け・イメージング
- 慎重にすべてのPBSおよびIMMを削除ediately(またはDAPIなし)メディアをマウントする50μlのと卵巣をカバーしています。
注:ovariolesが互いに分離されている間に硬化しないマウンティング培地を使用してください。卵巣は週まで4℃でマウンティング媒体に格納することができます。 - ピペットチップの先端をカットし、顕微鏡スライド上に慎重に卵巣を転送するためにそれを使用。
- 実体顕微鏡下での鋭い微鼻ピンセットで完全に分離し、それぞれ卵巣管。後端とステージ14または成熟卵室で接続する組織を削除してください。若い卵室は、前端と透明です。
- 彼らはお互いに重ならないようにピンセットで卵室を合わせます。
- ゆっくりとサンプルの上に#1.5カバーガラスを下げます。封入剤は室温で数時間重合させました。透明マニキュアで密封します。
- 画像は翌日にスライド、または撮像前に4℃で保存します。
- 共焦点マイルの下で可視化63X油浸対物レンズでcroscope。 3次元のzスタック画像をキャプチャします。
注意:強いEDU信号は、上皮鞘の後の段階の卵室とバックグラウンド蛍光にあります。特に胚腺におけるEDUのラベリングを調べるとき、人はによってオーバーラップまたは他の組織もしくは後段の卵室の近くにされているgermariumsを避ける必要があります。
結果
上記のプロトコルは、 ショウジョウバエの卵形成時にミトコンドリアDNAの複製を示すミトコンドリア( 図1B-C)、関連付けられている点状の構造の可視化を可能にします。 EDUの斑点は、ATP合成酵素αサブユニット( 図2)のために染色することによってマークされ、ミトコンドリアに局在します。観察された信号は、これらの斑点が実際にmtDNA.Aphidicolinを複製するラベルがミトコンドリアDNAの複製( 図2)に影響を与えることなく、核DNAの染色を阻害するために使用されたことを検証し、エチジウムブロマイド11、mtDNAの複製14用の阻害剤で処理卵巣に存在しませんでした。アフィジコリン処理をせず、強烈なEDU信号は( 図3)核を標識し、ミトコンドリアDNAの斑点がほとんど検出されました。しかし、アフィジコリンの存在下では、核の取り込みを劇的に減少し、ミトコンドリアに関連する多くの斑点が観察されました。
ポスト胚腺卵室でのmtDNAの複製のハイレベル( 図1B)があります。しかし、特に、ミトコンドリアDNAの複製は、胚腺内の空間パターンを示しました。 EDUの涙点の数によって示されるように、胚腺の領域1におけるミトコンドリアDNA複製の適度なレベルが、領域2A( 図1C)をほとんどEDUの取り込みがあります。嚢胞は、胚腺に領域2Bまで移動すると、ミトコンドリアDNAの複製が再開され、領域2Bの後部嚢胞におけるEDUの涙点の数は、領域2A( 図1C)よりもはるかに高かったです。 HUのli太極拳シャオ(HTS)タンパク質によって染色として具体的には、集中的なEDUの取り込みは、リング運河やfusome構造の周りに濃縮しました。ミトコンドリアDNAは、胚腺の領域3に高レベルで複製し続ける( 図1C)
specifの関連性を実証するために、IC遺伝子もしくはミトコンドリアDNAの増殖での処理は、 ショウジョウバエ卵巣は、遺伝子操作または薬物処理を施すことができます。私たちは、FCCP、ミトコンドリア膜電位を放散させる古典的なミトコンドリアプロトノフォア、異なる濃度の卵巣を処理しました。対照として、DMSOは、ミトコンドリアDNAの複製( 図4A)に影響を及ぼしませんでした。 FCCPの高用量(10μM)をほぼ完全に胚腺( 図4D)全体のmtDNAの複製を枯渇します。それにもかかわらず、FCCP(2または5μM)の低濃度は、地域2Bおよび3はミトコンドリアの混乱に対してより敏感である示唆し、地域2Bおよび3( 図4B-C)における領域1におけるミトコンドリアDNAの複製に与える影響は軽微ますが阻害さ複製を持っていた、または彼らは相対的に遅い複製速度を維持します。上記の結果は、ミトコンドリアDNA複製がミトコンドリア活性と関連していることが示されました。特に、胚腺の異なる領域は、ミトコンドリアIMPに対して異なる回答しましたairment。
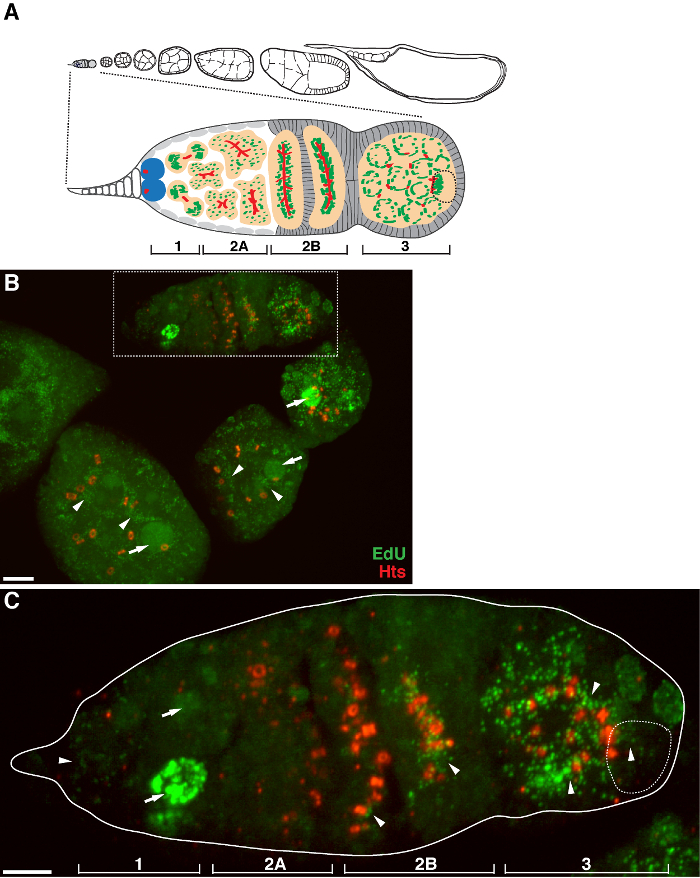
ショウジョウバエの卵形成の間に 、図1 のmtDNA複製。 ショウジョウバエ卵巣管と胚腺の拡大図の(A)図。卵巣管は、右後部に前部、卵室の連続した発達段階に左から示しています。胚腺において、fusome(赤)、生殖系列幹細胞(青)、ミトコンドリア(緑)、将来の卵母細胞(位置決め、fusome構造およびミトコンドリアクラスターによって認識破線)、現像嚢胞(モモ)と4つの発達領域が示されています。 (B)HTS-RC、リング運河とfusomeためのマーカーに対するEDUと抗体によって標識野生型卵巣管の代表zスタック投影。アフィジコリンの存在下では、EDUは、ミトコンドリアDNA(矢じり)および核(矢印)に組み込まれました。スケールバーは10μm。(C)Bに箱入りの地域で概説germariaの拡大図。 4発達領域が示されています。スケールバー、5μmの11。 この図の拡大版をご覧になるにはこちらをクリックしてください。
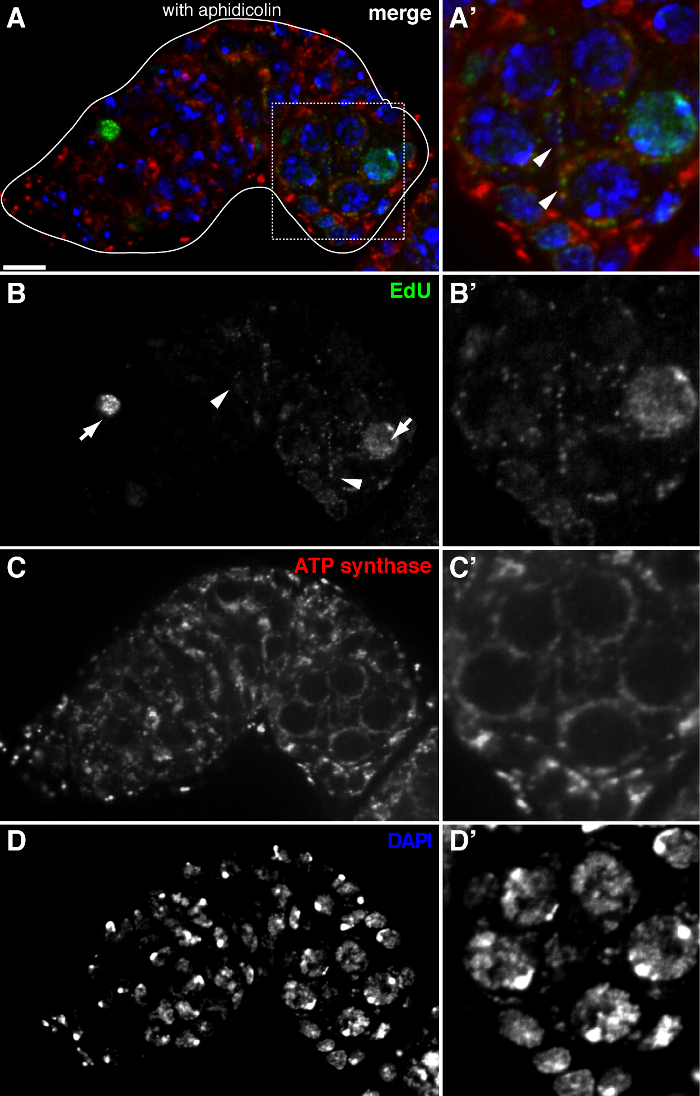
アフィジコリン処理とEDUの取り込みによって可視化ショウジョウバエ胚腺における 図2 のmtDNA複製 (A) - (D)EDUの取り込みを示す野生型胚腺の代表的な共焦点セクション(緑、b)は、ミトコンドリア、ATP合成酵素αサブユニット染色によってマーク(赤、C)、および核、DNAポリメラーゼαインヒビターアフィジコリンとのプレインキュベーションでDAPI染色(青色、D)で標識しました。 (A&#39 ;-D ')中の四角で囲まれた領域のA拡大画像(A)EDUの取り込み(Bを示す')、ミトコンドリア(C ')と核(D')。アフィジコリンの存在下では、核の取り込み(矢印)が低減され、多くの斑点はミトコンドリア(矢印)内に局在しました。スケールバーは10μm。図は、11から変更されている。 この図の拡大版をご覧になるにはこちらをクリックしてください。
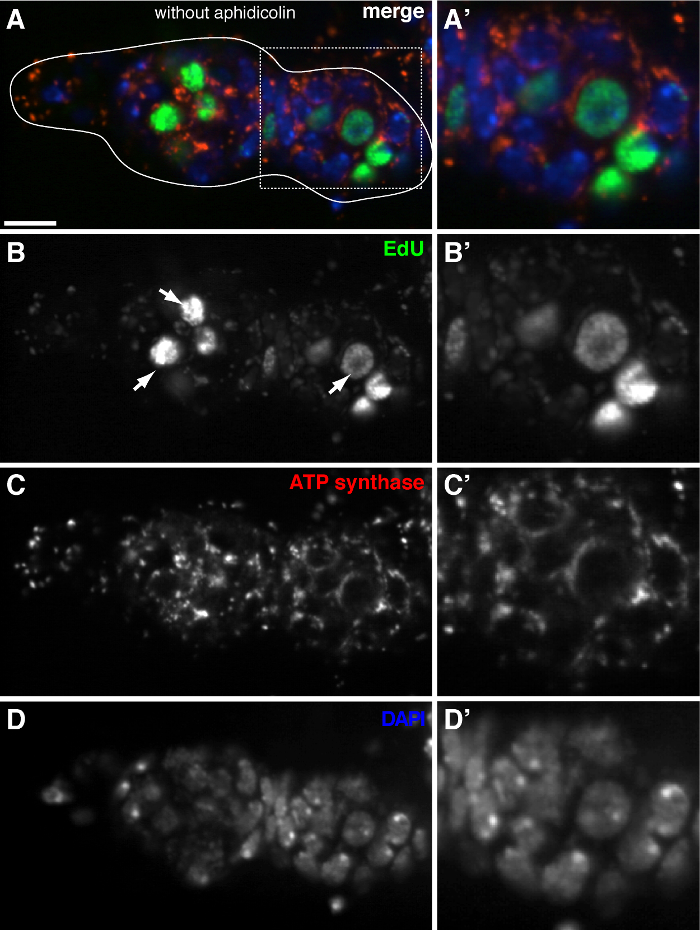
図3.ミトコンドリアDNAの複製は、かろうじてアフィジコリン処理を行わずに、ショウジョウバエの胚腺内で検出された (A) - 。でマークされたEDUの取り込み(緑)を示す野生型胚腺の(D)代表共焦点セクション、ミトコンドリア、DNAポリメラーゼαインヒビターアフィジコリンの非存在下でのDAPI染色(青色)で標識したATP合成酵素αサブユニットの染色(赤)、及び核。 (A'-D ')A拡大(A)中の四角で囲まれた領域の画像EDU取り込み(Bを示す')、ミトコンドリア(C ')および核(D')。アフィジコリンことなく、強烈なEDU信号ラベル核(矢印)、およびミトコンドリアDNAの斑点はほとんど検出されました。スケールバーは10μm。図は、11から変更されている。 この図の拡大版をご覧になるにはこちらをクリックしてください。
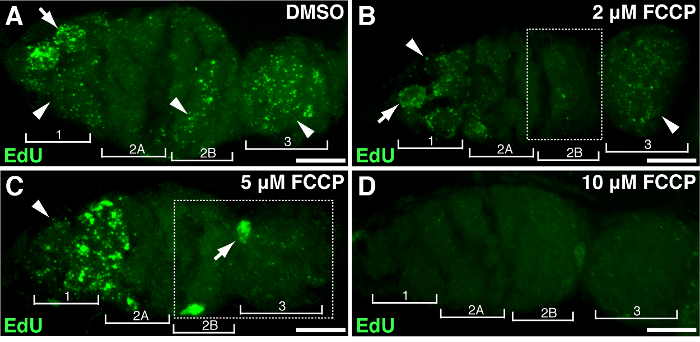
図4.ミトコンドリア脱共役剤は、ミトコンドリアDNAの複製を阻害する。DMSOで処理された野生型胚腺を示す代表的zスタックのプロジェクトを(A)または2μM(B)、5μM(C)、EDUの取り込み中に10μM(D)の濃度でミトコンドリアの脱共役剤FCCP。 2μMFCCP(B)で処理された領域2Bの減損EDUのラベリングをメモし、領域2Bと5μMのFCCPで処理された3の両方で(ボックスに概説)。フォー発達領域が示されています。アローズ、核DNA;矢じり、mtDNAを。スケールバーは10μm。図は、11から変更されている。 この図の拡大版をご覧になるにはこちらをクリックしてください。
ディスカッション
EDUの標識が新たに合成されたDNAへの組み込みおよびヌクレオシド類縁体の染色に基づいて増殖している細胞においてDNA合成を検出するための新規かつ効率的な方法です。この方法は、迅速かつ高感度であることをBrdU標識方法よりも優れています。さらに重要なのは、それが良好な構造保全とホールマウント組織9、10の効率的なEDU-染料浸透を可能にします。歴史的には、BrdU標識に優れた代替手段として、EDUのラベリングは、のS期の間に核DNAの複製を研究するために使用しました細胞周期。アフィジコリンは、S期における核DNAの複製のための主要なポリメラーゼ12 15であるDNAポリメラーゼαの阻害剤です。ミトコンドリアDNAの複製は、治療をアフィジコリンの影響を受けないDNAポリメラーゼγによって行われます。したがって、前とエドゥのインキュベーション中アフィジコリンによる治療は大幅に核DNAにEDUの取り込みを阻害しました。そうすべきアフィジコリンが適切に保存されている場合は、数週間安定であってもよく、核DNAの複製を阻害するのにアフィジコリンの有効性は、私たちの手で変動したことが注目されます。強い核DNA標識とovariolesまたは卵室は、データ分析から除外されるべきです。
ミトコンドリアDNAの複製が容易に細胞質の総体積に正規化されたEDUの涙点の数を、カウントすることにより、ミトコンドリアDNA複製のレベルを定量化するための簡単な方法を提供する細胞質に斑点として可視化することができます。イメージングソフトウェアは自動的に大きなデータセットの計算分析に特に有用である顕微鏡画像でEDUの涙点を特定するために適用することができます。核DNA複製の不完全な阻害は、染色体上の異なる遺伝子座におけるEDUの取り込みにつながり、核内部の斑点として表示することができますので、しかし、注意事項は、注意が必要です。また、他の例では、EDUの強度はREPLIに組み込みます背景とノイズが高くなる可能性がながらcatingのmtDNAは、弱いかもしれません。そのため、自動画像解析のための個々のパラメータは、慎重に定義する必要があります。また、画像は適切なEDUの斑点が識別されていることを確認するために、専門家の目で検証されなければならないことをお勧めします。
ショウジョウバエの卵形成の間に新たに合成されたミトコンドリアDNAの可視化は、ミトコンドリアDNAの複製が、薬理学的または遺伝的摂動の多様にさらさハエで実験を行うことにより、生理学的または病理学的条件の下で規制されているかを調査する機会を提供します。 COI T300I 11:以前の研究では、EDUの取り込みアッセイは、ミトコンドリアDNAの変異体ショウジョウバエのmtで行いました。また、ミトコンドリア膜電位を破壊するために、卵巣は、ミトコンドリアの脱共役剤FCCP又は2,4-ジニトロフェノール(DNP)前EDUの取り込みの種々の濃度で処理しました。実験の目的に応じておよび薬物の特性、異なる方法が効果的な送達のために採用される可能性があります。成体ハエのために、薬物は、蒸気(例えば、エタノール、コカイン)として提示することができる16,17または薬物は、それがすぐに本体18全体に拡散腹部に注入することができます。最も一般的な方法は、薬物は、フライ食品またはスクロース/薬物飽和濾紙に追加されることです。例えば、微小管集合の阻害剤、コルヒチンは、卵巣解剖19の前に2~3日間ハエに供給しました。したがって、薬物送達方法を評価し、適切な濃度を選択することが重要です。
ショウジョウバエ卵巣におけるミトコンドリアDNA複製の成功イメージングを確保するために、いくつかの重要なステップは、慎重に実行する必要があります。まず、解剖とEDUの取り込み中に卵巣の生存能力と健康を維持することが不可欠である(ステップ1及び2)。 FBSとシュナイダーのショウジョウバエ培地を室温に温めする必要があります使用前に。一つは卵室と解剖ツールやピペットチップとの間の直接的な接触を最小限に抑える必要があります。卵巣は脱水を避けるために、ソリューションの下にすべての回浸漬する必要があります。組織を誤操作することは容易に蛍光シグナルを失神またはNOにつながることはできません。組織実装工程時に、ovariolesが互いに分離されるべきであり、顕微鏡スライド上に広げ。卵室は、互いの上に積み重ねられていないことを確認します。私たちは、ステージ14を越えて卵室は少しEDUの取り込みを表示していることに気づきました。また、ためにサイズが大きい、後期卵室は、多くの場合、隣接若い卵室の焦点が合ってにさせます。したがって、後期卵室が破棄されることをお勧めします。
ここでは、 ショウジョウバエの大人の卵巣でのmtDNAの複製を標識するための詳細なプロトコルを提供します。この方法は、様々な遺伝的および薬理学的摂動下でのmtDNAの複製の簡単な定量を可能にします、および発生ミトコンドリア生合成およびミトコンドリアDNAの継承のメカニズムを解剖するために有用であろう。
開示事項
著者らは開示するものは何もない。
謝辞
原稿に対するコメントをいただいたK.デラニーに感謝します。この研究は、国立、心臓、肺、血液研究所(NHLBI)の学内プログラムの支援を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| シュナイダー's ショウジョウバエ培地 | Invitrogen | 21720-024 | |
| FBS | Invitrogen | 10100-147 | |
| デュモン #5 鉗子 | ファインサイエンスツール | 11252-20 | |
| アフィジコリン | シグマ | A0781 | DMSOに溶解した後のアリコート。解凍と凍結の繰り返しは避けてください。光から保護してください。溶解後6週間以内にご使用いただけます。 |
| FCCP | Sigma | C2920 | |
| DMSO | Sigma | D2650 | |
| パラホルムアルデヒド、16% EMグレード | 電子顕微鏡 科学 | 15710 | ホルムアルデヒドは有毒です。皮膚と目の保護具が付いたドラフトで取り扱う必要があります。 |
| PBS | KD Medical | RGF-3190 | |
| BSA | Sigma | A7030 | |
| Triton X-100 | Sigma | T9284 | |
| Click-iT EdU Alexa Fluor 488 イメージングキット | Invitrogen | C10337 | EdU、CuSO4、Alexa Fluor 488 アジド、EdU 反応バッファー、Edu バッファー添加剤が含まれています |
| マウス ATP 合成酵素サブユニットおよびアルファ抗体、(15H4C4) | MitoSciences | Ab14748 | 1:1,000 希釈 |
| マウス Hts 抗体 (クローン RC) | Developmental Studies Hybridoma Bank (DSHB) | hts RC | 1:1,000 希釈 |
| ヤギ 抗マウス Alexa Fluor 568 二次抗体 | Invitrogen | A-11004 | 1:200 希釈 |
| Vectashield 封入剤 DAPI | Vector Laboratories | H-1500 | |
| ガラスカバースリップ, #1.5 22 mm x22 mm | フィッシャー・サイエンティフィック | 12-541-B | |
| 顕微鏡スライド | フィッシャー・サイエンティフィック | 22-038-103 | |
| マニキュア | エルフ | マニキュアに使用される顔料の多くは蛍光性で、標本に浸出します。透明なマニキュアのみを使用してください。 |
参考文献
- Taylor, R. W., Turnbull, D. M. Mitochondrial DNA mutations in human disease. Nat Rev Genet. 6 (5), 389-402 (2005).
- Wallace, D. C., Chalkia, D. Mitochondrial DNA genetics and the heteroplasmy conundrum in evolution and disease. Cold Spring Harb Perspect Biol. 5 (11), a021220(2013).
- Spradling, A. C. The development of Drosophila melanogaster. , Cold Spring Harbor Lab. Press. (1993).
- Riechmann, V., Ephrussi, A. Axis formation during Drosophila oogenesis. Curr Opin Genet Dev. 11 (4), 374-383 (2001).
- Lin, H., Yue, L., Spradling, A. C. The Drosophila fusome, a germline-specific organelle, contains membrane skeletal proteins and functions in cyst formation. Development. 120 (4), 947-956 (1994).
- Cox, R. T., Spradling, A. C. A Balbiani body and the fusome mediate mitochondrial inheritance during Drosophila oogenesis. Development. 130 (8), 1579-1590 (2003).
- Davis, A. F., Clayton, D. A. In situ localization of mitochondrial DNA replication in intact mammalian cells. J Cell Biol. 135 (4), 883-893 (1996).
- Iborra, F. J., Kimura, H., Cook, P. R. The functional organization of mitochondrial genomes in human cells. BMC Biol. 2, (2004).
- Rakic, P. Neurogenesis in adult primate neocortex: an evaluation of the evidence. Nat Rev Neurosci. 3 (1), 65-71 (2002).
- Salic, A., Mitchison, T. J. A chemical method for fast and sensitive detection of DNA synthesis in vivo. Proc Natl Acad Sci U S A. 105 (7), 2415-2420 (2008).
- Hill, J. H., Chen, Z., Xu, H. Selective propagation of functional mitochondrial DNA during oogenesis restricts the transmission of a deleterious mitochondrial variant. Nat Genet. 46 (4), 389-392 (2014).
- Lentz, S. I., et al. Mitochondrial DNA (mtDNA) Biogenesis: Visualization and Duel Incorporation of BrdU and EdU Into Newly Synthesized mtDNA In Vitro. Journal of Histochemistry & Cytochemistry. 58 (2), 207-218 (2010).
- Tornoe, C. W., Christensen, C., Meldal, M. Peptidotriazoles on solid phase: [1,2,3]-triazoles by regiospecific copper(i)-catalyzed 1,3-dipolar cycloadditions of terminal alkynes to azides. J Org Chem. 67 (9), 3057-3064 (2002).
- Horwitz, H. B., Holt, C. E. Specific inhibition by ethidium bromide of mitochondrial DNA synthesis in physarum polycephalum. J. Cell Biol. 49, 546-553 (1971).
- Huberman, J. A. New views of the biochemistry of eucaryotic DNA replication revealed by aphidicolin, an unusual inhibitor of DNA polymerase alpha. Cell. 23 (3), 647-648 (1981).
- McClung, C., Hirsh, J. Stereotypic behavioral responses to free-base cocaine and the development of behavioral sensitization in Drosophila. Curr Biol. 8 (2), 109-112 (1998).
- Moore, M. S., et al. Ethanol intoxication in Drosophila: Genetic and pharmacological evidence for regulation by the cAMP signaling pathway. Cell. 93 (6), 997-1007 (1998).
- Dzitoyeva, S., Dimitrijevic, N., Manev, H. Gamma-aminobutyric acid B receptor 1 mediates behavior-impairing actions of alcohol in Drosophila: adult RNA interference and pharmacological evidence. Proc Natl Acad Sci U S A. 100 (9), 5485-5490 (2003).
- Koch, E. A., Spitzer, R. H. Multiple effects of colchicine on oogenesis in Drosophila: induced sterility and switch of potential oocyte to nurse-cell developmental pathway. Cell Tissue Res. 228 (1), 21-32 (1983).
再版と許可
