虚血性脳卒中、酸素無グルコース (OGD) に影響を受ける脳の領域にアストロ サイトの特定の貢献がさらされて複雑なイベントは調査しにくい。孤立したアストロ サイトを取得し、反応性、OGD 条件下での増殖を研究する手法を紹介します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
方法論記事
反応性アストロ サイトと増殖の in Vitro虚血のような条件下での監視
* These authors contributed equally
この記事について
サマリー
要約
虚血性脳卒中は血栓や塞栓脳の部分への血流を妨害によって引き起こされる複雑な脳損傷です。これは、酸素とブドウ糖のエネルギー不全や神経細胞死を引き起こすの剥奪に します。虚血性脳卒中の侮辱後、アストロ サイトは反応になるし、それが発展するにつれ、損傷部位の周囲増殖します。このシナリオの下では、虚血にさらされている脳の領域にアストロ サイトの特定の貢献を研究することは困難です。したがって、プライマリ アストロ サイトの反応と酸素無グルコース (OGD) と呼ばれる虚血のような環境の生体外モデルの下で増殖を検討する方法を紹介します。アストロ サイトは 1-4 日から分離された-古い新生児ラットと非特異的アストロ サイト細胞の数は、アストロ サイト選択的マーカー グリア線維性酸性蛋白質 (GFAP) と染色性が核を使用して評価されました。公開されている酸素の割合のと同様、OGD 条件に服従するアストロ サイトの期間をカスタマイズできます。この柔軟性により、細胞の試験管内のさまざまなグループの虚血のような条件の期間を特徴付けるための科学者です。この資料では、反応性アストロ サイト、肥大形態と増殖細胞核抗原 (PCNA) を用いた蛍光抗体法によって測定される増殖を誘発する OGD の時間枠について説明します。増殖、ほかアストロ サイトはエネルギーと酸化ストレスを受けるし、細胞培地に可溶性因子を放出し OGD に対応します。このメディアを収集し、分子細胞間相互作用のない初代神経細胞培養アストロ サイトによるリリースの影響を分析するために使用することができます。要約すると、傷害に孤立したアストロ サイトの役割を理解するこの一次電池文化モデルを効率的に使用できます。
概要
ストロークは、「、急性神経障害血管由来の症状と脳の焦点区域の関与に対応する徴候の突然または急速な開発と」1,2として定義されます。ストロークの 2 つの種類があります: 出血性および虚血性。動脈瘤や、動脈の破裂の後弱体化を伴う動静脈の故障により血管機能不全が引き起こされるときほとんどの場合、死につながる3出血性脳卒中と呼びます。血栓または塞栓は、血流を妨げ、脳の領域に酸素とグルコースの一時剥奪の原因と呼びます虚血性脳卒中4。影響を受ける地域や恒常性、代謝の不均衡、エネルギッシュな不全、神経細胞死および炎症5患者6生涯障害を誘発することができますに虚血性の芯線の周りの細胞に栄養を与えるに失敗しました。
虚血性脳卒中は多因子性傷害を含むいくつかの種類の細胞が反応し、異なる時点でその効果を発揮します。多くの相互作用は、個々 の細胞の挙動を調べるための困難な環境を作成します。だから、どのようにこのような複雑な環境下で特定のセルタイプの寄与を調べたか?虚血の認められた体外モデルは、平地の環境に、細胞の修復に続く一定の期間酸素とグルコースの剥奪 (OGD) へ細胞を公開するための構成されます。このシステムは、脳虚血再潅流をシミュレートします。この方法では細胞や組織が削除されるは特殊な低酸素室を用いた酸素環境のブドウ糖自由な媒体に公開されます。最大 24 h で、テストしたい仮説によって数分から OGD インキュベーション時間は異なります。研究が示している OGD 回数に応じて、平地環境、ストローク (すなわち、急性または亜慢性) の特定の表現型が実現できます。平地の条件に後部修復 OGD にさらされる主の孤立したアストロ サイトは、ストローク体外7を模倣するよく研究細胞モデルです。OGD を使用してストロークのような環境下での隔離されたセルの独立した分子メカニズムを明らかにすることができます。
アストロ生物学の知識が増えると、彼らがシナプスを維持し、神経の修復、開発、および可塑性8を維持するために重要なことは明白になりました。通常の条件下でアストロ サイトは解放し、サイトカイン、ケモカイン、成長因子、gliotransmitters、新陳代謝のバランスとシナプス5,9内の恒常性を維持に対応します。虚血性脳卒中などの急性 neuroinflammation でこれらの細胞が反応になって、長期的な過剰発現のグリア線維性酸性タンパク質 (GFAP) を示し肥大の形態5,10,11,12. 虚血性梗塞が発展すると、アストロ サイトによって提供される恒常性、通常グルタミン酸取り込み、エネルギー代謝、活性と抗酸化活性13の交換に関する影響になります。
再アクティブ化されたアストロ サイトは、白血球の破壊領域14に向けて移行中周囲の梗塞組織増殖します。アストロ サイトの増殖は、増殖細胞核抗原 (PCNA)、キ67、ブロモデオキシウリジン (BrdU)15などのマーカーを使用して測定できます。この増殖応答が時間依存的に生成されます、それグリア瘢痕、外傷9後破損したサイトの実質に沿って不可逆的反応性アストロ サイトの配列を形成できます。この傷跡の初期の機能の 1 つはこの区域から免疫細胞漏出を制限します。しかし、研究では、傷跡が拡張、軸索の成長を阻害する分子をリリースおよび軸索が16患部の周りを拡張することを防ぐ物理的な障壁を作成する軸索の物理的な障害になることを示しています。それにもかかわらず、脊髄損傷後完全にグリア瘢痕の形成を防止するが17軸索の再生を損なうことができるを示す科学的な証拠があります。したがって、傷害の検討の枠組みに、測定する特定のアストロ サイトの応答コンテキストを考慮されなければなりません。
酸素無グルコース後アストロ サイトの個別の機能の研究に提示された方法論を適用できるし、調査官が答えたい質問に応じて変更することができます。たとえば、形態変化、OGD 時期を表明したマーカーのほか OGD にさらされているアストロ サイトから清さらに分析できる可溶性因子これらの細胞によって解放または評価するために調節されたメディアとして使用を識別するために、他の脳細胞に影響します。このアプローチにより、支配すると虚血性脳卒中のシナリオでその応答を調節する因子の解明につながる可能性がアストロ サイトの反応性に関する研究です。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
生後ラット (スプレイグ ドーリー) 1-4 日古い皮質を分離する使用されます。安楽死の方法は斬首、NIH ガイドラインで認められています
。1。 器具用材料手術準備
- 定置滅菌器オートクレーブ (温度: 121 ° c、圧力: 15 psi、時間: 30 分) スチール ボックスまたは瞬時滅菌袋のシールを使用。材料表 の材料を参照してください 。
2。DMEM 準備完了
- 700 mL オートクレーブ処理した水を含む 1 リットル ビーカー、追加ダルベッコ ' s 修正イーグル ' s 常温中粒 。
- 磁性攪拌器で、溶液を攪拌しながら炭酸水素ナトリウム 3.7 g/L を追加 。
- 7.4、オートクレーブ養生水に pH を調整 1 L、最大ボリュームをもたらすし、フィルターします。文化のために、10 %fbs と 1% でメディアの音量を補うペニシリン/ストレプトマイシンと 37 ° C で暖かい。材料表 の材料を参照してください
。 注:PH は、pH メーターの電極を挿入メディアを介して 7.4 に調整しました。スポイトを使用して 1 M NaOH をゆっくりと追加メディアを攪拌する必要があります 。
3。培養アストロ サイト
注:, 播種後 3 日おきの携帯メディアする必要があります変更して、セルは confluency (11-13 日) まで成長することができます。3 日目、数回リフト ミクログリア細胞と文化をオリゴデンドロ サイト前駆細胞にフラスコをタップし、すべて削除、' 古い ' メディア、10 mL の PBS を使用 2 回洗って、PBS を吸引し、新鮮な新しいメディアを追加します。材料表 の材料を参照してください
。- ラット新生児の脳の解剖
- 実行ティッシュ文化フードの郭清。1-4 日古いラット新生児子犬 (2 ラットの脳は 75 cm 2 フラスコあたり使用される) を取得します 。
- 3 つの 60 mm のペトリ皿を準備し、それぞれに完全な DMEM の 5 mL のピペットします
。 注:彼らは次のように分けることができます: #1 各ラットの脳、脳のすべての皮質、髄膜) を除いたすべての皮をむいた野 #3 #2. - 子犬を持ち 70% エタノールをスプレー。それの首をはねるし、小さなバイオハザード廃棄物コンテナーに体を破棄します 。
- 頭蓋を公開する頭の上に皮膚をカットして、頭を保持するミクロ解剖ピンセットを使用します 。
- はさみの別のペアを作る、" T " 切開、鼻に向かって頭蓋骨の後方からのスタートします。そっと頭蓋骨を削除する鉗子のペアを使用します 。
- ピンセットのペアを持つ露出した脳を削除し、以前満ちている培地シャーレのいずれかで脳を配置します 。
- 以降の手順の滅菌器具の別のセットを使用します 。
- は、軽く 60 mm のペトリ皿の逆蓋に一つの脳を配置するのにミクロ解剖鉗子を使用します。滅菌ガーゼにペトリ皿を配置すると、脳を明確に表示することが可能だし、分析する簡単だ 。
- ミクロ解剖鉗子で着実に脳と大脳半球のミクロ解剖鉗子の鋭い端で正中線割れ目に沿って優しくからかうを区切ります 。
- 偏向皮質、白質を残して皮をむくし、以前 #2 ペトリ皿にそれらを転送します。#2 ペトリ皿に切り裂かれたすべての皮質を結合すべての脳に対して手順を繰り返します 。
- それぞれの皮質下から海馬を取り出してそれを破棄
- ミクロ解剖ピンセットと 60 mm ペトリを使用して、個々 の脳葉から髄膜を慎重にはがし、ラベル #3 シャーレにそれらを配置します 。
- 組織解離: ホモジナイザー ミキサー メソッド
- 滅菌ミキサー バッグにティッシュ/ミディアム懸濁液 (脳の皮をむいた野) を注ぐし、5 mL に袋の総容積をもたらす十分な媒体を追加します 。
- は、閉じたドア上に見えるバッグの約 2 cm を残してホモジナイザー ミキサーに袋を配置します。細胞解離が高速で 2.5 分間行われます
。 注:また、これは袋を閉じ、そっとボンネットのビーカーでドキドキで行うことができます。摩擦を避けるためにバッグとビーカーの間に布を使用してください 。
- 数 60 メッシュのふるいに細胞懸濁液を注ぐし、重力によってフィルタ リングできるように、数 100 ふるいにフィルター処理された流れを注ぐ 。
- 使用して 15 mL チューブ、200 x g で 5 分間臨床遠心分離機 (できればスイング バケツの回転子) の細胞懸濁液を遠心分離
- 、ビーカーに上澄みを離れて注ぎ、血清ピペットを使用して、再度中断し、メディアの 5 mL の最大の細胞のペレットを切り離して考える 。
- セルカウント
- 、マイクロ ピペットで 1.5 mL 遠心チューブに細胞懸濁液を 100 μ l 添加を収集し、トリパン ブルー色素を 100 μ l 添加します 。
- 、検定で収集された懸濁液の 10 μ L を挿入し、正方形の 4 つのコーナーで実行可能なすべてのセルをカウントします 。
- 、フラスコを準備する前に細胞の密度を計算するための式が:
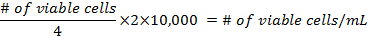
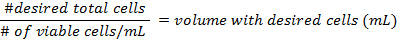
- 25 cm 2 フラスコあたり少なくとも 500,000 のセルを追加します。各フラスコに DMEM に 5 mL のピペットします。混合物、フラスコの首に到達しないでください。3 日間、5% CO 2、 37 ° C の定温器でそれらを配置し、メディアを変更しています 。
- アストロ サイト浄化技術: メディアは、機械的・化学的戦略を変更
注: アストロ サイトの代謝率は、他の細胞型と比較して高い、したがって、栄養これらの細胞は数日後の生存率が低の表示を条件に奪われました。異なり、アストロ サイト、ミクログリアは栄養状態の影響を受けません、 18 などの環境では増殖します。ミクログリア細胞の数が減少を維持するために著者らはグリア細胞の培養基を 3 日ごとに変更します。携帯メディアのこの変化はフラスコ 19 でアストロ サイトの細胞膜上に成長することができますミクログリア人口も減る。- 使用、パスツール ピペット、フラスコのそれぞれから非付着性ミクログリア細胞とメディアを吸引します。洗浄滴下方法 (5 mL/フラスコ) でそれぞれ、フラスコに滅菌フィルター PBS を使用する置き去りにエアダスター 。
- は、各フラスコ (5 mL/フラスコ) に滴下 (抗生物質, 胎仔ウシ血清) で無菌ろ過 DMEM を追加します。全体の表面をカバーする円形の動きで振といます 。
- 、37 場所細胞・# 176;8-10 日間、フラスコの confluency に達するまで 5% CO 2 で C の定温器 (> 95% プレート カバー).
注:いくつかのプロトコルは、アストロ サイトの confluency に到達、2 から 24 h への文化の揺れなどの機械的方法これらアストロ サイト、ミクログリアと前駆体主の上に細胞をある細胞の剥離につながることが示されている 19 , 20 。
- 非アストロ サイト細胞は、30 分間 180 rpm で軌道振動を実行することで文化が狭められます。上清にセルを削除した後新鮮なメディアはフラスコ (〜 15 mL) に戻します 。 オリゴデンドロ サイト前駆細胞を排除する
- 6 h 21 , 22 , 23、培養上清吸引ピペット新鮮なメディアに 200 rpm の振動速度が向上します
。 注:文化におけるミクログリアの存在を減少するは、2 つの化学的方法は順次に使用できます (同時には) 一次電池文化の方法論: アラビノース シトシン (ARA-C) と L-ロイシン メチル エステル (LME) 24. - とき細胞密度 (100%) に達すると、すぐにミクログリア、機械的除去後 3-4 日これらの細胞扱うことができる体複合アラビノース シトシン (ARA-C) 8 μ m DMEM で 5 日間 (DMEM で新鮮なアラ C に毎日の変更) します
。 注:この化合物は体医薬品、ミクログリア 19 , 25 と線維芽細胞のような急速に分裂細胞の数が減少するので、Ara C を追加する時点が重要です 26.ミクログリアと対照をなして合流、アストロ サイトを停止する接触阻止 27 を介して増殖します 。
- Ara C 治療から回復する細胞の 2 日を許可します 。 セルの confluency に到達後さらにミクログリアの汚染を減らすために
- DMEM ph 7.4 では、37 ° C で 1 時間固定の L-ロイシン メチルエステル (LME) の 50 mM を使用しています
。 注:LME は細胞や細胞小器官の膜を交差させるし、加水分解されて後生産 L-ロイシンこれらの細胞のライソゾームに蓄積します。このアミノ酸の蓄積は、浸透圧の腫れとリソソーム 28 , 29 の破断につながります。LME は他細胞 20 , 30 と比較して、ミクログリアを排除することで非常に効果的です 。
4。6 ウェル プレートにおけるアストロ サイトの育成
- とポリ-D-リジン コーティング coverslips
- 各 35 mm ペトリ皿に、その後、入れて 1 つ coverslip 各 coverslip に希釈したポリ-D-リジン溶液を 100 μ l 添加して 1 h.
- ポリ-D-リジンを削除し、2 mL の滅菌水で 2 回洗浄します 。
- は、水分を取り除き、乾燥フード内側に coverslips を待ちます。2 週間の-20 ° C で coverslips を格納します
。 注:ポリ-D-リジン薄めたを凍結します。2 週間保存することができます 。
- Trypsinization
- 、フラスコから培地を吸引パスツール ピペットを使用しています。セルを優しく洗浄するフィルター滅菌 PBS の 5 mL/フラスコを追加します 。
- 吸引は、PBS をオフし、無菌ろ過 0.25% トリプシンと 0.5 mM EDTA 溶液の 5 mL/フラスコを追加します。37 ° C、10 分間 5% CO 2 インキュベーターにフラスコを置き
注:細胞は培養しながら暖かい 37 で新鮮な完全な DMEM の 5 mL/フラスコ ° C
培養、 - 後 10 分はすべての細胞がフラスコを持ち上げられるかどうかを確認する揺り動かしなさい。トリプシンを中和するために、各フラスコに温かみのある完全な DMEM の 5 mL をすばやく追加します 。
- ゆっくりピペットを上下に数回いずれかを分割するセル " 塊 "。15 mL コニカル遠心管に 2 つのフラスコから浮遊細胞を転送します 。
- 200 x で 5 分間遠心する g 細胞ペレットを収集します。500 μ L の中でペレットを再停止し、フラスコにセルを配置する進みます
。 注:細胞を可能にする解析の例: 1) 逆転写ポリメラーゼ連鎖反応 (RT-PCR) 遺伝子発現を分析するにはタンパク質の発現を評価する 2) 西部のしみ3) 流フローサイトメトリー解析神経前駆細胞の数および興味の蛋白質を定量化するには4) タンパク質の発現および局在を解析する蛍光します 。
- シード アストロ サイト
- トリプシン プライマリ アストロ サイトの治療後 (4.2 を参照)、1.5 mL 遠心チューブに細胞懸濁液 100 μ L を収集し、0.5% トリパン ブルーの 100 μ L を追加します 。
- トリパンで収集された懸濁液の追加 10 μ L ブルーの検定とは実行可能なすべてのセルをカウントします 。
- ステップ 3.3 で、フラスコを準備する前に細胞の密度を計算する式を使用します 。 滅菌のいずれかを追加することによって
- 準備マルチも料理、ポリ-D-リジン コーティングを各ウェル coverslip。50,000 の細胞をピペットし、新鮮な媒体 (約 2 mL) 各ウェルの皿にボリュームの残りの部分を入力します 。
- ウェル料理 5% CO 2 で 37 ° C の定温器に置き、5-7 日後アストロ サイトが成長し、coverslips の全体の表面をカバーします 。
5。プライマリ アストロ サイトの OGD プロトコル
- OGD 中準備
- サプリメント ダルベッコ ' s 変更イーグル ' s 中無料グルコース 1% 炭酸水素ナトリウム 3.7 g/L とペニシリン/ストレプトマイシン。表 4 の資料を参照してください 。
- は 95% N 2/5% をバブリングによってグルコース無料培地 20 mL をパージで 15 リットル/分 (流量計で示される) 媒体のガスシステムに血清ピペットを挿入することによっての流れ 10 分の CO 2
。 注:酸素の媒体をパージ後 7.4 (ステップ 2.1 に関する注意を参照) で pH を調整します 。
- 50 mL チューブ フィルター システムを使用してパージされた、ブドウ糖自由な媒体にフィルターを適用します
。 注:バブル 95% N 2/5% すべての実験のための新鮮な OGD 媒体 CO 2 セルが削除されるの酸素環境にさらされていることを確保するため、使用する前にします 。
- 実験
- ティッシュ文化フードの中から事前に準備された coverslips (ステップ 4.3.5 を参照) アストロ サイト メディアを削除セルの任意のグルコースを削除する 2 回携帯電話の PBS で洗浄し 。
- OGD メディアの追加 2 mLそれぞれによくし、低酸素チャンバー内にその蓋オフ内マルチよく料理を配置
- はガスの混合物を入口バルブに接続し、出口バルブを開いたままにしておきます。95% N 2/5% 混合ガスをチャンバーをフラッシュ CO 2、5 分の 15 L/分
- ガスの流れを停止し、最初出口弁のクランプを閉じて、ガス入口バルブ チューブのクランプを閉じます
。 注:石鹸水でチャンバーのシールを覆うことによってガスの漏れがないことを確認します。場合はシールが安全で、泡を形成ない 。
- 37 ° c 1 h や 6 h OGD 細胞文化定温器に全体の部屋を配置します 。
- インキュベーション時間が終わった後、OGD メディアを吸引し、慎重にピペット 2 mL 各 4.67 cm 2 平地のためによくする完全な DMEM の処理 24 時間
6。プライマリのアストロ サイト, 蛍光抗体法の準備のためのプロトコル
注: アストロ サイトの純度を評価するために異なる脳細胞型ではオリゴデンドロ サイト、ミクログリア、ニューロンを検出できるよう別のセル マーカーを用いた蛍光抗体法。Propidium ヨウ化 (PI)、PCNA、増殖マーカーは、培養条件によって続いて OGD にさらされる主なアストロ サイトで使用できます。材料表 の材料を参照してください
。- 蛍光抗体作製
注: これは一般的な蛍光プロトコル、最適な信号 (例えば、長い潜伏期間を達成するためにマイナーな修正を行うことが孵化の温度)。表 1 の各マーカーは、メーカーによると使用できる ' s プロトコル。- 細胞の生存率を評価する
- 細胞は、37 ° C で 5 分間インキュベートすることができます (完全な DMEM で 5 μ M) を π し、PI の染色を示す 5 分セルはより少なく実行可能に 2 mL の PBS で 2 回洗って
。 注:5.2.6 の手順で扱われるセル使用します 。
まあ、PI 染色した後セルを修正する - は、4 ° C で 20 分 4% ホルマリン 4.67 cm 2 当たり 2 mL を追加します。PCNA の付いたサンプル、最寄りの定着液は 4 ° C で 10 分のメタノール
。 注意:ホルマリン、メタノールは有毒な
。 注:常に各企業から特定の抗体のプロトコルを確認します 。
- 5 分の 2 mL の PBS のセルを洗浄し、この手順を 3 回繰り返します 。
- ソリューションをブロック内のセルを孵化させなさい (10% 0.5% 非イオン性界面活性剤 PBS で FBS) 穏やかな揺れで室温で 30 分間 。
- 5 分の 2 mL の PBS のセルを洗浄、洗浄を 3 回繰り返します 。
- 1% 溶液で一次抗体 (PCNA, GFAP) と, 4 ° C、一晩 (16 h) で PBS で FBS 。
- 一次抗体ソリューションを削除、5 分の 2 mL の PBS のセルを洗浄して、この手順を 3 回繰り返します 。
- 1% の溶液中の蛍光体の共役二次抗体と加温 pbs は、室温での 1 h の FBS 。
- は、5 分の 2 mL の PBS のセルを洗浄して、この手順を 3 回繰り返します。DAPI の 1 μ g/mL を追加 (4 '、6 ' - diamidino - 2-phenylindole) 細胞核を染色する 5 分 。
- 2 ml の PBS 5 分のセルを洗浄、この手順を 2 回繰り返し、PBS で維持します 。
- メディアをマウントを使用して顕微鏡のスライドの coverslips を準備します 。
- 細胞は、37 ° C で 5 分間インキュベートすることができます (完全な DMEM で 5 μ M) を π し、PI の染色を示す 5 分セルはより少なく実行可能に 2 mL の PBS で 2 回洗って
- 共焦点顕微鏡
- 顕微鏡を設定したら、coverslip 側に置きなさい顕微鏡ステージ 。
- レーザー ビーム GFAP Cy3 共役抗体 543nm を選択、ソフトウェアを使用しています 。
7。セル実行可能性の試金
- Trypsinize 4.3 や 4.4 以下の手順でアストロ サイトの定量化と 。
- 1 x 10 の 4 細胞/ウェルを 96 ウェルのプレートに追加し、confluency に育てて 。
- ステップ 5 から方法論を使用して、公開培養 96 ウェル プレートいずれかの平地 1 h の OGD または 6 h OGD 。
- 後 OGD 治療平地メディアが 24 h のすべてのセルに追加され、MTT 試薬法を用いて生存率 (メーカーとしてを使用して、' の指示を示します).
- 5 mg/mL の MTT 溶液から総量の 10% を各ウェルに追加し、MTT の試薬と 37 ° C で 3 時間インキュベートします 。
- は、メディアを取り出し、200 μ L ジメチルスルホキシドを使用して結晶を再懸濁します。570 で分光光度計でプレートを読む nm
。 注:少ない可能性に関連するコントロールのセルを基準にして吸光度が低下 。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
培養アストロ サイトの主な懸念の 1 つは、ニューロン、オリゴデンドロ サイト、線維芽細胞、ミクログリアなど他の細胞の存在です。図 1、ラット皮質から隔離されたセルごとに 3 日間メディアの変更があったし、か未処理または処理追加 LME 1, 24 時間後の細胞 GFAP の immunostained, DAPI で counterstained。未処理の細胞は、LME 処理細胞を示した 8% 陽性細胞 39% 非 GFAP の平均を示した。これらの結果は、どのように LME 治療とメディアは 4.75 倍、濃縮アストロ文化生産によって効果的に減らされた非 GFAP 陽性細胞を変更を示します。1 h や 6 h の OGD がこの方法論後アストロ サイトの生存率を与える影響かどうかは、図 2は、アストロ サイト文化、侮辱後 24 h の MTT の試金を示しています。二回とも使用できるアストロ サイトの反応性を研究する表示の状態で生存率に有意差が見つか...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
このプロトコルでは、ラット皮質アストロ サイトの分離について説明します。このメソッドは、線維芽細胞、オリゴデンドロ サイト、ミクログリアなど他の細胞の種類と汚染を減らすために重要です。ミクログリアの数を減らすためには、いくつかの手順を取ることができる: メディア、揺れ、軌道と化学治療を変更します。選択的細胞マーカーを用いた蛍光抗体法によって、最も顕著な細胞汚染物質文化の純度を確認すると、実験を実行できます。例えば、イオン化カルシウム結合アダプター分子 1 (Iba-1) に対する抗体は、ミクログリアを検出する使用できます。神経細胞死は文化初期段階から始まりますとこれらの細胞がフラスコめねじオリゴデンドロ サイト前駆細胞 (Opc) と共に除去してメディア変更 3 日目31。Oligodendrocytic の前駆細胞は、olig2 など NG2 抗体を使用して識別できます。GalC は未熟か成熟オリゴデンドロ サイトを識別するために使用することができますが、この文化段階でこれらで発見される可能性はありません。または、非 GFAP 陽性細胞を定量化することができ、汚染物質を推定できます。この...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者が明らかに何もありません。
謝辞
著者のテクニカル サポート パオラ ・ ロペス Pieraldi を感謝したいです。A.H.M. は助成金 8G12MD007600 と U54 NS083924 このパブリケーションをサポートに感謝しています。NIH NIMHD-G12 MD007583 助成施設支援に感謝いたします。D.E.R.A. は、NIHNIGMS R25GM110513 によって提供される交わりに感謝しています。共通の計測領域の使用のため感謝しております、博士プリシラ サナブリアの RCMI プログラムでの光イメージング施設の使用のための援助を与える G12MD007583。さらに、私たちは撮影・編集視覚的プロトコルの彼の顕著な役割のホセパディーヤを感謝したいと思います。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 手術用器具 - ステップ1 | |||
| 手術用ハサミ5.5インチ | Roboz Company | RS-6812 | ネズミの首を切るために使用されるツール。 |
| 湾曲した鉗子7インチ | Roboz Company | RS-5271 | 頭蓋骨を取り外した状態でラットの皮膚を保持します。 |
| マイクロ解剖ハサミ4インチ | Roboz Company | RS-5882 | ラットの皮膚と頭蓋骨の両方を切断します。 |
| マイクロ解剖鉗子4 "角度付き、細かいシャープ | ロボズ社 | RS-5095 | 頭蓋骨を取り外した状態でラットの皮膚を保持します。 |
| マイクロ解剖鉗子 4インチ わずかに湾曲した 0.8 | Roboz Company | RS-5135 | 皮質を分離するために使用されるツール。 |
| マイクロ解剖ピンセット | Roboz Company | RS-4972 | 脳の髄膜を剥がします。 |
| 解剖顕微鏡 | オリンパス | SZX16 | 皮質から髄膜を除去するために重要です。 |
| DMEMの準備 - ステップ2 | |||
| ダルベッコ'のモディファイドイーグル」s Medium (DMEM) | GibCo.会社 | 11995-065 | 細胞の成長をサポートします。 |
| 重炭酸ナトリウム | Sigma-Aldrich Company | S7277 | 細胞培養培地用サプリメント。 |
| ウシ胎児血清(FBS) | GibCo.会社 | 10437-010 | 細胞培養用の血清サプリメント。 |
| ペニシリン-ストレプトマイシン | ギブコ。会社 | 15140-148 | 細胞培養中の細菌の増殖を阻害します。 |
| 0.22umの細孔を持つフィルターシステム 1L | コーニング | 431098 | |
| アストロサイト培養 - ステップ 3 | |||
| Serological ピペット 5mL | VWR | 89130-896 | DMEMを細胞の入った容器にピペットで移します。 |
| 血清ピペット 10mL | VWR | 89130-898 | DMEMを細胞の入った容器にピペットで |
| 血清ピペット 25mL | VWR | 89130-900 | DMEMを細胞の入った容器にピペットで |
| 遠心分離機の円錐管15mL | サンタクルスバイオテクノロジーsc-200250 | ||
| セーフロックチューブ1.5mL | エッペンドルフ | 022363204 | |
| バリアチップ200 uL | サンタクルス | バイオテクノロジーsc-201725 | |
| バリアチップ1mL | サンタクルーズ | バイオテクノロジーsc-201727 | |
| バイオハザードオレンジバッグ 14 x 19インチ | VWR | 14220-048 | |
| 60mmのペトリ皿 | の鷹の | 351007 | |
| の生殖不能のガーゼのパッド | Honeywell社の安全 | 89133-086 | |
| Stomacher 80 Biomaster | のSewarの実験室システム | 030010019 | 脳のティッシュを三面的に。 |
| ストマッカー80ブレンダー滅菌バッグ | セワールラボシステム | BA6040 | ストマッカーセルホモジナイザー用滅菌バッグ。 |
| ビーカー 400mL | パイレックス | 1000 | |
| 滅菌細胞解離ふるい、メッシュ #60 | Sigma-Aldrich Company | S1020 | 均一な単一細胞懸濁液を得るため。 |
| 滅菌細胞解離ふるい、メッシュ#100 | Sigma-Aldrich Company | S3895 | 均一な単一細胞懸濁液を得るため。 |
| 反転相顕微鏡 | ニコン | エクリプス Ti-S | 細胞の汚染や異常な細胞増殖を確認します。 |
| 75cm2 滅菌フラスコ | ファルコン | 353136 | |
| マルチウェルプレート | ファルコン | 353046 | |
| マイクロカバーグラス(カバースリップ)、18mm、丸型 | VWR | 48380-046 | |
| ブライトライン血球計算計 | シグマ・アルドリッチ社 | Z359629 | |
| パスツールピペット | フィッシャー・サイエンティフィック | 13-678-20D | |
| エチルアルコール | シグマ・アルドリッチ社 | E7023 | |
| L-ロイシンメチルエステル塩酸塩 98% (LME) | シグマ・アルドリッチ社 | L1002 | 初代皮質アストロサイト培養におけるミクログリア細胞の排除を促進します。 |
| シトシン &β;-D-アラビノフラノシド (Ara-C) | Sigma-Aldrich Company | C1768 | |
| Poly-D-Lysine Hydrobromide, mol wt 70,000-150,000 | Sigma-Aldrich Company | P0899 | |
| Trypsin/EDTA | GibCo.会社 | 15400-054 | |
| トリパン ブルー | シグマ-アルドリッチ カンパニー | T8154 | |
| リン酸緩衝生理食塩水 (PBS) 錠剤 | カルバイオケム | 524650 | |
| 滅菌水 | シグマ-アルドリッチ カンパニー | W3500 | |
| OGD培地調製 - ステップ5 | |||
| 遠心分離機コニカルチューブ50mL | VWR | 89039-658 | |
| ダルベッコ'修正されたイーグル」中性血糖 | Sigma-Aldrich Company | D5030 | 細胞の成長をサポートします。 |
| 重炭酸ナトリウム | Sigma-Aldrich Company | S7277 | 細胞培養培地用サプリメント。 |
| ペニシリン-ストレプトマイシン | ギブコ。会社 | 15140-148 | 細胞培養中の細菌の増殖を阻害します。 |
| 200mM L-グルタミン | ギブコ。会社 | 25030-081 | 細胞の成長を補うアミノ酸。 |
| ホスパヘット緩衝生理食塩水(PBS)錠剤 | Calbiochem | 524650 | |
| フィルターシステム 50mL 0.22um 細孔付き | Corning | 430320 | |
| 遠心分離機コニカルチューブ 50 mL | VWR | 89039-658 | |
| シングルフローメーター | Billups-Rothenberg | SMF3001 | 酸素パージにおけるガス流量を測定します。 |
| 低酸素インキュベーターチャンバー | StemCell | 27310 | 細胞培養のための低酸素環境を生成します。 |
| トレーサブルな溶存酸素計 | VWR | 21800-022 | |
| 95% N2/5% CO2ガス混合物 | リンデ | 酸素の環境をパージします。 | |
| primary astrocyte immunofluorescence - step 6 | |||
| Phosphate buffer saline (PBS) tablets | Calbiochem | 524650 | |
| Formaline Solution Neutral Buffer 10% | Sigma-Aldrich | HT501128 | 細胞の固定に使用される溶液。 |
| メタノール | フィ | ッシャーA4544 | 溶液は細胞を固定するために使用されます。 |
| 非イオン性界面活性剤 (Triton X-100) | Sigma-Aldrich | T8787 | |
| ウシ胎児血清 (FBS) | GibCo.会社 | 10437-010 | 細胞培養用の血清サプリメント。 |
| Anti-NeuN | Cell Signaling | 24307 | 成熟ニューロンを検出し、アストロサイト培養の検証に役立ちます。 |
| Anti-PCNA | Cell Signaling | 2586 | 増殖する細胞を検出します。 |
| ヨウ化プロピジウム(PI) | Sigma-Aldrich Company | P4170 | アポトーシス染色。 |
| Anti-Olig1 | Abcam | AB68105 | 成熟したオリゴデンドロサイトを検出します。 |
| アンチイバ1+ | ワコー | 016-20001 | ミクログリア細胞を検出します。 |
| Cy3と結合した抗GFAP | Sigma-Aldrich Company | C9205 | 処理した細胞内の反応性アストロサイトを検出します。 |
| Alexa Fluor 488 | Molecular Probe Life Technology | A1101 | 抗マウス二次抗体。 |
| Alexa Fluor 555 | Molecular Probe Life Technology | A21428 | 抗ウサギ二次抗体。 |
| 4',6'-ジアミジノ-2-フェニルインドール (DAPI) | Sigma-Aldrich Company | D9542 | 核染色. |
| 共焦点顕微鏡 | オリンパス |
参考文献
- Goldstein, L. B., Bertels, C., Davis, J. N. Interrater reliability of the NIH stroke scale. Arch Neurol. 46 (6), 660-662 (1989).
- Hinkle, J. L., Guanci, M. M. Acute ischemic stroke review. J Neurosci Nurs. 39 (5), 285-293 (2007).
- Kassner, A., Merali, Z. Assessment of Blood-Brain Barrier Disruption in Stroke. Stroke. 46 (11), 3310-3315 (2015).
- Moskowitz, M. A., Lo, E. H., Iadecola, C. The science of stroke: mechanisms in search of treatments. Neuron. 67 (2), 181-198 (2010).
- Ben Haim, L., Carrillo-de Sauvage, M. A., Ceyzeriat, K., Escartin, C. Elusive roles for reactive astrocytes in neurodegenerative diseases. Front Cell Neurosci. 9, 278(2015).
- Broderick, J., et al. Guidelines for the Management of Spontaneous Intracerebral Hemorrhage in Adults 2007 Update: A Guideline From the American Heart Association/American Stroke Association Stroke Council, High Blood Pressure Research Council, and the Quality of Care and Outcomes in Research Interdisciplinary Working Group: The American Academy of Neurology affirms the value of this guideline as an educational tool for neurologists. Stroke. 38 (6), 2001-2023 (2007).
- Wang, R., et al. Oxygen-glucose deprivation induced glial scar-like change in astrocytes. PLoS One. 7 (5), e37574(2012).
- Sofroniew, M. V. Reactive astrocytes in neural repair and protection. The Neuroscientist. 11 (5), 400-407 (2005).
- Sofroniew, M. V., Vinters, H. V. Astrocytes: biology and pathology. Acta neuropathologica. 119 (1), 7-35 (2010).
- Souza, D. G., Bellaver, B., Souza, D. O., Quincozes-Santos, A. Characterization of adult rat astrocyte cultures. PLoS One. 8 (3), e60282(2013).
- Puschmann, T. B., et al. HB-EGF affects astrocyte morphology, proliferation, differentiation, and the expression of intermediate filament proteins. J Neurochem. 128 (6), 878-889 (2014).
- Robinson, C., Apgar, C., Shapiro, L. A. Astrocyte Hypertrophy Contributes to Aberrant Neurogenesis after Traumatic Brain Injury. Neural Plast. , 1347987(2016).
- Brekke, E., Berger, H. R., Wideroe, M., Sonnewald, U., Morken, T. S. Glucose and Intermediary Metabolism and Astrocyte-Neuron Interactions Following Neonatal Hypoxia-Ischemia in Rat. Neurochem Res. , (2016).
- Cekanaviciute, E., et al. Astrocytic transforming growth factor-beta signaling reduces subacute neuroinflammation after stroke in mice. Glia. 62 (8), 1227-1240 (2014).
- Zhu, Z., et al. Inhibiting cell cycle progression reduces reactive astrogliosis initiated by scratch injury in vitro and by cerebral ischemia in vivo. Glia. 55 (5), 546-558 (2007).
- Bovolenta, P., Wandosell, F., Nieto-Sampedro, M. Neurite outgrowth over resting and reactive astrocytes. Restor Neurol Neurosci. 2 (4), 221-228 (1991).
- Anderson, M. A., et al. Astrocyte scar formation aids central nervous system axon regeneration. Nature. 532 (7598), 195-200 (2016).
- Hao, C., Richardson, A., Fedoroff, S. Macrophage-like cells originate from neuroepithelium in culture: characterization and properties of the macrophage-like cells. Int J Dev Neurosci. 9 (1), 1-14 (1991).
- Saura, J. Microglial cells in astroglial cultures: a cautionary note. J Neuroinflammation. 4, 26(2007).
- Giulian, D., Baker, T. J. Characterization of ameboid microglia isolated from developing mammalian brain. J Neurosci. 6 (8), 2163-2178 (1986).
- Schildge, S., Bohrer, C., Beck, K., Schachtrup, C. Isolation and culture of mouse cortical astrocytes. J Vis Exp. (71), (2013).
- Armstrong, R. C. Isolation and characterization of immature oligodendrocyte lineage cells. Methods. 16 (3), 282-292 (1998).
- McCarthy, K. D., de Vellis, J. Preparation of separate astroglial and oligodendroglial cell cultures from rat cerebral tissue. J Cell Biol. 85 (3), 890-902 (1980).
- Pont-Lezica, L., Colasse, S., Bessis, A. Depletion of microglia from primary cellular cultures. Methods Mol Biol. 1041, 55-61 (2013).
- Svensson, M., Aldskogius, H. Synaptic density of axotomized hypoglossal motorneurons following pharmacological blockade of the microglial cell proliferation. Exp Neurol. 120 (1), 123-131 (1993).
- Wong, V. K., Shapourifar-Tehrani, S., Kitada, S., Choo, P. H., Lee, D. A. Inhibition of rabbit ocular fibroblast proliferation by 5-fluorouracil and cytosine arabinoside. J Ocul Pharmacol. 7 (1), 27-39 (1991).
- Nakatsuji, Y., Miller, R. H. Density dependent modulation of cell cycle protein expression in astrocytes. J Neurosci Res. 66 (3), 487-496 (2001).
- Reeves, J. P. Accumulation of amino acids by lysosomes incubated with amino acid methyl esters. J Biol Chem. 254 (18), 8914-8921 (1979).
- Thiele, D. L., Kurosaka, M., Lipsky, P. E. Phenotype of the accessory cell necessary for mitogen-stimulated T and B cell responses in human peripheral blood: delineation by its sensitivity to the lysosomotropic agent, L-leucine methyl ester. J Immunol. 131 (5), 2282-2290 (1983).
- Hamby, M. E., Uliasz, T. F., Hewett, S. J., Hewett, J. A. Characterization of an improved procedure for the removal of microglia from confluent monolayers of primary astrocytes. J Neurosci Methods. 150 (1), 128-137 (2006).
- Corvalan, V., Cole, R., de Vellis, J., Hagiwara, S. Neuronal modulation of calcium channel activity in cultured rat astrocytes. Proc Natl Acad Sci U S A. 87 (11), 4345-4348 (1990).
- Butler, I. B., Schoonen, M. A., Rickard, D. T. Removal of dissolved oxygen from water: A comparison of four common techniques. Talanta. 41 (2), 211-215 (1994).
- Tasca, C. I., Dal-Cim, T., Cimarosti, H. In vitro oxygen-glucose deprivation to study ischemic cell death. Methods Mol Biol. 1254, 197-210 (2015).
- Wu, D., Yotnda, P. Induction and testing of hypoxia in cell culture. J Vis Exp. (54), (2011).
- Rivera-Aponte, D., et al. Hyperglycemia reduces functional expression of astrocytic Kir4. 1 channels and glial glutamate uptake. Neuroscience. 310, 216-223 (2015).
- Berger, R., Garnier, Y., Pfeiffer, D., Jensen, A. Lipopolysaccharides do not alter metabolic disturbances in hippocampal slices of fetal guinea pigs after oxygen-glucose deprivation. Pediatric research. 48 (4), 531-535 (2000).
- Anderson, T. R., Jarvis, C. R., Biedermann, A. J., Molnar, C., Andrew, R. D. Blocking the anoxic depolarization protects without functional compromise following simulated stroke in cortical brain slices. Journal of neurophysiology. 93 (2), 963-979 (2005).
- Jarvis, C. R., Anderson, T. R., Andrew, R. D. Anoxic depolarization mediates acute damage independent of glutamate in neocortical brain slices. Cerebral Cortex. 11 (3), 249-259 (2001).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
