(HVT) および七面鳥ヘルペス ウイルスは家禽疾病の数に対する遺伝子組換えワクチンの生成のためベクトル プラットフォームとして広く使用されます。統合 NHEJ CRISPR/Cas9 と Cre Lox システムを用いた組換え HVT ベクター ワクチンの生成のシンプルかつ迅速な方法を説明します。
この記事について
サマリー
要約
ヘルペス ウイルス (HVT) の七面鳥は、理想的なウイルスのベクトル (AI) 鳥インフルエンザ、ニューカッスル病 (ND)、伝染性ファブリキウス嚢病 (IBD) などの家禽疾病の数に対する遺伝子組換えワクチンの生成のため細菌人工染色体 (を使用してBAC) 突然変異または従来の組換え方法。クラスター化された定期的に空間回文繰り返し (CRISPR)/Cas9 システムが正常に使用されて多くの設定で遺伝子編集のためいくつかの大規模な DNA ウイルスのゲノムの操作を含みます。迅速かつ効率的な CRISPR/Cas9 を介したゲノム編集を生成するパイプライン組換え HVT を開発しました。このメソッドの潜在的な使用を最大にするには、提案はここで IBDV の VP2 蛋白を発現する組換え HVT の生成の方法論に関する詳細情報VP2 式カセットが挿入されます、HVT ゲノム経由(非相同性末端結合)、NHEJ に-依存修復経路。緑色蛍光タンパク質 (GFP) 発現カセットを簡単に視覚化挿入はまず接続を介してCre LoxP システムを削除し、.このアプローチでは、HVT ゲノム遺伝子組換えワクチンの急速な発展のために他のウイルス抗原を導入する効率的な方法を提供しています。
概要
マレック病 (MD) は、アルファヘルペスウイルス亜科のMardivirus属の血清型 1 (鶏伝染性喉頭ヘルペス ウイルス 2 [GAHV-2]) による鶏のリンパ増殖性疾患です。Mardivirusには 2 つの非病原性の血清型も含まれています: 2 (GaHV 3) 血清型し、血清型 3 (MeHV-1、HVT として歴史的に知られている) メリーランド州に対するワクチンとして使用されています。HVT ワクチン (FC 126 株) は、1970 年代初めに使用されるワクチンの最初の世代はまだ広く使用されている 2価および多価ワクチン製剤メリーランド州に対する強化された保護を提供するためにHVT はその汎用性と両方で ovo皮下孵化場管理と終生の免除を提供する機能のための安全のための家禽疾病の数に対する保護を誘導するワクチンのベクトルとしても広く使用されます。遺伝子組換えの HVT ワクチンを生成するための戦略は、ウイルス感染細胞、重なり合うコスミド Dna、または BAC 変異2いずれかの従来の相同組換えに基づいています。ただし、これらのメソッドは、一般的に時間のかかり、労働集約的で転送ベクトルの建設、大腸菌、プラーク精製ウイルスのゲノムの維持と BAC 順序と選択の除去を必要とします。編集済みウイルス3,4からのマーカー。
編集ツール、その多様性と特異性は近年最も人気のある遺伝子は、CRISPR/関連付けられている (Cas9)。CRISPR/Cas9 システムとして遺伝子組み換え細胞と動物モデル5,6,7,8,9,10の効率的な生成で正常に使用されていますいくつか大きな DNA ウイルスのゲノム11,12,13,14,15,16,17、操作と同様 18,19,20。HVT ゲノム21を編集する CRISPR/Cas9 システムを使用してシンプルかつ効率的な方法を報告した後組換え HVT22の迅速かつ効率的な世代のパイプラインを開発しました。
このメソッドの潜在的なアプリケーションを拡張するために世代組換え HVT ワクチン UL45/46 座本報告では, IBDV の VP2 遺伝子の詳細な方法論について述べる。アプローチを組み合わせた NHEJ CRISPR/Cas9 GFP レポーター遺伝子と GFP 発現カセットを後で削除する Cre LoxP システムが付いた VP2 遺伝子を挿入します。BAC ジーン テクニックと伝統的な組み替えに比べると、NHEJ CRISPR/Cas9 一緒に Cre Lox システムが組換え HVT ワクチンを生成するための迅速かつ効率的なアプローチであることを示します。
プロトコル
1. Cas9/gRNA 式とドナーを構築の準備
-
Cas9/gRNA 発現プラスミドの建設
- HVT、22を前述の UL45 と UL46 遺伝子のコード領域をターゲット gRNA シーケンスを設計します。HVT のゲノムの任意の潜在的なオフのターゲット シーケンスを排除する HVT ゲノムに対してガイド RNA ターゲット シーケンスに合わせます。合成し、UL45/46 地域と pX459 V222を前述のように公開されているデータ23から sg のシーケンスをターゲット gRNA シーケンスを複製します。サンガー U6 Fwd プライマー24を使用してシーケンス処理によってクローンとして作られた gRNA シーケンスを確認します。
-
ドナー プラスミドの建設
- 取り外し可能な GFP レポーター カセットが付いた VP2 式カセットを含むドナー プラスミドを生成する設計 oligos ドナー F とドナー-R (図 1A 図 3A)、次の要素を含む: sg Aターゲット シーケンス終了、GFP レポーター カセット クローニングおよび切除のための 2 つの LoxP シーケンスの両脇にパーチ サイトと VP2 式カセットのクローニングのための 2 つの SfiI サイトの両方で。
- PGEM T 簡単なベクトルにシーケンスを複製し、GFP と VP2 遺伝子カセットの pGEM sgA-GFP VP222として指定されたドナー プラスミドを生成する結果のベクトルにクローンを作成します。
注: 任意のクローニング ベクトルは、ドナーのプラスミドを構築する使用できます。
-
プラスミッド DNA の準備
- ドナー プラスミドと Cas9/gRNA 発現プラスミド Dna の製造元の指示に従って商業 DNA 抽出キットを使用して準備します。
2. CRISPR/Cas9 を介したノックイン: トランスフェクションと感染症
- トランスフェクション、前日は 5% ウシ胎児血清 (FBS)、10 %tryptose リン酸塩スープ、100 U/mL ペニシリン-ストレプトマイシン、M199 培で 10 日間の古い胚を使用してのトランスフェクション/感染症、ニワトリ胚線維芽細胞 (Cef) を準備し、0.25 μ G/ml fungizone。媒体の 2.5 ml 6 ウェル プレートの各ウェルによくあたり種子 1.3 x 10⁶セルです。
注: CEF 細胞保持する 3 d 4 ° C で - UL45/46-gRNA の 0.5 μ g、0.5 μ g、sg の pGEM sgA GFP vp2 製造元の指示に従って適切なトランスフェクション試薬を用いた 1 μ g と CEF 細胞 (の準備手順 2.1) を transfect します。(5% CO2と 38.5 ° C) でインキュベーターで 12 h のセルを孵化させなさい。
- Cas9/gRNA とドナーのプラスミドの 12 h posttransfection 希釈 HVT ウイルス ストック M199 培地に 1 x 10⁵ pfu/mL にします。Transfected セルの各ウェルに希薄ウイルスの 130 μ L を追加し、ウイルスの同じ量のネガティブ コントロールとして融合細胞の 1 つの井戸を設定します。5% CO2の 38.5 ° C で 3 d を導入した感染細胞を孵化させなさい。共同綱領 (JCoPR) 資金提供者によって承認されたを使用してすべての手順を実行します。
3. 収穫および HVT 組換えウイルスの純化
-
蛍光活性化細胞ソーティング
- よく並べ替えする前に 1 日あたり 2 × 10⁴ CEF 細胞を用いず 2 つの 96 ウェル プレートを準備します。
- トランスフェクション感染 Cef 3 d 感染後を trypsinize します。各ウェルから培地を吸引、リン酸緩衝生理食塩水 (PBS) で細胞シートをすすいでください。Trypsinize 約 5 分 38.5 ° C の定温器で細胞をトリプシン-EDTA 0.05% (0.48 mM) の 1 つの mL を追加します。
- 再懸濁し、FBS の 50 μ L で 1.5 mL 遠心チューブにセルを転送します。200 x gで 5 分間遠心します。
- 1 %1 mL の PBS で細胞を再懸濁します FBS。診断を使用してセル数をカウントし、1 x 10⁶セル/mL にセルの数を調整します。
注: セルは 1-2 時間の氷の上保管できます。 - そのストレーナー キャップを通してチューブを並べ替えポリスチレンにセルを転送します。製造元の指示に従ってセルソーターを用いた Cef とシード 96 ウェル プレートに gfp 単一セルを並べ替えます。5% CO2の 38.5 ° C で 5 d の並べ替えセルを孵化させなさい。
注: 組換えウイルスの 1 つの通路は、あまりにも多くの単一 GFP 発現細胞と独創性でいくつかの GFP 陽性斑がある場合、並べ替えの前に必要かもしれない。
-
組換えウイルスの継
- よく、通路の前に 1 日あたりの 10 の6 CEF 細胞 x 1.3 でシード 6 ウェル プレートを準備します。postsorting、5 d は、蛍光顕微鏡下で 96 ウェルのプレートを確認します。単一 GFP 陽性のプラクを含んでいる井戸をマークします。
注:図 2代表的な GFP 陽性プラークのAを参照してください。 - Trypsinize 3 分トリプシン-EDTA の 50 μ L でもそれぞれの GFP 陽性、培養液を 50 μ l 添加、再懸濁します、Cef を 6 ウェル プレートの 1 つのウェルにセルを転送します。これは組換え HVT の第一世代であります。
- 組換えウイルス 3 d 後の第一世代を収穫、それぞれ凍結媒体含む 10% ウシ胎仔血清 (FCS)、10% ジメチルスルホキシド (DMSO) と 80% 培養培地 1 mL のバイアルを凍結し、液体窒素でウイルスを格納します。
メモ: 収穫時期はウイルスの量と拡散容量によって 2-4 d から異なります。 - 各ウイルスの最初の世代の 1 x 10 の5セルを収集、それらを遠心し、上澄みを廃棄します。DNA の抽出のための-20 ° C でセルを格納します。
- よく、通路の前に 1 日あたりの 10 の6 CEF 細胞 x 1.3 でシード 6 ウェル プレートを準備します。postsorting、5 d は、蛍光顕微鏡下で 96 ウェルのプレートを確認します。単一 GFP 陽性のプラクを含んでいる井戸をマークします。
-
ポリメラーゼ連鎖反応によるゲノム挿入の検出
- DNA の抽出の霜取りし、バッファーをつぶしの 50 μ L でステップ 3.2.4 から細胞ペレットを再懸濁します (トリス-HCl 【 ペーハー 8、10 mM 1 mM EDTA、25 mM の NaCl と 200 μ g/ミリリットル プロティナーゼ K) 30 分の 65 ° C でサンプルを溶解し、、プロテイナーゼ K を不活化する 2 分 95 ° C で、
- 3' 接合プライマー (表 1) を 1 μ L の DNA のサンプルを使用して、ポリメラーゼの連鎖反応 (PCR) を実行します。各サンプルは、氷の上次の 20 μ L 反応混合物の準備: PCR マスター ミックス × 2 (10 μ L)、10 μ M 上流プライマー (0.5 μ L)、10 μ M 下流プライマー (0.5 μ L)、DNA テンプレート (1 μ L)、ヌクレアーゼ フリー水 (8 μ L)。増幅プログラムは: 95 ° C、2 分;95 ° C、30 s、55 ° C、30 s および 40 のための 72 ° C s 35 サイクル1% アガロースゲル電気泳動のための 1 つの井戸に増幅製品の 7 分負荷 2 μ L の 72 ° C。
注:、図 2A 3' ジャンクション PCR の代表的な結果を参照してください。
4. 蛍光レポーター遺伝子を介してCre lox システムの切除
- 組換えウイルスから、GFP 遺伝子を削除するには、CEF 細胞, 製造元の指示に従ってトランスフェクション試薬を用いた用いず 6 ウェル プレートに Cre リコンビナーゼ発現プラスミドの 2 μ g を transfect します。
- 12 h posttransfection、液体窒素から組換えウイルスの 1 つのバイアルを霜取り、優しく再懸濁します、transfected セルの各ウェルに 50 μ L をシード、同じウイルス量と負の制御として 1 つの井戸を設定します。5% CO2の 38.5 ° c で 3 d 間インキュベートします。
5. プラーク精製
-
蛍光活性化細胞ソーティング
- 種子も並べ替える前に 1 日あたり 2 × 10⁴ CEF 細胞 2 つの 96 ウェル プレート。
- 並べ替えに感染した細胞を準備する (ステップ 4) からステップ 3.1 72 h 感染後で説明する手順に従ってください。Cef とシード 96 ウェル プレートに単一の nonfluorescence セルを並べ替えます。
-
組換えウイルスの PCR 確認継
- 5-10 単一 nonfluorescence 斑 postsorting、5 d 3 分 38.5 ° C でトリプシン-EDTA の 50 μ L でそれらを trypsinize し、培地に細胞を再懸濁しますの 50 μ L を追加を選択します。
注:図 2代表的な GFP 負プラークのBを参照してください。 - 第二世代として Cef を用いず 6 ウェル プレートの各ウェルに、細胞の半分を渡します。
- 200 x gで 5 分で各クローンの残りの細胞を遠心分離機、上澄みを廃棄し、50 μ L の DNA の抽出のためのバッファーをつぶしで細胞を再懸濁します。
- 3.3.2 の手順で説明されているように同じ PCR 反応条件で 1 μ L の DNA のテンプレートを使用して PCR 5' 接合プライマー (表 1) を実行します。
注: 5' ジャンクション PCR の代表的な結果を図 2Bを参照してください。 - PCR の結果に基づいて、さらに通路及び検証のための組換え HVT の 3 ~ 5 肯定的なクローンを選択します。
- 5-10 単一 nonfluorescence 斑 postsorting、5 d 3 分 38.5 ° C でトリプシン-EDTA の 50 μ L でそれらを trypsinize し、培地に細胞を再懸濁しますの 50 μ L を追加を選択します。
6 遺伝子組換え HVT の検証
-
間接蛍光抗体法
- HVT はシードで 2.5 x 10 の5 Cef 感染前日 24 ウェル プレートにステップ 5.2 から得られた組換えの第二世代の Cef に感染します。細胞培養培地 48 h 感染後を削除し、セルを修正する PBS で 4% のパラホルムアルデヒドの 500 μ L を追加します。30 分間室温でプレートを孵化させなさい、定着剤を削除し、細胞層 3 を洗って PBS で x。
注: セルは数週間のこのステップで 4 ° C で保存されるかもしれない。 - PBS を削除し、500 μ L を追加 0.1 %15 分洗浄セル セルを permeabilize トリトン X-100 層 PBS の 3 倍。
- 1 h のブロック バッファー (PBS で 5% ウシ血清) を追加して非特異的結合をブロック。
- 一次抗体抗 VP2 モノクローナル抗体ブロッキング バッファーに 1: 200 で HH7 または HVT 感染鶏血清を希釈 200 μ L/ウェルを追加して、1 h. 洗浄セル層 PBS で 3 倍の室温で孵化させなさい。
- 希釈、二次抗体ヤギ抗マウス IgG Alexa 568 またはヤギ抗にわとり IgG アレクサ 488 ブロック バッファーに 1: 200 で、200 μ L/ウェルを追加、1 時間室温で孵化させなさい、3 セルを洗浄して PBS の x。蛍光顕微鏡下でタンパク質の発現を確認してください。
注: は、染色結果代表 VP2 の図 4を参照してください。
- HVT はシードで 2.5 x 10 の5 Cef 感染前日 24 ウェル プレートにステップ 5.2 から得られた組換えの第二世代の Cef に感染します。細胞培養培地 48 h 感染後を削除し、セルを修正する PBS で 4% のパラホルムアルデヒドの 500 μ L を追加します。30 分間室温でプレートを孵化させなさい、定着剤を削除し、細胞層 3 を洗って PBS で x。
-
VP2 遺伝子の塩基配列決定
- 忠実度の高い DNA ポリメラーゼと UL45 F1、UL46 R1 (表 1) 全体の挿入を検出するプライマー UL45 と UL46 遺伝子間領域にわたる DNA シーケンスを増幅します。
- 次の 50 μ L 反応混合物の準備: 10 の 5 μ L x Pfx 反応混合物、1.5 μ 10 μ M 上流と下流のプライマー ミックス、10 mM dNTP ミックスの 1 μ L、50 mM MgSO4の 1 μ L、1 μ L の DNA のテンプレート、Pfx DNA ポリメラーゼの 0.5 μ L、し、ヌクレアーゼ フリー水を 50 μ L に追加。増幅プログラムは: 95 ° C、2 分;95 ° C、15 s、55 ° C、30 s、および 35 サイクル 3 分の 68 の ° C。1% アガロースゲル電気泳動のために PCR の製品のすべてをロードします。
- DNA ゲル精製キットの指示に従って PCR の製品を浄化します。VP2 遺伝子のノックアウトの確認にシーケンス処理会社に 10 μ L の PCR の製品 (30 ng/μ L) を送信します。
7. 組換えウイルスの安定性
- シード 2.6 x 10⁶ CEF 細胞各 T25 フラスコ ウイルス拡大前に、の日に。
- 5.2; から少なくとも 3 つの肯定的なクローンを解凍します。各 T25 フラスコ細胞/ウイルスの 1 つのバイアルを追加します。50% の細胞変性効果が観察されるまで 5% CO2の 38.5 ° C で孵化させなさい。
- 培地; 2 mL のセルを収穫します。次世代の CEF 細胞を用いず新しい T25 フラスコに 50 μ L に感染します。少なくとも 15 世代の組換えウイルスを継を維持します。各世代のウイルス VP2 シーケンスの存在のための PCR、VP2 遺伝子組換えウイルスの安定性を評価するために式の間接蛍光抗体法 (IFA) を分析します。
結果
図 1、どのようにドナー プラスミドは組換え HVT (図 1Bを生成する構築された (図 1A) およびプロシージャを含む組換え HVT ワクチンの生成に使用される戦略を概説します。).蛍光顕微鏡 3 d posttransfection と感染症の下で井戸ノックで遺伝子の野生型プラークに囲まれた 5 ~ 30 GFP 陽性斑を観察できます。3' ジャンクション予想されるサイズ (図 2A、下部パネル) の PCR の製品を表わす PCR によって解析した単一セルの並べ替え (図 2A) 後に得られる精製ウイルス。Cre リコンビナーゼによって GFP レポーターの切除後、以上プラクの 50% は、GFP 発現を失った。単一セルの並べ替えによって GFP 切除 (図 2B) 後精製プラークさらに 5' ジャンクション適切サイズ PCR の製品 (図 2B、下部パネル) を表わす PCR 確認されました。図 3は、両方の接合の結果を配列に PCR の製品を別の色要素を示します。図 4蛋白質の表現は VP2 特異的モノクローナル抗体と抗 HVT 鶏血清 IFA によって確認されました。予想通り、親の HVT 感染細胞汚すことがのみできる HVT 抗血清による (緑)、遺伝子組換え HVT 感染細胞明らかに VP2 遺伝子の発現 (赤) 中。
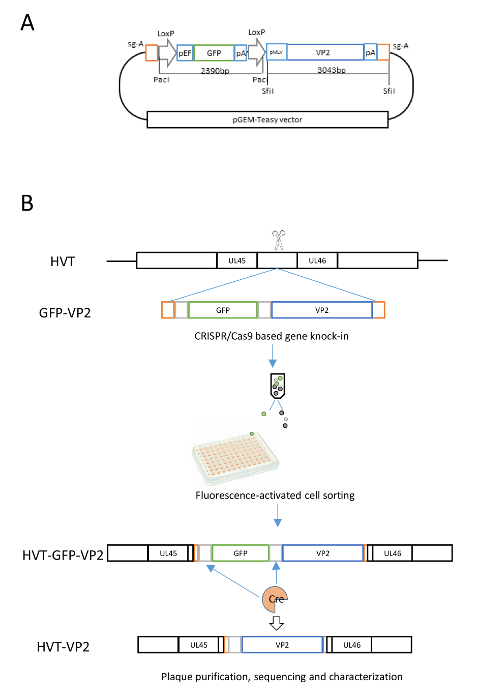
図 1:組換え HVT ベクター ワクチンの生成のための戦略.(A) このパネル プラスミド構築ドナーのクローニング法の概略を示しています。キー要素挿入、GFP の切除に LoxP 配列で挟まれた記者 GFP カセット、VP2 式カセットを解放する 2 つの Cas9 ターゲット サイト (sgA) があります。(B) このパネルは、2 段階遺伝子ノックアウトの戦略の概要を示します。GFP と VP2 式カセットの挿入断片が Cas9/sgA 開裂によって解放され、UL45/46 座にを介してNHEJ CRISPR/Cas9 HVT ゲノムに挿入されました。GFP 陽性組換えウイルスはソートし、単一細胞蛍光活性化セル (FACS) を並べ替えによって浄化します。その後、Cre リコンビナーゼによって GFP レポーター遺伝子を摘出、組換えウイルスの精製および特徴します。この図の拡大版を表示するのにはここをクリックしてください。

図 2: 組換え HVT の検証します。(A) このパネルは蛍光顕微鏡 (上部パネル) と 3' 接合用プライマー VP2 F と UL46 R1 HVT GFP VP2 の PCR 検証の下で GFP 陽性プラーク (HVT-GFP-VP2) を示しています。(B) このパネルは、5' 接合用プライマー UL45 F1 と VP2 R1 と Cre リコンビナーゼと HVT VP2 の PCR 検証を使用してプラーク (HVT VP2) HVT-GFP-VP2 の GFP 切除後の可視化を示します。この図の拡大版を表示するのにはここをクリックしてください。
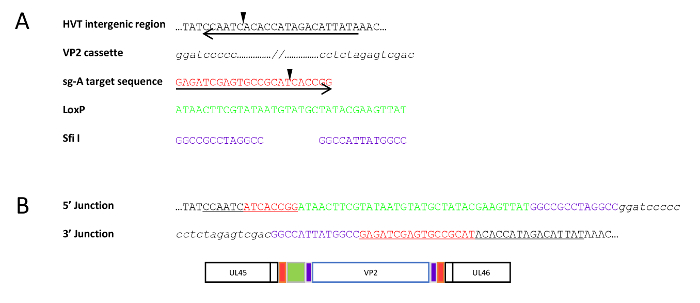
図 3: 組換え HVT ウイルスの塩基配列解析します。(A) このパネル内の異なる色の主な要素のシーケンスが下線付き gRNA ターゲット シーケンスと UL45/46 間 HVT 遺伝子間領域、Cas9 胸の谷間サイトを示す矢印でシーケンスの最後で VP2 式カセット斜体の小文字、青 Cas9 胸の谷間サイト、緑、LoxP サイト シーケンスおよび 2 つの SfiI サイト シーケンスを示す矢印と赤で sg のターゲット シーケンス。(B) このパネルは、シーケンスで対応する色の 5' と 3' の接合、キー要素を持つ HVT VP2 の図式のシーケンスの結果を示します。この図の拡大版を表示するのにはここをクリックしてください。
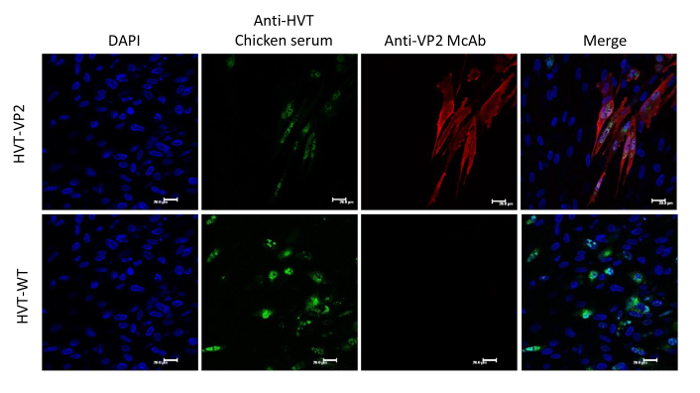
図 4: 組換え HVT VP2 のキャラクタリゼーション。このパネルは、感染させた Cef で VP2 の成功の式の確認間接蛍光抗体法 (IFA) によって反 VP2 モノクローナル抗体 HH7 (赤) です。HVT 感染は、HVT 感染鶏血清 (緑) IFA によって確認されます。スケール バー = 20 μ m.この図の拡大版を表示するのにはここをクリックしてください。
ディスカッション
CRISPR/Cas9 システム遺伝子編集で貴重なツールとなっています。組換え相同組換え13や BAC 変異技術25など、HVT ベクター開発の伝統的な技術は通常、ベクトルのクローンを作成、選択、大規模なスクリーニングのいくつかのラウンドを含むこれは数ヶ月をかかることがあります。ここで Cre Lox システムと単一セルの並べ替えと組み合わせる NHEJ CRISPR/Cas9 ベースの戦略を使用して記述されているプロトコルは、組換えワクチン生成をより便利に、効率的かつ高速なアプローチです。このパイプラインを使用すると、わずか 1 〜 2 週間24、内組換えウイルスを得ることができるし、17蛍光活性化細胞を用いた単一ラウンド分離するプラーク精製工程を削減できます。精製組換え HVT ウイルスを取得する gRNA デザインとドナーの建設から、全体のプロセスは、1 ヶ月以内に実現できます。組換え HVT 発生の成功のための重要なステップに外来遺伝子の挿入、Cas9 のチャンスを最大化する高いトランスフェクション効率の効率的な胸の谷間を確実にウイルスのゲノムの対象高効率 gRNA 選択が含まれて/gRNAs と同じセルを編集するためのドナーと gRNA プラスミドのトランスフェクションと Cas9 と gRNA、ウイルス、細胞になる前に合理的なレベルで表現することを許可するウイルス感染の間 12 時間間隔を満たすためにウイルス。
HVT 組換え世代の制限は、GFP 陽性の同一証明の複雑さのジャンクション PCR によってクローンを作成です。GFP VP2 カセットは、どちらかの向きで挿入でした。PCR はここで説明されているジャンクションは意味向きで挿入の識別のためだけです。アンチセンス向きで挿入の場合記載されているプライマー対を用いた PCR は働かないでしょうとこの目的のために内部のプライマーを交換できます。もう一つの潜在的な問題、ドナー構築のみ使えるです GFP 除去後残りの LoxP シーケンスの同じウイルスが存在するために 1 つの遺伝子の挿入のため Cre 処理による。バリアント LoxP シーケンスで新しいドナー コンストラクトは、複数挿入目的の代わりに使用できます。
NHEJ と HDR (ホモロジー監督修理) Cas926,27によって作成された二本鎖切断 (Dsb) を修復する 2 つの経路であります。NHEJ は細胞周期28日全体にわたって HDR は非効率かつ S と G2 段階6,29,30中にのみ発生したに対しより効率的です。対象となる場所に外来遺伝子を導入するより効率的な NHEJ の修復経路を悪用しました。劈開ドナー シーケンスと、オクターリピート ゲノム DNA の相同性に依存しない柔軟な機械論的プロセス31,32を通じて非対応または破損した DNA 端を結合することによってオクターリピートを導入可能性があります、NHEJ 修復がsgA の胸の谷間のサイトでのみ発生することができます、外国の遺伝子発現カセットを受けません。このアプローチの別の利点は、NHEJ は、クローニングの非常に簡単なステップを作るホモロジー アーム構造の制限から自由では。NHEJ の外国の遺伝子を挿入するためのアプリケーションのための大きな可能性が要求されます。両方で普遍的な gRNA ターゲット サイトの紹介は、外国の遺伝子カセット作るのドナー テンプレートは特定の gRNA 選択のための必要性無しですぐに組み立てることができるより迅速なプロセスを終了します。異なるレポーター遺伝子、外国の遺伝子発現カセット、別のウイルスのベクトルは、この新しいアプローチの優位性を与えると sgA ターゲット サイト、LoxP サイト、およびパーチと SfiI サイトを含むドナー プラスミドのバックボーンが広く共有もできます。カスタマイズ。
本稿でのプロトコルを記述する使用された HVT かくまって VP2 挿入ただし、多価の組換えベクター HVT ワクチンの開発のため必要な対応するシーケンスをターゲット gRNA を使用して HVT ゲノムの異なるゲノム位置よりウイルス遺伝子に挿入する同じ方法を使用できます。SB 1、CVI988、また他鳥 DNA ウイルス、痘ウイルスやアデノ ウイルスなどと鴨腸炎ウイルス、伝染性喉頭気管炎ウイルスを含む他の鳥ヘルペスなど、他の MDV ワクチン株は、同じを使用して設計することができます。多価の組換えワクチン開発へのアプローチ。ここで説明した CRISPR/Cas9 システムのプラットフォームを使用して新しい多価ベクター ワクチンの開発は複数の家禽の病気から守るために養鶏産業にとって非常に有益になります。
開示事項
著者が明らかに何もありません。
謝辞
著者は、共焦点レーザー顕微鏡を助けるため Pippa ホーズをありがとうございます。このプロジェクトは、バイオ テクノロジーによって支えられた・生物科学研究会議 (BBSRC) 掲示板/E/私/00007034 BB/L014262/1。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| M199培地、アールズソルト | ライフサイエンステクノロジー | 11150059 | 細胞培養培地 |
| シ胎児血清 | シグマ | F0926 | 細胞培養培地 |
| ペニシリンおよびストレプトマイシン | ライフサイエンス | 15140148抗生物質 | |
| ファンジゾン | シグマ | 1397-89-3 | 抗真菌 |
| トリプトースリン酸ブロス | シグマ | T8782 | 細胞培養培地 |
| HVT Fc126 株 | 鳥類疾患および腫瘍学研究所 | 野生型 HVT ウイルス | |
| pX459-v2 | Addgene | Plasmid #62988 | Cas9 および gRNA 発現ベクター |
| pGEM-T Easy Vector Systems | promega | A1360 | ドナーベクタークローニング |
| サブクローニング効率 DH5αコンピテントセル | Invitrogen | 18265-017 | 形質転換 |
| PacI | NEB | rR0547S | ドナーベクタークローニング |
| SfiI | NEB | R0123S | ドナーベクタークローニング |
| T4 DNA リガーゼ | NEB | M0202S | クローニング |
| QIAprep スピン ミニプレップキット | QIAGEN | 27106 | プラスミド抽出 |
| TransIT-X2 | Mirus | MIR6004 | トランスフェクション |
| 細胞培養 6ウェルプレート | サーモフィッシャー | 140675 | 細胞培養 |
| GoTaq Master Mixes | Promega | M7123 | ジャンクション PCR 増幅 |
| プラチナ Pfx DNA ポリメラーゼ | サーモフィッシャー | 11708021 | フルインサート |
| ヤギ抗チキン IgY (H+L) 抗体、Alexa Fluor 488 | Invitrogen | A-11039 | の PCR 増幅免疫蛍光 |
| ヤギ 抗マウス IgG 抗体, Alexa Fluor 568 | Invitrogen | A-11004 | 免疫蛍光 |
| 共焦点レーザー走査顕微鏡 | ライカマイクロシステムズ | ライカ TCS SP5 LASAF | 免疫蛍光 |
| FACS セルソーター | BD バイオサイエンス | BD FACSAria | シングルセルソーティング |
| パラホルムアルデヒド (PBS中4%) | サンタクルーズバイオテクノロジー | SC-281692 | 細胞固定 |
| Triton X-100 | GeneTex | GTX30960 | 透過化 |
参考文献
- Witter, R. L., Solomon, J. J. Experimental infection of turkeys and chickens with a herpesvirus of turkeys (HVT). Avian Diseases. 16 (1), 34-44 (1972).
- Baigent, S. J., et al. Herpesvirus of turkey reconstituted from bacterial artificial chromosome clones induces protection against Marek's disease. Journal of General Virology. 87, Pt 4 769-776 (2006).
- Messerle, M., Crnkovic, I., Hammerschmidt, W., Ziegler, H., Koszinowski, U. H. Cloning and mutagenesis of a herpesvirus genome as an infectious bacterial artificial chromosome. Proceedings of the National Academy of Sciences of the United States of America. 94 (26), 14759-14763 (1997).
- Zhao, Y., Nair, V. Mutagenesis of the repeat regions of herpesviruses cloned as bacterial artificial chromosomes. Methods in Molecular Biology. 634, 53-74 (2010).
- Ma, Y., et al. Generating rats with conditional alleles using CRISPR/Cas9. Cell Research. 24 (1), 122-125 (2014).
- Mali, P., et al. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Niu, Y., et al. Generation of gene-modified cynomolgus monkey via. Cas9/RNA-mediated gene targeting in one-cell embryos. Cell. 156 (4), 836-843 (2014).
- Ran, F. A., et al. Double nicking by RNA-guided CRISPR Cas9 for enhanced genome editing specificity. Cell. 154 (6), 1380-1389 (2013).
- Yin, H., et al. Genome editing with Cas9 in adult mice corrects a disease mutation and phenotype. Nature Biotechnology. 32 (6), 551-553 (2014).
- Zhang, Y., et al. CRISPR/Cas9 mediated chicken Stra8 gene knockout and inhibition of male germ cell differentiation. PLoS One. 12 (2), 0172207(2017).
- Bi, Y., et al. High-efficiency targeted editing of large viral genomes by RNA-guided nucleases. PLoS Pathogens. 10 (5), 1004090(2014).
- Bierle, C. J., Anderholm, K. M., Wang, J. B., McVoy, M. A., Schleiss, M. R. Targeted mutagenesis of guinea pig cytomegalovirus using CRISPR/Cas9-mediated gene editing. Journal of Virology. 90 (15), 6989-6998 (2016).
- Suenaga, T., Kohyama, M., Hirayasu, K., Arase, H. Engineering large viral DNA genomes using the CRISPR-Cas9 system. Microbiology and Immunology. 58 (9), 513-522 (2014).
- Xu, A., et al. A simple and rapid approach to manipulate pseudorabies virus genome by CRISPR/Cas9 system. Biotechnology Letters. 37 (6), 1265-1272 (2015).
- Yuan, M., et al. Efficiently editing the vaccinia virus genome by using the CRISPR-Cas9 system. Journal of Virology. 89 (9), 5176-5179 (2015).
- Yuen, K. S., et al. CRISPR/Cas9-mediated genome editing of Epstein-Barr virus in human cells. Journal of General Virology. 96, Pt 3 626-636 (2015).
- Liang, X., et al. A CRISPR/Cas9 and Cre/Lox system-based express vaccine development strategy against re-emerging Pseudorabies virus. Scientific Reports. 6, 19176(2016).
- Zou, Z., et al. Construction of a highly efficient CRISPR/Cas9-mediated duck enteritis virus-based vaccine against H5N1 avian influenza virus and duck Tembusu virus infection. Scientific Reports. 7 (1), 1478(2017).
- Peng, Z., et al. Pseudorabies virus can escape from CRISPR-Cas9-mediated inhibition. Virus Research. 223, 197-205 (2016).
- Tang, Y. D., et al. Live attenuated pseudorabies virus developed using the CRISPR/Cas9 system. Virus Research. 225, 33-39 (2016).
- Yao, Y., Bassett, A., Nair, V. Targeted editing of avian herpesvirus vaccine vector using CRISPR/Cas9 nucleases. Journal of Vaccine and Technologies. 1, (2016).
- Tang, N., et al. A simple and rapid approach to develop recombinant avian herpesvirus vectored vaccines using CRISPR/Cas9 system. Vaccine. 36 (5), 716-722 (2018).
- He, X., et al. Knock-in of large reporter genes in human cells via. CRISPR/Cas9-induced homology-dependent and independent DNA repair. Nucleic Acids Research. 44 (9), 85(2016).
- Ran, F. A., et al. Genome engineering using the CRISPR-Cas9 system. Nature Protocols. 8 (11), 2281-2308 (2013).
- Petherbridge, L., et al. Cloning of Gallid herpesvirus 3 (Marek's disease virus serotype-2) genome as infectious bacterial artificial chromosomes for analysis of viral gene functions. Journal of Virological Methods. 158 (1-2), 11-17 (2009).
- Hsu, P. D., Lander, E. S., Zhang, F. Development and applications of CRISPR-Cas9 for genome engineering. Cell. 157 (6), 1262-1278 (2014).
- Sander, J. D., Joung, J. K. CRISPR-Cas systems for editing, regulating and targeting genomes. Nature Biotechnology. 32 (4), 347-355 (2014).
- Panier, S., Boulton, S. J. Double-strand break repair: 53BP1 comes into focus. Nature Reviews Molecular Cell Biology. 15 (1), 7-18 (2014).
- Wang, H., et al. One-step generation of mice carrying mutations in multiple genes by CRISPR/Cas-mediated genome engineering. Cell. 153 (4), 910-918 (2013).
- Yang, H., et al. One-step generation of mice carrying reporter and conditional alleles by CRISPR/Cas-mediated genome engineering. Cell. 154 (6), 1370-1379 (2013).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Lieber, M. R. The mechanism of double-strand DNA break repair by the nonhomologous DNA end-joining pathway. Annual Review of Biochemistry. 79, 181-211 (2010).
再版と許可
