ここでは、マウス二次リンパ球器官におけるサイトカインインターフェロンガンマを分泌する細胞の局在化を可視化する簡単な共焦点イメージング法について述べた。このプロトコルは、多様な組織における他のサイトカインの可視化のために拡張することができる。
この記事について
サマリー
要約
サイトカインは細胞から分泌される小さなタンパク質であり、効果的な免疫応答に不可欠な細胞間通信を媒次化します。サイトカインの特徴の1つは、多くの細胞型によって産生され、多くの細胞型に影響を与えることができるので、その胸膜症である。そのため、より特異的な治療法を定義するためには、どの細胞がサイトカインを産生しているのかを理解するだけでなく、どの環境で細胞が生産するかを理解することが重要です。ここでは、細菌感染後のその場でサイトカイン産生を可視化する方法について説明する。この技術は、共焦点顕微鏡による天然環境におけるサイトカイン産生細胞のイメージングに依存する。これを行うには、組織切片は、サイトカイン染色と共に複数の細胞タイプのマーカーに対して染色される。この方法の鍵は、サイトカイン分泌が目的の組織を収穫する前に生体内で直接ブロックされ、産生細胞内に蓄積されたサイトカインの検出を可能にする。この方法の利点は複数です。第一に、サイトカインが産生される微小環境が保存され、最終的にはサイトカイン産生に必要なシグナルや、それらのサイトカインの影響を受ける細胞を知らせることができる。さらに、この方法は、産生細胞の人工インビトロ再刺激に依存しないため、生体内でのサイトカイン産生の位置を示す。しかし、サイトカインを受け取る細胞におけるサイトカイン下流シグナル伝達を同時に分析することはできない。同様に、観察されたサイトカイン信号は、サイトカイン分泌がブロックされた時間ウィンドウにのみ対応する。細胞内細菌リステリア単球遺伝子によるマウス感染後の脾臓におけるサイトカインインターフェロン(IFN)ガンマの可視化について説明するが、この方法は、任意のサイトカインの可視化に適応する可能性がある。ほとんどの臓器。
概要
病原体に対する効率的な免疫応答を調整するには、生物間に分散することが多い様々な免疫細胞によって表示されるシグナルの複雑な統合が必要です。通信するために、これらの細胞は、サイトカインという名前の免疫調節剤として機能する複数の生物学的機能を有する小さな可溶性タンパク質を産生する。サイトカインは細胞の募集、活性化および増殖を制御し、したがって免疫応答1の促進において重要なプレーヤーであることが知られている。効果的な免疫応答は、特定のシグナルを誘導するために特定の細胞を接続する非常に組織化された時空間パターンでサイトカインを放出する必要があります。したがって、サイトカインが産生される微小環境を考慮して、サイトカインの生産とそのシグナリングをその場で研究することが重要です。
リステリア単球遺伝子(L.単球遺伝子)は、マウスの細胞内病原体に対する免疫応答を研究するための主要モデルとして用いられるグラム陽性細胞内細菌である。1つのサイトカイン、IFNガンマ(IFNγ)は、L.単球遺伝子感染後24時間以内に急速に産生される。IFNγのためにノックアウトされたマウスはL.単球遺伝子感染2に対して非常に感受性が高いため、病原体クリアランスが必要である。IFNγは、多色性であり、感染3に続く複数の細胞によって産生される。ナチュラルキラー(NK)細胞によって産生されるIFNγは直接抗菌活性4に必要であるが、他の供給源からのIFNγは他の機能を有することが示されている。実際、我々および他の人々は最近、CD8+T細胞によって産生されるIFNγがT細胞分化5、6、7を直接調節する上で特定の機能を有することを見出した。そのため、どの細胞がIFNγを産生する(そしてどの微小環境で)その機能を解剖することが重要であるかを理解することが重要です。
サイトカイン産生を研究する最も一般的な技術は、フローサイトメトリーによって分析された細胞内サイトカイン染色に依存しています。この方法は、単一のサンプル内の細胞表面マーカーと組み合わせた複数のサイトカインの同時検出を可能にし、サイトカイン産生を研究するための非常に有用なツールを提供する。しかし、前述の手法を使用すると、空間情報が失わなされます。さらに、サイトカイン検出は、多くの場合、サイトカイン検出を可能にするためにインビトロ再刺激に依存しています。したがって、サイトカインを産生する所定の細胞の容量が分析され、必ずしもその場での実際のサイトカイン分泌と相関するわけではない。他の方法は、蛍光タンパク質発現がサイトカイン転写と相関し、単細胞レベル8での視覚化を可能にするレポーターマウスを使用する。この方法は、サイトカイン転写をその場で追跡することができますが、利用可能なサイトカインレポーターマウスの数は限られています。さらに、転写、翻訳、分泌はリンク解除されることがあり、蛍光タンパク質は報告するサイトカインとは異なる半減期を有し、この方法はサイトカインの可視化に適さない場合があります。
ここでは、単一細胞分解能で共焦点顕微鏡によるサイトカイン産生を可視化する方法について述べた。この技術は、組織内の細胞源および周囲のニッチの可視化を可能にする。このプロトコルは、特にL.単球遺伝子感染マウスの脾臓におけるIFNγ産生の可視化を説明し、NK細胞および抗原特異的CD8+T細胞によるIFNγ産生に焦点を当てる。しかし、標的サイトカインを細胞内に保持できる限り、感染症、炎症、自己免疫疾患などのサイトカインが産生される他の状況の文脈において、サイトカイン産生の特性を拡張し、適応させることができる。細胞内タンパク質輸送阻害剤によって。
プロトコル
マウスを含むすべての実験は、1986年の英国科学手続法に準拠していた。
1. マウスにおける抗原特異的CD8+T細胞の導入移植
- T細胞受容体トランスジェニックマウス9、10のリンパ節懸濁液から緑色蛍光タンパク質(OTI-GFP)または赤色蛍光タンパク質(OTI-RFP)を発現するオブアルブミン(OVA)特異的CD8+T細胞(OTI)を単離し、マウスを用いた10製造指示に従ってCD8 +T細胞絶縁キット。前述の11に記載されているように、注射器プランジャーを使用してリンパ節を粉砕して細胞懸濁液を調べる。
- OTI-GFPまたはOTI-RFP細胞(3 x 10⁶細胞)をCahalan、ら12によって説明した静脈注射によりC57BL/6野生型マウスレシピエントに移す。通常6~12週齢のマウスを使用する。
注:このステップはオプションであり、抗原特異的CD8+T細胞の追跡にのみ必要です。
2.リステリア単球遺伝子感染症
- OVA(LM-OVA)13を発現するように遺伝子改変されたL.単球遺伝子を、OD600が0.08-0.1に達するまで、穏やかな撹拌下で37°Cでのブロス心臓注入の成長の指数関数的な段階に拡大する。14.
- 29Gインスリン注射器を用いた静脈注射によりリン酸緩衝生理食べ物(PBS)で希釈した0.1~0.5 LD50 LM-OVAの100μL(最大体積=200μL)を、OTI-GFPまたはOTI-RFP細胞を有するC57BL/6野生型マウスレシピエントに注入する。
注:私たちの手の中で、0.1 x LD50 LM-OVAは2 x 10⁴コロニー形成ユニット(CFU)に対応しています。遺伝子組み換えOVAに改変されたL.単球遺伝子は、以前に転入したOTI CD8+T細胞を活性化するために使用されるが、L.単球遺伝子の他の株を使用することができる。
3. サイトカイン分泌をブロックするブレフェルジンA(BFA)による治療
- 29Gインスリン注射器を用いてマウスを犠牲にする前に、200 μLのPBSを200μLのPBSを食前に6時間注入する。
注:凍結乾燥BFAは、最初にジメチルスルホキシド(DMSO)で再懸濁され、25mg/mL濃度のストックを調出する。BFAは、注入前の結晶化を避けるために室温(RT)でPBSで希釈されます。サイトカイン分泌の阻害は、細胞内のIFNγの蓄積を誘導する。これはサイトカイン検出に不可欠です。
4. 脾臓の収穫
- CO2の上昇濃度を使用してマウスを安楽死させ、続いて子宮頸部脱臼を行う。
注:マウスの人道的安楽死に関する地元の機関ガイドラインに従ってください。 - 70%のエタノールで腹部を浄化し、はさみで切開し、脾臓があるマウスの左脇腹の皮膚を1〜2cm切り取る。慎重に脾臓を露出し、ピンセットでそれを取り出すために胸膜の切開を行います。脾臓を収穫し、鉗子でそれを絞ったり、脾臓の建築を混乱させないようにカットしないように注意してください。
5. 脾臓のパラホルムアルデヒドによる固定(PFA)
- PBSの3.75 mLと0.2 M L-リジンの3.75 mLを混合して固定溶液を調製します。m-ピリオドナトリウムの21 mgを追加し、よく混ぜます.次に、4%PFAの2.5mLと12N NaOHの20 μLを加えます。
注:同じ日に固定ソリューションを使用し、過剰を破棄します。保存しないでください。この固定工程は、サンプルにGFPなどの蛍光タンパク質が含まれている場合に重要です。それは蛍光タンパク質を変性させるので、メタノールの痕跡を含むPFAを使用しないでください。
注意:PFAは有毒であり、注意して取り扱う必要があります。 - 脾臓を固定に浸し、4時間、通常は4°Cで16~20時間、穏やかな撹拌の下で固定します。
- 固定溶液を廃棄し、穏やかな攪拌の下でRTで5分間PBSの5 mLを追加します。
- PBSを5mLの新鮮なPBSインキュベートで4°Cで1時間、穏やかな撹拌の下で置き換えます。
- PBSを30%ショ糖の5mLに置き換え、12~24時間インキュベートします。
注:この方法は、組織形態を維持するのに役立ちます。スクロース溶液でインキュベーションした後、臓器は井戸の底に沈む必要があります。
6. 凍結と断面
- ドライアイスを大きな容器に入れ、約50mLの純粋なメタノールと数個のドライアイスを含む小さな容器を内部に入れます。
- 糸くずのない拭き取りで脾臓をやさしく乾かします。
- 脾臓を底部に最適な切断温度(OCT)化合物の滴を含むベース金型の中に置きます。気泡を発生しないように注意してください。脾臓の上にOCTを追加します。
- 鉗子を使用すると、メタノールの表面にベース金型を堆積させ、OCTに触れないようにします。
- 凍結したら、断面に進みます。
注:冷凍脾臓は-80°Cで数ヶ月間保つことができる。 -
凍結マイクロトームを用いて組織を切り取る。
- クライオスタットのチャンバー温度を-21 °Cに設定します。所望の厚さの切り取り部(通常約10μm)。このプロトコルは30 μmまでの厚さで働く。
- ガラス顕微鏡スライド(材料表参照)にセクションを収集し、目視で検査します。
注:セクションは数ヶ月間-80 °Cで保つことができる。
7. 免疫蛍光染色
- セクションが RT に来るようにします。
- 組織セクションの周りに液体ブロッカー(例えば、PAPペン)で円を描きます。OCTの外側に描画するか、それは固執しません。
- 乾燥したら、組織部にPBSを5分間置いてサンプルを水分補給します。
注:セクションに置かれるボリュームは、セクションのサイズによって異なります。通常、100~300 μL を使用します。水分補給後は、切片を乾かさせてくれないようにしてください。 - セクションがスライドに十分に付着していることを確認するために、PBSで少なくとも2回すすいでください。
-
セクションにブロッキング溶液を追加して、抗体の非特異的結合を減少させる。
- ブロッキング溶液を以下のように調製する:0.1%トリトンX100、2%胎児子牛血清(FCS)、2.5 μg/mL Fc受容体遮断薬(抗マウスCD16/32)を有するPBS。次に、染色パネルの各二次抗体の種の2~5%正常な血清を添加する。
注:抗体が直接共役/ビオチン化された場合は、各一次抗体の種の5%正常血清を加える。一次抗体と二次抗体の1つが同じ種(例えば、ウサギおよび二次ウサギ抗ラットで飼育された一次抗体)からのものである場合、バックグラウンドシグナルを増加させるので正常な血清種を使用しないでください。 - 吸引によってセクションからPBSを穏やかに取り除き、サンプルセクションごとのブロッキング溶液の100 μLを加えます。RTで最低1時間のカバーされた湿った部屋でインキュベートする。
- ブロッキング溶液を以下のように調製する:0.1%トリトンX100、2%胎児子牛血清(FCS)、2.5 μg/mL Fc受容体遮断薬(抗マウスCD16/32)を有するPBS。次に、染色パネルの各二次抗体の種の2~5%正常な血清を添加する。
-
一次抗体で染色する。
- ブロッキング溶液中の最適な濃度で一次抗体を希釈する。一般的な開始点抗体濃度は5 μg/mLですが、抗体および組織ごとに最適化する必要があります。
注:抗体が直接結合されている場合は、抗体ミックスを使用する前に4°Cで15分間17.135 x g(13.500 rpm)で遠心分離します。 蛍煙管は沈殿しうる。このステップは、沈殿物をペレットし、それによってスライド上の沈殿抗体の非特異的沈着を防ぎます。 - ブロッキング溶液を各サンプルの一次抗体ミックスに置き換えます。
- RTまたは一晩(OVN)で4時間、覆われた湿った部屋で4°Cでインキュベートします。
- ブロッキング溶液中の最適な濃度で一次抗体を希釈する。一般的な開始点抗体濃度は5 μg/mLですが、抗体および組織ごとに最適化する必要があります。
-
洗浄を行う。
- PBSに2%FCSを追加して洗浄バッファを準備します。
- 洗浄バッファーで4回洗浄する:1クイック(インキュベーションなし)、10分間、5分間2回。その後、5分間PBSで最終洗浄を行います。
-
二次抗体で染色する。
- ブロッキング溶液中の最適な濃度で目的の二次抗体を希釈する。一次抗体について説明するように、混合物を遠心分離する。
- 最終洗浄液を取り外します。セクションの上に二次抗体ミックスを追加し、覆われた湿ったチャンバーでRTで1-4時間インキュベートします。
- 洗浄バッファーで4回洗浄する:1クイック(インキュベーションなし)、10分間、5分間2回。その後、5分間PBSで最終洗浄を行います。
- 最終洗浄液を取り外します。PBSが蒸発することを許可しますが、セクションを過剰に乾燥させないようにします。試料の上に取り付け媒体を置き、カバーガラスをその上に慎重に置きます。取り付け媒体はセクション全体を回復する必要があります。光から保護されたRTでポリマー化OVNをしましょう。
注:取り付け媒体を適用する前に、スライドの裏側の断面の周りに円を描きます。取り付け媒体を塗布すると、組織が見えにくくなる場合があります。 - スライドを4°Cの暗闇の中に保管し、画像を撮影する準備が整いました。
8. イメージングと解析
- 共焦点顕微鏡で染色のイメージングを行う。
注:このプロトコルでは、反転スペクトルレーザー走査顕微鏡を使用し(材料の表を参照)、目的10x/NA 0.40または60x/NA 1.4(サイトカイン亜細胞局在の分析)を用いた。励起および放出の波長は材料の表の各蛍光および蛍光蛋白質のために表示される。 - 画像処理ソフトウェア(例えば、イマリスやフィジー)を使用して、必要に応じて分析と定量を行います。
結果
リステリア単球遺伝子感染後の最初の24時間以内に産生されるIFNγは、この病原体の広がりを制御するために重要である。このプロトコルを使用して、IFNγを産生している細胞だけでなく、それらが特定の微小環境に位置しているかどうかを視覚化することができます。脾臓のアーキテクチャを線引きするために、脾臓内に特定の位置を持つことが知られている細胞に標識を付けました。マーカーF4/80はすべてのマクロファージにラベルを付け、赤いパルプを強調表示します。マーカーB220はB細胞にラベルを付け、T細胞ゾーンを取り囲むB細胞卵胞を強調表示する。マーカーCD169は、白いパルプを取り囲む限界ゾーンマクロファージにラベルを付けます(図1)。ほとんどのOTI細胞は、IFNγを発現するかどうかにかかわらず、白パルプ中に存在し、そのように、すべての画像は、示されていない限り、白パルプのものである。
このプロトコルの重要なステップの1つは、サイトカイン分泌を阻害するBFAの使用である。実際、マウスをBFAで治療しなかった場合、NK細胞によるIFNγの検出は大きく損なわれた(図2)。我々のプロトコルを用いて、感染後に少なくとも2つの細胞タイプがIFNγ 24 hを産生することがわかった――NK細胞および抗原特異的CD8+T細胞(図3)――フローサイトメトリー3によって以前に見つかったものと同様である。
IFNγ産生細胞のその場イメージングでは、IFNγ産生が脾臓全体に広がるのではなく、目立たない領域に集中することを明らかにした(図4)。実際、T細胞は脾臓全体で活性化され(T細胞クラスタリングによって強調表示される)、これは必ずしもIFNγ産生と相関しないことがわかった。1つの考えられる説明は、IFNγ産生が感染細胞15、16、およびT細胞活性化(クラスタリングによって表される)の位置に制限され、感染した(IFNγ陽性)と非感染性(IFN)の両方で支持される可能性があることである。陰性)抗原提示細胞。他の汚れは、正確な位置を特定し、この領域へのIFNγ産生を制限するメカニズムの指標と抗原転移との関係を得るために必要とされます。興味深いことに、活性化、クラスター化、抗原特異的T細胞は脾臓の白パルプ全体に位置しているが、それらはNK細胞が共存している領域でのみIFNγを産生することがわかった(図5)。したがって、NK細胞の存在は、白パルプの他の部分におけるクラスター化されたT細胞とは対照的にIFNγを産生する白色パルプ中の特定の微小環境を記述する。これは、T細胞活性化が現時点でIFNγ産生を指示するのに十分ではないことを示唆している。
私たちのプロトコルによって強調されるもう一つの興味深い特徴は、NK対CD8+ T細胞5におけるIFNγの異なるサブ細胞局在化である。図6に示すように、NK細胞におけるIFNγ局在化はサイトゾル中に拡散される一方で、CD8+T細胞はしばしば別のT細胞に向かってIFNγをリクルートする。
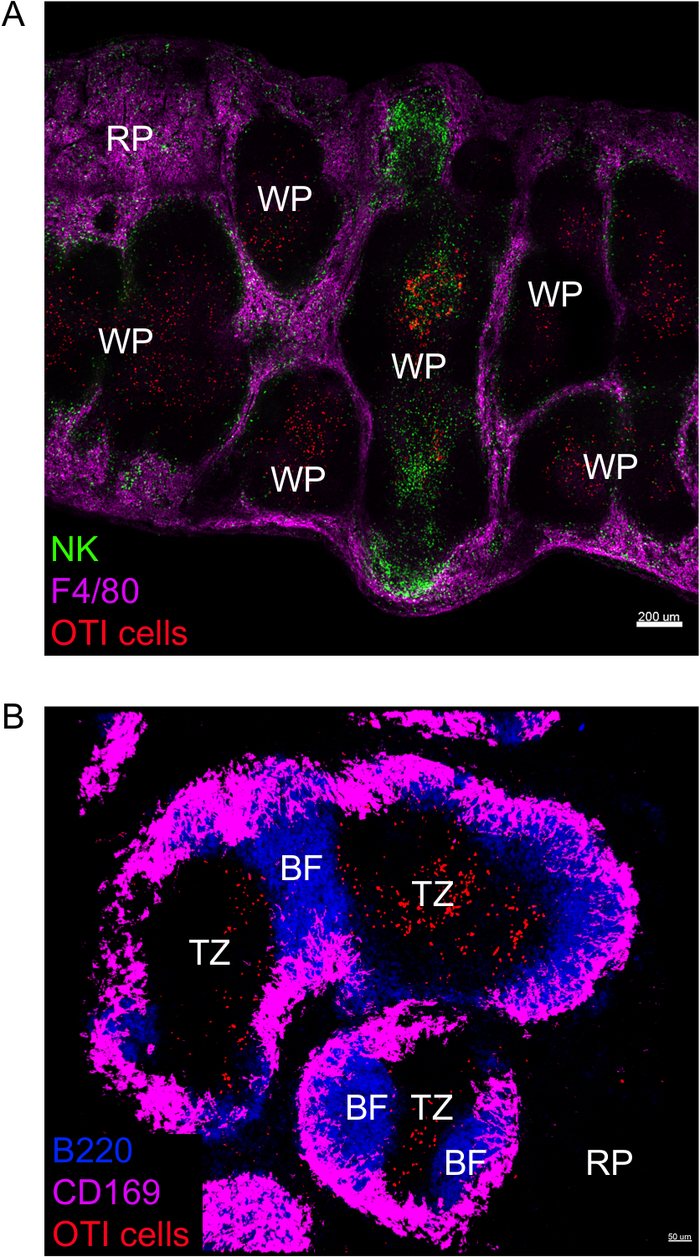
図 1: 脾臓アーキテクチャを強調表示するマーカー。マウスは2 x 10⁴ CFU LM-OVAに感染し、24時間後感染後に安楽死させた。脾臓は、プロトコルに記載されているように移植および処理された。(A)切片は、NK細胞(抗NCR1に続いて抗ヤギIgG-FITC;緑)、OTI-RFP細胞(赤色)およびマクロファージ(抗F4/80-APC;マゼンタ)に対して染色した。RP = レッドパルプ;WP = ホワイトパルプ。スケールバー = 200 μm. (B) セクションは、B細胞(抗B220-パシフィックブルー)のために染色された。青)、OTI-GFP細胞(赤色で表示されるGFP信号)および限界ゾーンマクロファージ(抗CD169-Alexa647;マゼンタ)。RP = レッドパルプ;BF = B細胞卵胞;TZ = T セル ゾーン。スケールバー = 50 μm.これは、3つの独立した実験(N=4)の代表的な画像である。この図のより大きなバージョンを表示するには、ここをクリックしてください。

図2:BFA治療は、その中の細胞内IFNγの検出を可能にする。Nγ産生は、2 x 10⁴ CFU LM-OVAに感染した脾臓における特定の領域に限定され、18時間後にBFA(A)または未処置(B)で治療したマウスを24時間後に安楽死させた。脾臓は、プロトコルに記載されているように移植および処理された。切片はNK細胞(抗NCR1に続いて抗ヤギIgG-FITC;緑)、OTI-RFP細胞(赤色)およびIFNγ(抗IFNγ-BV421;シアン)のために染色した。スケールバー = 5 μm.これは、3つの独立した実験(N=3)からのNK細胞リッチ領域の代表的な画像である。この図のより大きなバージョンを表示するには、ここをクリックしてください。
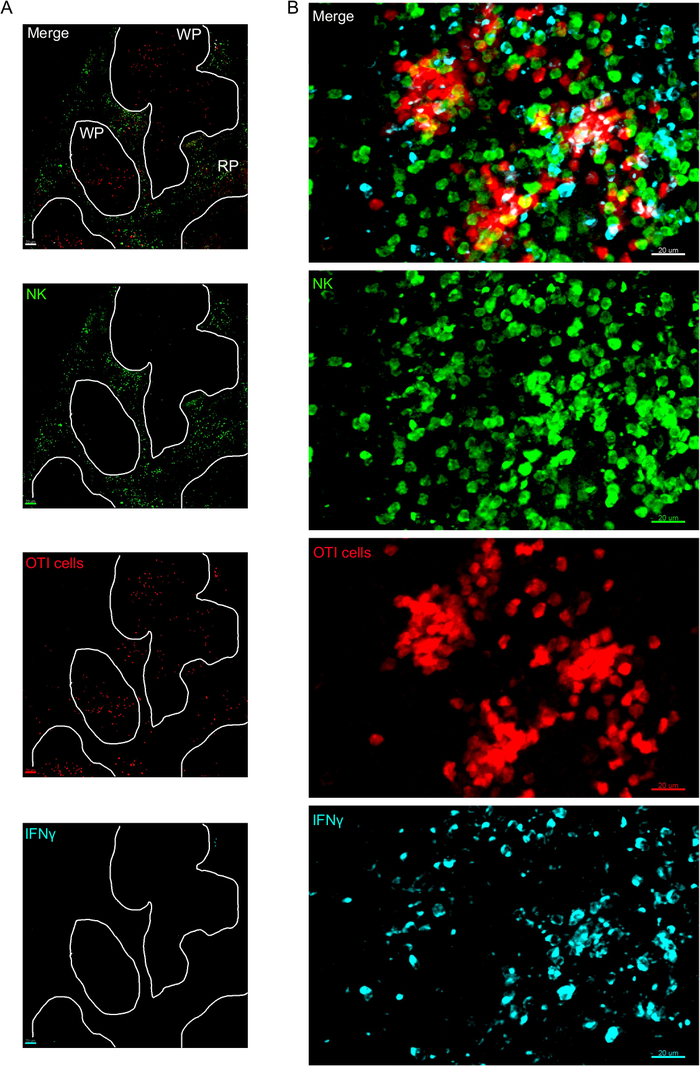
図3:脾臓におけるIFNγ産生細胞。マウスは、18時間後にBFAで示され、治療された場合に2 x 10⁴ CFU LM-OVAに感染し、24時間後にマウスを安楽死させた。脾臓は、プロトコルに記載されているように移植および処理された。切片はNK細胞(抗NCR1に続いて抗ヤギIgG-FITC;緑)、OTI-RFP細胞(赤色)およびIFNγ(抗IFNγ-BV421;シアン)のために染色した。(A) 非感染ナイーブマウスからの脾臓の代表的な画像は、IFNγ非特異的染色の不在を実証する。白い線が白いパルプを線引きします。WP = ホワイトパルプ;RP = 赤パルプ。(B)LM-OVAに感染したマウスの脾臓からの白パルプの代表的な画像は、NK細胞、OTI細胞および非標識細胞による白色パルプへのNK細胞の侵入およびIFNγの産生を示す。画像は4つの独立した実験(N=4)からの代表的である。スケールバー = 70 μm (A);および20 μm (B)。この図のより大きなバージョンを表示するには、ここをクリックしてください。
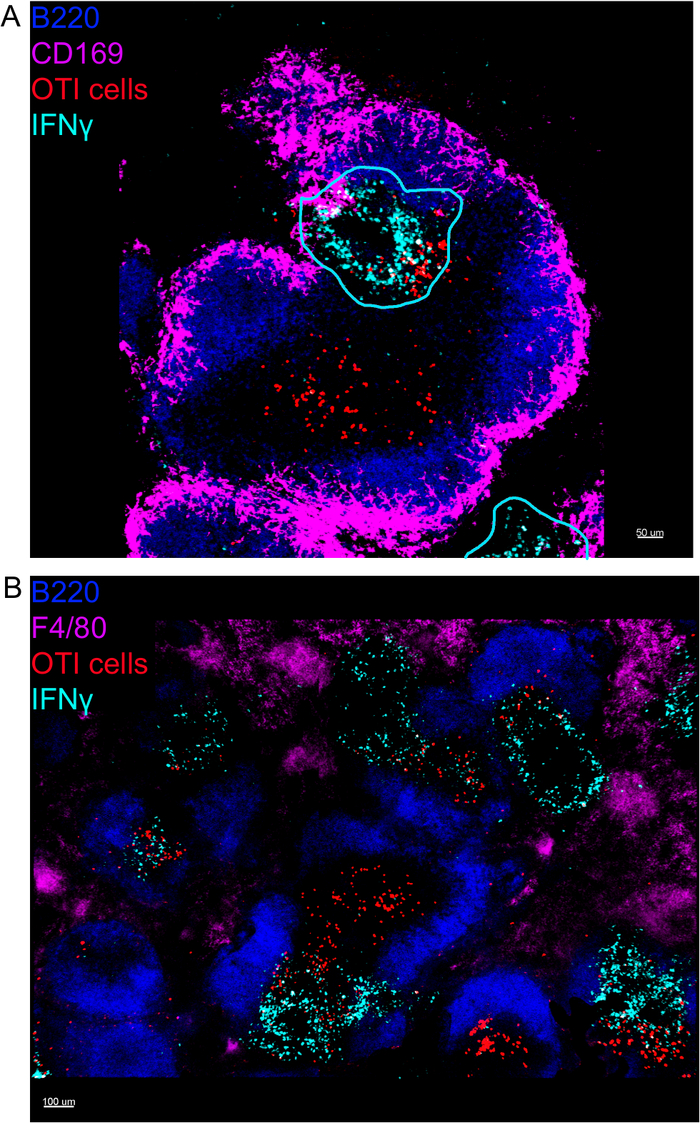
図4:IFNγ産生は、LM-OVA感染後の脾臓の特定の領域に限定される。マウスを2 x 10⁴ CFU LM-OVAに感染させ、18時間後にBFAで治療し、24時間後感染後に安楽死させた。脾臓は、プロトコルに記載されているように移植および処理された。全ての切片をB細胞(B220-パシフィックブルーアブ、ブルー)およびIFNγ(抗IFNγ-ビオチン、続いてストレプトアビジン-PE;シアン)に染色した。OTI-GFPセル(赤色で表示されるGFP信号)。シアンラインは、高いIFNγ生産の領域に対応しています。これらは4つの独立した実験の代表的な画像である(N=4)。(A)セクションは、限界ゾーンマクロファージ(抗CD169-Alexa 647、マゼンタ)に対して染色した。スケールバー= 50 μm(B)セクションは、すべてのマクロファージ(F4/80)に染色した。スケールバー = 100 μm.この図のより大きなバージョンを表示するには、ここをクリックしてください。
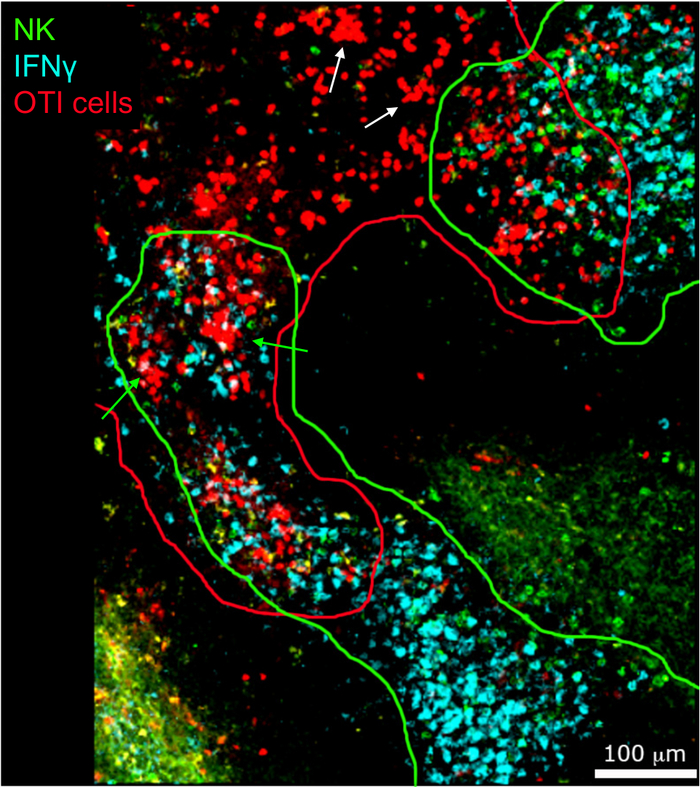
図5:活性化OTI細胞によるIFNγ産生は、特定の微小環境下で起こる。マウスを2 x 10⁴ CFU LM-OVAに感染させ、18時間後にBFAで治療し、24時間後感染後に安楽死させた。脾臓は、プロトコルに記載されているように移植され、処理された。切片はNK細胞(抗NCR1に続いて抗ヤギIgG-FITC;緑)、OTI-RFP細胞(赤色)およびIFNγ(抗IFNγ-BV421;シアン)のために染色した。緑と赤の線は、それぞれ NK および OTI セル ゾーンを強調表示します。白色矢印は、IFNγを産生しないT細胞クラスターの例を示す。IFNγを産生するT細胞クラスターの緑色の矢印の例。スケールバー = 100 μm。これは、4つの独立した実験(N=4)の代表的な画像である。この図のより大きなバージョンを表示するには、ここをクリックしてください。
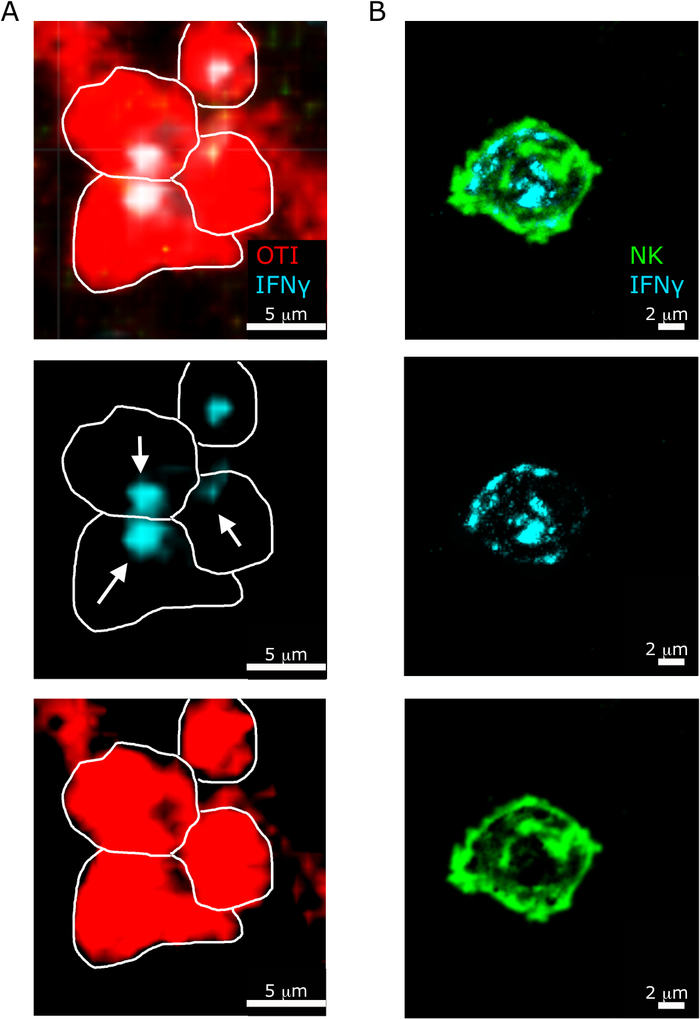
図6:NK細胞およびT細胞におけるIFNγの細胞下局在化マウスを2 x 10⁴ CFU LM-OVAに感染させ、18時間後にBFAで治療し、24時間後感染後に安楽死させた。脾臓は、プロトコルに記載されているように移植および処理された。全ての切片をIFNγ(抗IFNγ-BV421;シアン)に染色した。白い線はセルの端を示し、白い矢印は分泌の方向を示します。これは、2つの独立した実験(N=5)の代表的な画像である。(A)- OTI-RFP セルは赤で表示されます。スケールバー= 5 μm. (B) 切片をNK細胞(抗NCR1に続いて抗ヤギIgG-FITC;緑色)に染色した。スケールバー = 2 μm.この図のより大きなバージョンを表示するには、ここをクリックしてください。
ディスカッション
本原稿では,マウスにおけるL.単球遺伝子感染後の脾臓におけるIFNγ産生を可視化する方法を提示する.このプロトコルは単純であり、他の組織およびサイトカイントリガに適応することができるが、以下の側面を考慮する必要がある。細胞はしばしば、彼らが産生するサイトカインを急速に分泌し、サイトカインは隣接する細胞によって急速に拾われる。サイトカインをその中で検出することは非常に困難です。サイトカイン産生を迅速に再開する一般的な方法は、酵素結合免疫吸着アッセイによって培地中のサイトカイン検出に続いて細胞を再刺激する。この文脈では、サイトカイン産生細胞の空間的局在化に関する情報は失われる。さらに、再刺激後のサイトカイン産生は、必ずしもサイトカインが実際に生体内で産生され分泌されるかどうかを反映するものではなく、むしろサイトカインを産生する所定の細胞集団の能力を示す。したがって、どちらの方法も異なる情報を提供し、どの情報が実験に最も価値があるかを考慮する必要があります。
細胞内サイトカインを検出するために、我々の方法は細胞内タンパク質輸送阻害剤を使用して細胞内のサイトカインをトラップし、シグナル検出を増加させる。しかし、これらの阻害剤は、内皮網膜(RE)からゴルジ装置へのタンパク質の正常な輸送に影響を及ぼし、その放出を損なう分泌性小胞に影響を与え、毒性を引き起こす可能性があることに注意することが重要である。その結果、BFA、または他の阻害剤は、短期間、通常は数時間以下で使用されるべきである。したがって、重篤な細胞毒性作用を引き起こすことなく細胞内に閉じ込められたサイトカインのレベルを最適化するためには、阻害剤の投与量と治療時間の間の適切なバランスを見つけることが重要です。これらの変数は、サイトカインとBFAの投与経路によって異なる場合があります。我々の感染モデルでは、BFAは迅速な全身分散を提供するために経後経口投与されたが、静脈内に送達することもできる。
最も一般的に使用される細胞内タンパク質輸送阻害剤は、BFA、ここで使用される、およびモネンシン(MN)である。これらの阻害剤は、多くの場合、サイトカインの生産を蓄積し、研究するために不明瞭に使用されますが、彼らは作用のメカニズムにわずかな違いを持っています.MNはゴルジ装置内のタンパク質の輸送を阻害するため、ゴルジ17にタンパク質を蓄積し、BFAは凝集体タンパク質複合体-Iの募集を防止し、小平血小乳網膜(ER)へのタンパク質の逆行運動を阻害する。そしてそれによってER18におけるサイトカインの蓄積を促進する。したがって、最良の細胞内タンパク質輸送阻害剤を選択することは、検出されるサイトカインなどの異なる要因に依存する。例えば、BFAがMN19よりもサイトカインIL-1β、IL-6およびTNFを測定する方が効率的である単球のリポ多糖誘発細胞内染色において示されている。
このプロトコルは、共焦点顕微鏡によるサイトカインの可視化を伴うため、サイトカイン産生細胞とその微小環境の研究に使用できるマーカーの数は限られています。また、BFAやMNなどのタンパク質輸送阻害剤が複数のタンパク質の正常な発現を妨げるため、特定の活性化細胞表面マーカーの同時発現を研究する際の使用が近づく必要があることも考慮する必要がある。慎重に。例えば、BfAではなくMNは、マウスリンパ球20におけるCD69の発現を遮断する。この制限にもかかわらず、共焦点イメージングは、細胞内のサイトカイン分泌の方向と同様に、サイトカインの細胞内局在化のサブ細胞的局在化を可能にする。このプロトコルを用いて生成されたデータは、NK細胞が拡散パターンでIFN-yを分泌する傾向があることを示唆し、CD8+T細胞はそれらと直接相互作用している他のCD8+T細胞に向かってIFNγ分泌を指示するように見える5。
結論として、このプロトコルは、その場で様々なサイトカインを可視化し、感染や自己免疫などの多くのトリガに続いて産生細胞とその微小環境を同定するのに適しています。得られた情報は、効率的な免疫応答に必要な、異なる細胞型およびそれらが生成するサイトカインの生体内空間オーケストレーションの重要性を理解するのに役立つ。
開示事項
著者は何も開示していない。
謝辞
ケネディ研究所イメージングファシリティのスタッフに、イメージングに関する技術支援を行っていただければと思います。この研究は、ケネディ・トラスト(A.G.)とバイオテクノロジー・生物科学研究評議会(BB/R015651/1からA.G.)の助成金によって支えられた。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| ブレフェルディン A | ケンブリッジ バイオサイエンス | CAY11861 | |
| パラホルムアルデヒド | 寒天 科学 | R1018 | |
| L-リジン 二塩酸塩 | シグマ ライフサイエンス | L5751 | |
| メタ過ヨウ酸ナトリウム | サーモサイエンティフィック | 20504 | |
| D(+)-サッカロー | ス VWR 化学薬品 | 27480.294 | |
| 精度ワイプ紙 Kimtech science | Kimberly-Clark Professional | 75512 | |
| O.C.T. 化合物、凍結切開用封入剤 | VWR Chemicals | 361603E | |
| Fc ブロック、精製抗マウス CD16/32、クローン 93 | Biolegend | 101302 | 抗体クローンと使用濃度: 2.5 mg/ml |
| 顕微鏡スライド - Superfrost Plus | VWR Chemicals | 631-0108 | |
| 抗CD169 - AF647 | Biolegend | 142407 | 抗体クローンと使用濃度:クローン3D6.112 1.6 mg/ml 励起波長:650 発光波長:65 |
| 抗F4/80 - APC | Biolegend | 123115 | 抗体クローンと使用濃度:クローンBM8 2.5 mg/ml 励起波長:650 発光波長:660 |
| anti-B220 - PB | Biolegend | 103230 | 抗体クローンと使用濃度:クローンRA3-6B2 1.6 mg/mL 励起波長: 410 発光波長:455 |
| 抗IFNg - ビオチン | バイオレジェンド | 505804抗体クローンと使用濃度:クローン XMG1.2 5 mg/mL | |
| 抗IFNg - BV421 | Biolegend | 505829 | 抗体クローンと使用濃度:クローンXMG1.2 5 mg/mL 励起波長: 405 発光波長:436 |
| Nkp46 / | NCRIのR&D Systems | AF2225 | 抗体クローンおよび使用濃度: ヤギ 2.5 mg/mL |
| 抗ヤギ IgG-FITC | Novusbio | NPp 1-74814 | 抗体クローンおよび使用濃度: 1 mg/mL 励起波長:490 発光波長: 525 |
| ストレプトアビジン - PE | Biolegend | 405203 | 抗体クローンと使用濃度: 2.5 mg/mL 励起波長:565 発光波長:578 |
| ストレプトアビジン - FITC | Biolegend | 405201 | 抗体クローンと使用濃度: 2.5 mg/mlL 励起波長:490 発光波長:525 |
| フルオロマウントG | SouthernBiotech | 0100-01 | |
| カバーグラス 22 mm x 40 | mm Menzel-Glazer | 12352128 | |
| リキッドブロッカー super PAP PEN mini | Axxora | CA-DAI-PAP-S-M | |
| Imaris - 顕微鏡画像解析ソフトウェア | ビットプレーン | ||
| 共焦点顕微鏡 - オリンパスFV1200 レーザー走査型顕微鏡 | オリンパス | ||
| クライオスタット - CM 1900 UV | ライカ | ||
| ベースモールド 使い捨て | フィッシャーサイエンティフィックUKリミテッド | 11670990 | |
| PBS 1x | Life Technologies Ltd | 20012068 | |
| BHIブロス | VWRブランド | 303415ZA | |
| GFP | 励起波長:484 発光波長:507 | ||
| RFP | 励起波長:558 発光波長:583 | ||
| インスリン注射器、 針付き、29G | VWRインターナショナル | BDAM324824 | |
| C57BL / 6野生型マウス | チャールズリバー |
参考文献
- Iwasaki, A., Medzhitov, R. Control of adaptive immunity by the innate immune system. Nature Immunology. 16 (4), 343-353 (2015).
- Harty, J. T., Bevan, M. J. Specific immunity to Listeria monocytogenes in the absence of IFN gamma. Immunity. 3 (1), 109-117 (1995).
- Kubota, K., Kadoya, Y. Innate IFN-gamma-producing cells in the spleen of mice early after Listeria monocytogenes infection: importance of microenvironment of the cells involved in the production of innate IFN-gamma. Frontiers in Immunology. 2 (26), (2011).
- Dunn, P. L., North, R. J. Early gamma interferon production by natural killer cells is important in defense against murine listeriosis. Infection and Immunity. 59 (9), 2892-2900 (1991).
- Krummel, M. F., et al. Paracrine costimulation of IFN-gamma signaling by integrins modulates CD8+ T cell differentiation. Proceedings of the National Academy of Sciences of the United States of America. 115 (45), 11585-11590 (2018).
- Curtsinger, J. M., Agarwal, P., Lins, D. C., Mescher, M. F. Autocrine IFN-gamma promotes naive CD8+ T cell differentiation and synergizes with IFN-alpha to stimulate strong function. Journal of Immunology. 189 (2), 659-668 (2012).
- Hosking, M. P., Flynn, C. T., Whitton, J. L. Antigen-specific naive CD8++ T cells produce a single pulse of IFN-gamma in vivo within hours of infection, but without antiviral effect. Journal of Immunology. 193 (4), 1873-1885 (2014).
- Croxford, A. L., Buch, T. Cytokine reporter mice in immunological research: perspectives and lessons learned. Immunology. 132 (1), 1-8 (2011).
- Gerard, A., et al. Secondary T cell-T cell synaptic interactions drive the differentiation of protective CD8++ T cells. Nature Immunology. 14 (4), 356-363 (2013).
- Engelhardt, J. J., et al. Marginating dendritic cells of the tumor microenvironment cross-present tumor antigens and stably engage tumor-specific T cells. Cancer Cell. 21 (3), 402-417 (2012).
- Matheu, M. P., Cahalan, M. D. Isolation of CD4+ T cells from mouse lymph nodes using Miltenyi MACS purification. Journal of Visualized Experiments. (9), 409(2007).
- Matheu, M. P., Parker, I., Cahalan, M. D. Dissection and 2-photon imaging of peripheral lymph nodes in mice. Journal of Visualized Experiments. (7), 265(2007).
- Pope, C., et al. Organ-specific regulation of the CD8+ T cell response to Listeria monocytogenes infection. Journal of Immunology. 166 (5), 3402-3409 (2001).
- Jones, G. S., D'Orazio, S. E. Listeria monocytogenes: cultivation and laboratory maintenance. Current Protocols in Microbiology. 31, 1-7 (2013).
- Kang, S. J., Liang, H. E., Reizis, B., Locksley, R. M. Regulation of hierarchical clustering and activation of innate immune cells by dendritic cells. Immunity. 29 (5), 819-833 (2008).
- Chang, S. R., et al. Characterization of early gamma interferon (IFN-gamma) expression during murine listeriosis: identification of NK1.1+ CD11c+ cells as the primary IFN-gamma-expressing cells. Infection and Immunity. 75 (3), 1167-1176 (2007).
- Mollenhauer, H. H., Morre, D. J., Rowe, L. D. Alteration of intracellular traffic by monensin; mechanism, specificity and relationship to toxicity. Biochimica et Biophysica Acta. 1031 (2), 225-246 (1990).
- Helms, J. B., Rothman, J. E. Inhibition by brefeldin A of a Golgi membrane enzyme that catalyses exchange of guanine nucleotide bound to ARF. Nature. 360 (6402), 352-354 (1992).
- Schuerwegh, A. J., Stevens, W. J., Bridts, C. H., De Clerck, L. S. Evaluation of monensin and brefeldin A for flow cytometric determination of interleukin-1 beta, interleukin-6, and tumor necrosis factor-alpha in monocytes. Cytometry. 46 (3), 172-176 (2001).
- Nylander, S., Kalies, I. Brefeldin A, but not monensin, completely blocks CD69 expression on mouse lymphocytes: efficacy of inhibitors of protein secretion in protocols for intracellular cytokine staining by flow cytometry. Journal of Immunology Methods. 224 (1-2), 69-76 (1999).
再版と許可
