ここでは、成人ミツバチの脳におけるタンパク質の産生を減らして抗体特異性をテストするためにCRISPR-Cas9システムを使用するプロトコルです。
方法論記事
CRISPR-Cas9を用いたミツバチ脳部における抗RDLおよび抗mGlutR1受容体抗体検査
* These authors contributed equally
この記事について
サマリー
要約
クラスターは、定期的に間隔を空ける短いパリンドローミックリピート(CRISPR)/CRISPR関連タンパク質9(Cas9)は、遺伝子機能の研究で広く使用されている遺伝子編集技術です。この研究では、この研究で、ジエルドリン(RDL)に対する昆虫GABA受容体サブユニット耐性および代謝型グルタミン酸受容体mGlutR1(mGluRA)に対して開発された抗体の特異性をチェックします。抗体は、果実ハエに特異的な結合ペプチド(ショウジョウバエメラノガスター)ならびにミツバチ(Apis mellifera)に対してウサギで生成された。我々は、ミツバチの脳の部分でこれらの抗体を使用して、ミツバチの脳における受容体の分布を研究した。抗体をペプチドに対してアフィニティ精製し、免疫ブロッティングおよびペプチドコンジュゲートによる古典的なプリゾルプニング法で試験し、抗体がそれらが生じた対応するペプチドコンジュゲートに特異的であることを示した。ここでは、CRISPR-Cas9注射後48時間の脳内タンパク質標的の減少をテストするCRISPR-Cas9技術を開発し、対応する受容体用に設計されたRNAをガイドしました。CRISPR-Cas9法は、1つまたは複数の遺伝子を改変する必要がある場合に、成虫ミツバチの行動分析にも使用できます。
概要
最近発見されたCRISPR/Cas9システムは、様々なモデルシステムや生物のゲノムDNAを改変するために使用されてきた強力なツールです。ゲノム改変を以前の方法よりも効率的かつ堅牢にすることで、生物医学研究と主要な技術ブレークスルーを加速させました。S.ピョゲネス細菌に自生するこのシステムは、DNA中の二本鎖破断(DSB)につながるCas9エンドヌクレアーゼと、Cas9タンパク質を特定の配列依存性の位置2に誘導するガイドRNA(gRNA)に依存している。CRISPR/Cas9によって生成された二本鎖破断は、非相同的なエンド接合(NHEJ)、フレームシフトにつながるエラーが発生しやすいプロセス、またはドナーテンプレートが存在する場合の相同性直接修復を介して修復することができます。gRNA自体は、標的特異的CRISPRRNA(crRNA)と普遍的なトランス活性化crRNA(tracrRNA)から構成され、精製されたCas9ヌクレアーゼをリボヌクレオプロテイン複合体(RNP)2として化学的に合成して送達することができる。gRNAまたはCas9ヌクレアーゼの蛍光標識は、蛍光顕微鏡4を介して分子成分の検出および細胞内可視化を可能にすることができる。
今回の研究では、CRISPR-Cas9システムを活用して、成体ミツバチの脳内のタンパク質レベルを低下させます。我々は、代謝型グルタミン酸受容体(mGluR)および抗mGlutR1受容体抗体およびGABAA受容体サブユニットRDLおよび抗RDL抗体を研究した。我々は、成体ミツバチの脳内タンパク質量を減らす簡単な方法を開発し、それを使用して、対応するタンパク質に対して開発された抗体の追加試験を駆動するために使用した。CRISPR-Cas9の蛍光をモニタリングして、タンパク質の還元に関与する領域と細胞を推定することができました。
この方法を用いて、我々はまた、共役ペプチドに対してウサギで作られた抗mGlutR1抗体を特徴づけた。このミツバチゲノムは、高度に保存されたAmGluRA(NCBI命名法に従うmGlutR1と名付けられた)代謝型グルタミン酸受容体5をコードする。ミツバチmGlutR1遺伝子は、NCBIデータベースに従って4つの予測スプライス変異体を有する。それは、中枢神経系(CNS)の両方のパパルと成虫の間で発現し、長期記憶形成5に関与することが報告されている。mGlutR1に対して開発された抗体は、ミツバチの学習および記憶過程におけるグルタミン酸作動性システムの研究に不可欠なツールとなり得る。
我々の研究では、アピス・メリライフラRDL受容体サブユニットから結合ペプチドを免疫したウサギで開発された抗RDL抗体も特徴付けた。ミツバチRdl遺伝子、AmRdl(XM_006565102.3、NCBIデータベース)は、14の予測スプライス変異体を有する。 部分的にクローン化されたフラグメントが NCBI データベース AF094822.1 で報告されました。RDL受容体機能とその生理学は、昆虫6、7、8、ミツバチ9、10、11を含むよく研究されています。抗RDLに対して開発された抗体は、ミツバチの学習および記憶プロセスにおけるGABAergicシステムを研究するための不可欠なツールとなり得る。
オクトパミンおよびチラミン受容体の役割に関する以前の研究は、ウェスタンブロット12によるタンパク質量のその後の試験で脳に注入されたRNAiを使用した、13.しかし、RNAiにはいくつかの重要な制限があります。RNAi注射後の短時間のウィンドウのみがあり、その中でタンパク質の減少が起こる13。CRISPR-Cas9は、動物14、15、16の全ての遺伝子を削除または改変するためにミツバチ胚で極めて最近使用された。我々は、成体ミツバチ中のタンパク質の量を減らすためにCRISPR-Cas9の使用を報告した。我々は、制御された実験室条件下での学習と記憶の行動研究に結合する能力のためにミツバチのためのこのアプローチを開発しました17.
本研究では、2つの受容体に対する抗体を開発し、CRISPR-Cas9注射によってタンパク質を減少させた後、成体ミツバチの脳切片で試験した。同時に、行動実験に利用できる実験計画を立案しました。
プロトコル
ここで説明するプロトコルは、アリゾナ州立大学の動物ケアガイドラインに従います.
1.アピス・メリプラの脳からのタンパク質の完全分離
注:この実験には、未知の年齢のアピスメルビデラ新世界カルニオラン飼料を使用してください。
- ハイブの入り口にアルミメッシュスクリーンを置き、偽造者のミツバチ17を捕獲する。各キャップに小さな穴を開けてバイアルで各ビーを捕捉します。ミツバチを含むバイアルを氷に入れて体温を下げ、固定します。ミツバチは氷の中に3分以内に置いておく。
- 固定化されたミツバチを以前に準備した金属ホルダーに固定します。金属ホルダーが小さなダクトテープで固定できるように構築されていることを確認しますが、背胸部、翼、およびヘッドが露出したままです。
注意: ミツバチをホルダーに入れる前に、完全に固定化してください。 - ミツバチに5 mLシリンジを使用して1Mスクロース溶液を供給し、空腹でなくなるまで供給します。湿気の多い環境を確保するために、湿ったペーパータオルで箱に固定されたミツバチを置きます。
- バラカーアイリスはさみ(材料表を参照)で頭を切り落とし、ハサミを使って頭を正面から開いて、ハチの脳を素早く解剖します。
- 頭部カプセルから脳を切断し、#5鉗子で脳を取り、100 μLの冷たい(4-8°C)のリシスバッファーに入れます。リシスバッファーは、120 mM トリス-HCl から構成され、 2%ドデシル硫酸ナトリウム(SDS)、5%グリセロール、0.2mMジチオトレイトール、1%トリトンX-100、およびプロテアーゼ阻害剤PMSF(フェニルメチルスルホニルフルホライド)の1-5 μg/mL、アプロチニン、ベンズアミジン(pH 6.8)を4°Cで行う。約2分間の害虫を回すことによって、溶解溶液中の脳を均質化する。
- サンプルを12,000 x gで20分間遠心分離し、上清の90μLを吸引し、ペレットを捨てます。
- 上清の1μLを取り、フルオリメーターを使用して総タンパク質を定量します。総タンパク質のおよその濃度は、1個のハビ当たり2〜3mg/mLの間であった。上清の10μLを取り、6x Laemmliバッファ18の10μLのリシスバッファーと10μLを加える。短く回転して3分間煮てから氷の上で冷やします。10,000 x gで1分間スピンして、すべての破片を取り除く。10分の1の小さなビンには、約25ngの総タンパク質が含まれています。
2. ウェスタンブロッティング19
- 12.15 mLの超純蒸留水を含む10%のランニングジェルの30 mLを作り、 7.5 MトリスHClの7.5 mL(pH 8.8)、10%SDSの0.3 mL、アクリルアミドビスアクリルアミド溶液30%の10mL、10%のアンモニウム過硫酸(APS)の0.15mL、テトラメチルエチジレンアミン(TEMED)の20μL).
- スペーサーで分離された2枚のガラス板の間にゲルをキャストします。
- 12.1 mLの超純蒸留水、5.0 mLの0.5 M Tris-HCl(pH 6.8)、10%SDSの0.2mL、アクリルビスアクリルアミドの2.6mL、10%APSの0.1mL、および20μLのTEMEDを含む20mLの積層ゲルを作ります。
- ランニングジェルが固化すると、積層ゲルを注ぎます。慎重に泡を避け、ローディングレーンをキャストするためにプラスチックセパレータを追加します。ゲルが固まるまで15~30分待ちます。
- 5 μLのタンパク質規格を使用してゲルのローディングを開始します。ステップ1.8から1レーン当たり20μLのライセート混合物をロードし、ハチ脳の約1/15または1レーンあたり約16ngの総タンパク質に相当する。積層ゲルでは16 mA、ランニングジェルでは32 mAで、合計3.5~4時間のサンプルを実行します。染料がゲルから出るときは止まる。
- タンパク質を、0.45 mAでのトランスファーバッファー(25 mM Tris-HCl、192 mMグリシン、15%メタノール)で4°Cで1h 30分間、ニトロセルロース膜に移します。
- 免疫ブロッティングの前にSDS-PAGEに続くタンパク質の転写の効率を評価するために、ポンソーS染色液を加える(100mLの最終体積に水に0.1 gのポンソーSおよび5 mLの酢酸を加える)。4°Cで1分間保存し、蒸留水で素早くすすいでください。
- ボールペンで各レーンにラベルを付け、脳ホモジネートと1レーンを含む膜をタンパク質マーカーで切り、それぞれウェスタンブロットインキュベーションボックスに入れます。0.1%Tween 20(PBS-Tw)を含むリン酸緩衝生理食塩水(PBS)でそれぞれ5分間3xを洗浄する。
- ウェスタンブロットインキュベーションボックスで10%NGS(通常のヤギ血清からPBS-TWの1mLまで)で膜を遮断し、抗mGlutR1希釈(10%NGSの10mLで5μLの抗体)を作ります。抗RDL1および抗RDL2希釈(10%NGSの10 mLで5 μLの抗体)を作ります。各箱のブロッキング溶液を希釈抗体と交換し、4°Cで一晩(16-24時間)放置します。
- PBS-Twで膜3倍をそれぞれ5分間洗浄し、抗ウサギIgG HRP-共役二次抗体を用いて膜を1:10,000で1:10,000で1:10,000で室温で2時間洗浄します(RT)。膜をPBS-Twで3倍、PBSで1xを洗浄する。
- ウェスタン化学発光HRP基板を使用してバンドを検出します。RTで2つの基質1:1(v/v)を混合し、すべての膜を同じボックスに入れ、RTで2分間(赤色の光が入った暗い部屋で)基板ミックスで覆います。通常、1つの抗体は、2または3レーンの脳ホモジネートの同一希釈を含む1つの膜上で試験され、1レーンは重量マーカーを有する。
3. 免疫細胞化学的手続き
- 免疫細胞化学のためにミツバチの脳を解剖するには、ミツバチを氷の中に30秒間固定する。ミツバチを固定化した後、ハサミでミツバチを切り落とし、頭をPBSの4%パラホルムアルデヒドの溶液に入れる。ヒュームフードの下で作業します。
注意:腹部は切断後も刺すことができるので、体は慎重に処分する必要があります。 - 慎重に、迅速にアンテナ、複合目を削除し、バラカーアイリスはさみで上部外骨格の周りすべてをカット。頭部を10分間固定液に座らします。残りの頭の外骨格を取り除き、残りの気管を全て切断します。
- 各脳を4%パラホルムアルデヒド溶液の少なくとも1mLを含む1.5mLマイクロ遠心チューブに入れ、4〜8°Cで一晩放置する。
- 3.8 gのアガロースと50 mLの蒸留水を三本のフラスコに混合して、7.6%のアガロース溶液を作ります。アガロースが液化するまで溶液をマイクロ波で行う。
注:加熱中にアガロース溶液があふれるのを防ぐために、フラスコの開口部に小さなティッシュペーパーを置くことができます。 - 35mmのペトリ皿に固定されたミツバチの脳(3-4脳)を入れ、ティッシュペーパーで余分な固定剤を取り除きます。液体アガロース溶液を脳の上に注ぎます。アンテナローブが上向きになるようにアガロースの脳の向きを向きます。アガロースを冷却し、固める。
- アガロースが固まった後、脳を含むアガロースのブロックを切り取る。
- ビブラートメの断面のために、底部に疎水性メッシュを有するバスケットを含む各ウェルで24ウェルプレートを準備する。600 μLのPBSで各ウェルを満たします。
- ビブラームマシンを使用して各ブロックを70 μmの断面にカットし、PBSを含むバスケットにセクションを入れます。
注:同じ脳のセクションが同じバスケットに入っていることを確認してください。 - 脳セクションを6xで10分間PBS-TXで洗い、セクションに固定性が残らないようにします。多ウェルプレートを軌道シェーカーに置き、210 rpmで脳を洗います。各洗浄の前に、新鮮なPBS-TX溶液でPBS-TX溶液を交換してください。最後の洗浄中に1%の通常のロバ血清でブロックします。
- 抗m-glutR1一次抗体を試験するために、15 mL遠心管にPBS-TXの9 mLを80 μLの抗mGlutR1抗体を加えることによって抗mGlutR1抗体の1:112希釈を調製する。チューブを短くボルテックスして、完全に混ぜます。抗体の働く希釈を予備実験で決定した。
- 抗RDL一次抗体を試験するために、抗RDLペプチド1の30μL、抗RDLペプチド2の30μL、およびPBS-TXの6 mLを15mL遠心管に添加することにより、抗RDL抗体の1:100希釈を調製する。チューブを短くボルテックスして、完全に混ぜます。抗体の働く希釈を予備実験で決定した。
- プレートの各ウェルに800 μLの抗体溶液を加えます。マルチウェルプレートを覆い、アルミニウム箔で包み、光暴露による劣化を防ぎます。プレートをアルビタルシェーカーにアルミニウム箔で包み、2時間210rpmで振ります。その後、揺れることなくRTで一晩放置します。
- 脳切片が一晩放置された後、PBS-TXで10分間洗浄します。
- PBS-TXの9 mLに40μLの二次抗体を加えて2次抗体を1:225希釈して、二次抗体(ロバ由来の抗ウサギ)を準備します。
- 各ウェルに800μLの二次抗体希釈を加える。プレートを覆い、アルミホイルで包みます。プレートをアルビタルシェーカーにアルミニウム箔で包み、2時間210rpmで振ります。その後、RTで一晩それを残します。
- 脳切片を10分間、PBS-TXで洗浄し、3xを通常のPBS溶液で洗う。
- スライドにセクションを埋め込むには、ロドリゲスら20から改変された取り付け培地/グリセロール埋め込み溶液を準備する。20 mL PBSに5gの取り付け媒体を加え、磁気攪拌機で16時間かき混ぜます。グリセロール10mLを加え、磁気攪拌機でさらに16時間かき混ぜます。遠心分離機は4,000×gで15分間、液体均質な上清を取り、1mLチューブにアリコートを取ります。-20 °Cに保つ
- ステップ3.17で準備された取り付け媒体のドロップでスライドにセクションを埋め込み、各スライドに1つの脳からのセクションが含まれていることを確認します。
- 共役ペプチドによる免疫染色の前触制御
- 抗RDLおよび共役ペプチドの場合、対応するペプチドコンジュゲートを有する抗RDL抗体の働く希釈を、RTで一晩シェーカーで結合する:条件1)グルタルアルデヒドを介してキーホールリンペットヘモシアニン(KLH)と共役した500μgペプチド。コンジュゲートなしの条件2)
- 各混合物を10,000 x gで10分間遠心分離し、両方の条件から上清を収集します(ステップ3.19.1)。
- 上述の二次抗体を用いて、各上清とプロセスを用いてミツバチ脳の連続セクションをインキュベートする。連続セクションは、ビブラートメの断面手順の間に互いに続くセクションであるため、脳の同じ部分が正と負のコントロールにさらされる。
- 抗mGlutR1および共役ペプチドの場合、10-4Mペプチドを含有するKLH共役ペプチド(条件1)を有するKLH共役ペプチドを有する抗mGlutR1抗体の働く希釈を、コンジュゲートなしで(条件2)、RTでインキュベートする。
- 10,000 x gで各混合物を10分間遠心分離し、両方のコントロールから上清を収集します。
- 二次抗体との両方の条件とプロセスから上清でミツバチの脳の連続セクションをインキュベートします(ステップ3.14-3.15)。
- 埋め込みメディアを使用して、両方の条件のセクションをスライドに埋め込みます(ステップ 3.17)。
4. 対応するCRISPR-Cas9系の注射後のミツバチ脳における免疫細胞化学によるRDLおよびmGlutR1タンパク質発現の試験(セクション3)
- AmRdl (XM_006565102.3) のゲノム DNA 配列と mGlutR1 (XM_006566244.3) の配列を使用して、オンラインの CRISPR-Cas9 設計ツール21を使用してガイドを設計します (表 1)。5'末端に蛍光色素ATTO550を有するCas9 crRNAおよびCas-9トラクルRNAとして命令する。Cas9 ヌクレアーゼ V3 を注文する (資料の表を参照)。
- ヌクレアーゼフリー水を用いて各ガイドcrRNAとtracrRNAの100 μMストックを作り、CRISPR-Cas 9システムのコンポーネントを準備します。アリコートと-20°Cに保管してください。Cas-9溶液の働き濃度を2.5 μLのCas 9ヌクレアーゼV3(10 mg/mL)を47.5μLのヌクレオチドフリーバッファーに添加し、0.5 μg/μLの最終濃度を得る。
- ガイドRNAごとにgRNA複合体形成を個別に準備する(ガイドRNA:トラクルRNAATTO550)
- gRNAの名前を持つ試験管にラベルを付け、ヌクレオチドフリーバッファーの92μL、100 μM CRISPR-Cas9トラクルRNA-5'ATTO550の4μL、および4 μLのガイドcrRNA溶液を加えます。穏やかに混ぜて回転させます。
注: RDL 用 gRNA チューブの標識の例: GRDL1、 GRDL2、 GRDL3 (表1の RDL ガイド RNA に対応)。mGlutR1に対する gRNA チューブの標識の例: GMGL1, GMGL2, GMGL3 (表 1) - 溶液を5分間95°Cに加熱し、gRNAを作成します。RTで10分間冷やします。
- gRNAの名前を持つ試験管にラベルを付け、ヌクレオチドフリーバッファーの92μL、100 μM CRISPR-Cas9トラクルRNA-5'ATTO550の4μL、および4 μLのガイドcrRNA溶液を加えます。穏やかに混ぜて回転させます。
- RNP複合体形成(gRNA:S.p Cas9Nuclease)、送達混合物、および制御を調製する。
- 試験管にRNPの名称を付け、6 μLのgRNA溶液と6 μLの0.5 μg/μL S.p Cas9ヌクレアーゼV3を加えます。穏やかに混合し、注入の前に10分間37 °Cで溶液をインキュベートします。
注: RNP チューブ ラベルの例: RRDL1、RRDL2、RRDL3。 - RNPRDLミックスを作ります。注射に使用する最終的な混合物を調製するには、RDLから各RNPの4 μLを一緒に加えます。RNP/RDL ミックス = 4 μL RRDL1 + 4 μL RRDL + 4 μL RRDL3.
- RNPmGlutR1ミックスを作ります。mGlutR1から各RNPの4μLを混ぜ合わせて、注射に使用される最終的な混合物(RNPmGlutR1mix)=4 μL RMG1 + 4 μL RMG2 + 4 μL RMG3を調製します。
注: RNP チューブ ラベルの例: RMG1、RMG2、RMG3。 - ガイドRNAの代わりに4μLのトラクルRNA、92μLのバッファー、4μLの水を混合して、コントロールのnoguideRNA溶液を作ります(セクション4.3を参照)。このノーガイドRNA溶液の6μLと6 μLの0.5 μg/μL Cas9ヌクレアーゼV3(ステップ4.4.1)を混合して、制御注入液を生成します。
- 試験管にRNPの名称を付け、6 μLのgRNA溶液と6 μLの0.5 μg/μL S.p Cas9ヌクレアーゼV3を加えます。穏やかに混合し、注入の前に10分間37 °Cで溶液をインキュベートします。
5. 注射手順
- ステップ 1.3 で説明したように各ビーを固定化し、ステップ 1.4 のように餌を与えます。次に、注入後にミツバチを解放するために2つの木箱の2セットを準備します:白い箱(実験条件)とブラックボックス(コントロール)。各ボックスには、小さな櫛と給餌ペトリ皿が含まれている必要があります。各箱の片側は観察を可能にするガラスで作られています。
- ペトリ料理を食べさせる。35mmのペトリ皿のカバーを取り、表面の内側にワックスを置き、ペトリ皿の底部をワックスの上に置きます。プレートを箱に固定します。
- 5 mL シリンジを使用して、カバーと皿の底部の間に 1M のスクロース溶液を注入します。ミツバチはすぐに2つのプレートの間にプロボシスを置ることができ、48時間のインキュベーション期間乾燥したままになります。各箱に1皿入れます。
- マイクロインジェクションシステムを準備するには、気泡を含まない鉱油で毛細血管を充填します。マイクロインジェクションシステムのインジェクターホルダに毛細血管を入れます。所望の注入溶液で毛細管をロードするには、疎水性フィルムを平らな表面に置き、溶液をその上にピペットで置きます。毛細血管から油を注入し、対応するRNPミックスと混合物を交換します。
- マイクロインジェクションシステムを使用して、345 nLのRNP混合物溶液を各ビーの中央値オセリに直接注入します。
- RDL-CRISPR-Cas9注入の場合、ステップ4.4.2で説明したように調製したRNPRDLmixで8匹のミツバチを注入します。注射後に1Mスクロースを供給する。小さな櫛を入れて白い(実験)箱に入れ、ペトリ皿に48時間餌を与え、注射をせずにコントロールとして別の8匹のミツバチを使用し、それらを供給し、黒い(コントロール)ボックスに放します。
- mGlutR1 CRISPR-Cas9 の場合、ステップ 4.4.3 で説明したように調製された RNPmGlutR1mix で 9 匹のミツバチを注入します。コントロール用に、ステップ4.4.4に記載されているように準備されたガイド(RNAmix_noguide)なしでRNA混合物を用いて8匹のミツバチを注入する。注射後に1Mスクロースを供給する。5.1章で説明したように、そのホルダーから白い箱(実験条件)またはブラックボックス(コントロール)にミツバチを放します。
- 湿気のために、箱を濡れた紙を入れたポリスチレン容器に入れます。ミツバチを48時間放置し、1日あたり2倍の状態で十分な食べ物と湿度を確保します。
- 48時間後に各ハチの脳を解剖し(ステップ3.1)、第3節に記載されているように免疫細胞化学のプロセスを行う。抗m-glutR1免疫染色にはステップ3.11を使用し、抗RDL免疫染色にはステップ3.12を使用します。
- 免疫染色脳切片における蛍光のレベルを評価するために共焦点イメージングを行う。
- 免疫標識された脳におけるタンパク質の減少を評価するために、制御および注入された脳の両方に同じレベルの利得で共焦点画像収集を使用する。
6. qPCRベースのドロップオフアッセイで、CRISPR Cas9 RNPRDLmixインジェクション後に改変されたゲノムRDL DNA 48 Hを評価する
- CRISPR-Cas9注入によって修飾されたDNAの量を評価するためにプライマー、制御プローブ、およびドロップオフプローブを設計します。各プライマーは、少なくとも1つのCRISPR-Cas 9ガイドを横たわるように設計されており、アンプリコンサイズは132 bpです。使用されるプライマーとプローブは以下の通りです:
RDL1_For: CTCGGAGTGACCACCGT
RDL1_Rev: カカガグガカッカッカツコ
RDL1_control_probe: /5HEX/CGA+C+G+TTT + A + C + CT/3IABkFQ/
RDL1_Dropoff_probe: /56-FAM/CCTA+ C + G + T + CA + A + GT/3IABkFQ/- プライマーが、その領域に固有の固有のシーケンスに対応していることを確認します。ドロップオフプローブがRDL-CRISPR-Cas9ガイドと重複するエリア用に設計されていることを確認します。
- ガイド領域にgDNAの修飾があるかどうかをテストするには、ステップ5.3.1で説明したRNP_RDLミックスでオセリに12匹のミツバチを注入し、8つの未注入ミツバチをコントロールとして使用します。
- 注射後に48時間の視葉なしでミツバチの脳を解剖し、各注入のgDNAを抽出し、製造業者のプロトコルに従ってキットを使用して(視葉なしで)ミツバチの脳を制御します(材料表を参照)。
- 分光光度計を用いて抽出したgDNAの量、品質、純度を評価します。
- qPCRベースのドロップオフプロトコルとリアルタイムPCRサイクラーを用いて、AmRDLの修飾されたgDNAの相対発現を定量化します。
- オリゴを100μMに再懸濁し、プライマーを10μMに希釈し、プローブを5μMに希釈します。
- gDNAの1つのサンプル(3回の繰り返し)に対してここに示すように96ウェルプレートにPCR反応を設定します:マスターミックスの10μL(材料表を参照)、フォワードプライマーの1μL、リバースプライマーの1μL、1μLの制御プローブ、1μLの降下プローブ、2μLのgDNA(50ng)、4μLのヌクレアーゼフリー水を最終体積に導きます。
注: コントロールは、プローブの代わりにサンプルと水の代わりにソリューションです。 - リアルタイムPCRサイクラーに対しては、95°C、15sの95°C、1分間60°Cの40サイクルを設定します。
- 2-ΔΔCt法を用いて相対遺伝子修飾を評価する
 そして

7. RNPRDLmixインジェクション後のRDL RNA 48 Hの相対定量
- RDL mRNAの減少があるかどうかをテストするために、ステップ5.3.1で説明したようにRNP_RDLミックスでオセリに20個のミツバチを注入し、コントロールとして12個の未注入ミツバチを使用します。注射後48時間でミツバチの脳(視葉を除く)を解剖し、注入された各ミツバチから合計mRNAを抽出し、製造業者のプロトコルを使用して分離します(材料表を参照)。
- DNA フリーキットを使用してサンプルに残っている DNA 残渣を除去します (材料表を参照)。
- 分光光度計を用いて抽出したRNAの品質と純度を評価します。
- 384 ウェルプレートのメーカーのプロトコルを使用して、市販の蛍光性緑色RT-PCRキット(材料表)を使用してAmRDLの発現を定量化します。
注: この実験では、以前に公開されたプライマーが使用されました。アウル(AmRDL_Fのために;AmRDL_R TCGATCGACTATGACGTAGGA)22およびアクチンプライマーを参照遺伝子として [AmActin_F TGCCAACTGTTTTCTG;ガートガCCCカアトッカ]AmActin_R 23.相対遺伝子発現を2-ΔΔCt法を用いて算出した(ステップ6.6)。
8. qPCR ベースのドロップオフアッセイにより、RNPmGlutR1mix インジェクション後に改変されたゲノム DNA 48 H を評価
- CRISPR-Cas9注射によって修飾されたDNAの量を評価するためにプライマー、制御、およびドロップオフプローブを設計します。少なくとも1つのCRISPR-Cas 9ガイドとアンプリコンサイズが96 bpになるようにプライマーを設計します。
mGlutR1_For: グトガアッカッガCGGAガガガ
AmGlurR1_Rev: ガガガガガガガガー
AmGlurR1_control_probe: /5HEX/CGAGG +G+AAA +CGA +GT/3IABkFQ/
AmGlurR1_Dropoff_probe: /56-FAM/CGA+ C + C + C + CG + TC/3IABkFQ/
注: プライマーが、変更する必要がある領域に固有の固有のシーケンスに対応していることを確認してください。ドロップオフプローブは、CRISPR-Cas9ガイドと重なった領域向けに設計されています。 - ガイド領域にgDNAの修飾があるかどうかをテストするには、ステップ5.3.1で説明したように、RNP_GlutR1ミックスでオセリに12匹のミツバチを注入し、コントロールとして8つの未注入ミツバチを使用します。
- 注入後48時間のミツバチの脳(視葉なし)を解剖し、製造業者のプロトコルを使用して(視葉を除いて)各注入および制御ミツバチ脳(視葉なし)からgDNAを抽出します(材料表を参照)。
- 分光光度計を用いて抽出したgDNAの量、品質、純度を評価します。
- qPCR ドロップオフプロトコルとリアルタイム PCR サイクラーを使用して、ステップ 6.5 で説明されているように、gDNA AmGlutR1 の相対改変を定量化します。
- 2-ΔΔCt法を用いて相対遺伝子修飾を評価する
 そして

9. rnPmGlutR1mixインジェクション後のmGlutR1 RNA 48時間の定量
- mGlutR1 RNA mRNAの減少があるかどうかをテストするために、ステップ5.3.2で説明したようにRNP_RDLミックスを用いてオセリに6匹のミツバチを注入し、6つの未注入ミツバチをコントロールとして使用します。注射後48時間でミツバチの脳(視葉を除く)を解剖し、注入された各ミツバチから合計mRNAを抽出し、RNA分離のための製造業者のプロトコルを使用して分離する(材料表参照)。
- DNA フリーキットを使用してサンプルに残っている DNA 残渣を除去します (材料表を参照)。
- 分光光度計を用いて抽出したRNAの品質と純度を評価します。
- 384 ウェルキットに提供されたプロトコルを使用して、リアルタイム PCR サイクラーで SYBR グリーン RT-PCR キット (「マテリアルの表」を参照) を使用してmGlutR1の発現を定量化します。mGlutR1 (mGlut_F CCTCCTACGTGTGTGTGTGTGTATTTT; mGlut_R TGCCGTGTGTGTGTGTGTTTTTT) およびアクチンプライマーを参照遺伝子として使用するには、次のプライマーを使用します [AmActin_F TGCCAACTGTTTTCTG;AmActin_RガートガCCCカチャアトッカ]。2-ΔΔCt法を用いて相対的な遺伝子発現を計算する(ステップ8.6)。
結果
抗RDL抗体検査
この抗体は、図1Aに示すようにRDLペプチドコンジュゲートに対して作製された。抗RDL抗体を特徴付けるための最初のステップは、抗RDL抗体とHRP標識ヤギIgG二次抗体を用いて、ブエ脳から抽出したタンパク質のホモジネートをチェックすることです(図1A、インサート)。両方の抗RDL抗体は、〜50〜60kD(矢印)に位置するバンドを認識し、RDLサブユニットアイソフォームタンパク質の推定重量に対応した。抗RDL抗体が脳スライス中のペプチドを認識していることを実証するために、我々は、プリソルプコントロールを使用した(図1B、C)。抗体を共役ペプチドでプリインキュベートした場合、セクション上の染色は存在しなかった。このことは、抗RDL抗体が、それらが生み出された共役ペプチドを認識することを示した。抗RDL抗体が固定脳組織のタンパク質を認識していることを実証するために、CRISPR-Cas9を使用して細胞内のRDLタンパク質を産生するRDL遺伝子をノックアウトしました。図1D1-3は、抗RDL抗体で標識されたコントロール前頭脳部を示す。このビーは、RDL-CRISPR-Cas9 RNPを注射しなかった。図1D1において、抗RDLは、脳の前頭部にニューロピルを標識する。図1D2の同じ前頭部は、RDL-CRISPR-Cas9複合体が注入されなかったため、ATTO550からの蛍光の欠如を示す。
図1E1-E3は、図1D1-D3にRDL-CRISPR-Cas 9を注入し、コントロール脳と同量の抗体で処理したブチから脳部を示す。抗RDL染色は注射後48時間脳全体で有意に減少し、脳内のATTO550染色の分布(図1E2)は、カインデミアンオセリにおけるRDL-CRISPR-Cas 9注射の成功を示している。脳の複数の散乱細胞はATTO550を示す。RDL-CRISPR-Cas 9の注入に成功すると、コントロールと比較してタンパク質発現が減少しました(図1E1-3)。8つの免疫染色蜂の脳から、キノコ体、原皮、触角葉の細胞におけるRDL-CRISPR-Cas9の高い分布を有する脳は1人だけだったが、他の脳はキノコ体のカリックス、中央複合体で細胞染色を有していたが、ローブは高いレベルではなかった。これらのミツバチにおいて、抗RDL免疫染色の減少は、図1 E1に示す脳ほど劇的ではなかったことに留意することが重要である。
次に、RDL-CRISPR-Cas9注入後のミツバチ48時間の改変RDL gDNAのレベルを推定するために、ドロップオフプローブがRDL gRNAの1つの領域に一致するように設計されたqPCR降下試験を行った。これらの実験では、RDL-CRISPR-Cas9を注入したブナの脳において、蛍光の相対的な減少は、サンプル中の改変されたgDNAの数に対応した。我々の試験では、RDL-CRISPR-Cas9を注入した12匹のミツバチのgDNAにおけるこのガイドに対応する領域は、非注入ミツバチのgDNAと比較して64%±(平均±30%SD)であった(図3A)。
次に、注入後48時間のミツバチにおけるRDL RNAのレベルを推定し、別の群のミツバチでqRT-PCRを行った(図3B)。RDL-CRISPR-Cas 9注入されたミツバチのRDL RNAのレベル(n = 19)と、注入されなかったミツバチのRNAのレベル(n =12)を比較した。これらの実験では、mRNA RDLの相対減少は、非注入ミツバチにおけるRNAのレベルと比較して59%±(平均±15%SE)であった。各ミツバチのRDL RNAのレベルを個別に調べた結果、19ミツバチのうち13ミツバチだけがRNAの有意な減少を示した。これらのデータは、オセリを通したRDL-CRISPR-Cas9の注入が常に多数の脳細胞に達するとは限らないことを示しており、RDL免疫染色されたRDL-CRISPR-Cas9注入ミツバチでデータを確認する。これらの製剤では、8匹中1匹のハチだけが、多くの脳細胞(キノコ体、原始細胞、触角葉)にRDL CRISP-Cas9を有し、他のハチ脳と比較して、RDL-CRISPR-Cas9の分布がプロトセラム(キノコ体カリスおよび中央複合体)の細胞に集中したが、アンテナ葉体(図4-D)はなかった。
抗mGlutR1抗体検査
我々は、ショウジョウバエメラノガスターに特異的なコンジュゲートペプチドに対してウサギで産生された抗mGlutR1抗体を使用した(図2A)。このペプチドの配列は、そのイチペプチド(CLSDKTRFDYFARTVPPD)を有する94%の同一性を示す図2A。まず、免疫ブロッティングを用いて、脳タンパク質に対する抗体をチェックした。この脳ホモジネートを10%SDS-PAGEで分離し、ニトロセルロース膜から電気泳動的に転移し、抗mGlutR1で染色した。図 2Aの挿入は、2 つのアイソフォームに対応する推定ウェイト (103 および 83 kD) の 2 つのバンドを示しています。この抗体をミツバチの脳でテストしたところ、図2B,Dに示すように、ミツバチの脳切片の神経ピラープロファイルと細胞が標識されていることがわかりました。結合mGlutR1ペプチドを用いた抗mGlutR1抗体のプリソルプ後、特異的染色は、ブネ脳スライス中で消失した(図2C)。これは、抗mGlutR1抗体がペプチドを認識することを確認する(図2C)。次に、mGlutR1-CRISPR-Cas9をメジアンオカリに注入し、コントロールnoguideRNAを用いた。コントロールミツバチ(n=7)では、ATTO550からの蛍光は細胞中に濃縮されなかった。一部の脳は、蛍光ATTO550標識を散乱していた。したがって、図2D1-3の制御製剤は、脳内の抗mGlutR1染色を示すが、ATTO550蛍光は示さない。mGlutR1-CRISPR-Cas9をオセリに注入し、多くの細胞によって取り込まれた場合、機能性mGlutR1RNPを取り込む領域で二次抗体の蛍光レベルが有意に低下した(図2E1-3)。ミツバチは48時間監視され、各実験条件から1つのミツバチが死んでいるのが見つかりました。そこで、今回の実験では、7匹のコントロールミツバチと8匹のCRISPR-Cas9ミツバチを調べた。CRISPR-Cas9を注入したすべてのミツバチは、mGlutR1-CRISPR-Cas9を取った細胞を有していた。これらの細胞のほとんどは、キノコ体のカリックス、中央複合体、および後部原皮であった。キノコ体、中央複合体、および触角葉の多くの細胞でATTO550標識を示したのは7匹中2匹だけだった。これらのミツバチの一例を図2E に示します。これらの製剤におけるmGlutR1染色のレベルの低下は有意であった。他の5匹のミツバチは、キノコ体および後部プロトセラムでmGlutR1 CRISPR-Cas9の正常な送達に対応するATTO550ラベリングを有するが、アンテナローブにはそうではない。
次に、注入後のミツバチ48時間中の修飾されたmGlutR1 gDNAのレベルを推定するために、ドロップオフプローブがmGlutR1ガイドの近くの領域にあるように設計されたqPCRベースのドロップオフ試験を行った。これらの実験では、mGlutR1-CRISPR-Cas 9を注入したミツバチの脳では、12ミツバチ中のgDNAの相対修飾は、非注入ミツバチのgDNAと比較して59%±(平均±33%SD)であった(図3A)。
これらの結果は、異なるミツバチ群におけるqRT-PCR試験でも確認され、そこで、RNPmGlutR1mixを注射した後48時間のミツバチでqRT-PCRを用いてmGlutR1 RNAレベルを推定した(図3B)。mGlutR1-CRISPR-Cas9注入ミツバチのmGlutR1 RNAのレベル(n = 6)と、注入されなかったミツバチのRNAレベル(n =6)を比較した。これらの実験では、注入されたミツバチにおけるmRNA mGlutR1の相対減少は、注射されていないミツバチと比較して53%±(平均±18%SE)であった(図3B)。
キノコ体のケニヨン細胞でRNP RDL-CRISPR-Cas9を発現した4種類のミツバチからのセクションを図4A-Dに示す。キノコ体およびアンテナローブにおけるATTO550蛍光を伴う例のビーは、図4E,Fに示されています。
| ガイド | シーケンス | gRNA | RNP |
| [ガイドRNA:トラクルRNA] | [gRNA:Cas9 ヌクレアーゼ] | ||
| RDL_Guide1 | アクサーアCGCGCCCGCT | GRDL1 | RRDL1 |
| RDL_Guide2 | アククトCGアクトガック | GRDL2 | RRDL2 |
| RDL_Guide3 | コツガコグマアカックグック | GRDL3 | RRDL3 |
| mGlu_Guide 1 | CGAAAGTTCTガクGTGTGT | GMGL1 | RMGL1 |
| mGlu_Guide 2 | ツカガガガガガガGTTCAT | GMGL2 | RMGL2 |
| mGlu_Guide 3 | GCAAACGTCGGAGTGA | GMGL3 | RMGL3 |
表1:RDLおよびmGlutR1用に設計されたガイドのヌクレオチド配列。
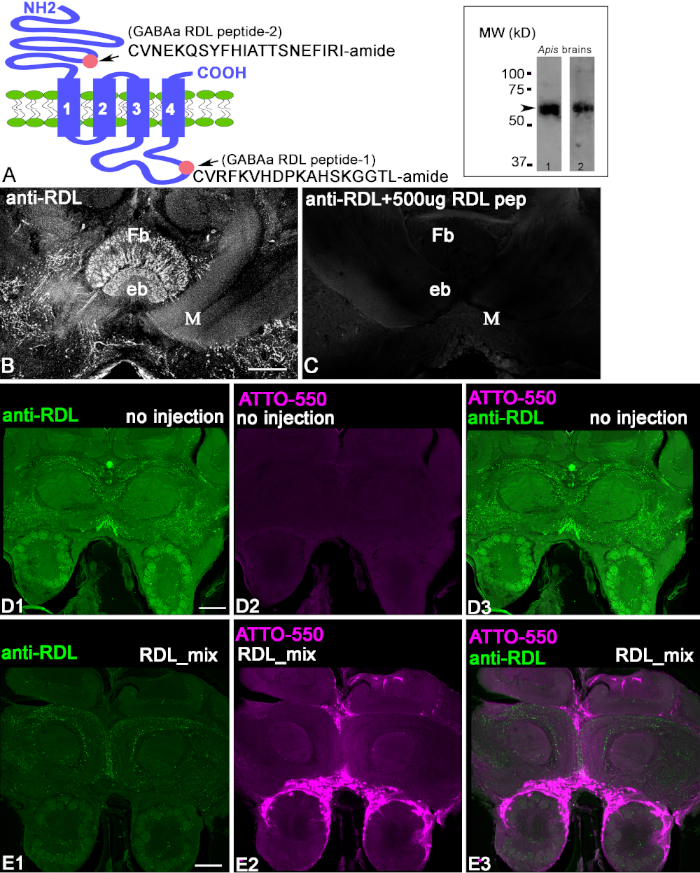
図1:抗RDL抗体の特性評価(A)RDLサブユニットの概略図は、ピンクの円が、C末筋におけるN末円およびペプチド1(細胞内CVRFKVHDPKAHSGTGTL-アミド)におけるペプチド2(細胞外CVKKSSFHIATTTNEFIR)の局在化を示す。Aにおけるインサートは、対応する抗RDL抗体(抗RDL pep1および抗RDL pep2を有する)で処理されたミツバチ脳抽出物のウェスタンブロット中のバンドを示す。各免疫ブロットは、タンパク質〜50〜60kDの見かけの大きさを示し、RDLサブユニットの様々なアイソフォームの推定重量に対応する。(B,C)結合ペプチド1を有する抗RDL抗体のプリコンプション。Cにおける画像は、抗体が共役ペプチド1でプリインキュベートされたときのセクションにおける染色の減少を示す。扇形体(Fb)と楕円体(eb)は、脳内の中心的な複雑な構造である。M =キノコ体の内側葉。(D1-3)コントロールの抗RDL染色, 48時間後に注入されたハチ脳セクション. グリーンは、脳内の抗RDL陽性プロファイルを示す.(D2)このビーは注入されておらず、ATTO550蛍光を含まない。(D3)D1とD3の画像をマージしました。(E1-3)細胞核内の48時間(E2)ATTO550蛍光の後にRDL-CRISPR-Cas9の注入は、RDL-CRISPR-Cas9の正常な送達を示した48時間後に抗RDL染色を減少させた。(E3)アンチRDL(緑)とATTO550(赤)のマージされた画像。スケールバー = 100 μm (B-E)。この図の大きなバージョンを表示するには、ここをクリックしてください。
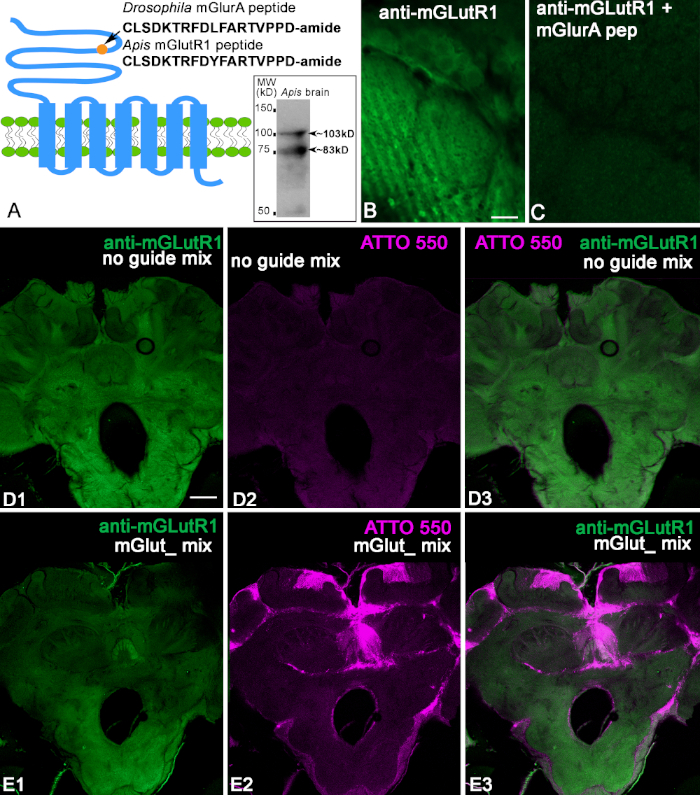
図2:抗mGlutR1抗体の特性評価(A)免疫化に用いるショウジョウバエメラノガスターペプチドを示すGCPR mGluRの模式図。比較のために、アピスメリライフサイクルペプチドを以下に示す。円は、mGlutR1受容体細胞外ドメインのN末期におけるペプチドの局在を示す。Aにおける挿入物は、抗mGlutR1抗体が既知のアイソフォームの推定重量に相当する、ウェルスブナ〜103kDおよび〜83kDのウェスタンブロットの2つのバンドを認識したことを示す。(B,C)抗mGlutR1抗体のプリソルプ制御は、アンテナローブ糸球体の2つの連続したセクションで。Cにおけるアンテナ糸球体部における抗mGlutR1の画像は、抗mGlutR1抗体による抗mGlutR1ペプチドのプレインキュベーションの結果としての染色の減少を示す。この手順は、抗体が溶液から沈殿し、Bと比較して染色を廃止する(コントロール、プレインキュベーションにおけるペプチドの不在)。(D1)は、コントロール注射後の蜂脳スライス中の抗mGlutR1の染色を、オセルの中央値に示す。この注射は、CRISPR-Cas9によるmGlutR1受容体のノックダウンを可能にするmGlutR1 gRNAを欠いていたため、抗mGlutR1抗体の染色は減少しなかった(緑色)。(D2)ATTO550蛍光の欠如は、脳内の機能的CRISPR-Cas9の欠如を示す。(D3)反mGlutR1とATTO550の画像をマージしました。(E1-E3) は、mGlutR1 が mGlutR1-CRISPR-Cas 9 を注入した後、48 時間永久に倒された脳セクションでの抗 m-GlutR1 の染色を示す。したがって、この脳の染色は、多くの細胞におけるmGlutR1のノックアウトに成功したために大幅に減少する。(E2)ATTO550は、蜂の脳内の多くの細胞核における染色がmGlut1-CRISPR-Cas 9の注入が成功したことを示す。(E3)ATTO550(赤)とアンチmGlutR1(緑)の画像を合成した。スケールバー = 10 μm (B,C);100 μm (D,E)。この図の大きなバージョンを表示するには、ここをクリックしてください。
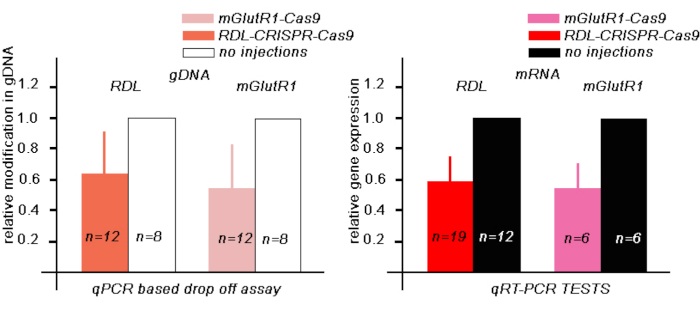
図3:修飾されたgDNAの評価および、対応するRPN CRISPR-Cas9の345nLを注射後48時間のブ脳におけるRDLおよびmGlutR1 mRNAのmRNAの発現。(A) 改質領域を有するgDNAの量を評価するqPCRベースの降下アッセイ試験を2-ΔΔCt法を用いて計算し、制御に対して正規化した、未注入の脳。このデータは、平均+SD(B)TheqRT-PCR試験で表され、CRISPR-Cas9注入および未注入ミツバチにおけるmRNAの量を評価するために使用された。アラクチンは参照遺伝子として用いた。相対遺伝子発現を2-ΔΔCt法を用いて計算し、コントロールに対して正規化し、未注入の脳を求めた。データは平均 + SE で表されます。
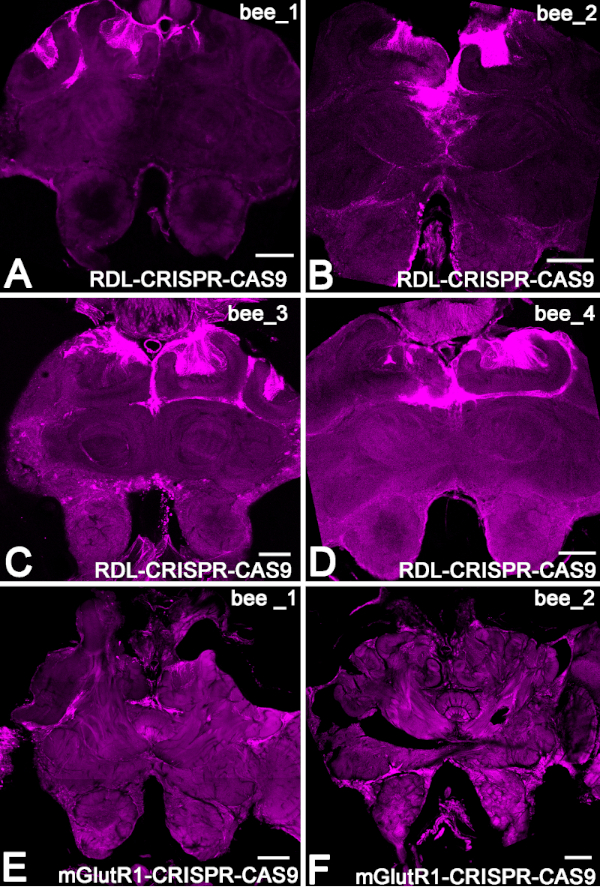
図4: ATTO550蛍光によるブナ脳におけるRNP CRISPR-Cas9の分布の例(A-D)キノコ体のケニヨン細胞でRNP RDL-CRISPR-Cas9を発現した4種類のミツバチの脳セクション。(E,F)RNPmGlutR1 CRISPR-Cas9による注射後の2つの脳48時間の例。スケールバー = 150 μm (A-F)。この図の大きなバージョンを表示するには、ここをクリックしてください。
ディスカッション
アンチRDLおよび反mGlutR1の特性評価
まず、抗RDLおよび抗m-mGlutR1抗体を免疫ブロットと固定ミツバチの脳のスライスに事前吸着することによって特徴付けました。各抗体は、その既知のアイソフォームをすべて認識するように作られ、西洋の分析は、彼らが予測された分子量に対応するバンドを認識することを示しています。次に、両方の抗体は、ミツバチの脳切片で産生された共役ペプチドによってブロックされた。
我々の研究における最初の目的の1つは、特定の共役ペプチドに対して産生される抗体が固定脳組織におけるそのタンパク質に特異的であることを確立することであった。そのために、私たちはCRISPR-Cas9システムを利用しました。我々は、ミツバチRDLとmGlutR1のための特定のガイドを設計し、蛍光プローブATTO550で標識されたCRISPR-Cas9を作るためにそれらのそれぞれを使用しました。各受容体について、3つの異なるCRISPR-Cas9リボヌクレオタンパク質をオセリに注入し、設計されたCas9システムを取り上げた細胞内の対応する遺伝子を排除することによって、成体ミツバチ脳中の標的タンパク質の量を減らしました。我々の研究では、このステップを達成しました。
これらの実験を成功させるために重要な最初のステップの 1 つは、適切なガイド RNA を設計することです。遺伝子配列の最初、中間、および終わりに位置する最大 5 つのガイド RNA を設計することをお勧めします。私たちの予備作業では、3〜5匹のミツバチに様々な組み合わせでそれらをテストしました。我々はまた、注射の異なる濃度だけでなく、注射後の時間、および注射中のRNPの様々な混合物を試してみました。脳を解剖し、抗RDLおよび抗mGlutR1抗体を用いて処理した。これらの初期試験では、注射後の適切な組み合わせ、ポストインジェクション時間、および注射のためのCRISPR-Cas9の濃度と量を確立しました。これらの初期テストは、ここで詳しく説明した実験を設定するための基礎でした。
目的は2倍でした:1)行動研究のための最良の実験条件を通して働くためにCRISPR-Cas9と2)で治療した後、私たちの抗体染色が減少したことをジンで実証しました。したがって、注入後にCRISPR-Cas9 48時間の細胞核が多く含まれる場合、抗RDLおよび抗mGlutR1染色の減少が顕著であることを示した。さらに、テストされた抗体がミツバチの脳調製物中のmGlut1およびRDLタンパク質を特異的に認識し、ミツバチの脳の局在研究に使用できることを実証する。
行動研究のためのCRISPR-Cas9の実験設定
次に、CRISPR-Cas9を行動研究に使用できるように実験を立ち上げました。8または9ミツバチは、対照および実験的治療のために収集された。注射前後に行動試験を行い、ATTO550および/または免疫細胞化学のために脳を処理して、標的タンパク質の減少を示す脳領域を決定した。ここでは、1組の実験に対して採取したミツバチの数は、対照および実験条件に対して8〜9個以下のミツバチに制限されることに注意することが不可欠である。これにより、両方の条件を同じ日にテストできます。また、注射用のCRISPR-Cas9混合物を準備したら、それらを凍結することはありませんでした。CRISPR-Cas9混合物は、3日間連続して使用し、4〜8°Cに保った場合、効力に変化しなかった。しかし、3日後にテストしませんでした。
実験注射の両方のセットと両方の抗体の結果セクションで説明したように、試験された16匹のミツバチのうち3匹だけがキノコ体、プロトセラム、および触角葉に大きな分布ATTO550を示した。他のすべてのミツバチでは、CRISPR-Cas9の分布はキノコ体、中央複合体、および/または後部プロトセラムに限定された。この注射方法を使用すると、標的タンパク質の減少は、ミツバチのほとんどでキノコの体にのみ制限されることを任意の行動研究のために理解することが不可欠です.それは、触角葉または食道下神経節にまで及びない。したがって、我々が使用する注射技術は、キノコ体内の受容体の減少および行動実験における中央複合体の効果を研究するのに適しているが、CRISPR-Cas9を導入する別の方法は、他の脳領域を研究するのに適している。
結論として、我々の研究は、脳内の抗体染色の制御としてCRISPR-Cas9の成功した応用を実証した。抗体(抗RDLおよび抗m-mGlutR1)の両方について、mGlutR1-CRISPR-Cas9またはRDL-CRISPR-Cas9の取り込みが成功した場合、対応する抗体染色のレベルも有意に低下した。また、オセリでの注射は、同質ではなかった脳内のCRISPR-Cas9の分布につながったことに注意することが不可欠です。分布は、オセリとキノコの体を取り巻く最小限の領域から、脳全体の多くの細胞まで変化しました。細胞によるmGlutR1-またはRDL-CRISPR-Cas9取り込みの変動は、注射の変動による可能性が高い。我々のデータは、CRISPR-Cas9システムがミツバチで動作することを示しているが、個々のミツバチの脳全体のCRISPR-Cas9取り込みの変動を減らすために注射方法を改善する必要がある。これらの制限の中で、この技術を用いて成虫のミツバチの遺伝子を操作して行動実験を行うことができます。
開示事項
著者たちは開示するものは何もない。
謝辞
この作品は、BHS:ヒューマンフロンティア科学プログラムに対する以下の賞によって支えられた。NIH NIGMS (R01 GM113967);NSFアイディアズラボ(1556337)。DmGluRAのペプチドと抗体は、ISがフォンダシオン・プール・ラ・レシェルシュ・メディカルのプログラム・デュルゲFRM/ポスドクUFP20060306548によってサポートされたとき、研究室Dr.RDLガイドとqPCRドロップオフアッセイの設計に協力してくれた統合DNAテクノロジー(IDT)のダニエラ・ジュンケイラ・マロシとアレックス・ハンターに感謝しています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 酢酸 | Sigma-Aldrich | A6283_100 mL | ウェスタンブロッティング |
| アクリルアミド-bis アクリルア | Bio-Rad | 500 mL 1610156 | ウェスタンブロッティング |
| アガロース | Sigma-Aldrich | A0169-250g | 蒸留水でミツバチの脳をブロックに固定 |
| Alexa Fluor 488 AffiniPure F(ab')2 Fragment Donkey Anti-Rabbit IgG (H+L) | Jackson研究室 | 711-546-152 | 二次抗体 ウサギ |
| Alt-R CRISPR-cas9 tracrRNA-5'ATT | IDT | 1075934 | と desinged guide RNA からの一次抗体を明らかにするために、それは gRNA |
| Alt-R S.p. Cas9 ヌクレアーゼ V3 | IDT | 1081058 酵素 CRISPR システム用 リボ核タンパク質を作るために使用されます | |
| 硫酸アンモニウム | Bio-RAD | 10 g 1610700 | ウェスタンブロッティング |
| 抗mGlutR1抗体 | Covalab(フランス)/21st Century 本 | 論文の著者による | ミツバチにおけるmGlut 1の一次インキュベーションに使用 |
| 抗RDL抗体 | 本論文の著者による | 21世紀の生化学的 | ミツバチにおけるRDLの一次インキュベーションに使用 |
| アプロチニン | Sigma-Aldrich | Y0001154 | プロテアーゼ阻害剤 |
| バラカー、アイリス、はさみ、7mm、ブレード、シャープポイント | 、ワールド精密機器、 | 剖に使用される、ミツバチ、脳 | |
| ベンザミジン | 、シグマ-アルドリッチ | 、12072 | 、プロテアーゼ阻害剤 |
| ブレードホルダー用ブレード(壊れやすい)、 | ファインサイエンスツール | 10050-00 | ウエスタンブロッティング用解剖 |
| ブレードホルダーとブレーカー | ファインサイエンスツール | 15309 | 解剖ウェスタンブロッティング用 |
| ホウケイ酸ガラスキャピラリー | World Precision Instruments | 1B100 F | 注射手順用 |
| 化学発光ウェスタンブロット検出基質 | Bio-Rad | 1705062 | ウェスタンブロッティング |
| クロロホルム | Sigma-Aldrich | 472476-50mL | RNA 単離 |
| Dithiothreitol | Bio-Rad | 1610611 | ウェスタンブロッティング |
| DNAイージーキット | QIAGEN | 69504 | DNA抽出 |
| DNAフリーキット | INVITROGEN | AM1907 | DNA除去に使用 |
| エッペンドルフ リサーチプラスピペット、3パック | シグマ・アルドリッチ | Z683884 | |
| ファルコン 24ウェル ポリスチレンマルチウェル | ファルコン | 351147 | マルチウェル |
| 平底包埋カプセル、ポリエチレン | 電子顕微鏡脳 | セクションのための | 70021 |
| バスケット鉗子デュモン#5(ペア) | からミツバチの脳の解剖のための | ファインサイエンスツール | 11254-20 |
| 鉗子デュモン #5S(ペア) | ファインサイエンスツール | 11252-00 | 解剖のために気管から脳をきれいに |
| 遺伝子発現マスターミックス統合 | DNA技術 | 1055770 | qPCRドロップオフアッセイ |
| グルタルアルデヒド | EMS | 16220 | は、制御peabsorptionのためのペプチドコンジュゲートの調製に使用されます |
| グリセロール | Sigma-Aldrich | G5516-500 mL | ウェスタンブロッティング、埋め込み培地 |
| Glycine | Bio-Rad | 1610718 | ウェスタンブロッティング |
| 疎水性フィルター付きナイロンメッシュ | Spectrum Labs | 145910 | 脳切片バスケットの底用 |
| イソプロピルアルコール | Sigma-Aldrich | I9030-50mL | RNA単離 |
| キーホールリンペット ヘモシアニン | Sigma-Aldrich | H7017 | 制御用コンジュゲートの調製に使用 |
| LSM800共焦点顕微鏡 | Zeiss | ||
| mGlu_Guide 1 | IDT | はCRISPR-Cas 9用のガイドRNAを設計しました。CRISPR-Cas 9のターゲットmGlutR1ゲノム配列 | |
| mGlu_Guide 2 | IDT | 設計ガイドRNA。IDT | |
| が設計したCRISPR用の3つのガイドRNA mGlu_Guide mGlutR1ゲノム配列を標的とします。ターゲット mGlutR1 ゲノム配列 | |||
| メタノール | Sigma-Aldrich | 34860 | ウェスタンブロッティング |
| 96 ウェル PCR マイクロプレート | Applied biosystem | 4346907 | qPCR ドロップオフアッセイと qRT-PCR |
| 384 ウェル PCR マイクロプレート | Sigma-Aldrich | Z374911 | qRT-PCR |
| ミネラルオイル | Sigma-Aldrich | 注射 | 手順用 |
| M5904_500mL モデル p87フレーミングブラウンマイクロピペットプーラー | サッターインストゥルメント株式会社 | 毛細管調製 | |
| Mowiol 4-88 | Sigma-Aldrich | 81381 | 包埋溶液 |
| ナノリットル 2000 | ワールド精密機器 ナノリットル | 注射装置 | |
| ノーマル ドンキー血清 | ジャクソン研究所 | 免疫 | 細胞化学のためのAB_2337258ブロッキング剤 |
| 非免疫ヤギ血清 | Invitrogen | 50-062Z 100 mL | イムノブロッティング用ブロッキング剤 |
| ヌクレアーゼフリーバッファー | IDT | 1072570 | CRISPR-Cas9注射液の調製に使用されるヌクレアーゼフリー |
| バッファー | IDT | AM9337 | CRISPR-Cas9システムの調製に使用されるヌクレアーゼフリー水 |
| OrbitalShaker Mp4 | Genemate | ||
| Paraformaldehyde | Sigma-Aldrich | 158127-500 g | PBSと併用してミツバチの脳の固定剤を作る |
| フェニルメチルスルホニルフッ化物(PMSF) | Sigma-Aldrich | P7626-250 mg | プロテアーゼ阻害剤 |
| リン酸緩衝液 生理食塩水 | Sigma-Aldrich | P4417-100TAB | パラホルムアルデヒドを固定剤として使用; 抗体用緩衝液 |
参考文献
- Harms, D. W., et al. Mouse Genome Editing Using the CRISPR/Cas System. Current Protocols in Human Genetics. 83 (15), 7-27 (2014).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Kouranova, E., et al. CRISPRs for Optimal Targeting: Delivery of CRISPR Components as DNA, RNA, and Protein into Cultured Cells and Single-Cell Embryos. Human Gene Therapy. 27 (6), 464-475 (2016).
- Schubert, M., et al. Fluorescently labeled tracrRNA provides efficient genome editing while allowing cellular microscopy and FACS analysis. Genome Editing. , www.idtdna.com 1-3 (2017).
- Kucharski, R., Mitri, C., Grau, Y., Maleszka, R. Characterization of a metabotropic glutamate receptor in the honeybee (Apis mellifera): implications for memory formation. Invertebrate Neuroscience. 7 (2), 99-108 (2007).
- Aronstein, K., Auld, V., Ffrench-Constant, R. Distribution of two GABA receptor-like subunits in the Drosophila CNS. Invertebrate Neuroscience. 2 (2), 115-120 (1996).
- Thompson, M., Steichen, J. C., ffrench-Constant, R. H. Conservation of cyclodiene insecticide resistance-associated mutations in insects. Insect Molecular Biology. 2 (3), 149-154 (1993).
- Chung, B. Y., Kilman, V. L., Keath, J. R., Pitman, J. L., Allada, R. The GABA(A) receptor RDL acts in peptidergic PDF neurons to promote sleep in Drosophila. Current Biology. 19 (5), 386-390 (2009).
- Taylor-Wells, J., Hawkins, J., Colombo, C., Bermudez, I., Jones, A. K. Cloning and functional expression of intracellular loop variants of the honeybee (Apis mellifera) RDL GABA receptor. Neurotoxicology. 60, 207-213 (2017).
- Jones, A. K., Sattelle, D. B. The cys-loop ligand-gated ion channel superfamily of the honeybee, Apis mellifera. Invertebrate Neuroscience. 6 (3), 123-132 (2006).
- Dupuis, J. P., et al. Homomeric RDL and heteromeric RDL/LCCH3 GABA receptors in the honeybee antennal lobes: two candidates for inhibitory transmission in olfactory processing. Journal of Neurophysiology. 103 (1), 458-468 (2010).
- Farooqui, T., Robinson, K., Vaessin, H., Smith, B. H. Modulation of early olfactory processing by an octopaminergic reinforcement pathway in the honeybee. Journal of Neuroscience. 23 (12), 5370-5380 (2003).
- Guo, X., Wang, Y., Sinakevitch, I., Lei, H., Smith, B. H. Comparison of RNAi knockdown effect of tyramine receptor 1 induced by dsRNA and siRNA in brains of the honeybee, Apis mellifera. Journal of Insect Physiology. 111, 47-52 (2018).
- Roth, A., et al. A genetic switch for worker nutrition-mediated traits in honeybees. PLOS Biology. 17 (3), e3000171(2019).
- Kohno, H., Suenami, S., Takeuchi, H., Sasaki, T., Kubo, T. Production of Knockout Mutants by CRISPR/Cas9 in the European Honeybee, Apis mellifera L. Zoological Science (BIOONE). 33 (5), 505-512 (2016).
- Hu, X. F., Zhang, B., Liao, C. H., Zeng, Z. J. High-Efficiency CRISPR/Cas9-Mediated Gene Editing in Honeybee Apis mellifera Embryos. G3: Genes, Genomes, Genetics. 9 (5), 1759-1766 (2019).
- Smith, B. H., Burden, C. M. A Proboscis Extension Response Protocol for Investigating Behavioral Plasticity in Insects: Application to Basic, Biomedical, and Agricultural Research. Journal of Visualized Experiments. (91), e51057(2014).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Protein Blotting Guide. , BIO-RAD. http://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_2895.pdf (2019).
- Rodriguez, J., Deinhardt, F. Preparation of a semipermanent mounting medium for fluorescent antibody studies. Virology. 12, 316-317 (1960).
- Custom Alt-R® CRISPR-Cas9 guide RNA. , Integrated DNA Technologies. https://www.idtdna.com/site/order/designtool/index/CRISPR_CUSTOM (2019).
- Bonnafe, E., et al. Effect of a thymol application on olfactory memory and gene expression levels in the brain of the honeybee Apis mellifera. Environmental Science and Pollutant Research (International). 22 (11), 8022-8030 (2015).
- Wang, Y., et al. Regulation of behaviorally associated gene networks in worker honeybee ovaries. Journal of Experimental Biology. 215 (Pt 1), 124-134 (2012).
再版と許可
