このプロトコルは、パルスSILACによる老化細胞および非分裂細胞の代謝標識、非標的質量分析分析、およびタンパク質半減期の合理化された計算のためのワークフローを記述します。
この記事について
サマリー
要約
中枢神経系における老化細胞の蓄積がアルツハイマー病やパーキンソン病などの神経変性疾患に寄与することが示されている。細胞老化は、典型的には、致死的以下のストレスへの曝露に応答して起こる永久的な細胞周期停止の状態である。しかし、他の非分裂細胞と同様に、老化細胞は代謝的に活性なままであり、独自の転写および翻訳要求、ならびに細胞内および分泌されたプロテオームの広範な変化を必要とする多くの機能を果たす。老化の間にタンパク質合成と崩壊速度がどのように変化するかを理解することは、細胞老化の根底にあるメカニズムを明らかにし、老化細胞によって悪化する疾患の潜在的な治療手段を見つけることができます。本稿では、細胞培養中のアミノ酸によるパルス安定同位体標識(pSILAC)を質量分析と組み合わせて用いた、非分裂細胞におけるタンパク質半減期をプロテオームスケールで評価する方法について説明する。pSILACは、アミノ酸の安定な重同位体含有バージョンを有する細胞の代謝標識を含む。最新の質量分析アプローチと組み合わせることで、pSILACは複雑な混合物中の数百または数千のタンパク質のタンパク質代謝回転の測定を可能にします。代謝標識後、タンパク質のターンオーバーダイナミクスは、質量分析によって検出されたペプチド中の重同位体の相対的濃縮に基づいて決定することができる。このプロトコルでは、老化性線維芽細胞培養物および同様に停止した静止性線維芽細胞の生成に関するワークフロー、ならびに予想されるタンパク質代謝回転率のカバレッジを最大化する単純化された単一時点pSILAC標識時間経過が記述されている。さらに、pSILAC質量分析データの分析とスプレッドシートを使用したタンパク質分解速度のユーザーフレンドリーな計算のためのパイプラインが提示されます。このプロトコルの適用は、老化細胞を超えて、ニューロンなどの任意の非分裂培養細胞に拡張することができる。
概要
老化は、複製的枯渇1に達した後に培養初代細胞によって示される無期限の増殖停止の状態として最初に同定された。それ以来、老化は、遺伝毒性、ミトコンドリア、および発癌性ストレスを含む多数の細胞侮辱に応答して起こり得ることが示されている2。老化は腫瘍抑制および創傷治癒などのいくつかの生理学的に重要な役割を有するが、加齢中の老化細胞の蓄積は、いくつかの神経変性状態を含む健康3に対する多数の有害な影響と関連している4、5、6。細胞老化は、ニューロン7、8、9、10、アストロサイト11、ミクログリア12、および希突起膠細胞前駆体13を含む複数の脳細胞型において起こり、神経変性および認知機能障害に寄与する。アルツハイマー病の特徴の1つであるアミロイドベータオリゴマー14は、ニューロン老化を促進することが示されている13、15、16。老化細胞の有病率の増加はまた、パーキンソン病17、特に環境ストレッサー11、18から生じることと関連している。重要なことに、前臨床モデルにおける老化細胞の選択的排除は、寿命を延ばし、多数の加齢関連疾患3,5,12を緩和し、認知障害を改善する8,11,12,13。したがって、老化細胞は、多くの加齢関連状態の治療のための有望な治療標的として浮上してきた。
老化細胞の有害な影響の多くは、老化関連分泌表現型(SASP)、局所炎症、血管新生、細胞外マトリックスの破壊、および周辺組織における老化の伝播を引き起こす可能性のある老化細胞によって分泌される生理活性分子の複雑な混合物によって引き起こされる19,20,21.SASPはまた、細胞周期停止の状態の間にかなりの転写および翻訳努力を必要とするため、老化の興味深い生物学的現象を表す。実際、老化細胞は、タンパク質合成を減少させるべきリボソーム生合成22、23、24の減少を示すことが示されている。その代わりに、老化細胞はいくつかのタンパク質、特にSASP因子を強固に翻訳し、周囲の組織の代謝に影響を与える25。したがって、永久的な細胞周期停止を受けている老化細胞が、SASP因子および他の選択されたタンパク質を頑健に発現しながら、タンパク質の恒常性を維持し続ける方法を理解することにかなりの関心がある。
この方法では、質量分析法と細胞培養中のアミノ酸によるパルス安定同位体標識(pSILAC)を使用して、老化細胞中のタンパク質の半減期をプロテオーム全体規模でグローバルに測定する方法について説明します。従来のSILACでは、培養細胞は、タンパク質存在量の下流分析のために、アミノ酸の重および軽度の非放射性同位体で完全に代謝的に標識されています。この方法は、培養線維芽細胞のSASPにおける存在量変化を包括的かつ定量的に評価するために以前に適用されてきた26。pSILACにおいて、細胞は、同様に、軽同位体による事前標識に続く重同位体のパルスで代謝的に標識され、次いで、1つ以上の時間間隔で回収される。既存の軽同位体に関する重同位体の取り込み速度は、次に、相対タンパク質代謝回転率を計算するために使用される。一般に、アルギニンおよびリジンの同位体は、トリプシンがそれらの残基で切断するために使用される。したがって、標準的な消化からのすべてのペプチドは、潜在的に重い標識を含むであろう。重リジンまたはアルギニンの有無によってのみ異なるペプチドの対は化学的に同一であり、質量分析計によって区別および定量することができる。質量分析分析に続いて、得られたペプチド同定における同位体標識の有無に基づいて、ペプチドを新たに合成または既存のものとして同定することができる。次いで、タンパク質代謝回転率は、所与のタンパク質に対する重(13C−15N)対軽(12C−14N)ペプチドの比を指数関数的成長または崩壊のための速度論モデルに当てはめることによって決定することができる27,28。pSILACは、タンパク質代謝回転率29、30、31、32のいくつかの比較に使用されており、現在、タンパク質半減期の測定のための最も包括的でハイスループットな方法です。
このプロトコールは、培養中の同様に増殖停止静止細胞と並行して老化細胞の調製を詳述し、続いてpSILACによる代謝標識を行う。次いで、細胞を回収し、溶解物にホモジナイズし、質量分析の取得および分析のために処理する。質量分析から得られたデータは、スプレッドシートで実行される単一の時点および半減期の計算を使用する単純化された定量方法を使用して、タンパク質の半減期を決定するために使用されます。このアプローチを使用して、タンパク質半減期の推定値を包括的かつ定量的に測定することができ、タンパク質合成または代謝回転の遮断薬を使用するプロトコルよりも、摂動していない細胞状態に対してより真正である。
プロトコル
1. 静止期細胞および電離放射線(IR)照射により老化した細胞の作製
注:細胞老化および静止は、他の場所33、34、35で詳細に記載されているように、複数の方法を用いて誘導することができる。老化および静止を誘導するために使用される刺激は、関心のある細胞型および調査中の生物学的問題に依存し得る。本試験で用いた細胞は市販されている。
- クライオビアルからヒト二倍体IMR-90線維芽細胞(約1 x10⁶ 細胞)を融解し、10%ウシ胎児血清(FBS)を添加した20mLのDMEM(表1)を150mmプレート上にプレートする。
- 生理的酸素条件(3%O2 、5%CO2 、37°C)で細胞を増殖させ、静止期および老化細胞のための十分な複製が確立されるまで、10%FBS含有培地で培養物を拡大する(条件ごとに少なくとも3〜5回の複製が推奨される)。
注:生理学的(3%)酸素で細胞を培養することは、初代ヒト線維芽細胞にとって理想的であるが、他の細胞タイプの適切な培養条件は異なる可能性があり、ケースバイケースで決定されるべきである。 - 増殖細胞を15グレイ(Gy)の電離放射線(IR)に曝露することによって老化細胞を生成する。
注:放射線被ばくの強度は、細胞の種類によって異なる場合があります。ここでは15Gyが使用されていますが、10Gyは線維芽細胞に一般的に使用される放射線量でもあります。単球などの他の細胞は、5Gyという低い用量を必要とすることがある。用量は、一般に、老化誘導に対する生存率を秤量することによって経験的に決定される。- 10%FBSを含む培地中のIRへの40%〜60%のコンフルエントで細胞を露出させる。
- IR露光後、FBSを10%含む新鮮な培地に変更してください。
- 培地(20mL、10%FBSを含む)を2日ごとに8日間交換する。
注:IR処理された細胞は増殖を停止する前に培養中に膨張するため、細胞はより低いコンフルエンシーでIRに曝露される。この実験では、細胞は老化の樹立中に細胞を分裂させず、よりコンフルエントになったが、収穫時に老化細胞マーカーを示した。線維芽細胞では、老化表現型は7〜10日以内に発症する。
- 増殖細胞を播種した培地を0.2%FBS(血清飢餓)を含む培地に変更することによって静止期対照細胞を生成する(表1)。
- 老化細胞がIRに曝露された後4日目まで、10%FBSを含む培地中で静止制御に使用される細胞を増殖させ続け、必要に応じて分裂させる。
- IR後の4日目に、静止細胞の培地を0.2%FBSを含む20mLの培地(表1)に変更し、さらに6日間増殖を続け、2日ごとに培地を交換した。
注:0.2%FBSを含む培地であっても、線維芽細胞は幾分成長し続け、収穫の終わりまでにコンフルエントに見えることがあります。経験則として、静止細胞が老化細胞培養物と同様のコンフルエントに達したときに、静止細胞を収集することを目指してください。
2. パルスSILACの細胞標識と溶解液の回収
- 老化細胞と静止細胞の両方(12枚のプレート)の培地をSILACライト(表1)に変更し、2日間増殖させる。
メモ: このラベリングは、 13C と 15N の自然豊富さが低いため、バックグラウンドノイズを減らすのに役立ちます。このステップは、試薬制限条件下ではスキップできますが、新しいタンパク質合成のわずかな過大評価につながります。 - 代謝標識のために培地をSILAC DMEM(表1)と交換する。
注:SILAC DMEM培地は、代謝標識のためにアルギニンおよびリジンの純粋に軽いまたは重い同位体を含むように特別に配合されています。これらは、サブステップ2.2.1または2.2.2の標準DMEM製剤で置換されてはならない。- 3 枚の老化プレートと 3 枚の静止プレートの場合、培地を 30 mL の SILAC ライト (表 1) と交換し、培地を交換せずに 3 日間成長させます。
- 少なくとも3枚の老化プレートと3枚の静止プレートの場合は、培地を30mLのSILAC Heavy(表1)と交換し、培地を交換せずに3日間成長させます。
注:この時点で、さらに3日間ラベル付けするのではなく、光標識された細胞になるものをすぐに採取するオプションがあります。単一の時点について、バッチ効果を最小限に抑えるために、このプロトコルで行われているのと同じ期間、重い標識細胞と軽い標識細胞を標識することが好ましい。
- 予め加温したトリプシン試薬5 mLを各ディッシュに加え、37°Cで5分間インキュベートすることにより、培養プレートから細胞を剥離する。
- 剥離した細胞を、培養に使用したのと同じ培地(SILAC LightまたはSILAC Heavyのいずれか)の5 mLに再懸濁し、総容量10 mLにする。
- 溶解物の抽出および老化マーカーの検証のために細胞を採取する。
- 各懸濁液について、0.6 x 10⁶ 個の細胞を6ウェルディッシュ中の0.2% FBSを含む2mLの培地にアリコートし(2つのディッシュ、1つはSILAC軽培養細胞用、もう1つはSILAC重培養細胞用)、一晩インキュベートするために37°Cで置いた。
注:これらのプレート(サブステップ2.5.1)は、老化関連β-ガラクトシダーゼ(SA-βGal)活性の検出に使用されます(ステップ3.1)。 - 各懸濁液について、1 x10⁶ 個の細胞を微量遠心管にアリコートし、卓上遠心分離機内で全速力で1分間スピンダウンする。上清を除去し、ペレットを1mLのフェノールに再懸濁する。このステップでは、RNAはフェノール供給業者のマニュアルに記載されているように完全に精製することも、-80°Cで長期間保存することもできます。
警告: フェノールは腐食性があり、手袋と白衣の付いたフード内でのみ取り扱う必要があります。
注:抽出されたRNAは、逆転写(RT)に続いてリアルタイム定量(q)PCR(RT-qPCR)分析(ステップ3.2)を使用してSASP因子をコードするmRNAを検出するために使用されます。老化誘導のための別の信頼できるアッセイは、増殖細胞の存在を示す5−エチニルジヒドロキシウリジン(EdU)取り込みのための試験である。増殖の不在は、静止および老化を確認するために使用することができる。 - 残りの細胞を氷に移し、300 x g および4°Cでスピンダウンする。
- 各懸濁液について、0.6 x 10⁶ 個の細胞を6ウェルディッシュ中の0.2% FBSを含む2mLの培地にアリコートし(2つのディッシュ、1つはSILAC軽培養細胞用、もう1つはSILAC重培養細胞用)、一晩インキュベートするために37°Cで置いた。
- 上清を除去し、細胞を1mLの冷たいPBSで2回洗浄して、培地からウシ胎児血清からの培地/トリプシンおよび外因性タンパク質汚染を除去する。
- 細胞を再びスピンダウンし、上清を除去し、溶解に進む。
- 細胞ペレットを150 μLの新しく調製した8 M尿素50 mM炭酸水素アンモニウム溶解バッファー(表1)に再懸濁し、上下にピペッティングして混合する。
- 溶解物を水超音波処理器で2.5分間超音波処理し、4°Cで中程度の電力で30秒のオン/オフを行います。
- 溶解物を予熱した95°Cのヒートブロックに移し、4分間変性させた。
- 溶解物をスピンダウン;溶解物は-80°Cで保存することも、定量のためにすぐに使用することもできます。
- 溶解バッファー中の各溶解液に対して1:10希釈液の30μLストックを作る。
- ddH 2 Oで希釈した 1/10x 溶解バッファーで作成した標準曲線を使用して、BCA アッセイキットでタンパク質濃度を測定します。
3. 老化関連mRNAの老化関連β-ガラクトシダーゼ(SA-βGal)活性およびRT-qPCR解析による老化の検証
メモ: これらのステップの出発材料は、ステップ 2.5 で収集されます。
- サブステップ2.5.1でセットアップした6ウェルプレートから始めて、製造元のプロトコールに従って、老化β-ガラクトシダーゼ染色キットを使用して細胞のSA-βGal活性を分析します。前述のように、色を有効にして明視野下での染色を視覚化する36.
注:SA-βGalは、老化対照条件と静止期対照条件における陽性細胞(青色に見える)の割合を比較することによって定量化される。老化の確認を成功させるためには、細胞の最低70%がSA-βGal陽性であるべきである。静止対照細胞は、SA-βGalに対して10%未満の陽性であるべきである。 - フェノール懸濁液からRNAを抽出し(サブステップ2.5.2)、RT-qPCRを使用して、SASP因子(IL6、CXCL8、IL1B)、細胞周期マーカー(CDKN2A / p16、CDKN1A / p21)、および老化の他の指標(LMNB1およびPCNAの損失)をコードするmRNAのレベルの増加について分析する。
注:RNAは不安定であるため、プロトコルに特に明記されていない限り、RNaseフリーの機器、新鮮な手袋、および氷上で取り扱う必要があります。- フェノール懸濁液から始めて、フェノール1mLあたり200μLのクロロホルムを加え、12,000 x g で4°Cで15分間スピンダウンする。
- 水相を慎重に除去し、1:1容量のイソプロパノール、15μgのグリコーゲン共沈殿剤を加え、次いで4°Cで10分間インキュベートしてRNAを沈殿させる。
- インキュベーション後、12,000 x g で4°Cで20分間遠心分離し、続いて使用した1容量フェノールに等しい75%EtOH中で洗浄することによりRNAをペレット化した。RNAを50μLのヌクレアーゼ非含有蒸留水に再懸濁する。RNAは-80°Cで無期限に保存することができる。
- RNAサンプルに、ヌクレアーゼフリー蒸留水38 μL、10 μLの10x DNAse反応バッファー、および2 μLのDNase Iを加え、混合した。
注: サブステップ 3.2.3 のすべての試薬にサンプル数を掛けた共通混合液に、サンプルへの均等分布のための処理サンプル数を乗算して生成することがベスト プラクティスです。 - DNase I処理RNAサンプルを37°Cで30分間インキュベートする。
- 1体積のフェノール/クロロホルム/イソアミルアルコール(25:24:1)混合物を使用して、卓上遠心分離機で最高速度で5分間ボルテックスおよびスピンすることにより、サンプルからDNaseを除去する。RNAは水相に含まれるであろう。
- サブステップ 3.2.2 および 3.2.3 を繰り返して RNA を沈殿させます。20μLのヌクレアーゼ非含有蒸留水に再懸濁する。RNAは-80°Cで無期限に保存することができる。
- 0.5~1.0 μgの精製RNAを、逆転写酵素とともに供給された1x反応緩衝液中で、200 Uの逆転写酵素、100 pMolランダムプライマー、および10 mMのdNTPミックスと共にインキュベートすることにより、精製RNAからcDNAを生成する。25°Cで10分間インキュベートし、次いで50°Cで30分間、最終不活化ステップを85°Cで5分間インキュベートする。
- 静止期コントロールおよび老化細胞からのRTステップ(サブステップ3.2.3)からのcDNAを、リアルタイムの定量的(q)PCR分析を使用して分析し、他の箇所に記載されているように、老化を伴う増加(CDKN2A/p16、CDKN1A/p21、IL1B、IL6、およびCXCL8 mRNA)または減少(LMNB1およびPCNA mRNA)のレベルを評価します。ハウスキーピングタンパク質β-アクチンをコードするACTB mRNAは、多くの場合、入力材料の違いを正常化するのに良いmRNAである。用いたプライマーを表2に示す。
注:相対RT-qPCR分析は、標的プライマー対と参照プライマー対との間の結合効率が等しいという仮定に依存する。これらの仮定は、他の箇所で詳述されているように、新しいプライマーセットについて試験されるべきである37。さらに、参照マーカーは、比較される細胞型間で一定であるべきであり、老化細胞のためのいくつかの追加オプションが以前に同定されている38。
4. 溶液中でのトリプシン消化
注:この時点から、質量分析分析中の不純物からの干渉を防ぐために、質量分析グレードのバッファー、溶媒、および化学物質を使用することが重要です。すべての緩衝液は、水およびアセトニトリルを含む液体クロマトグラフィータンデム質量分析分析に適した成分で構成する必要があります。適切な化学物質および溶媒のリストについては、 材料表 を参照してください。
- 各タンパク質サンプル50μgを新しいチューブにアリコートし、溶解バッファーで等量にします。
- 各サンプルに、ジスルフィド結合を減少させるために、終濃度20mMにDTTを添加する。
- 試料を37°Cで振とうしながら30分間インキュベートし、次いで試料を室温(RT、〜10分)で冷却する。
- ヨードアセトアミドを終濃度40mMとなるように加え、前工程で還元したスルフヒドリル基を不可逆的にアルキル化する。サンプルを暗所のRTで30分間インキュベートします。
- 各サンプルを50 mM重炭酸アンモニウムからなる緩衝液で1 M尿素以下に希釈する。pHストリップに少量のサンプルをピペッティングして、pHが約8であるかどうかを確認します。
- 各サンプルに 1 μg のトリプシンを 50 μg の開始タンパク質に対して加えるか、異なるタンパク質量を消化する場合は質量比で 1:50 のトリプシン:タンパク質比で加えます。例えば、150μgのタンパク質の消化のために3μgのトリプシンが添加されるであろう。
- サンプルを振とうしながら37°Cで一晩インキュベートし、タンパク質をペプチドに消化した。
- 各サンプルの1体積%にギ酸を加え、タンパク質消化をクエンチする。
注: 実験はここで一時停止できます。サンプルを-80°Cで凍結し、必要に応じて後日次のステップに進みます。
5. 固相抽出(SPE)によるサンプルクリーンアップ
メモ: この固相抽出プロトコルには、固相抽出カートリッジと真空マニホールドのセットアップが必要です。他の同等の固相抽出(SPE)プロトコルは、質量分析分析の前に研究者の裁量で実施することができる。
- 各サンプルに 1 つの抽出カートリッジを使用して、真空マニホールド上に固相抽出カートリッジを配置して、SPE の準備をします。
メモ: SPE プロトコルで使用する吸着剤の量については、製造元のガイドラインを参照してください。50μgのペプチドサンプルの場合、10mgの吸着剤カートリッジを使用することをお勧めします。 - 800 μLのSPE溶出バッファー(表1)を加えて各SPEカートリッジを条件付け、真空吸引を使用してカートリッジを通して溶媒を引き抜きます。
- 手順 5.2 を繰り返します。
- 800 μL の SPE ウォッシュバッファー (表 1) を加えて各カートリッジを平衡化し、真空吸引を使用してバッファーをカートリッジに引き込みます。
- 手順 5.4 をさらに 2 回繰り返し、合計 3 回繰り返します。
- ペプチドサンプルをSPEカートリッジにロードし、真空吸引を使用してカートリッジを通してサンプルを引き出します。
注:この時点で、ペプチドはカートリッジ内の吸着剤に結合します。 - 各カートリッジをSPEウォッシュバッファで洗浄し、真空吸引を使用してカートリッジを通してバッファを引き出します。
- ステップ5.7をさらに2回繰り返し、合計3回の洗浄を行います。
- 溶出工程の前に、各カートリッジの下の真空マニホールド内に収集チューブを配置し、収集チューブとカートリッジ間の位置合わせを慎重に確認します。
- ペプチドを溶出するには、各カートリッジに800 μLのSPE溶出バッファーを添加し、真空吸引でペプチドを回収チューブに溶出します。
- 400 μL の SPE 溶出バッファーでステップ 5.10 を繰り返します。
- 真空マニホールドからペプチドサンプルを取り出し、真空濃縮器で完全に乾燥させます(乾燥には約3時間かかります)。
注: 実験はここで一時停止できます。サンプルを-80°Cで凍結し、必要に応じて後日続行します。
6. データ依存取得(DDA)質量分析
- 水中の0.2%ギ酸で構成された緩衝液に400ng/μLの濃度でペプチドサンプルを再懸濁する。
- ペプチドの再可溶化を助けるために、サンプルを5分間渦巻きます。次いで、水浴超音波処理機で5分間サンプルを超音波処理する。
- 任意の不溶性物質を、15,000 x g で4°Cで15分間遠心分離することによってペレット化する。 ペプチド上清をMSバイアルに移す。
- 選択したインデックス付き保持時間 (iRT) ペプチド標準を、1:30 iRT:sample の濃度で各サンプルに体積単位で追加します。
- 液体クロマトグラフィータンデム質量分析(LC-MS/MS)分析を用いたプロテオミクス分析用のサンプルを提出してください。
- 質量分析施設による非標的分析に推奨されるLC-MS/MS設定を使用します。分析の設定例を 図3に示し、ナノフローモードでナノ液体クロマトグラフィーシステムに結合されたOrbitrap質量分析計での分析用に構成されています。プロトコルの例を次に示します。
- 各サンプル1 μg(5 μL)をトラップカラム(長さ1 cm x 直径100 μm)にロードし、流速10 μL/minでローディング溶媒(表1)で5分間洗浄します。
- サンプルを分析カラム (長さ 50 cm x 直径 100 μm) に 400 nL/分の流速でロードします。
- 有機溶媒(0.2%ギ酸および99.8%アセトニトリル)および無機溶媒(99.8%水中の0.2%ギ酸)、5%〜35%有機溶媒で90分間の直線勾配にわたってペプチドを溶出する。
- MS1サーベイスキャン(分解能60,000、3e6 AGCターゲット、最大蓄積時間100 ms、質量範囲400~1,600 m/z)の連続サイクルで質量分析データをデータ依存モードで取得し、その後にHCDフラグメンテーション(正規化された衝突エネルギー27%)で20のデータ依存MS2スキャン(分解能15,000、1e5 AGCターゲット、最大射出時間25ms、および1.6m/z幅アイソレーションウィンドウ)を取得します。
- すべてのサンプルのMS取得に続いて、生の質量分析ファイルを質量分析プロテオミクス分析ソフトウェアツールにインポートして、ペプチドピーク面積の同定と定量を行います。
注:本実験におけるペプチドおよびタンパク質の同定のために、マスコットデータベース検索ツールを、レビューされたUniProtヒトプロテオーム配列データベース(プロテオームID:UP000005640)と共に使用した。マスコットでは、以下の検索パラメータが指定されました。- 定量: SILAC K+8 R+10 [MD] 酵素: トリプシン/p 固定修飾: カルバミドメチル (C)
- 可変修飾: アセチル (タンパク質 N ターム), Gln->ピロ - Glu (N ターム Q), 酸化 (M), 標識: 13C(6)15N(2) (K), 標識: 13C(6)15N(4) (R)
- ペプチド質量耐性:10 ppm
- フラグメント質量公差: 0.08 Da
- 最大ミス切断:2
- 指定されていないすべてのパラメータはデフォルトでした
- プロテオーム定量ソフトウェアツールで重ペプチドと軽質ペプチドのペプチドピーク面積を定量します。この実験のピーク面積の定量化のために、フリーでオープンソースのSkylineソフトウェアプラットフォームを39,40個使用しました。タンパク質の半減期の推定のために、重および軽いペプチドピーク面積をエクスポートします。
7. タンパク質半減期の計算
- SILAC 分析ワークブック (表 3) を 1) 生データ という名前の最初のシートに開き、UniProt ID、遺伝子名、重いピーク領域、および軽いピーク領域を、示された列に貼り付けます (SH = セネッセント - ヘビー、SL = セネセントライト、CH = コントロール (静止)-ヘビー、CL = コントロール (静止)-ライト)。
- シート 2 ~ 4 を開き、UniProt ID 列と Gene カラムが解析から同定されたタンパク質の数と一致することを確認します (これらの実験では 841 個のタンパク質が同定されました)。残りのカラムは、同定されたタンパク質をカバーするためにドラッグされた後、自動的にデータで埋められます。
- 4)分析という名前の4番目のシートを開き、列GとHがサンプルが範囲外であることを示す行を削除します。読み取りを行う行を範囲内に保ちます。5 番目のシートの火山プロットが自動的に入力されます。
結果
このプロトコルは、pSILACおよび最小時点を使用して、老化および非分裂静止制御細胞間のタンパク質半減期をグローバルに比較する方法を記述している。このプロトコルは、培養中の老化細胞および静止期細胞の生成、3日間にわたるアルギニンおよびリジンの安定同位体を有する細胞の代謝標識、質量分析による重ペプチドおよび軽ペプチド同位体の相対存在量の定量、およびスプレッドシート式を使用したタンパク質半減期の簡単でアクセス可能な計算を詳述する(図1)。この方法は非常に柔軟であり、多数の細胞型および条件に適合させることができる。
このプロトコールの老化細胞の生成の一環として、老化検証の2つの方法が使用される:顕微鏡によって視覚化されたSA-βGal陽性細胞およびRT-qPCR分析を使用して定量された老化マーカーのレベルの増加。老化マーカーの測定は、2つの細胞集団の比較が有効とみなされるために、静止細胞と老化細胞の間に明確な区別をもたらすべきである。SA-βGal活性の場合、老化細胞は青色に見えるはずですが、静止期対照細胞は色がまったくないか、ほとんどありません(図2A)。このアッセイは、陽性の青色染色された細胞を全細胞数に対する百分率としてカウントし、次いで静止期対照と老化細胞との間の陽性率の百分率を比較することによって定量化することができる。両方のセル状態を比較するために、このプロトコルを同時に実行することが重要です。SA-βGal活性は染色溶液のpHに依存するため、結果はアッセイ間で大きく異なる可能性があり、定性的な尺度と考える必要があります。
老化マーカーのRT-qPCR解析では、ほとんどの老化モデルにおいて、SASP因子(IL6、CXCL8、IL1B)および細胞周期阻害剤(CDKN2A/p16、CDKN1A/p21)をコードするmRNAの高レベルが示されます。細胞型、培養状態、および老化誘導物質41,42に基づいて多少の変動が予想されるが、ほとんどの老化細胞は、静止対照細胞と比較してIL6、CXCL8、およびCDKN1A/p21 mRNAの5倍以上高いレベルを示す。逆に、増殖マーカーをコードするLMNB1およびPCNA mRNAのレベルは、静止期細胞と比較して老化細胞において低いか、または存在しないはずである(図2B)。まとめると、SA-βGal陽性の有意な割合と老化関連mRNAマーカーのパネルの予想される発現は、実験における老化の誘導を確認するのに十分である。
質量分析分析のためのタンパク質サンプルの処理は、溶液中消化(2日間)および固相抽出(4〜6時間)からなる。非標的プロテオミクス解析を実行するために、得られたペプチドをデータ依存性取得(DDA)を用いたLC-MS/MS解析に提出します。Orbitrap機器では、質量分析機器ソフトウェアメソッドエディタでDDA法を指定できます。この研究で使用した質量分析計の設定を 図3Aに示す。液体クロマトグラフィーの設定は、メソッドエディタ内で指定することもできます。この研究のために、有機相(アセトニトリル)を増加させる90分間の直線勾配を使用した(図3B)。集録が成功すると、総イオン電流(TIC)は、この方法の線形勾配部分の間に強烈な信号を含むはずです(図3C)。このプロトコルは、Orbitrap機器のプロトコル例を説明していますが、タンパク質半減期の計算は、DDAモードで収集された任意の質量分析計から得られたデータに対して実行することができ、これはいくつかのタイプの機器(例えば、Orbitrapsおよび飛行時間計器)およびベンダーで入手可能である。集録設定は、使用する機器の種類と構成に固有であり、質量分析施設によって提案された設定を使用することをお勧めします。この方法は、生データファイルから重いピークと軽いピークの定量クロマトグラフィーピーク面積を抽出し、スプレッドシート式に入力できる限り、非DDA法(SRM、PRM、DIA)とも互換性があります。
生質量分析ファイルは、ペプチドおよびタンパク質を同定するために利用可能な多くのプロテオミクスデータベース検索ツールの1つで検索されます。たとえば、この研究では、Mascot43検索エンジンを利用しました。重ペプチドと軽質ペプチドの定量のためのクロマトグラフィーピーク面積を得るために、データベース検索結果は、Skyline39,40などのクロマトグラフィーピーク面積が可能なプロテオミクスソフトウェアにインポートされます。抽出されたペプチドのイオンクロマトグラム(図4)を調べると、重ペプチドシグナルと軽ペプチドシグナルの相対比率が明らかになります。老化細胞における軽ペプチドシグナルに対する重質ペプチドシグナルの割合が低いほど、タンパク質代謝回転速度が遅いことを示し(図4A)、光に対する重いペプチドシグナルが高いほど、タンパク質代謝回転速度が速い(図4B)。標識されていないサンプルは、重いペプチドシグナルをほとんどまたはまったく示さないはずです。標識されていないサンプル中の見かけ上の重いペプチドシグナルはバックグラウンドノイズと見なされ、最終計算中に差し引かれます。すべての処理および標識条件における軽質ペプチドおよび重質ペプチドのクロマトグラフィーピーク面積の定量は、その後のタンパク質代謝回転率の計算および統計分析のためにエクスポートする必要があります。
単一時点分析を使用することで、タンパク質半減期の定量化は実行が簡単で、スプレッドシートで簡単に実行できます。 表3において、質量分析分析から同定された695個のタンパク質についての半減期を計算した。サンプル中の各タンパク質のタンパク質レベルの重同位体および軽同位体の存在量( 1)生データ シートの入力)から始めて、パーセント重同位体(比、Rと呼ばれる)が 、2)比H|と題されたシートで自動的に計算されます。H + L.このステップでは、重標識サンプルからのRを非標識サンプルから差し引くことによって正規化され、静止および老化の3連に対する最終的なRが生成されます。標識されていないサンプルは外因的に付加された重同位体を持つべきではないので、それらはバックグラウンドシグナルを除去するために使用されます。R から、k度 (離職率) は、次の式を使用して計算されます。
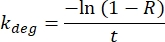
半減期(H、日数)は、静止期対照および老化期の3連( 3)半減期(日)と題するシート)中の各タンパク質について、以下の式を用いて決定される:

次に、これらの半減期を静止期と老化期の3連間で平均化して、各タンパク質の静止期と老化の平均半減期とp値を生成します。計算された半減期は、負の値に対してフィルタリングされます。これは、光標識された細胞(バックグラウンド)からの重いシグナルが、重い標識された細胞からの重いシグナルよりも大きい場合に発生します。このフィルタリングの結果、841から707のタンパク質が、ここに提示された結果に対して有効な半減期を有する同定された。
半減期は、静止制御細胞(log2FC )に対する老化のlog2比として報告され、火山プロットにプロットされます(図5)。例えば、 5)分析シートを見ると、凝固IIトロンビン受容体(F2R)タンパク質は、静止期細胞における半減期が0.51日(カラムB)であり、老化細胞における半減期が1.07日(カラムC)であり、p値が0.001の〜1.06(カラムD)のlog2FCを生じることがわかる。
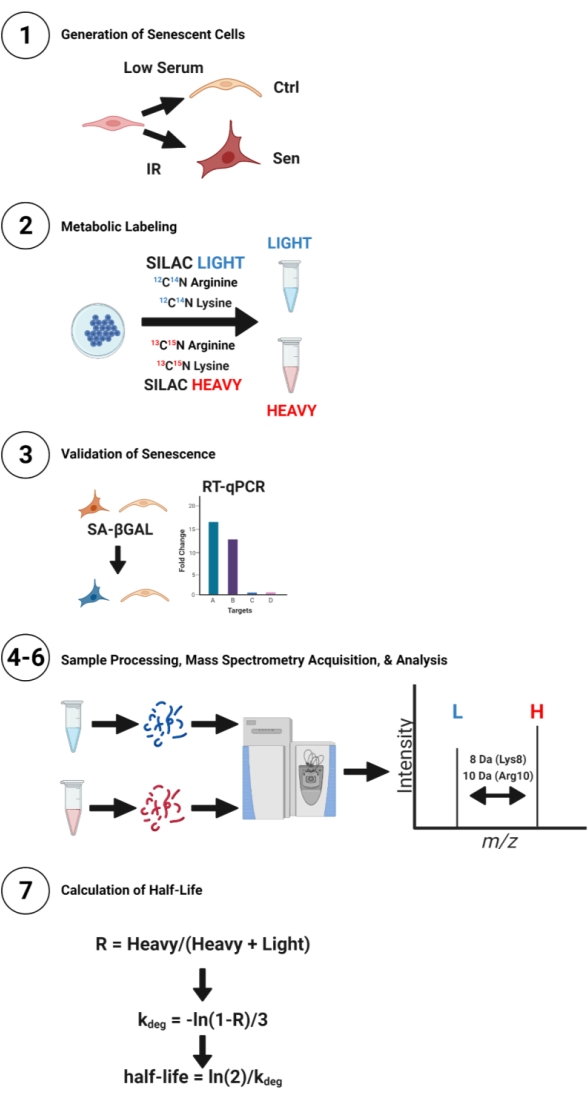
図1:老化および静止期の制御セルのpSILACワークフローの図。ヒトIMR-90線維芽細胞を用いて、タンパク質半減期の比較のために静止期(低血清)または老化期(IR)細胞培養物を調製した。次いで、細胞を、同位体アルギニンおよびリジンを有するSILACライトまたはSILACヘビー培地で3日間標識した。溶解物を細胞から抽出し、消化し、脱塩し、質量分析法を用いて分析した。重ペプチドおよび軽ペプチド同位体ピークは、それぞれ、新たに合成されたペプチドおよび既存のペプチドに対応する。半減期は指数関数的減衰の方程式を用いて計算した。この図の拡大版を表示するには、ここをクリックしてください。
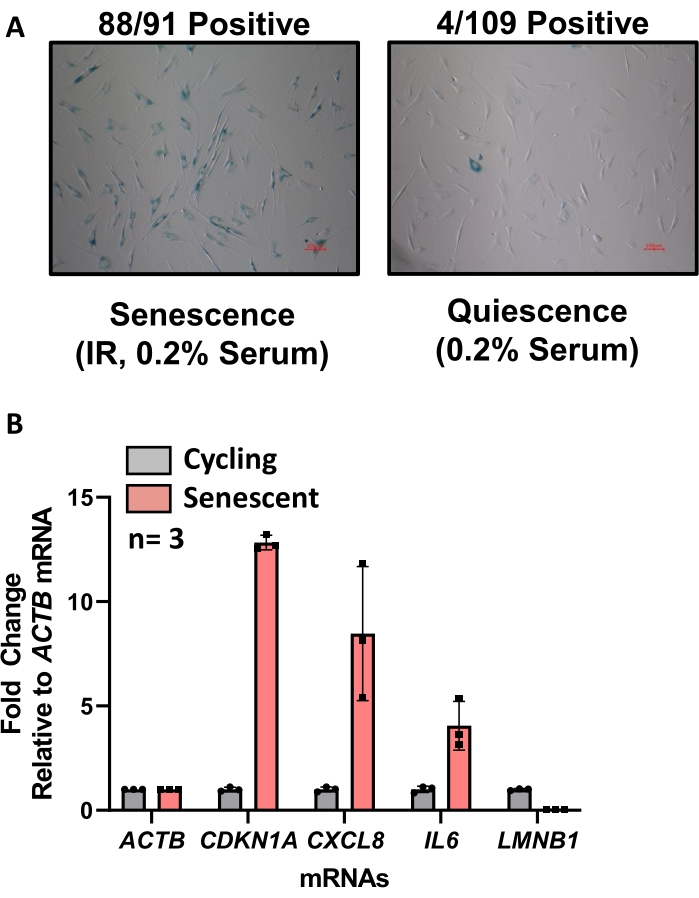
(A)老化細胞と静止期の細胞は、採取時に6ウェルプレートに再播種され、SA-βGal染色キットを使用してSA-βGalについて染色されます。細胞体の青色は老化に陽性である。画像は明視野で撮影され、倍率10倍のカラー、赤でサイズマーカーが表示されます。(B)無関係な実験からの老化細胞(赤色)およびサイクリング細胞(灰色)を比較するRT-qPCR分析。CDKN1A/p21、CXCL8、およびIL6 mRNAのレベルの上昇は、LMNB1 mRNAレベルの低下と同様に老化の指標である。この図の拡大版を表示するには、ここをクリックしてください。
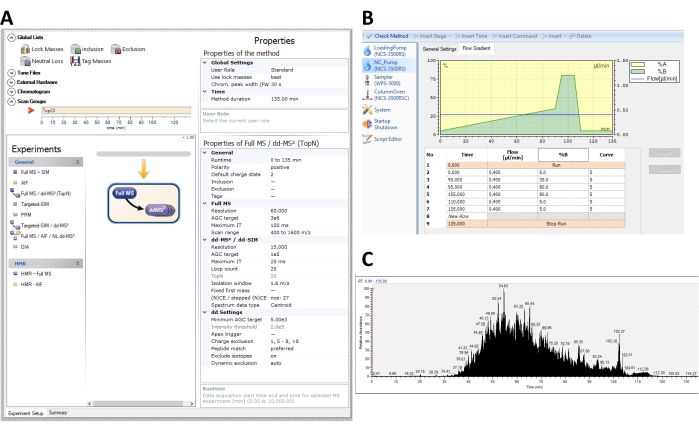
図3:Q-Exactive HF orbitrap質量分析計でのpSILAC培養物のデータ依存取得(DDA)スキャンおよび液体クロマトグラフィー勾配の代表的な方法。 (A)pSILAC実験からの全細胞溶解物のデータ依存分析のための機器ソフトウェアの推奨機器設定。(b)液体クロマトグラフィーフローグラジエント法設定例。ペプチドは、5%~35%の緩衝液B(0.2%ギ酸および99.8%アセトニトリル)の範囲の90分間の直線勾配にわたって溶出され、続いて80%緩衝液Bで10分間洗浄され、5%緩衝液Bで25分間平衡化される。この図の拡大版を表示するには、ここをクリックしてください。
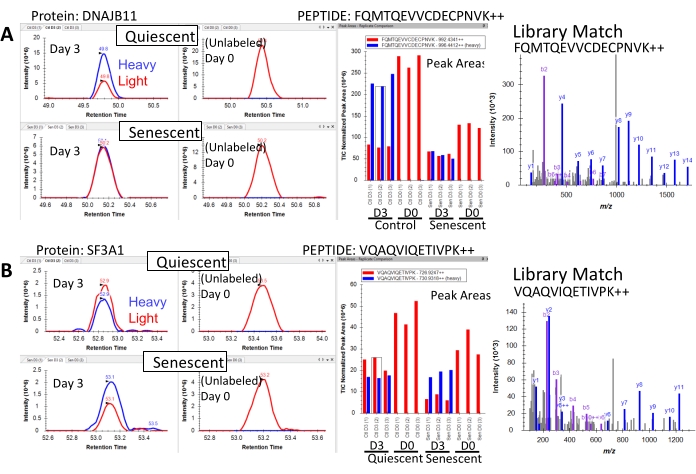
図4:老化中にターンオーバーが変化したペプチドの代表的な抽出イオンクロマトグラム 。 (A)老化細胞および非老化細胞におけるタンパク質DnaJホモログサブファミリーBメンバー11(DNAJB11)からのペプチドFQMTQEVVCDECPNVK++のクロマトグラフィーピーク面積。SILACの3日後、老化細胞は、軽ペプチド(赤色)に対する重同位体含有ペプチド(青色)のピーク面積の減少によって示されるように、静止期(非老化)細胞と比較して、このペプチドにより少ない重同位体をこのペプチドに組み込む。(b)老化細胞および非老化細胞におけるタンパク質スプライシング因子3aサブユニット1(SF3A1)由来のペプチドVQAQVIQETIVPK++のクロマトグラフィーピーク面積。SILACの3日後、老化細胞は、軽ペプチド(赤色)に対する重同位体含有ペプチド(青色)のピーク面積の減少によって示されるように、静止期(非老化)細胞と比較して、このペプチドにより高い割合の重同位体を組み込んでおり、このペプチドが老化細胞における代謝回転を増加させたことを示している。標識されていない(Day 0)条件は、予想通り、両方のペプチドに対する重同位体の取り込みを示さない。 この図の拡大版を表示するには、ここをクリックしてください。
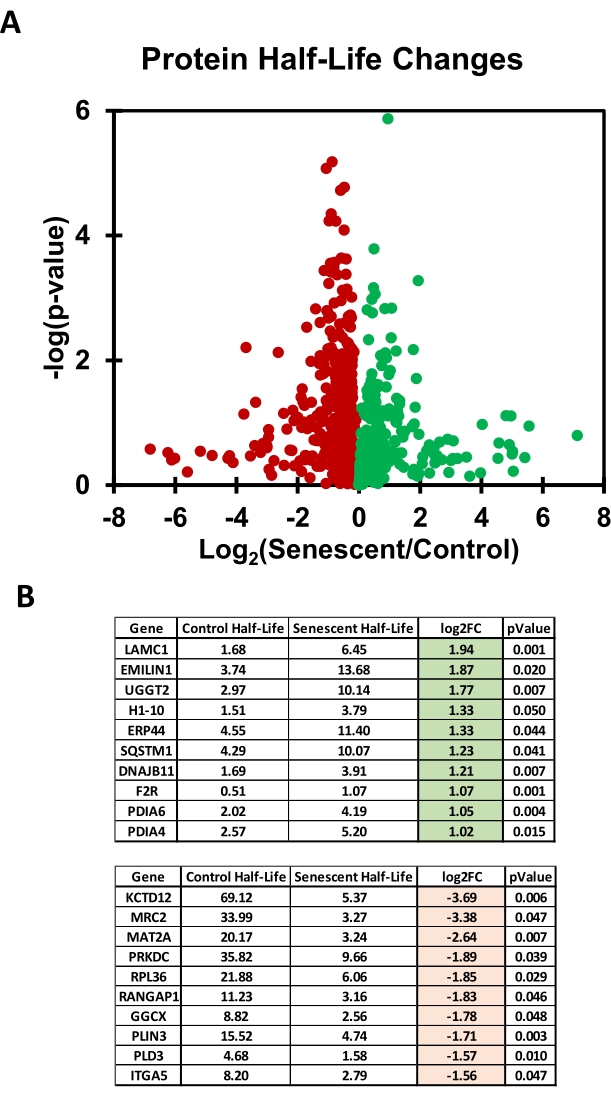
図5:pSILAC標識から決定された老化細胞および静止期細胞におけるタンパク質半減期の比較。 (a)695個の同定されたタンパク質のそれぞれについての老化/対照(静止)のlog2 比を表示する火山プロット;この実験では、ライトおよびヘビー標識媒体はグルコースおよびフェノールレッドを含まなかった。(B)静止期細胞対老化細胞において半減期が最も増加または減少した上位10個のタンパク質を示す表(それぞれ左および右)。 この図の拡大版を表示するには、ここをクリックしてください。
表1:このプロトコルで使用されるメディアとバッファこの表をダウンロードするには、ここをクリックしてください。
表2:このプロトコールで用いたRT-qPCRプライマー。この表をダウンロードするには、ここをクリックしてください。
表3:タンパク質半減期、フォールド変化、およびt検定を計算するためのSILAC分析ワークブック。この表をダウンロードするには、ここをクリックしてください。
ディスカッション
pSILACは、複数の細胞状態にわたるタンパク質代謝回転率のグローバルな定量を可能にする強力な技術です。この論文では、老化細胞と静止期細胞の調製、SILAC標識と採取、そして最終的にはDDA質量分析法を用いた分析のための指示を含む、老化細胞と静止期細胞の間のグローバルなタンパク質半減期を比較するためのpSILACの使用について詳述する。さらに、老化関連タンパク質をコードするmRNAのパネルのSA-βGalおよびRT-qPCR分析を用いた老化表現型の検証のための2段階試験が記載されている。記載された2つのアプローチによる老化の検証に加えて、老化の第3の検証は、プロテオミクスレベルで老化細胞と静止期細胞との間の既知の老化マーカーの変化を探すことによって、質量分析分析に続いて行うことができる。上昇すると予想される老化関連タンパク質には、p16、p21、およびBCL2が含まれ、とりわけ、他の場所に記載されている44、45。上述のプロトコルにおいて、静止期細胞に対する老化および血清飢餓の誘導に電離放射線が用いられた。老化の誘導のために、利用可能な複数の選択肢があり、それらの間に実質的な不均一性がある41,42,46。現在、「最も生理学的」と考えられる老化法は存在しないため、老化誘導物質の選択は主に実験の文脈に基づいている。しかし、老化に関する一般的な現象を述べることを目的とする実験では、少なくとも2つの異なる老化誘導物質を使用することが推奨される。老化パラダイムの範囲を議論することはこの論文の範囲を超えていますが、老化を誘発するいくつかの一般的な方法には、DNA損傷(IR、ドキソルビシン、複製的枯渇)の誘発、発癌性タンパク質(HRAS、BRAF)の発現、およびミトコンドリア機能の破壊が含まれます2。
老化誘導物質の選択に加えて、対照細胞の選択も同様に重要な考慮事項である。老化細胞は、定義上、無期限の増殖停止下にあるので、他の増殖停止細胞との比較がしばしば選択される。pSILACの場合、細胞周期停止細胞は複製せず、したがってタンパク質半減期計算に使いやすいため、一般に好ましい47。しかし、培養細胞はしばしば分裂細胞を保持するため、細胞周期停止を誘導するために使用される方法は、依然として増殖している細胞からの誤差を最小限に抑えるために、できるだけ均質な応答を生成することが重要である。pSILACを用いて細胞を循環させるためのタンパク質分解速度を計算するには、タンパク質が娘細胞27に希釈される速度を補償するための追加の計算が必要である。しかし、静止成長の停止自体が合併症がないわけではありません。細胞周期停止には、血清欠乏および接触阻害の2つの一般的な方法がある48。接触阻害によってすべての細胞を静止させることができるわけではないが、いくつかの線維芽細胞は培養の数日後に静止を示すことが示されている49。この方法は、老化細胞の比較に一般的に使用されるため、血清欠乏を使用したが、正確な比較のために老化細胞を同様に血清欠乏にする必要がある。血清はmTOR複合体を活性化し、したがって血清剥奪は細胞周期停止50に加えて細胞にいくつかの下流効果を有する。注目すべきことに、老化細胞は、血清欠乏またはmTOR阻害時に減少したSASPを示すことが示されている51、52。
pSILAC で考慮すべきもう 1 つの重要なポイントは、テストするタイム ポイントの数です。このプロトコルは、単一の時点(3日間の軽または重い標識)で細胞を収集し、結果として得られる分析を大幅に簡素化します。タイムポイントの選択は、実験の目的に基づいて行う必要があります。グローバル解析では、3日間でタンパク質の大部分を捕捉すると予想されますが、3日以内に完全にターンオーバーする(すべての光シグナルが失われる)短命タンパク質の半減期は、現時点では測定できません。逆に、3日間で代謝回転がほとんどない長寿命のタンパク質も定量化が難しく、多くの場合、非常に大きな半減期(数週間程度)を有するように見えますが、これは通常、重信号の蓄積がほとんどない結果にすぎません。より短い時点およびより長い時点での新規合成タンパク質の割合に対する重ペプチドシグナルおよび軽ペプチドシグナルの比率の非線形関係により、半減期の定量は、追加の標識時間点を追加することによって改善され得る。このプロトコルのように、2つの細胞状態間の相対比較では、おおよその半減期で十分かもしれませんが、追加のタイムポイントを使用して定量的精度を向上させることができます。
このプロトコルは、タンパク質代謝回転の非標的DDAベースの分析を実行する方法を説明しています。しかしながら、タンパク質代謝回転計算は、一般に、重ペプチド対および軽ペプチド対の相対的存在量を導出することができる任意の取得スキームに適用することができる。例えば、データ非依存集録(DIA/SWATH)などのMS2ベースの方法も、ターンオーバー率の計算にうまく適用することができる53。さらに、このプロトコルに記載されているもの以外のインストルメンテーションおよびソフトウェアパイプラインを使用して、DDA分析、タンパク質同定、およびタンパク質定量を実行できます。Skylineなどのタンパク質定量ソフトウェアプラットフォームを使用してペプチドピーク領域を抽出する場合は、ドキュメントワークスペースで抽出されたイオンクロマトグラムを手動で検査し、誤って統合されたピークと非定量ピークを特定し、それに応じてドキュメントをキュレーションすることをお勧めします。チュートリアルの広範なコレクションは、スカイライン(skyline.ms)のためにオンラインで利用可能です。
pSILACは、優れた多重化(プロテオームカバレッジ)とスループットにより、培養細胞におけるタンパク質半減期のグローバル定量に最も理想的な方法の1つです。pSILACは合成または分解の直接的な速度を提供しないが、軽いシグナルと重いシグナルの変化は因子の合流によるものであるため、pSILACは条件と異なる細胞型との比較に非常に有用である。低スループット法は、しばしば2つのタイプに分類される:1)タンパク質合成をブロックし、崩壊を監視するために添加後の時間間隔で回収するシクロヘキシミドによる細胞の処理、または2)タンパク質崩壊の阻害剤による細胞の処理およびタンパク質の蓄積を監視するための添加後の時間間隔での採取、したがってタンパク質崩壊速度を推測する。両方の方法の限界は、そのような治療が必然的に細胞生理機能に実質的な変化を引き起こすことである。対照的に、pSILACは実質的な介入を必要とせず、同位体アミノ酸は非同位体アミノ酸と単一の中性子によってのみ異なるため、理論的には細胞生理機能に検出可能な影響を及ぼさない。したがって、pSILACについてここで記載される方法は、非分裂細胞における最も生理学的タンパク質半減期のグローバル測定のための単純なプロトコールを表す。
タンパク質代謝回転の変化は、加齢、加齢関連疾患、神経変性、および長寿と密接な関係がある54,55。このプロトコルは、細胞培養におけるアミノ酸の安定同位体標識を使用して老化細胞におけるタンパク質代謝回転率を測定することによって、これらの関係を調査する方法を記載している。しかしながら、マウスなどの生物全体においてインビボでの老化および神経変性の文脈で研究を行う多数の類似の方法が存在する。実際、これらの研究は、加齢性疾患の文脈におけるタンパク質代謝回転率を測定することの重要性を強調している56,57,58,59。
この研究では、リボソームタンパク質と小胞体に存在するタンパク質が、それぞれ老化細胞における半減期の減少と増加を伴う2つのカテゴリーのタンパク質として際立っていた。決定的な結論を得るには定常状態レベルのさらなる分析が必要であるが、これらの結果はさらに、老化細胞がリボソームタンパク質の半減期の減少を通じて翻訳を一意に調節する可能性があることを示唆している。今後、安定同位体標識アプローチを適用して、マウスモデル における細胞老化とインビボでの 神経変性の関係を研究することは、このプロトコルによって記述される同位体標識アプローチの有望な延長となるでしょう。
開示事項
著者らは開示していない。
謝辞
この研究は、国立衛生研究所(NIH)と国立老化研究所(NIA)の学内研究プログラム(IRP)の支援を受けました。NBは、長寿推進助成金、および栄養補助食品局(ODS)奨学生プログラムによって支援されました。 図 1 は、 BioRender.com を使用して作成されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| アセトニトリル (LC-MS グレード) | Grainger | AH015 | |
| 重炭酸アンモニウム | Millipore-Sigma | 9830 | |
| 抗生物質-抗真菌薬 (100x) | ThermoFisher | 15240062 | |
| BCA Assay Kit | ThermoFisher | 23227 | |
| Dithiothreotol (DTT) | Sigma | D9779 | |
| DMEM、高グルコース、HEPES | ThermoFisher | 12430112 | |
| dNTP Mix | ThermoFisher | R0191 | |
| ウシ胎児血清、認定、熱不活化 | ThermoFisher | 10082147 | |
| ギ酸 | Sigma | 27001 | |
| Gammacel 40 Exactor | 細胞用ベストセラトロニクス | セシウム照射器 | |
| GlycoBlue | ThermoFisher | AM2238 | |
| ヨードアセトアミド (IAA) | Sigma | I1149 | 感光性 |
| IMR-90 一次肺線維芽細胞 | ATCC | CCL-186 | |
| iRT キット (インデックス付き保持時間) | Biognosys | Ki-3002-2 | インデックス付き保持時間 ペプチド標準 |
| イソプロパノール | サーモフィッシャー | 423835000 | |
| マスコット | マトリックス サイエンス | マスコットデーモン 2.8 | プロテオミクスデータベース検索ソフト |
| Maxima Reverse Transcritase (200 U/µL) | ThermoFisher | EP0742 | |
| MEM 非必須アミノ酸溶液 (100x) | ThermoFisher | 11140050 | |
| Nano LC System | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB 固相抽出軟骨 | Waters | 186000383 | |
| Orbitrap 質量分析計 | ThermoFisher | Q Exactive HF Orbitrap | |
| フェノール/クロロホルム/イソアミルアルコール (25:24:1)、100 mM EDTA、pH 8.0 | ThermoFisher | 327110025 | |
| Phosphate Buffered Saline (PBS) | ThermoFisher | 10010023 | |
| Pierce SILAC Protein Quantitation Kit (Trypsin) -DMEM | ThermoFisher | A33972 | |
| QuantStudio 6 Real-Time PCR System | ThermoFisher | ||
| Random Hexamer Primer | ThermoFisher | SO142 | |
| 老化 β-ガラクトシダーゼ染色キット | 細胞シグナル伝達 | 9860 | |
| スカイライン | ワシントン大学 | スカイライン-デイリー v21.2.1.424 | 無料でオープンソースの定量的プロテオミクスソフトウェア。 |
| www.skyline.ms Sonicatorウォーターバス | ブランソン | CPX-952-516R | |
| TRIzol 試薬 | サーモフィッシャー | 15596018 | 本文中ではフェノールと呼ばれ |
| 12605010 | |||
| 尿素 | サーモフィッシャー | 29700 | |
| 水(LC-MSグレード) | グレインジャー | AH365 |
参考文献
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
再版と許可
