このプロトコルは、パイロトーシス、アポトーシス、ネクロプトーシス、およびパンノプトーシスなどの細胞死経路の開始を決定するための感染、無菌の侮辱、および癌のin vitro および in vivo (マウス)モデルの両方に応答して、カスパーゼ活性化(カスパーゼ-1、カスパーゼ-3、カスパーゼ-7、カスパーゼ-8、カスパーゼ-9、およびカスパーゼ-11)を評価するための包括的な方法について説明しています。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
自然免疫は、病原体や無菌の侮辱に反応して重要な第一線の防御を提供します。この応答の重要な機構的要素は、感染または損傷した細胞を排除し、免疫応答を伝播するための自然免疫プログラム細胞死(PCD)の開始です。しかしながら、過剰なPCDは炎症および病理学と関連している。したがって、PCDの活性化と調節を理解することは、自然免疫応答を特徴付け、疾患スペクトル全体で新しい治療標的を特定するための中心的な側面です。
このプロトコルは、アポトーシス、パイロトーシス、ネクロプトーシス、パンノプトーシスなどの多様なPCD経路に関連することが多いシステイン依存性プロテアーゼのファミリーであるカスパーゼをモニタリングすることにより、自然免疫PCD活性化を特徴付ける方法を提供します。最初の報告では、カスパーゼ-2、カスパーゼ-8、カスパーゼ-9、およびカスパーゼ-10が開始カスパーゼとして、カスパーゼ-3、カスパーゼ-6、およびカスパーゼ-7がアポトーシスのエフェクターカスパーゼとして特徴付けられましたが、後の研究では、炎症性カスパーゼ、カスパーゼ-1、カスパーゼ-4、カスパーゼ-5、およびカスパーゼ-11がパイロトーシスを引き起こすことがわかりました。カスパーゼと他の自然免疫および細胞死分子との間には、以前に定義されたPCD経路全体で広範なクロストークがあることが現在知られており、自然免疫とPCDの機構的理解における重要な知識ギャップを特定し、PANoptosisの特性評価につながります。PANoptosisは、他の細胞死経路からのカスパーゼを含む成分を組み込んだPANoptosome複合体によって調節されるユニークな自然免疫炎症性PCD経路です。
ここでは、様々な刺激に応答したカスパーゼの活性化を評価するための方法が提供される。これらのメソッドは、活性化カスパーゼがタンパク質分解切断を受け、最適な抗体とブロッティング条件を使用したウェスタンブロッティングによって視覚化できるため、 in vitro および in vivoの両方でPCD経路の特性評価を可能にします。同じ細胞集団からの複数のカスパーゼの活性化の評価を可能にするプロトコルとウェスタンブロッティングワークフローが確立されており、PCDプロセスの包括的な特性評価を提供しています。この方法は、発生、恒常性、感染、炎症、および癌の研究分野に適用して、健康と疾患の細胞プロセス全体にわたるPCD経路を評価することができます。
概要
自然免疫系は、感染中および組織損傷や恒常性の変化などの無菌刺激に応答して、最初の防御線として機能します。細胞表面と細胞質にある自然免疫センサーは、病原体または損傷に関連する分子パターン(それぞれPAMPまたはDAMP)に応答し、炎症性シグナル伝達経路と細胞応答を引き起こします。自然免疫応答の重要なプロセスの1つは、感染または損傷した細胞を除去し、さらなる自然免疫応答および適応免疫応答を促進するための細胞死の誘導です。プログラム細胞死(PCD)は、種を超えて高度に保存されたプロセスであり、自然免疫メカニズムとしての進化的重要性を強調しています。
すべての細胞タイプで活性化できるいくつかの自然免疫PCD経路があります。カスパーゼは、高度に保存された細胞内システイン依存性プロテアーゼの重要なファミリーであり、従来の非炎症性アポトーシス経路だけでなく、パイロトーシス、ネクロプトーシス、パンノプトーシスなどの炎症性PCD経路を含む多くのPCD経路で重要です1,2,3,4,5 .明確に定義された11のヒトカスパーゼと10のマウスカスパーゼ、および機能的である可能性のある疑似カスパーゼがあり、ほとんどは、活性化のために切断を必要とする不活性な単量体または二量体のプロカスパーゼとして構成的に発現されます6,7。カスパーゼには、多タンパク質複合体の動員と形成のための重要なドメインも含まれています。これらには、カスパーゼ-1、カスパーゼ-2、カスパーゼ-4、カスパーゼ-5、カスパーゼ-9、およびカスパーゼ-11に見られるカスパーゼ活性化およびリクルートメントドメイン(CARD)、またはカスパーゼ-8およびカスパーゼ-10に見られるデスエフェクタードメイン(DED)が含まれます。カスパーゼは、タンパク質分解活性と多タンパク質複合体を形成する能力の両方を通じて、自然免疫PCDの重要な推進力です。
自然免疫PCDにおけるカスパーゼの役割は、開始カスパーゼであるカスパーゼ-2、カスパーゼ-8、カスパーゼ-9、およびカスパーゼ-10が実行者カスパーゼ、カスパーゼ-3、カスパーゼ-6、およびカスパーゼ-7を活性化して細胞死を引き起こすアポトーシスで最初に確認されました8,9,10,11,12。イニシエーターカスパーゼは、多様なシグナル伝達カスケードによって活性化することができる。外因性経路は細胞外リガンド誘発性死受容体シグナル伝達を介してカスパーゼ-8を活性化し、内因性経路はミトコンドリア完全性の破壊を介してカスパーゼ-9を活性化します13。活性化された開始カスパーゼは、実行者カスパーゼの大小の触媒サブユニットを分離するリンカーを切断して、それらの活性型を生成します。次に、死刑執行者のカスパーゼは基質を切断して細胞を分解し、DNA分解、膜ブレッブ、核断片化、およびアポトーシス体の放出をもたらします14,15。このプロセスは典型的には、エフェロサイトーシスによる死にかけている細胞の即時クリアランスと相まって、非溶解性および非炎症性の細胞死の形態で終わる16。しかし、エフェロサイトーシスの欠陥または食細胞の欠如は、アポトーシス細胞の蓄積につながる可能性があり、その後、溶解性および炎症性細胞死を経験します17,18。
カスパーゼ-1(ヒトおよびマウス)、カスパーゼ-4およびカスパーゼ-5(ヒト)、およびカスパーゼ-11(マウス)を含む炎症性カスパーゼは、パイロトーシスと呼ばれる炎症性自然免疫PCD(III-PCD)の形態の間に活性化されることが発見されている。カスパーゼ-1の活性化は、細胞質自然免疫センサー、アダプター分子(CARD[ASC]を含むアポトーシス関連斑点様タンパク質)、およびカスパーゼ-1を含む多タンパク質複合体であるインフラマソームの形成に関連しています。この複合体の形成により、カスパーゼ-1は近接媒介自己タンパク質分解を受けてその活性型を放出し、炎症誘発性サイトカインであるインターロイキン(IL)-1βおよびIL-18、および孔形成分子ガスダーミンD(GSDMD)を含む標的基質を切断することができます19,20,21,22,23。.カスパーゼ-11、カスパーゼ-4、およびカスパーゼ-5は、リポ多糖(LPS)19,20などのPAMPを感知した後、インフラマソームの上流形成なしにGSDMDを活性化することもできます。これらのカスパーゼは、細胞質LPSに結合すると、二量体化とそれに続くオリゴマー化および自己切断を受けて活性化され、非標準的なインフラマソーム活性化24,25,26およびカスパーゼ-1活性化を細胞内因性的に誘導してIL-1βおよびIL-18成熟を誘導する20。これらの炎症誘発性サイトカインの成熟と放出は、これらのカスパーゼを「炎症性」として特徴付けます。さらに、アポトーシスカスパーゼ-8はインフラマソームに局在し、アポトーシスプロセスとパイロトーシスプロセスの間のリンクを提供することがわかっています。研究によると、アポトーシスカスパーゼ-8は、ネクロプトーシスと呼ばれる別の形態のPCDを調節するためにも重要であることがわかっています。カスパーゼ-8の喪失は、自発的に受容体相互作用するセリン-スレオニンキナーゼ3(RIPK3)媒介混合系統キナーゼドメイン様シュードキナーゼ(MLKL)活性化をもたらし、ネクロトーシスのIII-PCD経路を駆動します27,28,29,30,31,32,33,34,35。
カスパーゼは歴史的に、カスパーゼが開始する細胞死の種類に基づいて「アポトーシス」または「炎症性」に分類されてきましたが、カスパーゼを介した自然免疫PCD経路の間に広範なクロストークがあることを示唆する証拠が増えています3,4。例えば、インフラマソーム由来の炎症性カスパーゼ−1は、その標準的な活性化部位34でアポトーシスカスパーゼ−7を切断する。カスパーゼ-1の活性化は、ポリ(ADP-リボース)ポリメラーゼ1(PARP1)36などのアポトーシス基質の切断にもつながります。GSDMDを欠く細胞では、カスパーゼ-1はカスパーゼ-3を切断することもできる37,38。さらに、標準的にアポトーシスカスパーゼ-3は、ガスデルミンE(GSDME)を切断してPCD17,18を誘導し、GSDMDを不活性型40に処理することもできます。さらに、インフラマソーム複合体へのカスパーゼ-8の動員が観察されており39、40、41、42、43、44、45、およびカスパーゼ-8は、標準的および非標準的なインフラマソーム活性化の重要な調節因子である39。また、多くの炎症状態においてカスパーゼ-8およびカスパーゼ-1には重複した冗長な役割があり、パイロトーシス、アポトーシス、およびネクロトーシス成分の活性化を特徴とする自然免疫PCDは、疾患スペクトル全体で発生します39、46、47、48、49、50。
炎症性カスパーゼとアポトーシスカスパーゼのクロストークに基づいて、自然免疫とPCDの機構的理解における重要なギャップが特定され、PANoptosisの発見につながりました。PANoptosisは、病原体、PAMP、DAMP、および恒常性の変化に応答して活性化され、他の細胞死経路からの成分を統合する多面的な高分子複合体であるPANoptosomesによって制御されるIII-PCDのユニークな形態です44,50,51,52,53,54,55.PANoptosisの生物学的効果の全体は、パイロトーシス、アポトーシス、またはネクロトーシスだけでは個別に説明できません3,4,35,36,39,46,47,48、PANoptosisは、カスパーゼ-1、カスパーゼ-11、カスパーゼ-8、カスパーゼ-9、カスパーゼ-3、および/またはカスパーゼ-7を含む複数のカスパーゼの活性化によって特徴付けられるためです。コンテキストに応じて44,48,49,50,51,52,53,54,56,57,58,59,60,61,62 .PANoptosisは、感染症や炎症性疾患、癌やがん治療にますます関与しています3,4,35,36,39,44,46,47,48,49,50,51,52,53 、54、56
、57,58,59,60,61,62,63,64,65,66。
アポトーシス、パイロトーシス、ネクロプトーシス、パンノプトーシスなど、細胞死経路全体でカスパーゼが果たす重要な役割を考えると、それらの活性化を特徴付け、PCD経路の完全な複雑さを理解するための技術を開発することが重要です。ここでのプロトコルは、細胞を刺激し、その後のカスパーゼの活性化を測定する方法を詳述しています(図1)。この方法は、カスパーゼの活性化に一般的に必要とされるカスパーゼのタンパク質分解切断を、カスパーゼの研究手段として活用しています。ウェスタンブロッティングにより、タンパク質サイズを決定できるため、不活性なプロカスパーゼとその活性化された切断型を明確に可視化して区別することができます。
このプロトコルの主な利点は、1)内因性細胞の単一集団から複数のカスパーゼの活性化を並行して評価して、PCD活性化をより正確に決定できること、および2)広範なトレーニングや高価な機器を必要としない比較的単純なラボ技術の使用です。これまでのプロトコルでは、ウェスタンブロッティング、蛍光レポーター、または抗体染色を使用して、培養上清、細胞および組織溶解物、全細胞中のカスパーゼ活性化を顕微鏡検査、およびin vivoでモニターしていました67、68、69、70、71ですが、これらの手法は通常、サンプル中の1つまたは2つのカスパーゼのみをモニターします。さらに、切断時に蛍光を発するカスパーゼ切断部位を含む合成ペプチド基質が、細胞または組織ライセート69におけるカスパーゼ活性化をモニターするために使用されてきたが、これらの基質はしばしば複数のカスパーゼによって切断される可能性があり、この系における個々のカスパーゼの特異的活性化を決定することは困難である。さらに、蛍光レポーターや他のタグベースの方法を使用するのではなく、ウェスタンブロッティングを使用することで、研究者はレポーター遺伝子を持つ特定の細胞株を作成するのではなく、内因性細胞を使用することができます。内因性細胞を使用することには、多くの不死化細胞株が重要な細胞死分子72,73が不足しているという事実を含む複数の利点があり、結果に影響を与える可能性があります。さらに、内因性細胞を使用することで、単一の系統ではなく、マクロファージ、上皮細胞、内皮細胞などの多様な細胞タイプの評価が可能になります。ウェスタンブロッティングは比較的シンプルで費用対効果の高い手法でもあり、大型で高価な装置や複雑なセットアップを必要とせずに、世界中のラボで実施できます。
このプロトコルは、カスパーゼの細胞死依存性および細胞死非依存性機能の両方を理解するために、他の炎症性シグナル伝達経路におけるそれらの足場の役割および機能を含む、生物学全体に広く適用可能である74。この方法を適用することで、自然免疫PCD経路と疾患および状態全体の炎症シグナル伝達の研究における統一されたアプローチが可能になり、このプロトコルを使用して、将来の治療戦略の開発に情報を提供する重要な調節プロセスと機構的接続を特定できます。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
動物の使用と手順は、動物の使用と世話に関するセントジュード小児研究病院委員会によって承認されました。
1.ソリューションの準備
- L929 コンディショニングメディアを準備します。
- プレート1×10⁶ L929細胞(材料の表を参照)を、50mLのL929培養培地(培地の調製については表1を参照)を含む182cm2組織培養フラスコに入れる。
- 5%CO2を含む37°Cの加湿インキュベーター内で細胞を増殖させる。
- 7日後、上清を回収し、0.45 μmフィルターを用いて濾過する。50 mLアリコートを準備します(凍結アリコートを-80°Cで最大1年間保存します)。
- 500 mLの骨髄由来マクロファージ(BMDM)培養培地を調製します(表1)。
- 500 mLのBMDM刺激培地を準備します(表1)。
- 感染用に500 mLの培地を準備します(表1)。
- 100 mLの1 M Trisバッファーを調製します(表1)。
- 4xドデシル硫酸ナトリウム(SDS)バッファーを調製します(表1)。
- 1 mLの1 M 1,4-ジチオスレイトールを調製します(DTT、 表1)。
- 40 mLのカスパーゼ溶解バッファーを調製します(表1)。
- 100 mLの1.5 M Trisバッファーを調製します(表1)。
- 100 mLの10%(重量/容量)SDS溶液を調製します(表1)。
- 50 mLの2x放射免疫沈降アッセイ(RIPA)バッファーを調製します(表1)。
- 5 mg/mL LPS溶液を調製します(表1)。
- 0.5 M ATP溶液を調製します(表1)。
- ウェスタンブロッティング溶液を調製します。
- 1 Lの5xランニングバッファストックを準備します(表1)。
- 1 Lの10xトランスファーバッファーストックを準備します(表1)。
- 1 Lのトリス緩衝生理食塩水をTween 20で調製します(TBST、 表1)。
- 100 mLの5%(wt / vol)スキムミルクブロッキング溶液を調製します(表1)。
- 一次抗体溶液を調製します。
- カスパーゼ-1一次抗体10 mLを調製します(表1)。
- カスパーゼ-11一次抗体10 mLを調製します(表1)。
- カスパーゼ-3一次抗体10 mLを調製します(表1)。
- カスパーゼ-7一次抗体10 mLを調製します(表1)。
- カスパーゼ-8一次抗体10 mLを調製します(表1)。
- カスパーゼ-9一次抗体10 mLを調製します(表1)。
- 10 mLのHRP結合β-アクチン一次抗体を調製します(表1)。
- 二次抗体溶液を調製します。
- 10 mLの抗ウサギ二次抗体を調製します(表1)。
- 10 mLの抗マウス二次抗体を調製します(表1)。
- 10 mLの抗ラット二次抗体を調製します(表1)。
2. 骨髄由来マクロファージの単離
注:このプロトコルでは、無傷のPCD経路を有する6〜10週齢の野生型マウス、またはPCD調節因子、エフェクター、または目的の分子が欠失または改変された変異マウスを使用することができる。
- ケージ容積の10%〜30%を毎分2〜3分間変位させる流速を有するCO2 チャンバー中でマウスを安楽死させる。次に、頸部脱臼などの二次安楽死法を行います。該当する場合は、すべての追加の施設、機関、および政府固有のガイドラインと規制に従ってください。
- マウスを解剖して後脚の骨を回収します。
- 腹部が露出するようにマウスを背中に固定します。70%(vol / vol)エタノールをスプレーして、後肢と腹部を滅菌します。
注意: エタノールは可燃性です。裸火から遠ざけてください。 - はさみを使用して腹部の正中線を切開します。大腿骨が見えるように脚に向かって切断を続けます。
- 右後脚を取り、皮膚を体から正中線に向かって引き離します。内転筋を正中線に向かって切断することにより、脚を体から切り離します。次に、股関節と脊椎の間の脚を切ります。次に、足首の遠位から足を切り取り、皮膚を剥がし、少し開いたハサミを使用してふくらはぎの組織を剥がして、骨から余分な組織を取り除きます。
- 70%(vol / vol)エタノールに浸したタオルの上に脚を置き、脛骨と大腿骨を解剖します。
- 脛骨と大腿骨をそれぞれ別々の鉗子で握ります。脛骨を膝関節の自然な方向にそっと押し付けます。これにより、脛骨が膝で壊れます。
- 必要に応じて鉗子と解剖ハサミを使用して、残っているぶら下がっている組織を取り除きます。脛骨をエタノールに浸したタオルの上に置いて、後で使用するために保存します。
- 膝からスナップして、同じ方法で大腿骨を収集します。
- 上記の手順3と4を繰り返して左脚を体から取り除き、脛骨と大腿骨を解剖します。
- 骨に70%(vol / vol)エタノールをスプレーします。
- 清潔な70%(vol / vol)エタノールに浸したタオルの上に骨を置き、タオルの肉質部分を絞り、タオルを骨にこすりつけて余分な組織を取り除き、骨を取り除きます。
- 腹部が露出するようにマウスを背中に固定します。70%(vol / vol)エタノールをスプレーして、後肢と腹部を滅菌します。
- 両方の大腿骨と両方の脛骨がきれいになったら、4つの骨すべてに70%(vol / vol)エタノールをスプレーします。滅菌ペトリ皿に骨を集め、皿内の培地を静かに振り回して、10 mLのBMDM培地ですすいでください。
- 10 mLシリンジに10 mLの新鮮なBMDM培地を満たし、25 Gの針を取り付けます。
- 鉗子を使用して脛骨を拾います。次に、足首関節を~45°の角度で切断します。
- 脛骨から骨髄を洗い流します。
- 脛骨の細い方の端を下に向けて、50mLのチューブで脛骨を保持します。充填されたシリンジから脛骨の上にメディアを分注します。
- 骨髄の上端に針を(最初は穏やかに)挿入し、メディアを分注します。
- 針を外してから、もう一度挿入します。短い高圧プッシュを使用してメディアを分注し、針を骨髄に移動します。
- 培地が骨の底から流出し始めたら、短い高圧プッシュを使用して細胞を洗い流し続けます。このプロセス中に骨の色を監視し、骨が白くなったら廃棄します。
- 両方の脛骨に対してこれを行います。
- 大腿骨に対して上記の手順5と6を繰り返し、脛骨が足首関節で切断されたため、股関節で切断します。骨髄を洗い流すのと同じ50 mLチューブを使用してBMDM培地を回収します。
- 4つの骨がすべて洗い流されたら、50 mLのチューブから10 mLシリンジの18 G針を通して骨髄と培地を上下に3回吸引し、毎回チューブの側面をすすぎ、骨髄を分散させます。
- BMDM培地を使用して、50 mLチューブの最終容量を30 mLに調整し、細胞が完全に懸濁されていることを確認します。
- 70 μmのセルストレーナーを使用して、50 mLチューブからBMDM培地をろ過します。
- 得られた骨髄前駆細胞を含む細胞懸濁液を、それぞれに10 mL(または~20 × 106 細胞)を加えて3つの150 mm組織培養皿にプレートします。次に、各ディッシュにさらに10 mLのBMDM培地を追加します。37°Cの加湿インキュベーターでインキュベートします。
3. 実験のためのBMDMとめっきの差別化
- 播種した骨髄前駆細胞を37°Cで3日間インキュベートします。次に、各ディッシュを取り出し、さらに5〜8 mLのBMDM培養培地を追加します(表1)。37°Cでインキュベーターに戻します。
- 最初のプレーティング後5日目に、各ディッシュを取り出し、さらに5 mLのBMDM培地を追加します。37°Cでインキュベーターに戻します。
- 6日目に、各皿を取り除き、メディアを廃棄します。その後、10mLの冷(4°Cで保存)PBSを加えて1回洗浄する。10mLの冷たいPBS洗浄液を廃棄します。次に、10 mLの新鮮で冷たいPBSを各皿に加え、各皿を氷上で5分間インキュベートします。
- セルスクレーパーを使用して、3つのディッシュすべてから細胞を1つの50 mLチューブにそっとこすり落とします。細胞を270 × g 、4°Cで5分間静かにスピンダウンします。その後、上清を廃棄する。
- 20 mLのBMDM培地を加え、上下にピペットでペレットを再懸濁し、細胞をカウントします。
注:各マウスは約60 × 10 6-100 ×10 6細胞を生成すると予想されます。 - 目的の in vitro 細胞死/炎症刺激アッセイ用の12ウェルプレートレイアウトを計画します。ウェルあたり1×106 セルをプレート化することを計画します。計画された各刺激について、少なくとも3つの生物学的複製を含み、カスパーゼ溶解バッファーで回収されるウェルの1セットと、RIPAバッファーで回収されるウェルの第2セットをプレートします。
- プレート1×10⁶ 細胞を1ウェル当たり1mLのBMDM培養培地で12ウェルプレートに入れる。37°Cの加湿インキュベーターで一晩培養してから、細胞死/炎症の評価に進みます。一晩インキュベートした後、培地を取り出し、1 mLの温かい(37°C)PBSを各ウェルに加えて細胞を洗浄します。
- PBS洗浄液を取り出し、抗生物質を含むBMDM刺激培地(非細菌刺激を行う場合)または抗生物質を含まないBMDM刺激培地(細菌刺激を行う場合)を500μL加えます(表1)。 in vitro 刺激/感染のためにステップ4に進む前に、2時間インキュベートします。
4.細胞を刺激または感染させる
注意: このプロトコルに含まれる薬剤は潜在的に病原性であり、関連する機関および政府当局の承認を得て、バイオセーフティレベル2(BSL2)施設で適切な予防措置を講じて取り扱う必要があります。
- BMDMを刺激して、目的のトリガーで細胞死を活性化します。
注:このプロトコルの目的のために、インフルエンザAウイルス(IAV)、単純ヘルペスウイルス1(HSV1)、 Francisella novicida、およびLPS + ATPは説明に使用されますが、他のトリガーを使用することもできます。- 刺激例1:IAV(A/プエルトリコ/8/34、H1N1 [PR8])に感染する(Hoffmannら75に従って構築;感染多重度[MOI]決定のためのウイルス力価は、MDCK細胞のプラークアッセイによって計算される):
- 式 (1) と式 (2) を使用して、20 プラーク形成単位 (PFU) の感染多重度 (MOI) での感染に必要なウイルスの量を計算します。

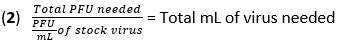
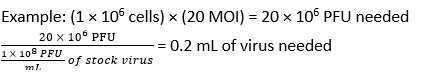
- BMDMから培地を取り出し、500 μLのPBSで細胞を1回洗浄します。熱不活化(HI)-FBSを含まない高グルコースDMEM中のIAV(20 MOI)450 μLを各ウェルに加えます。プレートを加湿インキュベーター内で37°Cで1時間インキュベートし、吸収させます。
- プレートを取り外し、50 μLのHI-FBSを追加します。プレートを37°Cのインキュベーターに戻します。 合計12時間インキュベートします。
- 式 (1) と式 (2) を使用して、20 プラーク形成単位 (PFU) の感染多重度 (MOI) での感染に必要なウイルスの量を計算します。
- 刺激例2:HSV1(HF株;前述のように培養44;MOI決定のためのウイルス力価をVero細胞におけるプラークアッセイにより計算する)に感染させる:
- 上記のIAV感染セクションのステップ1の式(1)と式(2)を使用して、MOI10PFUでの感染に必要なウイルスの量を計算します。
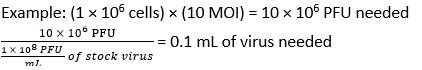
- BMDM から培地を取り出し、HI-FBS を含まない高グルコース DMEM 中の HSV1 (MOI 10) を 450 μL ずつ各ウェルに加えます。プレートを加湿インキュベーター内で37°Cで1時間インキュベートし、吸収させます。
- プレートを取り外し、50 μLのHI-FBSを加えます。プレートを37°Cのインキュベーターに戻します。 合計12時間インキュベートします。
- 上記のIAV感染セクションのステップ1の式(1)と式(2)を使用して、MOI10PFUでの感染に必要なウイルスの量を計算します。
- 刺激例3:F.ノビシダ(U112株; 0.2 %L-システインを添加したBBLトリプチカーゼ大豆ブロス中で37°Cの好気的条件下で前述のように44を一晩培養した。次に、細菌を37°Cで1:10の比率で新鮮な培地でさらに4時間継代培養してから、新鮮な培地をブランクとして使用して600nmでの光学密度(OD)を取ります。OD値1は、mLあたり1×10⁹ コロニー形成単位(CFU)に相当します。
- 式 (3) と式 (4) を使用して、MOI 50 CFU での感染に必要な F. novicida の量を計算します。

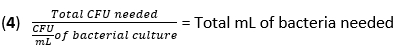
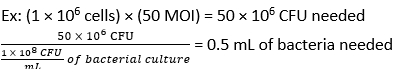
- BMDM から培地を取り出し、抗生物質を含まない BMDM 刺激培地中の F. novicida (MOI 50) を 500 μL ずつ各ウェルに加えます。プレートを加湿インキュベーター内で37°Cで4時間インキュベートし、吸収させます。
- 加温した(37°C)PBSで細胞を3回洗浄し、50 μg/mLのゲンタマイシンを含む500 μLのBMDM刺激培地を加えます。プレートを37°Cのインキュベーターに戻します。 一晩(16時間)インキュベートします。
- 式 (3) と式 (4) を使用して、MOI 50 CFU での感染に必要な F. novicida の量を計算します。
- 刺激例4:LPS + ATPで刺激します。
- BMDM から培地を取り出し、100 ng/mL LPS を含む抗生物質を含む BMDM 刺激培地 500 μL (表 1) を各ウェルに追加します。プレートを加湿インキュベーター内で37°Cで3.5時間インキュベートします。
- 5 μLの0.5 M ATPストック溶液(表1)を各ウェルに加えます。プレートを37°Cのインキュベーターに戻します。 30分間インキュベートします。
- 刺激例1:IAV(A/プエルトリコ/8/34、H1N1 [PR8])に感染する(Hoffmannら75に従って構築;感染多重度[MOI]決定のためのウイルス力価は、MDCK細胞のプラークアッセイによって計算される):
5.カスパーゼウェスタンブロットに使用する上清とタンパク質ライセートを組み合わせた収集
- 4時間、12時間、または16時間のインキュベーション後(特定のタイミングは使用するトリガーによって異なります)、インキュベーターからプレートを取り外します。
- 上清150μLを除去します。これを破棄するか、他の上清分析(酵素結合免疫吸着アッセイ[ELISA]など)のために保存します。残った上清は取り除かないでください。
- ウェルあたり50 μLのカスパーゼ溶解バッファー+ 100 μLの4x SDSバッファーを組み合わせて、タンパク質収集溶液を作成します(表1)。次に、150 μLのミックスを各ウェルに加えます。
- 各ウェルについて、混合物を上下にピペットで動かし、溶解した細胞と上清を収集します。ピペッティング中は、ウェルの底をピペットチップでこすり、細胞を破壊します。スクレイピングとピペッティングの後、タンパク質ライセートを標識された1.5 mLチューブに集めます。
- ヒートブロックを使用して、すべてのチューブを100°Cに12分間加熱します。
- 室温で14,500 × g で30秒間遠心分離することにより、不溶性成分をペレット化します。
注:これは一時停止ポイントです–上清とタンパク質ライセートを組み合わせたタンパク質は、すぐに使用するか、-20°Cで最大2か月間、または-80°Cで最大6か月間保存して、使用できるようになるまで保存できます。
6.カスパーゼウェスタンブロットに使用するタンパク質ライセートの収集
- 4時間、12時間、または16時間のインキュベーション後(特定のタイミングは使用するトリガーによって異なります)、インキュベーターからプレートを取り外します。すべての上清を取り除きます。これを破棄するか、他の上清分析(ELISAなど)のために保存します。
- 2x RIPAストック溶液(表1)を等量の脱イオン水で希釈して、1x RIPAバッファーを作成します。次に、ホスファターゼ阻害剤錠剤1錠とプロテアーゼ阻害剤錠剤1錠を加え、溶解させます。150 μLの1x RIPAバッファーと50 μLの4x SDSを各ウェルに加えます。
- 各ウェルについて、混合物を上下にピペットで動かして、溶解した細胞を収集します。ピペッティング中は、ウェルの底をピペットチップでこすり、細胞を破壊します。スクレイピングとピペッティングの後、タンパク質ライセートを標識された1.5 mLチューブに集めます。
- ヒートブロックを使用して、すべてのチューブを100°Cに12分間加熱します。
- 室温で14,500 × g で30秒間遠心分離することにより、不溶性成分をペレット化します。
注:これは一時停止ポイントです – タンパク質ライセートはすぐに使用することも、使用できるようになるまで-20°Cまたは-80°Cで保存することもできます。
7.上記の手順に従ってBMDMから採取したライセートまたは組織ホモジネートから採取したライセートを使用してウェスタンブロッティングを実行します
注意: 組織を使用する場合は、手または動力駆動の組織ホモジナイザーを介して均質化できます。シンプソン76によるプロトコルは、組織ホモジナイゼーションの詳細な説明を提供する。
- 1xランニングバッファーの準備:200 mLの5xランニングバッファーストック(表1)と800 mLの脱イオン水を組み合わせます。この 1x 実行バッファーは、各実験の直前に作成します。
- 10ウェルを有する12%(wt/vol)ポリアクリルアミドゲルを用いて電気泳動装置を調製する。電気泳動装置に1xランニングバッファーを充填する。次に、ゲルコームを取り外します。
注:各サンプルのカスパーゼ-1、カスパーゼ-11、カスパーゼ-3、カスパーゼ-7、カスパーゼ-8、およびカスパーゼ-9を分析するには、6つのゲルが必要になります。 - カスパーゼ-1、カスパーゼ-3、カスパーゼ-7、およびカスパーゼ-8ブロットの場合、カスパーゼ溶解バッファーまたは組織ホモジネートで上清とタンパク質ライセートを組み合わせた30 μLを使用する予定です。カスパーゼ-11およびカスパーゼ-9ブロットの場合、RIPAバッファーまたは組織ホモジネート中の20 μLのタンパク質ライセートの使用を計画します。サンプルが-20°Cまたは-80°Cで保存されている場合は、最初に氷上で解凍します。
- すべてのサンプルについて、100°Cで5分間加熱し、14,500 × g で4°Cで30秒間遠心分離してからロードします。次に、20または30 μLのサンプルを各レーンにゆっくりとロードします。サンプルが他のレーンにオーバーフローしないようにします。6つのカスパーゼすべてを一度に評価するには、同じ手順を使用して、適切なサンプルを6つのゲルのそれぞれにロードします。
- 電気泳動装置を電源に接続します。次に、電力を80 Vに設定して20分間ゲルの実行を開始し、次に電力を130 Vに45〜60分間調整します。
- 染料の前面を注意深く観察し、染料の前面がゲルの下部にあるが、まだゲルから押し出されていない場合は電源を切ります。
- ゲルのランニング中に、700 mLの脱イオン水、100 mLの10xトランスファーバッファーストック(表1)、および200 mLのメタノールを組み合わせて、1xトランスファーバッファーを調製します。毎回1xソリューションを新鮮にします。
注意: メタノールは可燃性であるため、注意してください。直火から離して移送バッファーの準備を行います。 - ゲルリリーバーを用いて電気泳動装置からゲルを穏やかに取り出す。
- ゲルごとに1つのトランスファースタックを設定します。
- PVDFメンブレンをメタノールに1分間浸して活性化します。
- 2枚のろ紙、ゲル、およびPVDFメンブレンを転写バッファーで5分間プリウェットします。この5分間のインキュベーションの間、PVDFメンブレンとゲルを別々の容器に保管してください。
- セミドライシステムでトランスファースタックを組み立てます。下部の白金陽極側から始めて、1枚のろ紙、PVDF膜、ゲル、最後に1枚のろ紙を置きます。層間の気泡をゆっくりとロールアウトまたは押し出し、システムの上部を閉じます。先に進む前に、安全カバーが固定されていることを確認してください。
- 電源に接続します。電源を25Vに設定し、45分間待ちます。
- 転送が完了したら、トランスファースタックを分解し、メンブレンを収集します。正方形のペトリ皿(インキュベーショントレイ)に入れます。
- 15 mLの5%(wt/vol)スキムミルク溶液を加えてメンブレンブロッキングを実行します(表1)。メンブレンをロッキングシェーカーで室温で50rpmから70rpmで1時間インキュベートします。
注:これは一時停止ポイントであり、メンブレンは1時間後に除去するか、4°Cのブロッキング溶液に一晩保存することができます。 - 1時間または一晩インキュベーションした後、ブロッキング溶液を取り除きます。希釈した抗体溶液(抗カスパーゼ-1抗体、抗カスパーゼ-11抗体、抗カスパーゼ-3抗体と抗切断カスパーゼ-3の複合抗体、抗カスパーゼ-7抗体と抗切断カスパーゼ-7抗体の組み合わせ、抗カスパーゼ-8抗体と抗切断カスパーゼ-8の複合抗体、または抗カスパーゼ-9抗体)を10 mL加えます(表1)。50rpm〜70rpmのロッキングシェーカーに置き、室温で2時間または4°Cで一晩(16時間)インキュベートします。
- 抗体溶液を収集し(最大3倍まで再利用または廃棄)、15 mLのTBST(表1)をロッキングシェーカーのメンブレンに加え、室温で50 rpm〜70 rpmで10分間洗浄します。TBSTを破棄します。
- ステップ14に続いて15mLのTBSTで合計3回洗浄を繰り返します。
- 希釈した二次HRP結合抗体溶液10 mLを追加します(カスパーゼ-3、カスパーゼ-7、カスパーゼ-8、またはカスパーゼ-9に対する一次抗体で染色されたブロットの場合は抗ウサギ、カスパーゼ-1に対する一次抗体で染色されたブロットの場合は抗マウス、カスパーゼ-11に対する一次抗体で染色されたブロットの場合は抗ラット)(表1)。ロッキングシェーカーで室温で50rpmから70rpmで1時間インキュベートします。
- 抗体溶液を取り出し、15 mLのTBSTをメンブレンに加え、50 rpm〜70 rpmで室温で10分間ロッキングシェーカーで洗浄します。TBSTを破棄します。
- ステップ17に続いて15mLのTBSTで合計3回洗浄を繰り返します。
- 10 mLの高感度HRP基質をメンブレンに加えます。室温で暗所に1分間置きます。
- 基板から膜を取り外します。下の位置にアクセサリの白いトランストレイを挿入した化学発光イメージャーを使用して、イメージングに直接進みます。自動露光モード(通常、露光時間の~1〜2分)を使用して膜を露光します。
- カスパーゼ-9またはカスパーゼ-11ブロッティングのメンブレン(すなわち、RIPAライセートサンプルを含むメンブレン)を使用して、10 mLのストリッピングバッファーを追加し、ロッキングシェーカーで室温で50 rpm〜70 rpmで5分間インキュベートします。
- ストリッピングバッファーを廃棄し、15 mLのTBSTをロッキングシェーカーでメンブレンに加え、室温で50 rpm〜70 rpmで10分間洗浄します。TBSTを破棄します。
- ステップ22に続いて15mLのTBSTで合計3回洗浄を繰り返します。
- 15 mLの5%(wt/vol)スキムミルク溶液を加えてメンブレンブロッキングを実行します。メンブレンをロッキングシェーカーで室温で50rpmから70rpmで1時間インキュベートします。
注:これは一時停止ポイントであり、メンブレンは1時間後に除去するか、4°Cのブロッキング溶液に一晩保存することができます。 - 1時間または一晩インキュベーションした後、ブロッキング溶液を取り除きます。希釈した抗βアクチン(HRP結合)抗体溶液10 mLを加えます。50rpmから70rpmのロッキングシェーカーに置き、室温で1.5時間インキュベートします。
- 抗体溶液を取り出し、15 mLのTBSTをロッキングシェーカーのメンブレンに加え、室温で50 rpm〜70 rpmで10分間洗浄します。TBSTを破棄します。
- ステップ26に続いて15mLのTBSTで合計3回洗浄を繰り返します。
- 10 mLの標準感度HRP基質をメンブレンに加えます。室温で暗所に1分間置きます。
- 下の位置にアクセサリの白いトランストレイを挿入した化学発光イメージャーを使用して、イメージングに直接進みます。 自動露出モード (通常 <1分の露光時間)を使用して膜を露光します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
PANoptosisは、多数の細菌、ウイルス、真菌の感染やその他の炎症性刺激に応答して、ならびに癌細胞で観察されています44,48,49,50,51,52,53,54,56,57,58,60,61,62
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
カスパーゼの切断と活性化をモニタリングすることで、自然免疫応答の一部としての自然免疫PCD活性化の最も包括的な画像の1つが得られます。ここに記載のプロトコルは、IAV、HSV1、およびF.ノビシダ感染および滅菌トリガーLPS + ATPに応答してカスパーゼ活性化をモニターする戦略を示すが、多数の他の刺激がPCDを誘導することができ、いくつかの刊行物44、48、49、50、51、52、53、54、56に示されているように、この方法で使用することができ
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
T.-D.K.はファイザーのコンサルタントです。
謝辞
カンネガンティ研究室のメンバーのコメントや提案に感謝し、科学編集のサポートをしてくれたJ.ガレット博士に感謝します。私たちの研究室での作業は、国立衛生研究所(NIH)の助成金AI101935、AI124346、AI160179、AR056296、およびCA253095(T.-D.K.)およびアメリカのレバノンシリア関連慈善団体(T.-D.K.)によってサポートされています。内容は著者の責任であり、必ずしも国立衛生研究所の公式見解を表すものではありません。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.45 μ;m フィルター | ミリポア | SCHVU05RE | |
| 10 mL シリンジ | BD Biosciences | 309604 | |
| 12% ポリアクリルアミドゲル 10 ウェル | バイオ・ラッド | 4561043 | |
| 12ウェルプレート | コーニング | 07-200-82 | |
| 18G 針 | BDバイオサイエンス305195 | ||
| 25G針 | BDバイオサイエンス | 305122 | |
| 50mLチューブ | フィッシャーサイエンティフィック | 50-809-218 | |
| 70 μmセルストレーナー | コーニング | 431751 | |
| 150 mm 組織培養皿 | コーニング | 430597 | |
| 182cm2 組織培養フラスコ | ジェネシー サイエンティフィック | 25-211 | |
| アクセサリー ホワイト トランストレイ | サイティバ | 29-0834-18 | |
| アンチ–カスパーゼ-1抗体 | AdipoGen | AG-20B-0042-C100 | |
| Anti–カスパーゼ-11抗体 | Novus Biologicals | NB120-10454 | |
| 抗...カスパーゼ-3抗体 | Cell Signaling Technology | 9662 | |
| Anti–カスパーゼ-7抗体 | Cell Signaling Technology | 9492 | |
| Anti–カスパーゼ-8抗体 | Cell Signaling Technology | 4927 | |
| Anti–カスパーゼ-9抗体 | Cell Signaling Technology | 9504 | |
| Anti–切断されたカスパーゼ-3抗体 | 細胞シグナル伝達技術 | 9661 | |
| アンチ–切断されたカスパーゼ-7抗体 | 細胞シグナル伝達技術 | 9491 | |
| アンチ–切断されたカスパーゼ-8抗体 | Cell Signaling Technology | 8592 | |
| 抗マウスHRP標識二次抗体 | Jackson ImmunoResearch Laboratories | 315-035-047 | |
| 抗ウサギHRP標識二次抗体 | Jackson ImmunoResearch Laboratories | 111-035-047 | |
| 抗ラットHRP標識二次抗体 | ジャクソン免疫研究所 | 112-035-003 | |
| 抗–β-アクチン抗体 (C4) HRP | Santa Cruz | sc-47778 HRP | |
| ATP | InvivoGen | tlrl-atpl | |
| BBL トリプチカーゼ 大豆ブロス | BD Biosciences | 211768 | |
| ビーズバス | Chemglass Life Sciences | CLS-4598-009 | |
| バイオフォトメーター D30 | Eppendorf | 6133000010 | |
| BME | Sigma | M6250 | |
| ブロモフェノールブルー | Sigma | BO126 | |
| セルスクレーパー | CellTreat Scientific Products | 229315 | |
| Chemiluminescence Imager (Amersham 600) | サイティバ | 29083461 | |
| CO2 チャンバー | VetEquip | 901703 | |
| キュベット | フィッシャー・サイエンティフィ | 14-955-129 | |
| 解剖ハサミ | モフィッシャーサイエンティフィック | 221S | |
| DMEM | サーモフィッシャーサイエンティフィック | 11995-073 | |
| DTT | シグマ | 43815 | |
| 電気泳動装置 | バイオ・ラッド | 1658004 | |
| エタノール | Pharmco | 111000200 | |
| ウシ胎児血清 | Biowest | S1620 | |
| 濾紙 | Bio-Rad | 1703965 | |
| Forceps | Fisher Scientific | 22-327379 | |
| Francisella novicida (U112 strain) | BEI Resources | NR-13 | |
| Gel releaser | バイオ・ラッド | 1653320 | |
| ゲンタマイシン | Gibco | 15750060 | |
| グリセロール | Sigma | G7893 | |
| グリシン | Sigma | G8898 | |
| HCl | Sigma | H9892 | |
| ヒートブロック | Fisher Scientific | 23-043-160 | |
| 単純ヘルペスウイルス 1 (HF 株) | ATCC | VR-260 | |
| 高グルコースDMEM | シグマ | D6171 | |
| 人間の反–カスパーゼ-1抗体 | R&Dシステム | MAB6215 | |
| 人間反–カスパーゼ-8抗体 | Enzo | ALX-804-242 | |
| 加湿インキュベーター | サーモフィッシャーサイエンティフィック | 51026282 | |
| 画像解析ソフトウェア | ImageJ | v1.53a | |
| IMDM | サーモフィッシャーサイエンティフィック | 12440-053 | |
| インフルエンザAウイルス(A/プエルトリコ/8/34, H1N1 [PR8]) | Hoffmann et al. | ||
| L929細胞 | ATCC | CCL-1 | 細胞株 L929馴染培地 |
| L-システインを作製 | サーモフィッシャーサイエンティフィック | BP376-100 | |
| Luminata Forte Western HRP 基質 | Millipore | WBLUF0500 | 標準感度 HRP 基質 |
| MDCK 細胞 | IAV ウイルス力価測定用 | ATCC | CCL-34 |
| メタノール | シグマ | 322415 | |
| 微量遠心機 | サーモフィッシャーサイエンティフィック | 75002401 | |
| 非必須アミノ酸 | Gibco | 11140050 | |
| 脱脂粉乳 | Kroger | ||
| NP-40 溶液 | シグマ | 492016 | |
| PBS | サーモフィッシャーサイエンティフィック | 10010023 | |
| ペニシリンとストレプトマイシン | Sigma | P4333 | |
| シャー | フィッシャー・サイエンティフィ | 07-202-011 | |
| PhosSTOP | ロシュ | PHOSS-RO | |
| 電源 | バイオ・ラッド | 164-5052 | |
| プロテアーゼ阻害剤錠 | Sigma | S8820 | |
| PVDF メンブレン | ミリポア | IPVH00010 | |
| ロッキングシェーカー | Labnet | S2035-E | |
| SDS Sigma | L3771 | ||
| 塩化ナトリウム | シグマ | S9888 | |
| オキシコール酸ナトリウム | シグマ | 30970 | |
| 水酸化ナトリウム | シグマ | 72068 | |
| ピルビン酸ナトリウム | Gibco | 11360-070 | |
| スクエアシャーレ | フィッシャーサイエンティフィック | FB0875711A | |
| ストリッピングバッファー | サーモフィッシャーサイエンティフィック | 21059 | |
| スーパーシグナルフェムト HRP 基質 | サーモフィッシャーサイエンティフィック | 34580 | 高感度 HRP 基質 |
| 卓上遠心分離機 | サーモフィッシャーサイエンティフィック | 75004524 | |
| トランスブロットセミドライシステム | バイオ・ラッド | 170-3940 | |
| トリス | シグマ | TRIS-RO | |
| Tween 20 | Sigma | P1379 | |
| 大腸菌由来の超高純度リポ多糖(LPS) 0111:B4 | InvivoGen | tlrl-3pelps Vero | |
| cells | ATCC | CCL-81 | cell line for determining HSV1 viral titer |
参考文献
- Alnemri, E. S., et al. Human ICE/CED-3 protease nomenclature. Cell. 87 (2), 171(1996).
- Man, S. M., Kanneganti, T. D. Converging roles of caspases in inflammasome activation, cell death and innate immunity. Nature Reviews Immunology. 16 (1), 7-21 (2016).
- Gullett, J. M., Tweedell, R. E., Kanneganti, T. D. It's all in the PAN: Crosstalk, plasticity, redundancies, switches, and interconnectedness encompassed by PANoptosis underlying the totality of cell death-associated biological effects. Cells. 11 (9), 1495(2022).
- Pandian, N., Kanneganti, T. D. PANoptosis: A unique innate immune inflammatory cell death modality. Journal of Immunology. 209 (9), 1625-1633 (2022).
- Galluzzi, L., et al. Molecular mechanisms of cell death recommendations of the Nomenclature Committee on Cell Death 2018. Cell Death & Differentiation. 25 (3), 486-541 (2018).
- Shi, Y. Caspase activation: Revisiting the induced proximity model. Cell. 117 (7), 855-858 (2004).
- Galluzzi, L., Lopez-Soto, A., Kumar, S., Kroemer, G. Caspases connect cell-death signaling to organismal homeostasis. Immunity. 44 (2), 221-231 (2016).
- Fernandes-Alnemri, T., Litwack, G., Alnemri, E. S. CPP32, a novel human apoptotic protein with homology to Caenorhabditis elegans cell death protein Ced-3 and mammalian interleukin-1 beta-converting enzyme. Journal of Biological Chemistry. 269 (49), 30761-30764 (1994).
- Tewari, M., et al. Yama/CPP32 beta, a mammalian homolog of CED-3, is a CrmA-inhibitable protease that cleaves the death substrate poly(ADP-ribose) polymerase. Cell. 81 (5), 801-809 (1995).
- Nicholson, D. W., et al. Identification and inhibition of the ICE/CED-3 protease necessary for mammalian apoptosis. Nature. 376 (6535), 37-43 (1995).
- Stennicke, H. R., et al. Pro-caspase-3 is a major physiologic target of caspase-8. Journal of Biological Chemistry. 273 (42), 27084-27090 (1998).
- Twiddy, D., Cohen, G. M., Macfarlane, M., Cain, K. Caspase-7 is directly activated by the approximately 700-kDa apoptosome complex and is released as a stable XIAP-caspase-7 approximately 200-kDa complex. Journal of Biological Chemistry. 281 (7), 3876-3888 (2006).
- Kesavardhana, S., Malireddi, R. K. S., Kanneganti, T. D. Caspases in cell death, inflammation, and pyroptosis. Annual Reviews of Immunology. 38, 567-595 (2020).
- Kerr, J. F., Wyllie, A. H., Currie, A. R. Apoptosis: a basic biological phenomenon with wide-ranging implications in tissue kinetics. British Journal of Cancer. 26 (4), 239-257 (1972).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: Controlled demolition at the cellular level. Nature Reviews Molecular Cell Biology. 9 (3), 231-241 (2008).
- Morioka, S., Maueröder, C., Ravichandran, K. S. Living on the edge: Efferocytosis at the interface of homeostasis and pathology. Immunity. 50 (5), 1149-1162 (2019).
- Wang, Y., et al. Chemotherapy drugs induce pyroptosis through caspase-3 cleavage of a gasdermin. Nature. 547 (7661), 99-103 (2017).
- Rogers, C., et al. Cleavage of DFNA5 by caspase-3 during apoptosis mediates progression to secondary necrotic/pyroptotic cell death. Nature Communications. 8, 14128(2017).
- Kayagaki, N., et al. Caspase-11 cleaves gasdermin D for non-canonical inflammasome signalling. Nature. 526 (7575), 666-671 (2015).
- Shi, J., Gao, W., Shao, F. Pyroptosis: Gasdermin-mediated programmed necrotic cell death. Trends in Biochemical Sciences. 42 (4), 245-254 (2017).
- Sborgi, L., et al. GSDMD membrane pore formation constitutes the mechanism of pyroptotic cell death. EMBO Journal. 35 (16), 1766-1778 (2016).
- Aglietti, R. A., et al. GsdmD p30 elicited by caspase-11 during pyroptosis forms pores in membranes. Proceedings of the National Academy of Sciences of the United States of America. 113 (28), 7858-7863 (2016).
- Hagar, J. A., Powell, D. A., Aachoui, Y., Ernst, R. K., Miao, E. A. Cytoplasmic LPS activates caspase-11: implications in TLR4-independent endotoxic shock. Science. 341 (6151), 1250-1253 (2013).
- Kayagaki, N., et al. Noncanonical inflammasome activation by intracellular LPS independent of TLR4. Science. 341 (6151), 1246-1249 (2013).
- Shi, J., et al. Inflammatory caspases are innate immune receptors for intracellular LPS. Nature. 514 (7521), 187-192 (2014).
- Lamkanfi, M., et al. Targeted peptidecentric proteomics reveals caspase-7 as a substrate of the caspase-1 inflammasomes. Molecular & Cellular Proteomics. 7 (12), 2350-2363 (2008).
- Kalai, M., et al. Tipping the balance between necrosis and apoptosis in human and murine cells treated with interferon and dsRNA. Cell Death & Differentiation. 9 (9), 981-994 (2002).
- Li, C., et al. Development of atopic dermatitis-like skin disease from the chronic loss of epidermal caspase-8. Proceedings of the National Academy of Sciences of the United States of America. 107 (51), 22249-22254 (2010).
- Kovalenko, A., et al. Caspase-8 deficiency in epidermal keratinocytes triggers an inflammatory skin disease. Journal of Experimental Medicine. 206 (10), 2161-2177 (2009).
- Kang, T. B., et al. Caspase-8 serves both apoptotic and nonapoptotic roles. Journal of Immunology. 173 (5), 2976-2984 (2004).
- Oberst, A., et al. Catalytic activity of the caspase-8-FLIP(L) complex inhibits RIPK3-dependent necrosis. Nature. 471 (7338), 363-367 (2011).
- Kaiser, W. J., et al. RIP3 mediates the embryonic lethality of caspase-8-deficient mice. Nature. 471 (7338), 368-372 (2011).
- Zhang, H., et al. Functional complementation between FADD and RIP1 in embryos and lymphocytes. Nature. 471 (7338), 373-376 (2011).
- Shi, J., et al. Cleavage of GSDMD by inflammatory caspases determines pyroptotic cell death. Nature. 526 (7575), 660-665 (2015).
- Hitomi, J., et al. Identification of a molecular signaling network that regulates a cellular necrotic cell death pathway. Cell. 135 (7), 1311-1323 (2008).
- Malireddi, R. K., Ippagunta, S., Lamkanfi, M., Kanneganti, T. D. Cutting edge: Proteolytic inactivation of poly(ADP-ribose) polymerase 1 by the Nlrp3 and Nlrc4 inflammasomes. Journal of Immunology. 185 (6), 3127-3130 (2010).
- Tsuchiya, K., et al. Caspase-1 initiates apoptosis in the absence of gasdermin D. Nature Communications. 10 (1), (2019).
- Taabazuing, C. Y., Okondo, M. C., Bachovchin, D. A. Pyroptosis and apoptosis pathways engage in bidirectional crosstalk in monocytes and macrophages. Cell Chemical Biology. 24 (4), 507-514 (2017).
- Gurung, P., et al. FADD and caspase-8 mediate priming and activation of the canonical and noncanonical Nlrp3 inflammasomes. Journal of Immunology. 192 (4), 1835-1846 (2014).
- Man, S. M., et al. Inflammasome activation causes dual recruitment of NLRC4 and NLRP3 to the same macromolecular complex. Proceedings of the National Academy of Sciences of the United States of America. 111 (20), 7403-7408 (2014).
- Man, S. M., et al. Salmonella infection induces recruitment of Caspase-8 to the inflammasome to modulate IL-1beta production. Journal of Immunology. 191 (10), 5239-5246 (2013).
- Van Opdenbosch, N., et al. Caspase-1 engagement and TLR-induced c-FLIP expression suppress ASC/caspase-8-dependent apoptosis by inflammasome sensors NLRP1b and NLRC4. Cell Reports. 21 (12), 3427-3444 (2017).
- Pierini, R., et al. AIM2/ASC triggers caspase-8-dependent apoptosis in Francisella-infected caspase-1-deficient macrophages. Cell Death & Differentiation. 19 (10), 1709-1721 (2012).
- Lee, S., et al. AIM2 forms a complex with pyrin and ZBP1 to drive PANoptosis and host defence. Nature. 597 (7876), 415-419 (2021).
- Sagulenko, V., et al. AIM2 and NLRP3 inflammasomes activate both apoptotic and pyroptotic death pathways via ASC. Cell Death & Differentiation. 20 (9), 1149-1160 (2013).
- Lukens, J. R., et al. Dietary modulation of the microbiome affects autoinflammatory disease. Nature. 516 (7530), 246-249 (2014).
- Gurung, P., Burton, A., Kanneganti, T. D. NLRP3 inflammasome plays a redundant role with caspase 8 to promote IL-1beta-mediated osteomyelitis. Proceedings of the National Academy of Sciences of the United States of America. 113 (16), 4452-4457 (2016).
- Kuriakose, T., et al. ZBP1/DAI is an innate sensor of influenza virus triggering the NLRP3 inflammasome and programmed cell death pathways. Science Immunology. 1 (2), (2016).
- Malireddi, R. K. S., et al. TAK1 restricts spontaneous NLRP3 activation and cell death to control myeloid proliferation. Journal of Experimental Medicine. 215 (4), 1023-1034 (2018).
- Malireddi, R. K. S., et al. Innate immune priming in the absence of TAK1 drives RIPK1 kinase activity-independent pyroptosis, apoptosis, necroptosis, and inflammatory disease. Journal of Experimental Medicine. 217 (3), (2020).
- Christgen, S., et al. Identification of the PANoptosome: A molecular platform triggering pyroptosis, apoptosis, and necroptosis (PANoptosis). Frontiers in Cellular and Infection Microbiology. 10, 237(2020).
- Malireddi, R. K. S., et al. RIPK1 distinctly regulates Yersinia-induced inflammatory cell death, PANoptosis. Immunohorizons. 4 (12), 789-796 (2020).
- Zheng, M., Karki, R., Vogel, P., Kanneganti, T. D. Caspase-6 is a key regulator of innate immunity, inflammasome activation, and host defense. Cell. 181 (3), 674-687 (2020).
- Karki, R., et al. ADAR1 restricts ZBP1-mediated immune response and PANoptosis to promote tumorigenesis. Cell Reports. 37 (3), 109858(2021).
- Wang, Y., et al. Single cell analysis of PANoptosome cell death complexes through an expansion microscopy method. Cellular and Molecular Life Sciences. 79 (10), 531(2022).
- Malireddi, R. K. S., et al. Inflammatory cell death, PANoptosis, mediated by cytokines in diverse cancer lineages inhibits tumor growth. Immunohorizons. 5 (7), 568-580 (2021).
- Kesavardhana, S., et al. The Zα2 domain of ZBP1 is a molecular switch regulating influenza-induced PANoptosis and perinatal lethality during development. Journal of Biological Chemistry. 295 (24), 8325-8330 (2020).
- Banoth, B., et al. ZBP1 promotes fungi-induced inflammasome activation and pyroptosis, apoptosis, and necroptosis (PANoptosis). Journal of Biological Chemistry. 295 (52), 18276-18283 (2020).
- Karki, R., et al. Interferon regulatory factor 1 regulates PANoptosis to prevent colorectal cancer. JCI Insight. 5 (12), 136720(2020).
- Zheng, M., et al. Impaired NLRP3 inflammasome activation/pyroptosis leads to robust inflammatory cell death via caspase-8/RIPK3 during coronavirus infection. Journal of Biological Chemistry. 295 (41), 14040-14052 (2020).
- Karki, R., et al. Synergism of TNF-α and IFN-γ triggers inflammatory cell death, tissue damage, and mortality in SARS-CoV-2 infection and cytokine shock syndromes. Cell. 184 (1), 149-168 (2021).
- Karki, R., et al. ZBP1-dependent inflammatory cell death, PANoptosis, and cytokine storm disrupt IFN therapeutic efficacy during coronavirus infection. Science Immunology. 7 (74), (2022).
- Jiang, W., Deng, Z., Dai, X., Zhao, W. PANoptosis: A new insight into oral infectious diseases. Frontiers in Immunology. 12, 789610(2021).
- Chi, D., et al. Real-time induction of macrophage apoptosis, pyroptosis, and necroptosis by Enterococcus faecalis OG1RF and two root canal isolated strains. Frontiers in Cellular and Infection Microbiology. 11, 720147(2021).
- Lin, J. F., et al. Phosphorylated NFS1 weakens oxaliplatin-based chemosensitivity of colorectal cancer by preventing PANoptosis. Signal Transduction and Targeted Therapy. 7 (1), 54(2022).
- Song, M., et al. Self-assembled polymeric nanocarrier-mediated co-delivery of metformin and doxorubicin for melanoma therapy. Drug Delivery. 28 (1), 594-606 (2021).
- Boucher, D., Chan, A., Ross, C., Schroder, K. Quantifying caspase-1 activity in murine macrophages. Methods in Molecular Biology. 1725, 163-176 (2018).
- Boucher, D., Duclos, C., Denault, J. B. General in vitro caspase assay procedures. Methods in Molecular Biology. 1133, 3-39 (2014).
- Kaushal, V., Herzog, C., Haun, R. S., Kaushal, G. P. Caspase protocols in mice. Methods in Molecular Biology. 1133, 141-154 (2014).
- Swacha, P., Gekara, N. O., Erttmann, S. F. Biochemical and microscopic analysis of inflammasome complex formation. Methods in Enzymology. 625, 287-298 (2019).
- Talley, S., et al. A caspase-1 biosensor to monitor the progression of inflammation in vivo. Journal of Immunology. 203 (9), 2497-2507 (2019).
- Pelegrin, P., Barroso-Gutierrez, C., Surprenant, A. P2X7 receptor differentially couples to distinct release pathways for IL-1beta in mouse macrophage. Journal of Immunology. 180 (11), 7147-7157 (2008).
- Yu, J. W., et al. Cryopyrin and pyrin activate caspase-1, but not NF-kappaB, via ASC oligomerization. Cell Death & Differentiation. 13 (2), 236-249 (2006).
- Henry, C. M., Martin, S. J. Caspase-8 acts in a non-enzymatic role as a scaffold for assembly of a pro-inflammatory "FADDosome" complex upon TRAIL stimulation. Molecular Cell. 65 (4), 715-729 (2017).
- Hoffmann, E., Neumann, G., Kawaoka, Y., Hobom, G., Webster, R. G. A DNA transfection system for generation of influenza A virus from eight plasmids. Proceedings of the National Academy of Sciences of the United States of America. 97 (11), 6108-6113 (2000).
- Simpson, R. J. Homogenization of mammalian tissue. Cold Spring Harbor Protocols. (7), (2010).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
