タンパク質間相互作用は、標的タンパク質の機能解明に重要であり、共免疫沈降(co-IP)によりPPIを容易に確認することができます。エピトープタグ付きタンパク質をコードするプラスミドをHEK-293細胞に一過性にトランスフェクションし、2つの標的タンパク質の結合を簡便に確認できる免疫沈降法を開発しました。
この記事について
サマリー
要約
タンパク質間相互作用(PPI)は、細胞組織化、細胞内シグナル伝達、転写調節などの生物学的現象において極めて重要な役割を果たします。したがって、PPIを理解することは、標的タンパク質の機能をさらに調査するための重要な出発点です。本研究では、ポリエチレンイミン法を用いて哺乳類の発現ベクターをHEK-293細胞に導入し、自家製タンパク質溶解バッファー中で細胞を溶解し、エピトープタグアフィニティーゲル上で標的タンパク質を引き下げることにより、2つの標的タンパク質の結合を決定する簡単な方法を提案します。また、種々のエピトープタグ融合タンパク質間のPPIは、エピトープタグアフィニティーゲルの代わりに各タグに対するアフィニティー抗体を用いることで確認することができます。このプロトコルは、他の細胞株からの核抽出物を含むさまざまなPPIの検証にも使用できます。そのため、様々なPPI実験の基本的な手法として活用できます。タンパク質は、長時間の経過と凍結融解の繰り返しによって分解されます。したがって、細胞溶解、免疫沈降、および免疫ブロッティングは、可能な限りシームレスに実行する必要があります。
概要
タンパク質は、情報処理、代謝、輸送、意思決定、構造構成など、すべての細胞機能において主要な役割を果たしています。タンパク質は、他の分子と物理的に相互作用することによってその機能を媒介します。タンパク質間相互作用(PPI)は、シグナル伝達の媒介、環境の感知、エネルギーの身体運動への変換、代謝酵素やシグナル伝達酵素の活性の調節、細胞組織の維持など、細胞機能を媒介するために重要です1。このように、PPIは未知の関数を解明するために利用できる2。PPIの検出方法は、 in vitro、 in vivo、 in silicoの3種類に分類できます。 in vitro PPI検出には、共免疫沈降(co-IP)、アフィニティークロマトグラフィー、タンデムアフィニティー精製、タンパク質アレイ、ファージディスプレイ、タンパク質フラグメント相補、X線結晶構造解析、および核磁気共鳴分光法が使用されています3。これらの方法の中で、co-IPはそのシンプルさから広く使用されています。
融合タグFLAGは、エンテロキナーゼ切断部位を含む8つのアミノ酸(AspTyrLysAspAspAspAspLys:DYKDDDDK)からなり、免疫親和性クロマトグラフィー用に特別に設計されました4。DYKDDDDKタグ付きタンパク質は、抗DYKDDDDK抗体を用いて認識され、捕捉されます。したがって、DYKDDDDK結合アガロースビーズ5 を使用して効率的に引き下げ、簡単な方法で特定のタンパク質への結合を確認します。免疫沈降は様々な細胞で行うことができ、目的のタンパク質に対する抗体を用いて幅広いPPIを確認することができます。抗DYKDDDDKアガロースビーズによる免疫沈降およびペプチド溶出は、以前に報告されています5。
ここでは、DYKDDDDKタグ付きタンパク質をコードするプラスミドをHEK-293細胞に一過性に導入して、目的の2つのタンパク質の会合を確認する簡単な免疫沈降法を提供します。特定のDYKDDDDK抗体は、融合タンパク質のN末端とC末端の両方に結合できますが、他の抗体には結合できません6。したがって、混乱を避けるために、N末端とC末端の両方に融合したタグを認識する抗体を選択する必要があります。エピトープタグを挿入する場合、エピトープタグと標的タンパク質の間に3〜12塩基対を挿入することで、タンパク質の構造変化を回避できる場合があります。ただし、挿入されたシーケンスは、フレームシフトを回避するために、3の倍数のベースペアである必要があります。
プロトコル
図 1 は、プロトコルの概要を示しています。
1. 溶液と緩衝液の調製
- タンパク質溶解バッファー:以前に発表されたレポート7 (表1)に従って、タンパク質溶解バッファーを調製します。
- タンパク質溶解バッファー + プロテアーゼ阻害剤(PI):上記の調製したバッファーにプロテアーゼ阻害剤( 材料の表を参照)を添加します(ステップ1.1)。-20°Cで保存してください。
- サンプルバッファー:4x Laemmli サンプルバッファー 900 μL ( 材料表を参照) と 2-メルカプトエタノール 100 μL を混合します。-20°Cで保存してください。
- リン酸緩衝生理食塩水(PBS)とポリオキシエチレン(20)ソルビタンモノラウレート(PBS-P):1.998 LのPBSと2 mLのポリオキシエチレン(20)ソルビタンモノラウレートを混合します( 材料の表を参照)。室温で保存してください。
- 1x Tris/Glycine/SDS緩衝液: 450 mLの重水素減少水と50 mLの10x Tris/Glycine/SDSを混合する。使用当日は常温でご用意ください。
2. プラスミドトランスフェクション
- 10%のウシ胎児血清と1%ペニシリン-ストレプトマイシン(10,000ユニット/mLペニシリンGおよび10,000μg/mLストレプトマイシン)を含むダルベッコの改変ワシ培地を使用して、10cmコラーゲンコーティング皿でHEK-293細胞をサブコンフルエンス(80%-95%)まで培養します( 材料の表を参照)。
- 1皿あたりトランスフェクションするプラスミド7 を1〜10μg調製し、トランスフェクションミックスを作成します。150 mM NaClを最終容量250 μL/ディッシュに添加します。混合物をボルテックスしてスピンダウンします。
- 1皿あたり1 mg/mLのポリエチレンイミン(PEI、 材料表を参照)60 μLを加え、続いて150 mM NaClを最終容量のPEI溶液250 μLに加えます。
- トランスフェクションミックスにPEI溶液を加えて、混合溶液を作ります。すぐにボルテックス(最高速度で3〜5秒間、その後同じことを行います)し、スピンダウンします。
- 室温で15〜30分間インキュベートします。この間に、HEK-293細胞の培地を交換してください。
- HEK-293細胞のディッシュ全体に500μL/ディッシュの混合溶液を振りかけ、一晩(13〜14時間)インキュベートします。
- 翌日に媒体交換を行います。
3. 細胞溶解とサンプル調製
注:タンパク質の分解を避けるために、その後のステップは、サンプルの保存または凍結融解をできるだけ行わずに実行する必要があります。
- トランスフェクションの約48時間後、氷冷PBSで細胞を3回洗浄し、500 μL/皿のタンパク質溶解バッファー+ PIを加え、細胞スクレーパーとピペットで氷上でタンパク質吸着の少ないチューブに細胞を回収します。
- 5分ごとにボルテックスし、氷上で10分間サンプルをインキュベートします。
- 16,400 x g で4°Cで10分間遠心分離します。 上清を採取し、タンパク質吸着の少ない新鮮な1.5mLチューブに移します。サンプルは-80°Cで保存できます。
- タンパク質濃度測定キットを使用して、メーカーのプロトコルに従ってサンプルのタンパク質濃度を測定します( 材料の表を参照)。
- 各サンプルに同量のタンパク質200〜1000 μgを分離し、タンパク質溶解バッファー+PIを加えて、総容量を500〜1000 μLに調整します。
注意: 次の手順は氷上で実行されます。
4.スラリーの調製
注:免疫沈降の前日または当日に、プロテインGゲルとエピトープタグアフィニティーゲルの1:1スラリーを調製します。
- プロテインGゲルの調製
- 端を切り落としたチップを使用して、よく混合してから、プロテインGゲル( 材料の表を参照)を分離し、サンプルあたり20 μLのビーズを調製します。
- 12,000 x g で4°Cで20秒間遠心分離し、ビーズを氷の上に1分間置き、ビーズを水平にします。ピペットを使用して上清を捨てます。
- ステップ4.1.2で調製したプロテインGゲルに1mLのタンパク質溶解バッファー+PIを加え、タッピングして反転させて混合します。12,000 x g で4°Cで20秒間遠心分離し、ビーズを氷の上に1分間置いてビーズを水平にし、上清を捨てます。
- 手順4.1.3を3回繰り返します。
- 等量のタンパク質溶解バッファーをプロテインGゲルに添加して、1:1のプロテインGゲルスラリーを作製します。プロテインGゲルスラリーは、4°Cで約1日間保存できます。
- エピトープタグアフィニティーゲルの調製
- 端を切り落としたチップを使用して、よく撹拌し、エピトープタグアフィニティーゲル( 材料表を参照)を分離して、サンプルあたり10〜15 μLのビーズを調製します。
- 5,000 x g で4°Cで30秒間遠心分離し、氷上で1分間待ってビーズを水平にします。ピペットを使用して上清を捨てます。
- ステップ4.2.2で調製したエピトープタグアフィニティーゲルにタンパク質溶解バッファー+PI1 mLを加え、タッピングして反転させて混合します。5,000 x g で4°Cで30秒間遠心分離し、ビーズを氷の上に1分間置いてビーズを水平にし、ピペットで上清を捨てます。
- 手順 4.2.3 を 2 回繰り返します。
- ステップ4.2.4で調製したエピトープタグアフィニティーゲルに、0.1 Mグリシン(pH 3.5)500 μLを加え、タッピングして反転させて混合します。このステップは、遊離エピトープタグ抗体を除去するために行われます。グリシン添加後20分以内に、5,000 x g で4°Cで30秒間遠心分離し、ビーズを氷上に1分間置いてビーズを水平にし、上清を捨てます。
- ステップ4.2.5で調製したエピトープタグアフィニティーゲルに500 μLのタンパク質溶解バッファー+PIを加え、タッピングして反転させて混合します。5,000 x g で4°Cで30秒間遠心分離し、ビーズを氷の上に1分間置いてビーズを水平にし、上清を捨てます。
- 手順4.2.6を3回繰り返します。
- 等量のタンパク質溶解バッファーをエピトープタグアフィニティーゲルに添加して、1:1のエピトープタグアフィニティーゲルスラリーを調製します。エピトープタグアフィニティーゲルスラリーは、4°Cで約1日間保存できます。
5. プロテインGゲルでプレクリアし、エピトープタグアフィニティーゲルでタンパク質複合体を捕捉する
- 1:1のプロテインGスラリー(ステップ4で調製)をカットチップを取り付けたピペットと混合し、一度に40μLをサンプルに加えます。
- ローテーター( 材料の表を参照)でサンプルを1時間回転させ、冷蔵チャンバー(4°C)で1サイクルあたり約30秒で回転させます。
- 12,000 x g で4°Cで20秒間遠心分離し、ビーズを氷の上に1分間置き、ビーズを水平にします。
- 上清を採取し、タンパク質吸着の少ない新しい1.5mLチューブに移します。
- ステップ5.4でサンプルからインプット用のサンプルを分離し、新しい1.5mLチューブに移します。
- 20〜30 μLの1:1エピトープタグゲルスラリーをサンプルに加えます。
- ローテーター上で、冷蔵チャンバー(4°C)で2時間、サイクルあたり約30秒間回転させます。
- ステップ5.5で調製したインプットにサンプルバッファーを加えて4倍に希釈し、98°Cで10分間加熱します。入力は-80°Cで保存できます。
注:凍結融解によるタンパク質分解の可能性があるため、その後のステップはタンパク質をできるだけ保存せずに実行する必要があります。
6. 沈殿したタンパク質を洗浄して溶出させる
- ヒートブロックの温度を98°Cに設定します。
- 5,000 x g で4°Cで30秒間遠心分離し、氷上で1分間待ってビーズを水平にします。ピペットを使用して上清を捨てます。
- タンパク質溶解バッファー+PIを1mL加え、タッピングして反転させて混合します。ローテーター上で、冷蔵チャンバー(4°C)で5分間、サイクルあたり約30秒間回転させます。5,000 x g で4°Cで30秒間遠心分離し、氷上で1分間待ってビーズを水平にし、上清を捨てます。
- 手順6.3を5〜10回繰り返します。
- ステップ6.4で調製したサンプルに10μLのサンプルバッファーを加えます。98°Cで10分間煮沸します。
- 5,000 x g 、4°C、30秒間遠心分離します。
- タンパク質吸着率の低い新しいチューブにカラムを置き、先端をカットしたピペットを使用してゲルをカラムに移します。ゲルの汚染を避けるためにカラムが使用されます。
- 9,730 x g で4°Cで1分間遠心分離します。 フロースルーを収集します。サンプルは-80°Cで保存できます。
注:サンプルの劣化が懸念される場合は、凍結せずに以下のイムノブロッティングを実施する必要があります。
7.イムノブロッティング
注:イムノブロッティング手順は、以前の報告7,8に基づいています。
- ドデシル硫酸ナトリウムポリアクリルアミドゲル(SDS-PAGE、 材料表を参照)にサンプル全体をロードします。
注:必要に応じて、サンプル全体を移すことができるようにラージウェルゲルを使用してください。ここでは、50 μLウェルを含むゲルを使用しました。 - 電気泳動チャンバーにゲルをセットし、1x Tris/Glycine/SDSバッファー( 材料表を参照)をゲルの周囲に適切な容量まで加えます。
- 100 Vおよび400 mAの電気泳動ゲル。
- ポリフッ化ビニリデン(PVDF、 材料表を参照)膜に移します。
- PVDFメンブレンブロットをPBS-P中の5%スキムミルクで室温で1時間ブロックします。
- メンブレンをPBS-Pでシェーカーで最高速度で5分間3回洗浄します。その後、洗濯の際にも同じ手順を行ってください。
- 一次抗体( 材料表を参照)を入れたシェーカーで4°Cで一晩インキュベートします。
- 翌日、PBS-Pで膜を3回洗浄します。
- 室温でシェーカー上で二次抗体と1時間インキュベートします。
注:標的タンパク質の分子量が分子量約50 kDaのIgG重鎖に近い場合は、軽鎖特異的二次抗体を使用して、標的バンドとIgG重鎖のオーバーラップを回避できます。この研究では、軽鎖特異的抗体7 またはVeribroをIP検出試薬として使用しました( 材料の表を参照)。 - ペルオキシダーゼ発光基質を持つタンパク質のバンドを同定します。メンブレンは、PBS-Pで2回洗浄した後、PBSに保存することができます。
- 剥離液で10分間剥がします( 材料の表を参照)。
- 3回洗浄し、PBS-Pで5%スキムミルクでブロックします。その後のプロトコルは、ステップ7.6以降と同じです。
結果
褐色およびベージュの脂肪細胞としても知られる熱発生性脂肪細胞は、潜在的な抗肥満および抗耐糖能不耐症効果を有する。PR(PRD1-BF1-RIZ1相同)ドメイン含有16(PRDM16)は、熱発生性脂肪細胞の同一性を決定する上で重要な役割を果たす転写補因子である9,10。
EHMT1(ユークロマティックヒストン-リジンN-メチルトランスフェラーゼ1)は、GLPとしても知られ、主に補因子S-アデノシルメチオニン11を使用して、ヒストンH3(H3K9)のリジン9のモノメチル化およびジメチル化を触媒します。以前の報告では、EHMT1は、ヒストンメチル化を介して熱発生脂肪細胞の運命を制御するPRDM16複合体の必須メチルトランスフェラーゼであることが示されました12,13。さらに、PRDM16とEHMT1の発現レベルは、ヒト腎周囲褐色脂肪組織(BAT)の熱発生遺伝子の発現レベルと有意に相関していることを以前に報告しており、PRDM16とEHMT1の両方がヒトBATの発生に重要な役割を果たしていることを示唆しています8。
PPIを確認する方法としてこのプロトコルの有効性を実証するために、DYKDDDDK-PRDM16およびHA-EHMT1をHEK-293細胞にトランスフェクションし、上記のプロトコルを使用してDYKDDDDK-PRDM16を免疫沈降させました。DYKDDDDKタグ付きPRDM16およびHAタグ付きEHMT1を、哺乳類発現ベクターpcDNA3.1のクローニング部位に挿入しました( 材料表を参照)。イムノブロッティングにより、DYKDDDDK-PRDM16とHA-EHMT1をトランスフェクトした群において、DYKDDDDK-PRDM16とHA-EHMT1との関連が確認されました(図2)。
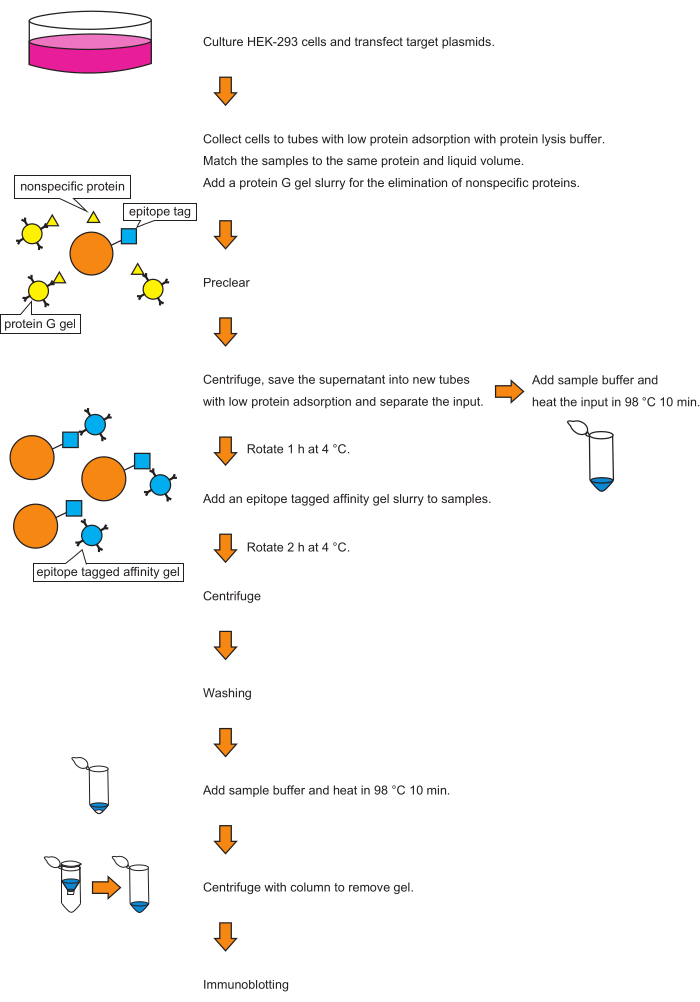
図1:共免疫沈降の概略図。 プロトコルの概略図を次に示します。右側は、プロトコルのワークフローを示しています。左側は反応をグラフで示しています。 この図の拡大版を見るには、ここをクリックしてください。
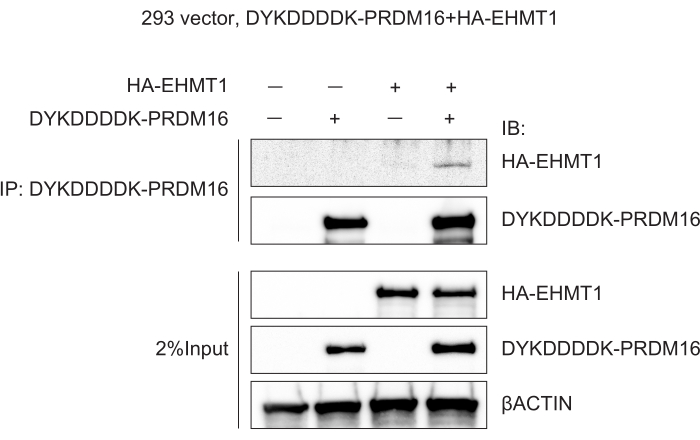
図2:PRDM16はEHMT1に関連付けられています。 HEK-293細胞にベクター(ネガティブコントロール)、DYKDDDDK-PRDM16、またはDYKDDDDK-PRDM16およびHA-EHMT1をトランスフェクションしました。続いて、DYKDDDDKタグアフィニティーゲルを用いて共免疫沈降を行い、続いてイムノブロッティングを行った。 この図の拡大版を見るには、ここをクリックしてください。
| タンパク質溶解バッファー 250 mL (0.22 μm ろ過、4 °C で保存) | ||
| ミリリットル | 最終濃度 | |
| 1 M トリス pH 8.0 | 12.5 | 50 mM |
| 5 M NaCl | 7.5 | 150 mM |
| 0.5 Mエチレンジアミン四酢酸 | 0.5 | 1 mM |
| グリセロール | 25 | 10% |
| ポリオキシエチレン(10)オクチルフェニルエーテル | 2.5 | 1% |
| 重水素減少水 | 202 | |
| トータル | 250 | |
表1:タンパク質溶解バッファーの組成。
ディスカッション
このプロトコルは、以前に報告されたプロトコル5,7,14,15とほぼ同じです。このプロトコルの重要なポイントは、細胞溶解ステップから免疫沈降ステップまで実験を決して停止しないことです。タンパク質分解はPPI検出を妨げます。長時間の経過と凍結融解のサイクルを繰り返すと、タンパク質が分解されます。SDS-PAGEでの電気泳動は、タンパク質の分解を最小限に抑えるだけでなく、PPI検出を最大化するために、免疫沈降の同じ日に実施する必要があります。
熱発生性脂肪細胞では、EHMT1とPRDM16の相互作用が以前の研究で報告されています13。EHMT1-PRDM16複合体は、褐色脂肪細胞細胞の運命と熱発生を調節します13。EHMT1は、PRDM16-アミロイドタンパク質結合タンパク質(APPBP)216の相互作用を中断することにより、PRDM16を安定化させます。このPRDM16安定化は、cullin(CUL)2-APPBP2およびEHMT116によって制御されています。
この研究では、HEK-293細胞が組換えタンパク質の産生に広く使用されているため、HEK-293細胞を使用しました17。プラスミドでトランスフェクションしやすい他の細胞株、例えばCos-7細胞やHela細胞などを使用することができます。PEIは従来のリポフェクションと比較してより経済的で簡便であるため、トランスフェクションにPEIを使用しました。
この方法では、プレクリア、エピトープタグアフィニティーゲルでの回転、および洗浄が特に重要なステップです。プレクリアリングにより、ゲルに非特異的に結合するタンパク質を除去できます。また、時間が長すぎると非特異的なタンパク質の検出につながり、時間が足りないと標的タンパク質の検出が妨げられる可能性があるため、エピトープタグアフィニティーゲルとの回転時間が重要です。
以下の点に留意してください。HEK-293細胞は簡単に剥離します。したがって、サンプルを調製するときは、コラーゲンでコーティングされた皿を使用する必要があります。PEI溶液は細胞毒性があります。したがって、トランスフェクション後、培地は細胞を長期間残さずに交換する必要があります。PPIが観察されない場合、トランスフェクションされたプラスミドの量が不十分であるか、IPに取り込まれるタンパク質の量が少ない可能性があります。また、洗浄回数が多すぎると、相互作用が見逃されてしまう可能性があります。これらに対処するために、HEK-293細胞に導入されるプラスミドの量を増やし、IPに使用されるタンパク質の量を増やし、洗浄回数を減らすことが考えられます。さらに、最終洗浄に上清が多すぎると、ドデシル硫酸ナトリウム-ポリアクリルアミドゲルのウェルからオーバーフローします。非特異的なバンドが観察された場合、IPに使用されるプラスミド/タンパク質の量が多すぎるか、洗浄の回数または強度が不十分である可能性があります。これらは、IPに使用されるプラスミド/タンパク質の量を減らすか、洗浄回数を増やすか、洗浄バッファー中の塩濃度を上げることで洗浄力を高めることで対処できます。
ポリオキシエチレン(10)オクチルフェニルエーテルなどの一般的に使用される界面活性剤は、機能的に重要なPPIを破壊する可能性があります18。より穏やかな界面活性剤は、機能的に重要な複合体の回収率を高める可能性がありますが、不完全な可溶化のために許容できないレベルの非特異的相互作用をもたらす可能性があります。現在の研究で使用されたタンパク質溶解バッファーには、1%のポリオキシエチレン(10)オクチルフェニルエーテルが含まれています。このバッファーは、トランスフェクションされたプラスミドによって過剰発現された大量のタンパク質を含む細胞質タンパク質を溶解します。核と細胞質を分離して調製した試料に対して免疫沈降を行うと、全細胞溶解で調製した試料と比較してバックグラウンドが減少し、明確な標的バンドを同定することができる17。免疫沈降が核内のタンパク質を用いて行われる場合、核タンパク質は、市販の核抽出キットを用いて、または界面活性剤を含む低塩緩衝液で細胞質を破壊して除去し、続いて高塩緩衝液で核タンパク質を抽出することによって抽出することができる19。イムノブロッティングの現像時間は、バックグラウンドを回避するだけでなく、特定のバンドを検出するように調整する必要があります。
この方法にはいくつかの制限がありました。まず、検出が期待できるPPIを使用しました。第二に、各遺伝子の発現はプラスミドの組み合わせに依存するため、不十分なタンパク質が得られ、相互作用が検出されない可能性があります。
要約すると、この方法を使用すると、PPIは質量分析と比較して経済的かつ簡単に確認できます。種々のエピトープタグ融合タンパク質間のPPIは、エピトープタグアフィニティーゲルの代わりに各タグに対するアフィニティー抗体を用いることによっても確認することができる。同様の免疫沈降法は、DYKDDDDKタグに融合した任意のタンパク質を発現するプラスミドを導入することにより、他の細胞型でも実施することができる。さらに、エピトープタグアフィニティーゲルの代わりに内在性抗体を用いることで、様々な細胞種における内在性PPIの確認が可能になります。
開示事項
著者の誰もこの研究に関連する利益相反を持っていないことを宣言します。
謝辞
本研究は、日本学術振興会科研費19K18008(G.N.)、日本学術振興会科研費22K16415(G.N.)、JSPS科研費22K08672(H.O.)、日本糖尿病学会若手研究助成(G.N.)、MSD生命科学財団若手研究助成(G.N.)の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.5 M EDTA (pH8.0) | Nippon gene | 311-90075 | |
| 10% Mini-PROTEAN TGX Precast Protein Gels, 10-well, 50 µL | Biorad | 4561034 | |
| 10x Tris/Glycine/SDS | Biorad | 1610772 | |
| ANTI-FLAG M2 Affinity Gel | Sigma | A2220 | |
| Anti-Mouse IgG, HRP Linked Whole Ab Sheep | GE Healthcare | NA931-1ML | |
| Anti-Rabbit IgG, HRP Linked Whole Ab Donkey | GE Healthcare | NA934-1ML | |
| Cell Scraper M | Sumitomoベークライト | MS-93170 | |
| コラーゲンI.コートディッシュ 100mm | 岩城 | 4020-010 | |
| cOmplete, EDTAフリープロテアーゼ阻害剤 カクテル | ロシュ | 4693132001 | |
| DMEM/F-12, GlutaMAX サプリメント | Invitrogen | 10565042 | |
| D-PBS (-) | 富士フイルム和光 | 045-29795 | |
| グリセロール | 富士フイルム和光 | 072-00626 | |
| グリシン | 富士フイルム和光 | 077-00735 | |
| HA-Tag (C29F4) Rabbit mAb #3724 | Cell Signaling | C29F4 | |
| Laemmli Sample buffer | Bio-Rad Laboratories | 161-0747 | |
| マイクロバイオスピンクロマトグラフィーカラム | Biorad | 7326204 | |
| Mini-PROTEAN Tetra Cell for Mini Precast Gels | Biorad | 1658004JA | |
| モノクローナル ANTI-FLAG M2 抗体 produced in mouse | Sigma | F3165 | |
| NaCl | 富士フイルム 和光 | 191-01665 | |
| pcDNA3.1-FLAG-PRDM16 | 本論文 | N/A | |
| pcDNA3.1-vector | |||
| 本論文 | N/A | ||
| PEI MAX - Transfection Grade Linearポリエチレンイミン塩酸塩 | PSI | 24765 | |
| ペニシリン-ストレプトマイシン溶液 | 富士フイルム 和光 | 168-23191 | |
| ピアス BCA タンパク質アッセイキット | サーモサイエンティフィック | 23227 | |
| ポリオキシエチレン(10) オクチルフェニルエーテル | 富士フイルム和光 | 168-11805 | |
| ポリオキシエチレン(20) モノラウリン酸ソルビタン | 富士フイルム和光 | 167-11515 | |
| プロテインG セファロース 4 ファストフロー ラボパック | Cytiva | 17061801 | |
| Protein LoBind Tubes | eppendorf | 30108442 | |
| ROTATOR RT-5 | TAITEC | RT-5 | |
| skim milk | 森永製菓 | 0652842 | |
| ストリッピングソリューション | 富士フイルム 和光 | 193-16375 | |
| トランスブロット ターボ ミニ PVDF トランスファー パック | バイオラッド | 1704156B03 | |
| トランスブロット ターボ システム | バイオラッド | N/A | |
| トリズマ ベース | シグマ | T1503-1KG | |
| USDA テスト済み ウシ胎児血清 (FBS) | HyClone | SH30910.03 | |
| ベリブロット | Abcam | ab131366 | |
| β-Actin (13E5) Rabbit mAb #4970 | Cell Signaling | 4970S |
参考文献
- Braun, P., Gingras, A. History of protein-protein interactions: from egg-white to complex networks. Proteomics. 12 (10), 1478-1498 (2012).
- Yanagida, M. Functional proteomics; current achievements. Journal of Chromatography B-Analytical Technologies in the Biomedical and Life Sciences. 771 (1-2), 89-106 (2002).
- Rao, V. S., Srinivas, K., Sujini, G. N., Kumar, G. N. S. Protein-protein interaction detection: methods and analysis. International Journal of Proteomics. 2014, 147648(2014).
- Hopp, T. P., et al. A short polypeptide marker sequence useful for recombinant protein identification and purification. Nature Biotechnology. 6 (10), 1204-1210 (1988).
- Gerace, E., Moazed, D. Affinity pull-down of proteins using anti-FLAG M2 agarose beads. Methods in Enzymology. 559, 99-110 (2015).
- Einhauer, A., Jungbauer, A. The FLAG peptide, a versatile fusion tag for the purification of recombinant proteins. Journal of biochemical and biophysical methods. 49 (1-3), 455-465 (2001).
- Egusa, G., et al. Selective activation of PPARα maintains thermogenic capacity of beige adipocytes. iScience. 26 (7), 107143(2023).
- Nagano, G., et al. Activation of classical brown adipocytes in the adult human perirenal depot is highly correlated with PRDM16-EHMT1 complex expression. PLoS One. 10 (3), e0122584(2015).
- Seale, P., et al. Transcriptional control of brown fat determination by PRDM16. Cell Metabolism. 6 (1), 38-54 (2007).
- Kajimura, S., et al. Regulation of the brown and white fat gene programs through a PRDM16/CtBP transcriptional complex. Genes and Development. 22 (10), 1397-1409 (2008).
- Shinkai, Y., Tachibana, M. H3K9 methyltransferase G9a and the related molecule GLP. Genes and Development. 25 (8), 781-788 (2011).
- Able, A. A., Richard, A. J., Stephens, J. M. TNFα effects on adipocytes are influenced by the presence of lysine methyltransferases, G9a (EHMT2) and GLP (EHMT1). Biology. 12 (5), 674(2023).
- Ohno, H., Shinoda, K., Ohyama, K., Sharp, L. Z., Kajimura, S. EHMT1 controls brown adipose cell fate and thermogenesis through the PRDM16 complex. Nature. 504 (7478), 163-167 (2013).
- Bian, W., et al. Protocol for establishing a protein-protein interaction network using tandem affinity purification followed by mass spectrometry in mammalian cells. STAR Protocols. 3 (3), 101569(2022).
- Cristea, I. M., Chait, B. T. Affinity purification of protein complexes. Cold Spring Harbor Protocols. 2011 (5), (2011).
- Wang, Q., et al. Post-translational control of beige fat biogenesis by PRDM16 stabilization. Nature. 609 (7925), 151-158 (2022).
- Holden, P., Horton, W. Crude subcellular fractionation of cultured mammalian cell lines. BMC Research Notes. 2, 243(2009).
- Yang, L., Zhang, H., Bruce, J. E. Optimizing the detergent concentration conditions for immunoprecipitation (IP) coupled with LC-MS/MS identification of interacting proteins. Analyst. 134 (4), 755-762 (2009).
- Herrmann, C., Avgousti, D. C., Weitzman, M. D. Differential salt fractionation of nuclei to analyze chromatin-associated proteins from cultured mammalian cells. BIO-PROTOCOL. 7 (6), e2175(2017).
再版と許可
