このプロトコルでは、胎児の脳組織と、同じマウス胚からの高品質の非溶血血清を同時に収集する方法について説明します。この手法を利用して、母親の食事への曝露が 、Nf1 (神経線維腫症 1 型) のヘテロ接合型マウスの主要栄養素プロファイルと胎児の神経発達にどのように影響するかを調査しました。
この記事について
サマリー
要約
母親の食事誘発性肥満は、子孫の神経発達を変化させることが実証されており、認知能力の低下、多動性、および社会的行動の障害につながる可能性があります。臨床的に不均一な遺伝性疾患である神経線維腫症1型(NF1)の患者は、同様の欠損を呈する可能性がありますが、母親の食事などの環境要因がこれらの表現型の発達に影響を与えるかどうか、もしそうなら、そのような影響が発生するメカニズムは現在のところ不明です。母親の肥満食への曝露がNF1の神経発達に関連する全身因子にどのように影響するかを評価できるようにするために、対照食と高脂肪、高ショ糖食を与えられたマウスダムの胎児の子孫から、非溶血血清と全体または局所的に微視された脳を同時に収集する方法を開発しました。脳は凍結切片処理のために処理されたか、またはその後のRNAまたはタンパク質の単離に使用するために瞬間凍結されました。採取した組織の品質を免疫染色により確認しました。血清の品質は、主要栄養素プロファイルを分析することにより確認しました。この手法を用いて、母体の肥満食は、WTと Nf1-ヘテロ接合性の子犬の間で胎児の血清コレステロールを同様に増加させることを同定した。
概要
神経線維腫症 1 型 (NF1) は、RAS/MAPK (RAt 肉腫ウイルス/マイトジェン活性化プロテイン キナーゼ) シグナル伝達経路の活性化をもたらす生殖細胞系遺伝子変異を特徴とする障害群である RASopathy と考えられています。NF1 RASopathyの患者は、中枢性腫瘍(視神経膠腫1,2、高悪性度神経膠腫3,4)および末梢性腫瘍(フジツボ神経線維腫5,6、悪性度末梢神経鞘腫瘍7,8)の良性腫瘍と悪性腫瘍の両方、ならびに骨異形成9および皮膚色素異常10を含む、多くの異なる症状を発症するリスクがあります(腋窩そばかす、カフェオレ斑)。この障害が認知と神経発達に及ぼす影響はますます認識されており、NF1患者は学習障害、多動性、および自閉症スペクトラム障害の発生率の増加を示しています11,12,13。しかし、患者13、14、15、16、17の間でこれらの表現型の発達には有意な不均一性があり、一部の患者が重大な認知障害を示し、他の患者が影響を受けない理由は不明です。母親の食事誘発性肥満は、一般集団18,19,20,21,22,23,24,25,26,27,28の学習と行動に同様に影響を与えることが示されていますから、NF1における母親の食事曝露の違いが、この臨床的不均一性の1つの原因である可能性があることを示唆しています。特に、肥満の母親の子供は、多動性18,19,20,23,25,26、自閉症19,24,27、実行機能障害21,23を発症するリスクが高く、フルスケールIQスコア22,28が低くなります.しかし、NF1の患者は、肥満や糖尿病の発生率の低下など、一般集団と比較して代謝表現型が変化しており29,30,31、食事刺激と同様に反応するかどうかは不明です。
これらの疑問に答えるために、 Nf1 の胎児の仔における肥満食療法による主要栄養素プロファイルの変化が神経発達の変化に寄与しているかどうかを検討したいと考えました。我々は以前に、胎児の脳32から神経発達への応用に適した高品質の全体および領域的に微小解剖された組織を収集してきた。しかし、胎児の採血は、体が小さく、血液量が少ないため困難です33。斬首後の重力を利用したドレナージによる採血は、サンプル中の採血量が少なく、溶血が著しいことにつながり、下流のアプリケーションの解釈に影響を与える可能性があります。胎児の心臓または胸部血管からの吸引による採取は、以前に報告されているように33、技術的に困難であり、頻繁な溶血ももたらした。そこで、特殊な毛細血管チューブを利用して、大きなせん断応力なしに大量の採取を可能にする胎児血清採取法を開発しました。
ここでは、子宮内で高脂肪、高糖の食事と対照の食事に曝露されたNf1ヘテロ接合体の子犬から胚の脳と胎児の血清を同時に収集するこの方法を紹介します(図1および補足表S1)。脳は、免疫蛍光法によるその後の分析のためにクライオ包埋されたか、または分子生物学アプリケーションでのその後の使用のために領域的にマイクロ解剖され、瞬間凍結されました。高品位な血清が得られ、主要栄養素プロファイリングなどのダウンストリームアプリケーションに適しています。この方法を利用して、母親の高脂肪、高ショ糖の食事への曝露が、WTおよびNf1-ヘテロ接合性の子犬の両方で血清コレステロール値の上昇につながることを突き止めました。
プロトコル
この研究のすべての動物手順はNIHのガイドラインに従い、セントルイスのワシントン大学の施設動物管理および使用委員会によって承認されました。動物は、標準的な12時間のライト:ダークサイクリングと、食べ物と水への無料アクセスで収容されました。
1.母性ダイエット
- 雌マウスを4週齢でコントロールチャウ(CD)または肥満食(Ob)に置きます。
- 8〜12週齢で、早朝にダムの粘液栓を監視して時限交配を設定し、正しい収集年齢を決定します。食事誘発性肥満を確認するには、交配時に雌の体重を量ります。
注:肥満食を与えられた女性が、8週齢までに常に発生したとは限らない、対応する女性と比較して太りすぎであることを確認するために、最初の交配セットアップに8〜12週間の範囲が使用されました。プラグの日は胚の1日目(E1)と考えられており、この研究で使用されたすべての動物はE19で収集されました。胎児後期の時点は、この時期に肥満食に曝露された動物で以前に観察された神経発達の変化のために選択されました(データは示されていません)。
2.ダムからの胎児の除去
- まず、母が妊娠しているように見えることを確認します(腹部の形と膨満感、腹部の触診、または胎児の動き)。疑わしい場合は、体重増加を測定するために女性の体重を再度測定します。
注:後期妊娠マウスは、少なくとも3〜4 gの体重増加を示す必要があります。所望の時間枠で受胎の可能性を高めるために、雄のケージからの汚れた(尿およびフェロモンを含む)おがくずを交尾の3日前から毎日雌のケージに追加して発情を誘発することができる34。 - 3 mLのイソフルランが入ったペーパータオルでダムをチャンバーに入れて安楽死させ、ダムと麻酔薬を染み込ませたペーパータオルが直接接触しないように注意します。動物を鎮静させた後、ペーパータオルの上に置き、尻尾で持ち、首に解剖ハサミを置き、次にハサミを頭に向かって上向きに押し上げて子宮頸部脱臼を行います。あるいは、イソフルラン鎮静後に斬首を行います。.
注:血清は、このステップでダムから採取でき、以下に説明するのと同様の方法を使用しますが、より大きなキャピラリーチューブを使用します。これが望ましい場合は、頸椎脱臼ではなく斬首を行う必要があります。安楽死の直前のイソフルランの投与によって関心のある表現型が変更されないように注意する必要があります。. - ダムの腹側を上にして、100mmの皿に置きます。腹部を覆う皮膚をつまみ、解剖ハサミで正中線切開を行います。正中線切開に対して垂直に追加の切開を行い、胚を含む子宮を露出させるための皮膚フラップを作成します。
- 子宮を腹腔から引き出します。はさみを使用して、子宮をダムから切り離します。胚が入った無傷の胚嚢(「ひもについた真珠」)を、冷たく滅菌した1倍リン酸緩衝生理食塩水(PBS)を入れた皿に入れます。胎児の皿を氷の上に置きます。
注:各同腹仔には通常、脳と血清の両方で収穫される6〜10匹の子犬が含まれているため、胎児は組織の劣化を避けるために氷上に保管されます。子犬を氷の上に置くと、母親の安楽死だけでは必ずしも十分ではない可能性があるため、子犬の適切な安楽死がさらに保証されます。血清採取のみが必要な場合は、室温採取が好ましい場合があります。.
3. 胎児血清コレクション
- #5鉗子で慎重に解剖することにより、胎児を胚嚢から取り出します。新鮮な冷たく滅菌された1x PBSを備えた湾曲した鉗子を使用して、胚を皿に移します。
- ペーパータオルで動物をやさしく拭き取り、標本から残留羊水とPBSを取り除きます。
- 動物の腹部を持ってください。腹側の首を切開することにより、マイクロハサミで動物を部分的に斬首します。血管が切断されているが、頭を保持している皮膚はまだ付着していることを確認してください。
注:体と頭から同時に血液を採取できるように、頭は取り付けたままにしておく必要があります。 - 切開部を下に向けて、ボディを45°の角度で保持します。50μLのミニベット(毛細管)を、血液が液滴を形成するダムの切開部位と平行に保持します。50μLのキャピラリーチューブを慎重に血液で満たします。
注:キャピラリーチューブx2または100μLのキャピラリーチューブを使用して、最大~75μLの血液を採取できます。 - さらに組織を採取するために、冷たく滅菌した1x PBSを含む新鮮な60 mm皿にヘッドを置きます(セクション4)。
- 血液が毛細血管内に入ったら、プランジャーを1.5mLチューブにすばやく押し込みます。チューブをフリックするか、すばやく回転させて、血液がチューブの底にあることを確認します。
- 残りのゴミについても繰り返します。
注:子犬を氷の上に保ち、間をすばやく移動することは、収集量を制限する死後凝固のリスクを減らすために不可欠です。 - 室温で30分間血液を凝固させます。
- 血液サンプルを4°C、16,000 × gで20分間遠心分離します。
- 200 μLピペットで血清を新鮮な500 μLチューブに移し、チューブの底にある血球ペレットを乱さないようにします。
注:血清は、赤い破片のない麦わら色である必要があります。.各胎児は15〜30μLの血清を産出する必要があります。. - 採取した血清は-80°Cで保存してください。
4.胎児の脳のコレクション
- 解剖顕微鏡を覗いて、湾曲した鉗子で鼻を持ち、#5鉗子で頭蓋骨キャップの皮膚を慎重に剥がし、鼻に取り付けて持ちやすくします。角度#5鉗子を頭蓋骨に対して45°にし、発達中の頭蓋骨である透明な膜に慎重に穴を開け、鉗子を頭蓋骨に平行にシフトし、頭蓋骨キャップの下に挿入し、次につまんで片側に剥がします。片面を剥がした後、残りの面を#5鉗子でつかみ、反対側に剥がします。
- マイクロスプーンを使用して頭蓋骨から脳をそっとすくい取り、冷たい1x PBSが入った新鮮な60mmの皿に脳を移します。
注:この時点で、全脳を固定して免疫染色のために埋め込むことができます。以前に公開された方法論32を参照してください。 - 他の分子アプリケーションのために組織をスナップ凍結する必要がある場合は、対象領域をサブダイスニングします。外側脳室、第3脳室、および第4脳室周辺の脳室周囲組織の分離について、以下に説明します。
- 湾曲した鉗子を使用して、後脳と前脳の接合部で脳を非利き手で保持します。利き手で、刃を脳の表面と平行にしてメスを持ちます。皮質中央部をしっかりと押し下げます(図1)。
- 後脳を保持したまま、後脳の前に2回目の切開を行い、前脳から分離します(図1)。最前部のセクションで、水平面内にある2つの小さな半円形のスペース、つまり側脳室を探します。各心室の中央に配置された湾曲した鉗子を使用して脳を所定の位置に保持し、#5鉗子を使用して内壁を慎重に解剖し、新鮮で清潔な1.5mLの微量遠心チューブに移します。
- 中央部で、腹面の小さな線形空間、つまり第3脳室を探します。#5鉗子を使用して、心室表面の両側の内壁を慎重につまんでから、新鮮で清潔な1.5mLの微量遠心チューブに移します。
- 最も後部のセクションで、後脳の中心にある小さな線形空間、つまり第4脳室を探します。#5鉗子を使用して両側の内壁を解剖し、新鮮で清潔な1.5mL微量遠心チューブに移します。
注:後脳をスライスすることがきれいなカットでない場合、第4脳室組織が不明瞭になったり、破壊されたりする可能性があります。 - ステップ4.3.2-4.3.4では、組織をマイクロ遠心チューブに入れた直後に、液体窒素が入ったクライオセーフ容器にチューブを素早く入れます。
注:チューブは、残りのサンプルが解剖されるまで液体窒素に保持できます。注意: 液体窒素は重度の凍傷を引き起こす可能性があります。液体窒素に直接手を突っ込んだり、飛沫を避けたりしないでください。 - 凍結したチューブをドライアイスの上に置き、凍結した組織を使用まで-80°Cの冷凍庫に移します。
結果
この技術によって得られた脳組織の質を説明するために、我々は、以前に報告された技術32に従ってGFAPについて免疫染色されたNestin−CFPnucマウス35からのサンプル胎児脳を示す。Nestin+細胞が側脳室の内側を覆っているのが見られ(図2A)、表面からGFAP+フィラメントが伸びています。CDの側脳室におけるNestinまたはGFAPの発現と、WTまたはNf1-ヘテロ接合株のいずれにおいてもObばく露マウスとの間に差は観察されなかった(図2A、B)。次に、マイクロダイセント組織の品質を評価しました。我々は最初に、CDとObばく露マウスの側脳室から単離されたマイクロ解剖組織に対して、ハウスキーピングタンパク質β-アクチンのウェスタンブロッティング36を行った。すべてのサンプルは、予想通りβ-アクチンの強い発現を示しました(図2C)。次に、以前に報告された方法論32に従って、マイクロディスセッション組織からRNAを単離しました。単離されたRNAは、高純度(260/280≥2)と完全性(RIN値≥9)の両方を示し、高純度で非分解されたRNAを示しました(図2D)。
次に、血清単離のさまざまな方法を比較しました。私たちのミニベット法を使用して、私たちは定期的に大量の非溶血血清を採取しましたが、重力ドレナージと胸部穿刺は、多くのサンプルで非常に変動する量の収集と溶血をもたらしました(図3A、B)。この手法で得られた血清の品質を示すために、製造元の指示に従って総コレステロール試薬を使用して総血清コレステロール値を測定しました。胎児のコレステロール値は、ヒトの胎児を対象とした先行研究に基づくと、妊娠後期の子犬の予想範囲内にあった37。野生型(図3C、左)とNf1-ヘテロ接合性の子犬(図3C、右)の両方で、CDばく露と比較して、Obばく露マウスでレベルが上昇しました。右のパネルは、患者が同定した生殖細胞変異(R681X、C383X)32,38,39を有する2つの異なるNf1-ヘテロ接合株からの結合データを示しており、両系統で同様のプロファイルが見られたことに留意されたい。
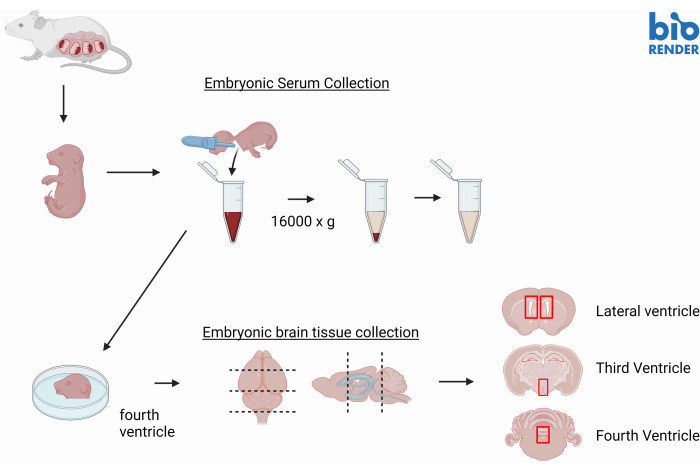
図1:ワークフローのグラフィカルな要約。 子犬は最初に妊娠中の母親から隔離されます。その後、子犬から血清を採取します。最後に、全脳を子犬から分離し、必要に応じて、関心のある領域をマイクロダイセントします。BioRender.com で作成されたグラフィック。この図の拡大版を表示するには、ここをクリックしてください。
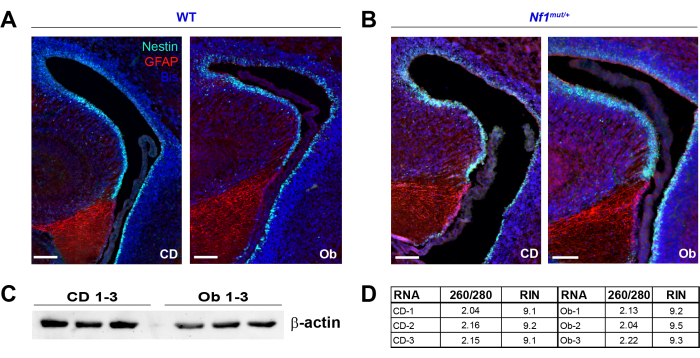
(A)Nestinプロモーターの制御下で核局在のシアン蛍光タンパク質を発現するNestin-CFPnucマウスの凍結切片脳を、この方法で回収し、以前に報告された方法論32に従ってGFAP(赤)で免疫染色した。Nestin陽性細胞は、内因性Nestin-CFPnuc発現(緑)を介して可視化されます。核をビスベンズイミド(青)で対比染色しました。CDとObに曝露されたWT脳との間に有意差はありませんでした。スケールバー = 100 μm. (B) Nestin-CFPnuc;Nf1mut/+の子犬も同様に評価されました。GFAPおよびNestin-CFPの分布はWTと類似しており、食事条件によって変化しなかった。(C)タンパク質は、LVからマイクロディスセッションされた組織から単離されました。ウェスタンブロッティングは、以前に報告された方法論36に従って、レーンあたり20μgのタンパク質をロードして実施しました。強いβ-アクチン発現は、すべてのサンプルで検出できました。(D)RNAは、以前に報告された方法論に従って、マイクロディスセッション組織から単離されました32。RNAの品質は、260/280比とRIN値によって評価されました。すべてのサンプルは、優れた260/280比(≥2)とRIN値(≥9)を示し、非分解RNAの良好な単離を示しました。略語:CFP =シアン蛍光タンパク質;GFAP = グリア線維性酸性タンパク質;WT = 野生型;LV = 側脳室;RIN = RNA完全性番号。この図の拡大版を表示するには、ここをクリックしてください。
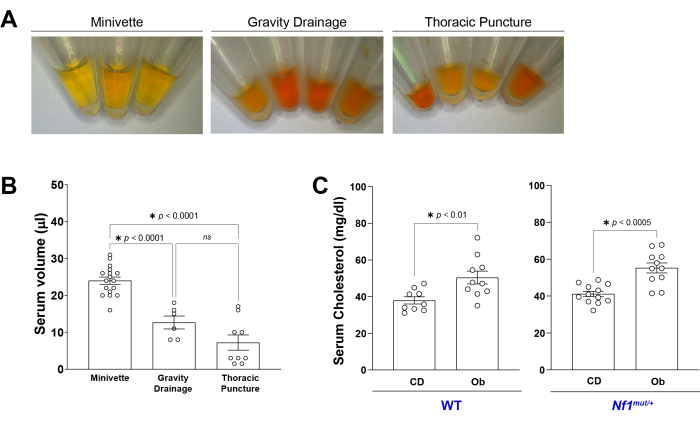
図3:例示的な結果および血清(A)記載された各方法から血清を採取した。ミニベットによる採血により、重力を利用したドレナージや胸部穿刺と比較して、溶血していない血清の日常的な採集が可能になりました。(B)血清の代表的な採取量を示す。Minivetteコレクションにより、大量の血清のより再現性の高いコレクションが可能になりました。多重比較による一元配置分散分析によって決定される統計的有意性。(C)総血清コレステロールは、CDとObに曝露されたWT(左)およびNf1-ヘテロ接合体(右)のプールされた胎児血清から測定されました。OBに曝露された動物は、両方の遺伝子型でより高い血清コレステロールを示しました。t検定によって決定される統計的有意性。エラーバー:SEM.略語:WT =野生型;CD =コントロールダイエット;Ob =肥満食。この図の拡大版を表示するには、ここをクリックしてください。
補足表S1:食事組成物。 この原稿で利用されているコントロールダイエットと肥満食の組成が示されています。注:D12331の個々の食事成分をより適切に制御する低脂肪、ショ糖を含まない食事療法には、D12328ダイエット(researchdiets.com)が好まれる場合があります。 このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
マウスから血液を採取する従来の方法には、球後静脈、尾静脈、伏在静脈、顔面静脈、および頸静脈出血40,41,42が含まれる。残念ながら、これらの方法は、動物のサイズと小さくて繊細な血管系のために、胚の採血には理想的ではありません。斬首後の重力を利用したドレナージによる採血は、サンプルの採集量が少なく、溶血が著しいことの両方をもたらしました。以前のプロトコルでは、胸部血管から血液を排出するために修正された20G針を使用することにより、体積が改善されたことが報告されていました33。しかし、この手法は技術的に困難であり、溶血率が高いことが観察されたため、多くのダウンストリームアプリケーションには適していないことがわかりました。私たちの方法には、受動的な血流による採取という利点があり、誤嚥による純粋なストレスによる溶血のリスクを軽減します。また、毛細血管チューブのプランジャーは、採血チューブに血液を迅速かつ効率的に送液する方法を提供し、空気への曝露を最小限に抑え、血栓の断片化を制限します。重要なことは、その後、同じ動物から全体または局所的に微小に解剖された脳組織を採取できるため、実験動物の総必要量を減らすことができるということです。
このプロトコルには、収集の品質と効率を最適化するための調整がないわけではありません。血清採取では、過剰な水分が動物を滑りやすくし、採血の質に悪影響を与えるまたは不安定なポジショニングの可能性を高める可能性があるため、採血前に動物から胚液と余分なPBSを穏やかに除去することが重要です。さらに、胚を保持したままの指の位置は重要であり、指が毛細管に隣接している場合、採取中に手袋をはめた指に血液が付着します。また、毛細血管の開口部を流れる血液に沈めるのではなく、隣接して保持することも重要です。チューブが水没すると、キャピラリーコレクションが中断されます。最後に、血清収集を最適化するために、ダウンストリームアプリケーションを慎重に検討する必要があります。例えば、グルコースは室温で未処理のチューブ内で経時的に分解されるため、グルコースレベル43,44を正確に定量するためには、フッ化ナトリウムまたはEDTA含有チューブへの収集が必要な場合があります。
脳組織の採取では、頭の両側の皮膚と透明な頭蓋骨を慎重に除去することが、きれいな抽出のために重要です。片側だけを切除すると、脳が頭蓋骨にくっついて除去を試みると、組織が裂けたり歪んだりすることがあります。脳を切片化するためには、前部を中部皮質から、中部皮質を後脳から分離するために、単一のきれいなスライスを作成することが重要です。複数の切開があると、組織の構造的完全性が損なわれたり、その後の顕微解剖の基準点が不明瞭になったりする可能性があります。最後に、サンプルの劣化を防ぐためには、サンプルを固定またはスナップ凍結するまで氷上に保持することが重要です。
私たちは、より大量の非溶血血清を日常的に収集するため、この方法を好みますが、欠点がないわけではありません。他の技術に比べて溶血は減少しますが、この方法でリスクがなくなるわけではありません。また、毛細血管は血液の流れが止まると血栓で詰まってしまうこともあるため、斬首後は速やかに作業を行い、凝固による採取失敗のリスクを軽減することが重要です。このプロトコルでは、サンプルの完全性を維持するために行われるサンプルの氷上への保管も、一部の表現型に悪影響を与える可能性があり、すべてのアプリケーションに適しているとは限りません。
結論として、この方法論は、同じ胎児から血清と全体または局所的に微小解剖された脳を同時に分離するために使用できます。この手法は、母親の食事療法による主要栄養素プロファイルの変化などの全身要因が、NF1またはその他の障害の神経発達にどのように影響するかに対処するために利用できます。
開示事項
著者には利益相反はありません。
謝辞
N Brossierは、神経線維腫症治療加速プログラム(NTAP、助成金#210112)によって資金提供された神経線維腫症臨床およびトランスレーショナル研究のフランシスS.コリンズ奨学生プログラムによってサポートされています。この出版物は、ジョンズ・ホプキンス大学医学部のNTAPからの資金提供によって部分的に支援されました。その内容は著者の責任であり、必ずしもジョンズ・ホプキンス大学医学部の公式見解を表すものではありません。St. Louis Children's Hospital(FDN-2022-1082からNMB)およびWashington University in St. Louis Diabetes Research Core(NIH P30 DK020579)による追加支援。顕微鏡検査は、ワシントン大学医学部、ワシントン大学小児発見研究所、セントルイス小児病院(CDI-CORE-2015-505およびCDI-CORE-2019-813)およびバーンズ・ユダヤ病院財団(3770および4642)の支援を受けて、ワシントン大学細胞イメージングセンター(WUCCI)を使用して実施しました。Nestin-CFPnuc35マウスは、Grigori Enikolopov氏(ルネッサンス医学部、ストーニーブルック大学、ニューヨーク州)から提供され、R681XまたはC383X生殖細胞変異32,38,39のいずれかに対してヘテロ接合性のNf1マウスは、David Gutmann氏(ワシントン大学医学部、ミズーリ州セントルイス)から寛大に提供されました。図 1 は BioRender.com を使用して作成されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| #5/45 フォーセプス | ・デュモン | 11251-35 | 先端形状:角度付き45°C; |
| 4200 タペステーション | アジレント | G2991BA | RNAの完全性と品質の確認、RIN値の測定 |
| ベンチトップ液体窒素容器 | サーモフィ | ッシャー2122 | またはその他のクライオセーフ容器 |
| 制御 | Chow PicoLab | 5053 | 研究用ダイエットD12328(低脂肪、低糖)も使用できます。 |
| 湾曲した鉗子 | コールパー | マーUX-10818-25 | 先端形状:湾曲した90°C; |
| 解剖ブレードハンドル | コールパーマーエッセンシャル | 10822-20 | SSシーゲルタイプ、#10〜#15ブレード |
| EMSスーパーカット解剖はさみ | 電子顕微鏡科学 | 72996-01 | 5½" (139.7 mm)、ストレート |
| GFAP 抗体 | Abcam | ab7260 | 希釈 1:350.0.3 Mグリシンを含む10%血清でブロックします。 |
| Glassvan炭素鋼外科用ブレード、サイズ11 | MYCO医療 | 2001T-11 | #11ブレードは、ストレート、フラットカットを可能にします |
| マイクロラボスプーン | Az Scilab | A2Z-VL001 | ステンレス鋼、オートクレーブ可能な |
| マイクロはさみ | ルビス | 78180-1C3 | モデル1C300 |
| ベット POCTニュートラル | Sarstedt | 17.2111.050 | 公称容量:50µL、準備なし |
| Nanorop | Thermo Fisher | 13-400-519 | RNA濃度、260/280比の測定 |
| Obesogenicダイエット | Researchdiets.com | D12331 | 高脂肪、高スクロース |
| 総コレステロール試薬 | サーモフィッシャー | TR13421 | 比色検出 |
| &β;-アクチン抗体 | 細胞シグナル伝達 | 8457 | 1:1,000を希釈します。 |
参考文献
- Listernick, R., Darling, C., Greenwald, M., Strauss, L., Charrow, J. Optic pathway tumors in children: the effect of neurofibromatosis type 1 on clinical manifestations and natural history. J Pediatr. 127 (5), 718-722 (1995).
- Fisher, M. J., et al. Integrated molecular and clinical analysis of low-grade gliomas in children with neurofibromatosis type 1 (NF1). Acta Neuropathol. 141 (4), 605-617 (2021).
- Cimino, P. J., et al. Expanded analysis of high-grade astrocytoma with piloid features identifies an epigenetically and clinically distinct subtype associated with neurofibromatosis type 1. Acta Neuropathol. 145 (1), 71-82 (2023).
- Lucas, C. -H. G., et al. Multiplatform molecular analyses refine classification of gliomas arising in patients with neurofibromatosis type 1. Acta Neuropathol. 144 (4), 747-765 (2022).
- Fisher, M. J., et al. Management of neurofibromatosis type 1-associated plexiform neurofibromas. Neuro-Oncol. 24 (11), 1827-1844 (2022).
- Packer, R. J., et al. Plexiform neurofibromas in NF1. Neurology. 58 (10), 1461-1470 (2002).
- Evans, D. G. R., et al. Malignant peripheral nerve sheath tumours in neurofibromatosis 1. J Med Genet. 39 (5), 311(2002).
- Prudner, B. C., Ball, T., Rathore, R., Hirbe, A. C. Diagnosis and management of malignant peripheral nerve sheath tumors: Current practice and future perspectives. Neurooncol Adv. 2, Suppl 1 i40-i49 (2020).
- Ma, Y., et al. A molecular basis for neurofibroma-associated skeletal manifestations in NF1. Genet Med. 22 (11), 1786-1793 (2020).
- Ozarslan, B., Russo, T., Argenziano, G., Santoro, C., Piccolo, V. Cutaneous findings in neurofibromatosis Type 1. Cancers. 13 (3), 463(2021).
- Hyman, S. L., Shores, A., North, K. N. The nature and frequency of cognitive deficits in children with neurofibromatosis type 1. Neurology. 65 (7), 1037-1044 (2005).
- Morris, S. M., et al. Disease burden and symptom structure of autism in neurofibromatosis type 1: a study of the International NF1-ASD Consortium Team (INFACT). JAMA Psychiatry. 73 (12), 1276-1284 (2016).
- Geoffray, M. -M., et al. Predictors of cognitive, behavioural and academic difficulties in NF1. J Psychiatr Res. 140, 545-550 (2021).
- Monroe, C. L., Dahiya, S., Gutmann, D. H. Dissecting clinical heterogeneity in neurofibromatosis type 1. Ann Rev Pathol. 12 (1), 53-74 (2017).
- Kehrer-Sawatzki, H., Mautner, V. -F., Cooper, D. N. Emerging genotype-phenotype relationships in patients with large NF1 deletions. Hum Genet. 136 (4), 349-376 (2017).
- Hou, Y., et al. Predictors of cognitive development in children with neurofibromatosis type 1 and plexiform neurofibromas. Dev Med Child Neurol. 62 (8), 977-984 (2020).
- Biotteau, M., et al. Sporadic and familial variants in NF1: an explanation of the wide variability in neurocognitive phenotype. Front Neurol. 11, 368(2020).
- Rodriguez, A., et al. Maternal adiposity prior to pregnancy is associated with ADHD symptoms in offspring: evidence from three prospective pregnancy cohorts. Int J Obes (Lond). 32 (3), 550-557 (2008).
- Andersen, C. H., Thomsen, P. H., Nohr, E. A., Lemcke, S. Maternal body mass index before pregnancy as a risk factor for ADHD and autism in children). Eur Child Adolesc Psychiatry. 27 (2), 139-148 (2018).
- Pugh, S. J., et al. Gestational weight gain, prepregnancy body mass index and offspring attention-deficit hyperactivity disorder symptoms and behaviour at age 10. Bjog. 123 (13), 2094-2103 (2016).
- Mina, T. H., et al. Prenatal exposure to maternal very severe obesity is associated with impaired neurodevelopment and executive functioning in children. Pediatr Res. 82 (1), 47-54 (2017).
- Oken, E., et al. Analysis of maternal prenatal weight and offspring cognition and behavior: Results from the Promotion of Breastfeeding Intervention Trial (PROBIT) Cohort. JAMA Netw Open. 4 (8), e2121429-e2121429 (2021).
- Buss, C., et al. Impaired executive function mediates the association between maternal pre-pregnancy body mass index and child ADHD symptoms. PLOS ONE. 7 (6), e37758(2012).
- Li, Y. -M., et al. Association between maternal obesity and autism spectrum disorder in offspring: a meta-analysis. J Autism Dev Disord. 46 (1), 95-102 (2016).
- Dow, C., Galera, C., Charles, M. -A., Heude, B. Maternal pre-pregnancy BMI and offspring hyperactivity-inattention trajectories from 3 to 8 years in the EDEN birth cohort study. Eur Child Adolesc Psychiatry. 32 (10), 2057-2065 (2023).
- Fast, K., et al. Prevalence of attention-deficit/hyperactivity disorder and autism in 12-year-old children: A population-based cohort. Devl Med Child Neurol. 66 (4), 493-500 (2023).
- Carter, S. A., et al. Maternal obesity and diabetes during pregnancy and early autism screening score at well-child visits in standard clinical practice. Autism. 28 (4), 975-984 (2023).
- West, Z., et al. Relationships between maternal body mass index and child cognitive outcomes at 3 years of age are buffered by specific early environments in a prospective Canadian birth cohort. J Dev Orig Health Dis. 14 (1), 42-52 (2023).
- Gutmann, D. H., et al. Neurofibromatosis type 1. Nat Rev Dis Primers. 3, 17004(2017).
- Martins, A. S., et al. Lower fasting blood glucose in neurofibromatosis type 1. Endocr Connect. 5 (1), 28-33 (2016).
- Martins, A. S., et al. Increased insulin sensitivity in individuals with neurofibromatosis type 1. Arch Endocrinol Metab. 62 (1), 41-46 (2018).
- Brossier, N. M., Thondapu, S., Cobb, O. M., Dahiya, S., Gutmann, D. H. Temporal, spatial, and genetic constraints contribute to the patterning and penetrance of murine Neurofibromatosis-1 optic glioma. Neuro Oncol. 23 (4), 625-637 (2020).
- de Lurdes Pinto, M., et al. Technical Report: Mouse fetal blood collection taking the best out of the old needle-syringe method. Scandinavian Journal of Laboratory Animal Science. 35 (1), 5(2008).
- Musillo, C., et al. Bdnf-Nrf-2 crosstalk and emotional behavior are disrupted in a sex-dependent fashion in adolescent mice exposed to maternal stress or maternal obesity. Transl Psychiatry. 13 (1), 399(2023).
- Encinas, J. M., Vaahtokari, A., Enikolopov, G. Fluoxetine targets early progenitor cells in the adult brain. Proc Natl Acad Sci U S A. 103 (21), 8233-8238 (2006).
- Anastasaki, C., et al. Human induced pluripotent stem cell engineering establishes a humanized mouse platform for pediatric low-grade glioma modeling. Acta Neuropathol Commun. 10 (1), 120(2022).
- Cai, H. -J., Xie, C. -L., Chen, Q., Chen, X. -Y., Chen, Y. -H. The relationship between hepatic low-density lipoprotein receptor activity and serum cholesterol level in the human fetus. Hepatology. 13 (5), 852-857 (1991).
- Toonen, J. A., et al. NF1 germline mutation differentially dictates optic glioma formation and growth in neurofibromatosis-1. Hum Mol Genet. 25 (9), 1703-1713 (2016).
- Guo, X., Pan, Y., Gutmann, D. H. Genetic and genomic alterations differentially dictate low-grade glioma growth through cancer stem cell-specific chemokine recruitment of T cells and microglia. Neuro Oncol. 21 (10), 1250-1262 (2019).
- Parasuraman, S., Raveendran, R., Kesavan, R. Blood sample collection in small laboratory animals. J Pharmacol Pharmacother. 1 (2), 87-93 (2010).
- Meyer, N., et al. Impact of three commonly used blood sampling techniques on the welfare of laboratory mice: Taking the animal's perspective. PLOS ONE. 15 (9), e0238895(2020).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. J Appl Toxicol. 21 (1), 15-23 (2001).
- Jung, J., Garnett, E., Rector, K., Jariwala, P., Devaraj, S. Effect of collection tube type on glucose stability in whole blood. Ann Clin Lab Sci. 50 (4), 557-559 (2020).
- Bonetti, G., et al. Which sample tube should be used for routine glucose determination. Prim Care Diabetes. 10 (3), 227-232 (2016).
再版と許可
