早産は、世界的に新生児死亡率と罹患率の主な原因であり続けており、予防療法は限られています。臨床的に緊急に必要とされています
革新的な介入の翻訳のための関連性のある再現性のある動物モデル
現実になるために。早産のさまざまなマウスモデルが存在します。ただし、神経病理学的変化や
上行性感染症と早産の特徴的な後遺症である肺損傷。私たちの知る限り、膣から上昇する生きた細菌による早産の誘発後にこれらの新生児の罹患率が存在するという人間のシナリオを模倣する唯一のモデルを特徴付けました。この論文では、大 腸菌 の生物発光株の膣内投与を実証し、免疫組織化学および組織学的技術を使用した神経病理学的転帰と肺損傷の評価について詳しく説明します。
この記事について
要約
概要
早産 (PTB; 分娩< 37 週) は、世界中の新生児死亡率の主な原因です 1,2。全出生の 11% を占めるこれは、複雑な病因がよく理解されていない主要な世界的な健康問題であり、予測と予防が困難です 3,4,5。PTBの新生児生存者は、脳性麻痺、気管支肺異形成(BPD)などの呼吸器疾患、壊死性腸炎(NEC)などの胃腸障害などの神経発達の有害な転帰を経験する可能性があります6,7,8。したがって、PTB に寄与する生物学的経路に対処し、革新的な介入を開発するために、臨床的に関連性のある再現性のある動物モデルが緊急に必要とされています。
脱落膜老化、母体胎児耐性の崩壊、ストレス、子宮頸部の長さの短さ、子宮頸部の損傷など、自然発生性 PTB の根底にある可能性のあるメカニズムは数多くあります9。しかし、自然発生性PTBの少なくとも40%は微生物感染に関連していると報告されています10,11。膣管から子宮頸部を通って子宮に上昇する微生物は、羊水から分離された微生物と膣微生物叢に生息する微生物との相関関係により、一般的な感染経路として仮説が立てられ、広く受け入れられています 12,13,14。早産に関連することが多い微生物には、マイコプラズマ、ウレアプラズマ、フソバクテリウム、および連鎖球菌の種が含まれ、ほとんどの場合は多微生物です15,16。
マウスはPTBのモデル化によく使用され、最も一般的なアプローチは細菌毒素リポ多糖類(LPS)の投与であり、これは子宮内、腹腔内、または羊膜内経路を介して送達され、分娩を開始するために必要なレベルの炎症を誘発することができます17。ただし、LPS は生きた微生物感染をモデル化しておらず、重要なことに、LPS は胎児死亡を誘発するため、これらのモデルでは新生児の転帰を測定できません18。近年、上行性膣細菌感染の動物モデルが開発されていますが、早産と関連する新生児転帰の両方を要約することは課題でした19、20、21、22、23、24。
私たちのグループは、ヒト PTB25 の病態生理学を要約する、上行膣細菌感染、早産、および新生児罹患率の新しいモデルを確立しました。ここでは、ヒト新生児髄膜炎に関連する病原性 大腸菌 (大腸菌)株による母体の上行膣感染症にさらされた子犬の新生児神経病理学と肺損傷を評価する方法を示します。このモデルは、上行感染の病態生理学を調査するユニークな機会を提供するだけでなく、新生児の転帰の改善における早産介入の有効性を評価する手段を提供します。
プロトコル
手続きは、動物科学的手続き法(1986年)およびARRIVEガイドラインに従って、英国内務省ライセンス(PAD4E6357)の下で実施されました。温度(19〜23°C)、湿度(~55%)、および12時間の明暗サイクルを厳密に制御しました。処女雌のC57BL / 6 Tyrc-2J マウス(6〜12週齢)を16〜18時間一晩時間交配しました。交尾プラグの証拠は、胚日 (E) 0.5 として割り当てられました。
病原性大 腸菌 O18:K1(A192PP)26、A192のラット継代株(DSM.No. 10719)27は、線虫共生生物 Photorhabdus Luminescens ATCC29999(Hb株)に由来し、カナマイシン耐性カセット(Km2)を含むルクスオペロン(luxCDABE)を含むように修飾されました28。この株は、英国政府の危険病原体諮問委員会 (ACDP) によってハザード グループ 2 に分類されています。生物剤の取り扱いや廃棄は、適切な個人用保護具 (PPE) を着用し、地域のガイドラインに従ってください。
1. 上行性膣細菌感染のマウスモデル
- 大 腸菌 培養物の調製
- 粉末を蒸留水(dH2O)に溶解して20%溶液を作り、オートクレーブすることにより、ルリア・ベルタニ(LB)ブロスを調製する。LBが室温まで冷めたら、50 μg/mLのカナマイシンを加えます。4°Cで最大1週間保存してください。
- 固体を滅菌リン酸緩衝生理食塩水(PBS)に溶解することにより、20%プルロニックゲルF127溶液を調製します。ボルテックスして4°Cで一晩混合し、撹拌します。
- 抗生物質で処理されたLBブロス10 mLを滅菌30 mLユニバーサル容器に加えます。-80°Cの保管から 大腸菌 の凍結グリセロールストックを取り出します。滅菌ピペットチップを使用して、大 腸菌の冷凍グリセロールストックをこすり落とし、チップの端を軽くコーティングし、チップをLBブロスに直接排出します。ユニバーサル容器をパラフィルムで固定し、バイオハザードとしてラベルを付け、37°Cで一晩(200 rpm)オービタルシェーカーに入れます。
- 翌朝、細菌培養物を1:100(培養液0.1 mL + 新鮮なLBブロス9.9 mL)に希釈し、オービタルシェーカーに1.5〜3時間(37°Cで200 rpm)戻し、600 nmで吸光度を測定して培養物の成長を定期的にチェックします。培養物100 μLを2回に分けて、透明で底が平らな96ウェルプレートにピペットで入れます。光路長補正を作動させた分光光度計で吸光度を測定します。OD600 が 0.5 から 0.7 の間では、成長の中間対数期を示します。
- OD600 0.5-0.7 (~108-9 コロニー形成単位 [CFU]) に達したら、細菌培養物から 100 μL を除去し、900 μL の滅菌 PBS で希釈します。14,000 × g で 1 分間遠心分離して、細菌ペレットを洗浄し、LB ブロスを除去します。上清を取り除き、細菌ペレットを滅菌PBSに再懸濁し、滅菌PBSで1:10,000に希釈します(102〜3 CFUまで)。
- 廃棄する前に、細菌にさらされたすべてのチップと容器を消毒してください。
- 麻酔
- E16.5では、イソフルラン(誘導に5%、酸素維持に1.5%)を吸入して妊娠マウスを麻酔します。麻酔の流れを移し、次に動物をノーズコーンに移し、女性を腹臥位に置きます。つま先ピンチ反射がないことで麻酔を確認し、イソフルランを処置に必要な最小の割合に維持します。
注意:イソフルランは、目と皮膚を刺激し、中枢神経系に毒物です。適切なPPEを着用してください。常に清掃システムを使用してください。 - 滅菌200 μLピペットチップを使用して、20 μLの中間対積分期 大腸菌 (滅菌PBSに再懸濁した1×10²-3 CFU)または滅菌PBS(ビヒクルコントロール)を膣に投与します(図1)。新鮮な滅菌200 μLピペットチップを使用して、20 μLの20%プルロニックゲルF127ゲルを膣に送達し、細菌の漏れを防ぎます。滅菌ガーゼを使用して、キニーネ粉末を入口に軽くたたき、マウスが細菌懸濁液を洗浄するのを防ぎます。治療の日時を記録します。
注:使用されたCFUは、望ましい表現型(生きた子犬による早産)を達成するための滴定実験に基づいていました。CFUは、LB寒天プレート29に連続希釈およびプレーティングを行うことによって決定することができる。 - 動物を個別に換気されたケージ(IVC)に単独でケージに入れ、ケージを留置室に戻す前に麻酔から回復させます。ケージをバイオハザードとして明確にマークします。動物が通常の行動を再開するまで監視します。
注:この手順は5分以内であり、動物は迅速に(2〜5分以内)回復するはずです。
- E16.5では、イソフルラン(誘導に5%、酸素維持に1.5%)を吸入して妊娠マウスを麻酔します。麻酔の流れを移し、次に動物をノーズコーンに移し、女性を腹臥位に置きます。つま先ピンチ反射がないことで麻酔を確認し、イソフルランを処置に必要な最小の割合に維持します。
- 妊娠転帰の測定
- 各ケージの外側にカメラを1台取り付けてCCTVを設置し、マウスの分娩と子犬の出産の兆候がないか監視します。出産までの時間を、 大腸菌 またはPBSの経膣内投与時(ステップ1.2.2)から最初の子犬の出産までの時間数として記録します。
- 出産時の生きた子犬/死んだ子犬の数を記録し、同腹児あたりの生存率を計算します。ダムと子犬を毎日観察し、生後7日までの子犬の生存を記録し、ダムの回復を確実にします。この期間中、子犬の体重や体長などの他の測定を行います。
注: 分娩の信号には、身だしなみの増加、円を描くように回転する、後ろ足を伸ばしたり蹴ったりすることが含まれます。これは生きた細菌感染症であるため、ダムは時間の経過とともに(通常は治療後24時間)症状を発症します。メスは感染から回復する必要がありますが、出産後も感染の症状を示している場合、巣を作っていない、または初日以内に子犬に餌を与えていない場合は、スケジュール1の方法を使用して動物を人道的に犠牲にします(濃度の上昇でCO2 への曝露や頸部脱臼による死亡の確認など)。
- 生物発光イメージング
- 細菌接種後、以下に説明するように、24時間と48時間で女性を画像化して、感染の拡大を追跡します。生後(P)0からP14までの子犬を、麻酔を必要とせずに画像化します。
- イメージングソフトウェアを開いた後、[ 初期化] をクリックし、カメラが動作温度に達するまで待ちます(温度バーが緑色に変わり、「ロック」)。[ Luminescent imaging] のチェックボックスをオンにし、[ Excitation Filter ] が [Block ] に設定され、[ Emission Filter] が [Open] に設定されていることを確認します。
- イソフルランの吸入によって成人女性を麻酔します(導入の場合は5%、酸素維持の場合は1.5%)。マウスへの麻酔を維持しながら、動物を生物発光イメージングマシン(加熱ステージ付き)に仰臥位に置きます。 自動 露光時間を選ぶか、 手動で露光時間 を設定します(露光範囲: 1分〜5分)。画像処理後、動物をケージに戻して麻酔から回復してから、収容室に戻します。
- 光子放射輝度を定量的に測定するには、マウス画像上の関心領域(ROI)を選択し、ステラジアンあたりのセンチメートル2乗あたりの1秒あたりの光子数(光子・(秒cm2)-1・sr-1))を記録します。
2. 胎児および新生児の組織分析
- 周産期組織の採取
- E18.5では、CO2 濃度の上昇にさらされ、子宮頸部脱臼による死亡が確認されることによってダムを犠牲にし、子宮を切除するためのミニ開腹術を行います。次に、はさみを使用して子宮を切開します。
- 羊水を採取する場合は、膜に小さな切開を行い、パスツールピペットまたは無針注射器を使用して羊水を採取します。
- 鉗子を使用して、片手で胎盤が付着している点で子宮の外側を持ち、もう一方の手で湾曲した鉗子で、組織をからかい、胎児を慎重に導き、子宮の内壁から胎盤をそっと切り離します。繰り返しになりますが、鉗子を両手に持ち、胎盤をそっと押さえ、胎盤と接する部分の膜をつかんで摘み取ります(膜がきれいに剥がれるようにします)。
- 組織が分離されたので、必要な妊娠組織(子宮、胎盤、胎児膜、子宮頸部、膣など)を採取し、胎児組織(脳、肺、腸など)を解剖します。
- ドライアイスまたは液体窒素で組織をすぐに急速凍結するか、パラホルムアルデヒド(PFA、PBS中で4%)で組織を固定します。
- スナップ凍結した組織を-80°Cで保存し、組織を24〜48時間固定します。次に、30%スクロースで4°Cで保存します。
注意: PFAは可燃性であり、目、皮膚、呼吸器の炎症を引き起こす可能性があります。バイオセーフティキャビネットに4%溶液を調製し、取り扱いの際は適切なPPEを着用してください。
- 出生後の組織採取
- P7では、イソフルランを使用して子犬を麻酔します(誘導の場合は5%、酸素の維持の場合は1.5%)。
- 右心房を切開して放血と組織灌流を行い、左心室にPBS10mLを注入します。死骸の首を切り、滅菌ハサミと鉗子を使用して脳と肺を取り除きます。上記のように組織を処理して保存します。
注:母体および胎児のスナップ凍結組織は、qPCR、ELISA、およびウェスタンブロットによって炎症性およびその他のメディエーターについて分析できます。これらの技術のプロトコルは、試薬メーカーまたは他の出版物25、30、31から容易に入手できます。
- 胎児および新生児の脳の凍結切片
- 刃を使用して小脳を取り除き、平らな面を作り、ドライアイスで組織を凍らせます。最適切断温度(OCT)コンパウンドを使用して凍結組織を検体ホルダーに取り付け、OCTの薄層で組織を覆います。凍結させます(1〜2分)。
- -20°Cに設定されたクライオスタットを使用して、レバーがロックされていることを確認し、試料ホルダーをロードします。組織の位置を細かく調整し、所定の位置にロックします。組織をトリミングし、脳梁の融合からマイクロスライドで組織切片の収集を開始し、すぐにドライアイス上で切片を凍結します。各組織の50個の連続40μm切片を切断します。
注意: 鋭利な刃には注意してください。 - 凍結切片をマイクロスライドに-80°Cで保存します。
- 免疫組織化学
注:以下のプロトコルを使用して、アストロサイト(グリア線維酸性タンパク質;GFAP)、ミクログリア(同種移植片炎症因子1;IBA-1)、および好中球(リンパ球抗原6ファミリーメンバーG;Ly6G)を呼び出します。抗体情報は、 表1.- 脳ごとに 400 μm 間隔で 5 つのセクションを選択すると、脳のさまざまな深さでさまざまな脳領域を評価できます。凍結切片をdH2Oの滴で再水和し、2本の細いブラシを使用して組織を広げて広げます。ファンの下で組織を20〜30分間乾燥させます。疎水性(PAP)ペンを使用して、組織に触れずに慎重に組織の周りを描きます。
- 1日目に、50 mLキュベット1個(スライド容量15個)に対して、50 mLの0.1 Mリン酸緩衝液(PB)50 mLに5.4 mLのホルムアルデヒドを添加して、4%ホルムアルデヒド(FA)を調製します。スライドをFAに5分間浸漬して凍結切片を固定し、スライドへの接着を可能にし、抗原を固定します。
注意: FAは可燃性であり、目、皮膚、呼吸器の炎症を引き起こす可能性があります。バイオセーフティキャビネットに4%溶液を準備し、取り扱いの際は適切なPPEを着用してください。 - 0.1%ウシアルブミン血清(BSA)を400 mLの0.1 M PBに0.4 gのBSAを加えて調製します。切片を0.1 M PBに浸漬して2回洗浄し、続いてBSAで1回洗浄します(洗浄あたり~3秒)。スライドの保存場所
必要になるまでBSAを含むキュベット。 - ティッシュペーパーをdH2Oで濡らして湿度チャンバーを準備し、これらをチャンバーに入れ、余分な水を排出します。
- 5%ヤギ血清(1 mLの0.1 M PB中の50 μLのヤギ血清)を調製します。組織切片の周りのスライドをティッシュペーパーで慎重に乾かし、PAPペンの境界線が損なわれていないことを確認し、組織切片ごとに50 μLの溶液を塗布します。湿度チャンバーで30分間インキュベートします。
- スライドをきれいなティッシュペーパーで軽くたたいて血清を取り出し、BSAで希釈した一次抗体を加えます(抗体と希釈液を 表1に示します)。4 °Cで一晩インキュベートします。
- 2日目に、二次抗体をマウス血清中( 表1を参照)で37 °Cで30分間インキュベートし、BSA(1:100希釈)に添加します(例えば、5 mL BSA + 100 μLマウス血清+ 50 μL二次抗体)。
- スライドをBSAに浸して(~3秒)、次に0.1 M PBに1回洗浄してスライドを2回洗浄します。スライドをBSAを含むキュベットに保持し、各組織切片の周りの境界を軽くたたいて乾かします。組織切片あたり50 μLの二次抗体溶液を塗布し、湿度チャンバーで1時間インキュベートします。
- 1 mLの0.1 M PBに10 μLのAと10 μLのBを加えて、アビジンビオチン複合体(ABC)(0.1%希釈)を調製します。スライドをBSAに2回、0.1 M PBに1回浸漬し(~3秒)、スライドを0.1 M PBを含むキュベットに入れます。スライドを軽くたたき乾燥させ、スライドあたり50 μLのABC溶液を塗布し、湿度チャンバーで1時間インキュベートします。
- ジアミノベンジジン(DAB)溶液を調製します。キュベットあたり25 mgのDABを計量し、50 mLの10 mM PBに溶解し、No.4ろ紙でろ過します。
注意:DABは、生殖細胞の変異原性と発がん性の可能性があり、健康被害があります。適切なPPEを着用し、安全に廃棄してください。 - スライドを10 mM PBで3 x 3秒洗浄し、10 mM PBを含むキュベットに入れます。過酸化水素(H2O2)をDAB溶液に加えてから、すぐに溶液を新しいキュベットに注ぎます(キュベットあたり16.7 μLのH2O2 )。スライドをDABキュベットに移動し、顕微鏡下で染色強度を常に確認しながら、~3分間(最大5分間)放置します。
注意: H2O2 は、目、皮膚、喉を刺激する可能性があります。適切なPPEを着用してください。 - スライドを10 mM PBで1回、dH2Oで2回洗浄し(3秒)、スライドを乾燥させます。ドライスライドをキシレンに3回浸します。DPX封入剤をカバーガラスに一滴塗布し、気泡を避けるように注意しながら組織切片の上に置きます。
注意: キシレンとDPXは可燃性であり、目、皮膚、呼吸器の炎症を引き起こす可能性があります。バイオセーフティキャビネットで取り扱い、取り扱いの際は常に手袋を着用してください。
- ニッスル染色
- 1日目に、組織をdH2Oで再水和して広げます。50 mLの0.1 M PBに5.4 mLのFAを加えて4%FAを調製し、すぐに使用します。スライドを4%FAで一晩インキュベートします。
- 2日目に、スライドを4%FAから70%エタノール(EtOH)に移動し、一晩インキュベートします。
- 4 gのクレシルバイオレットを40 mLの100%EtOHに溶解して、密閉された50 mLのコニカルチューブでNissl染色を調製します。15分間反転させ、溶液を360 mLの温かいdH2Oに加え、攪拌プレート上で20分間混合します。使用前に溶液をろ過してください。
- 3日目に、 表2に概説されている染色手順に従い、組織切片をDPXでカバースリップします。
- 末端デオキシヌクレオチジルトランスフェラーゼdUTPニック末端標識(TUNEL)
- 組織をdH2Oで再水和して広げ、スライドを4%FAで5分間インキュベートします。スライドをH2O2 とメタノール(CH3OH)(1:10)の溶液に移動し、15分間インキュベートします。スライドを0.1 M PBで2 x 3秒間洗浄し、0.1 M PBを含むキュベットに入れます。
- 製造元の指示に従って、氷上でTUNEL溶液を準備します。溶液をスライド(組織切片あたり50 μL)に加え、湿度チャンバー内で37 °Cで2時間インキュベートします。
- 1時間インキュベート後、ステップ2.4.9で説明したようにABC溶液を調製し、室温でインキュベートします。
- 2時間後、スライドをTUNEL STOP溶液(300 mM NaCl、30 mMクエン酸ナトリウム)に10分間移動させ、スライドを浸して10 mM PBS溶液で3 x 3秒洗浄します。スライドをABC溶液中で1時間インキュベートします。
- 硫酸コバルト(100 mLのdH2Oに1.55 gの無水CoSO4)および塩化ニッケル六水和物(100 mLのdH2Oに2.38 gのNiCl2・6H2O)を調製します。DAB Co-Ni溶液(10 mM PB + 25 mg DAB + 1 mL/100 mLのCo + 1 mL/100 mLのNi)を調製します。溶液を真空下でろ過し、暗所に保管します。DAB溶液をキュベットに注ぐ直前に、50 mLキュベットあたり16.7 μLのH2O2を加えます。
- 1時間後、スライドをDABキュベットに移動し、室温で~3分間インキュベートし、染色強度を常にチェックします。スライドを10 mM PBを含むキュベットに移動して反応を停止します。dH2Oに2 x 3秒浸漬して洗浄し、組織切片を乾燥させてからDPXでカバースリップします。
- ヘマトキシリンおよびエオシン染色 (H&E)
- 組織をdH2Oで再水和して広げ、切片を自然乾燥させます。
- スライドをヘマトキシリンに2分間浸します。
注意:ヘマトキシリンは目や皮膚の炎症を引き起こす可能性があります。適切なPPEを着用してください。 - スライドを流水水で5分間すすぎ、酸性アルコールで1秒間脱色し、水道水ですすいでください。
- 0.5%エオシン(1.5 gを300 mLの95%EtOHに溶解)で30秒間対比染色します。
注意: エオシンは可燃性であり、目や皮膚に炎症を引き起こす可能性があります。バイオセーフティキャビネットで溶液を準備し、適切なPPEを着用します。 - 組織切片をEtOHの勾配で脱水します:50%、70%、95%、最後に100%EtOHをそれぞれ3分間。スライドをキシレンに2 x 5分間移動させます。DPX付きカバースリップ。
3. 神経病理学および肺損傷の組織学および免疫組織化学的評価
注:評価は、皮質、梨状皮質、外嚢、線条体、海馬、視床の領域で実行できます(図2)。E18.5脳の場合、細胞の分化がまだ完了しておらず、グリア細胞がすべての脳領域に移動していないため、脳梁を含めることもできます。評価者は、治療グループを知らされていない必要があります。
- TUNEL+ 細胞死
- 従来の顕微鏡を使用して、すべての脳領域で20倍の倍率で両側でTUNEL染色陽性の細胞をカウントします(図2)。
- 脳領域ごとにランダムに選択された 3 つの光フィールドを評価し、脳領域ごとに平均細胞数を計算します。
- Nissl 形態評価
- カラーカメラを使用して1倍の倍率で組織全体の画像をキャプチャし、TIFFファイルまたはその他の希望の形式として保存します。さらに分析するために、画像を ImageJ にインポートします。
- 関心のある脳領域(皮質や海馬など)の輪郭を描き、 フリーハンドツール を使用して測定します(図2)。
- 組織測定値を取得するには、式を適用します:(mm2 × 400 μm)=体積×100(改訂32)。
- ミクログリア分枝指数
- 0.049 mm x 0.049 mmの正方形のグリッド機能を備えた顕微鏡を使用して、40倍の倍率でグリッド内のIBA-1+細胞体の数(C)とグリッド線を横切る枝の平均数(B)をカウントします。これを、図2に示す脳領域ごとにランダムに選択された3つのフィールド(図3を参照)で実行します。
- 式(B2 / C)を使用して、ミクログリア分岐指数を計算します。
- GFAP染色強度の光学輝度
- 参照ソフトウェア(材料表)とカラーカメラを40倍の倍率で使用し、脳領域ごとにランダムに選択された3つのフィールドをキャプチャします(図2)。 Ctrl+H を押して、平均と標準偏差 (SD) を表示するヒストグラムを取得します。平均値とSD値をスプレッドシートに記録します。周囲のガラスのみ(つまり、組織なし)の制御画像をキャプチャし、以前と同様に平均値とSD値を記録します
- スプレッドシートの光学輝度値 (OLV) を計算するには、次の式を使用します。
OLV = (ガラスの平均 - ガラスの標準偏差) - ([画像あたりの平均 - 画像あたりの標準偏差] の平均)
メモ: 次に例を示します。
周囲のガラス
平均±SD = 143.5 ± 8.56
脳領域(皮質など)
1. 136.7 ± 10.6
2. 140.6 ± 10.4
3. 137.4 ± 11.3
OLV = (143.5 - 8.56) - ( [136.7 - 10.6]、[140.6 - 10.4]、[137.4 - 11.3] の平均)
OLV = 134.94 - 127.47
OLV = 7.47 - 地域ごと、動物ごと、実験グループごとに各値を平均します。
- 肺の形態評価
- H&E切片を40倍倍率(スライドごとに3つの光学フィールド、フィールドごとに空域を測定)でキャプチャし、TIFF(または同等のもの)として保存し、画像をImageJにインポートします。肺切片全体を表すフィールドをランダムに選択します。
- フリーハンドツールを使用して、空域の輪郭を描き、測定値を記録します(図4A)。フィールドごとに 3 つの空域の平均を見つけ、次にセクションごとに 3 つのフィールドの間で、最終的にはサンプルごとに 3 つのセクションの間での平均を求めます。
- 肺への好中球の流入
- カラーカメラを使用して40倍の倍率で、肺組織切片ごとに3回サンプル画像をキャプチャし、元のファイルをTIFFファイルまたはその他の希望の形式として保存します。画像をImageJにインポートし、同じ肺の3つのフィールドで個々の好中球を手動でカウントします。肺あたりの好中球の平均を計算します。
結果
このプロトコルは、上行性膣感染症のマウスモデルを提示し、新生児の神経病理学および呼吸転帰を評価する方法を記述する。上行性膣感染症を誘発する手順は迅速(5分以内)である必要があり、マウスは数分以内に回復するはずです。ダムは約24時間25後に感染の症状を発症しました。これには、ゆっくりとした動き、立毛、猫背の姿勢が含まれます。感染マウスのおおよその平均送達時間は、大腸菌投与後40.3時間(PBS対照群平均52.7時間)であり、E19.5のPBS対照群の正期分娩と比較して、E18.5で発生しました31。一腹当たりの生きた子犬の割合は、生後7日間の生存率と同様に、感染により減少しました(100%から71.4%)(図5)25。生物発光細菌を使用すると、イメージングによりダムや子犬の感染拡大を追跡できます。投与後18時間以内に子宮、胎児膜、胎盤、および一部の胎児で細菌が観察され(図6)、qPCRおよびELISAによって測定された炎症性メディエーターは、これらの組織、および脳、肺、腸などの周産期の子犬組織でアップレギュレートされました25,29,31。
形態、細胞死、ミクログリア活性化、星状細胞活性化の評価などの一連の神経病理学的評価が、組織学および免疫組織化学を使用して胎児および新生児に対して実施されました 25,31,33。肺組織も評価できます(図4および図7)。TUNELの陽性染色は、細胞死の後期段階であるDNA分解を示唆しています34。妊娠中に大腸菌感染にさらされた子犬の脳の皮質、梨状皮質、外嚢、海馬、視床におけるTUNEL染色の有意な増加が見られます(図8A、B)31。脳の常在免疫細胞であるIBA-1標識ミクログリアは、その形態学的状態によって分類することができ、それによって分岐は安静時の表現型を示唆し、活性化された食細胞はアメーバまたは丸みを帯びた形状になります35。したがって、ミクログリア細胞を定量化するのではなく、それらの状態の指標としてそれらの表現型を評価する戦略を提示します。PBSグループと比較して、大腸菌の子の外皮質と線条体におけるIBA1+の影響の増加が見られます(図8C、D)31。炎症および神経損傷に関連する可能性のあるGFAP標識反応性星状細胞は、梨状皮質および外部カプセルで増加した 大腸菌 子犬(図8E、F)31、36、37。ニッスル染色により、脳の構造に対する肉眼的な形態学的変化の評価が可能になります。クレシルバイオレットは、ニューロンの標準的な組織学的染色剤であり、核外RNA顆粒と細胞核の両方を標識します。大腸菌グループでは、皮質の厚さが減少しています(図9)31。同様に、細胞の核と細胞質をそれぞれ染色するH&Eは、肺の形態の評価を可能にします(図4)31。大腸菌に曝露したマウスの空域の増加と、炎症の兆候であるLy6G+好中球の数の増加が見られます(図7)31。
データ分析では、データが正規分布している場合、対応のない t 検定によって配信までの時間を分析しました。生きた子犬のパーセンテージデータでは、最初に、t検定を実行できるようにするための要件の1つである、比率分布(0から1の範囲で制限される)を正規分布に変換するために、アークサイン平方根変換が必要でした。子犬の生存率は、ログランク(Mantel-Cox)検定によって分析されました。組織学および免疫組織化学では、データの種類と正規分布しているかどうかに応じて、マンホイットニー のU 検定またはウェールズ補正を伴う複数の t 検定のいずれかが使用されました。十分な統計的検出力を得るには、治療グループごとに最低 5 つのダムを使用することをお勧めします。
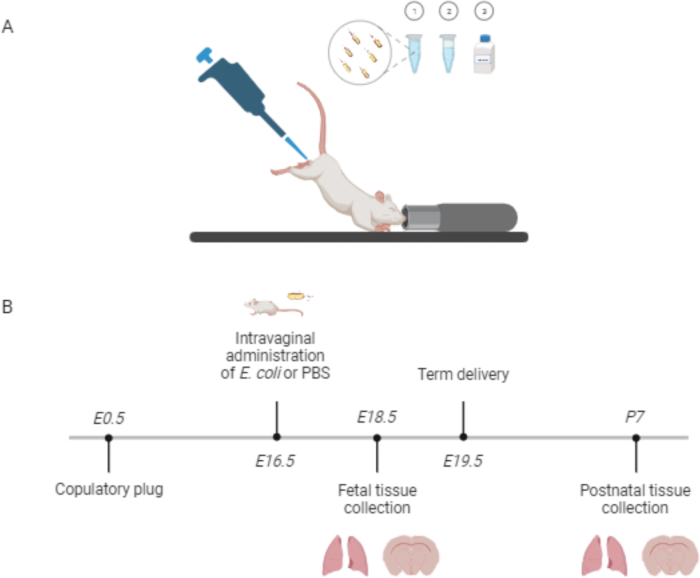
図1:大 腸菌 の膣内投与と、マウスの早産と新生児罹患率を誘発するための治療タイムライン。 (A) 大腸菌 [1]、続いて20%プルロニックゲルF127[2]を、滅菌200 μLピペットチップを使用してマウス膣に投与します。キニーネ粉末がイントロイトに追加されます[3]。(B) 大腸菌 は、胚16.5日目に膣に送達されます。肺や脳などの組織は、胎児期または新生児期に収集できます。略語:EN =胚日N;PN = 生後 N 日目。PBS = リン酸緩衝生理食塩水。 この図の拡大版を表示するには、ここをクリックしてください。
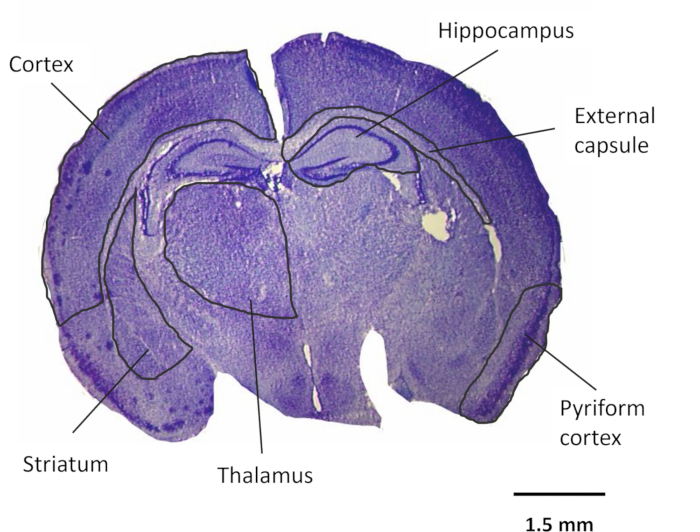
図2:神経病理学について評価された脳領域。 新生児の子犬脳のNissl染色の例と神経病理学のために評価できる領域。すべての脳領域は、TUNEL、IBA-1、および GFAP について評価できます。Nisslを使用して皮質と海馬の形態を評価することにしました。倍率:1倍。スケールバー = 1.5 mm。略語:TUNEL =末端デオキシヌクレオチジルトランスフェラーゼdUTPニック末端標識;IBA-1 = 同種移植片炎症因子 1;GFAP =グリア線維性酸性タンパク質。 この図の拡大版を表示するには、ここをクリックしてください。
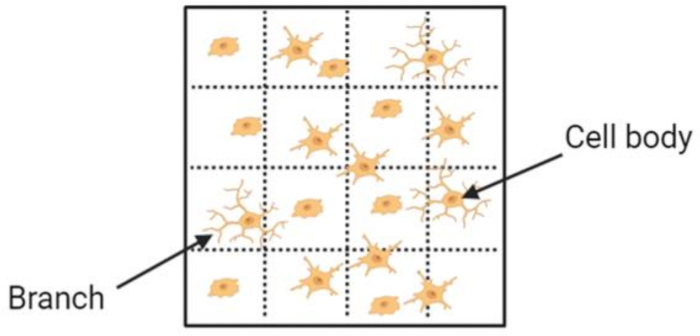
図3:陽性のIBA-1染色および分枝指数評価。 IBA-1+ 細胞の分枝指数を定量化するには、グリッド内の細胞体の数と、水平および垂直のグリッド線を横切る枝の平均数を数えます。略語:IBA-1 =同種移植片炎症因子1。 この図の拡大版を表示するには、ここをクリックしてください。
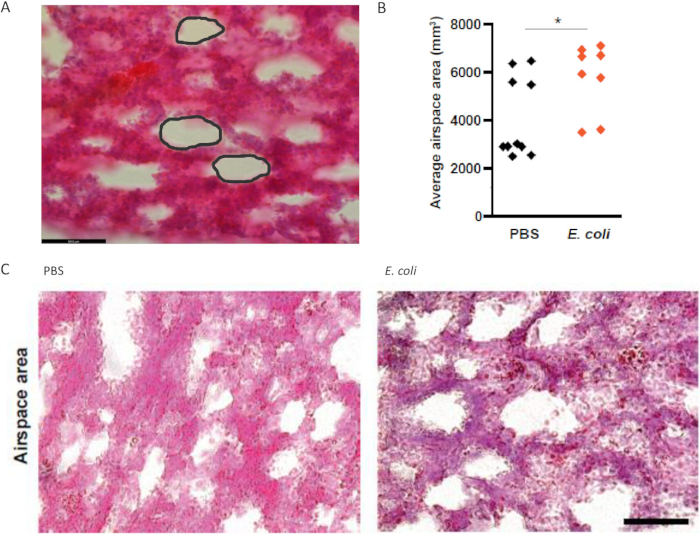
図4:子犬の肺の空域測定(H&E染色)。 (A) 空域の輪郭を描き、ImageJ のフリーハンド ツールを使用して測定します。(B)PBSと比較して、 大腸菌 に曝露された子犬の平均空域面積が増加します。(C)子宮内でPBSおよび大 腸菌に曝露された子犬の肺の代表的なH&E画像。倍率:40倍。スケールバー= 59.5 μm。略語:H =ヘマトキシリン;E =エオシン。n = 2 リットルから 4。*p < 0.05。この図は、Boyle et al.31 から適応されました。 この図の拡大版を表示するには、ここをクリックしてください。
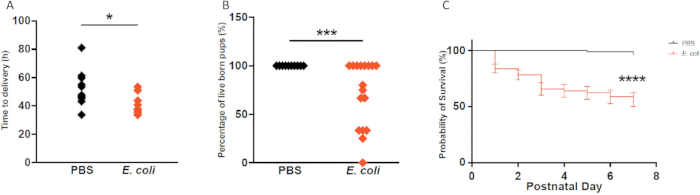
図5:膣内大腸菌が分娩までの時間と子犬の生存率に及ぼす影響。 (A)大腸菌の存在下では、出産までの時間が短縮されます。(B)大腸菌に曝露された子犬では、生きて生まれた子犬の割合が大幅に減少し、(C)子犬の生存率が低下します。配達までの時間: n = グループあたり 8-10 リットル。生きて生まれた子犬:n = グループあたり10〜17匹。子犬の生存率:n = グループあたり10〜12匹。*p < 0.05、***p < 0.001。この図は、Boyle et al.31 から適応されました。この図の拡大版を表示するには、ここをクリックしてください。
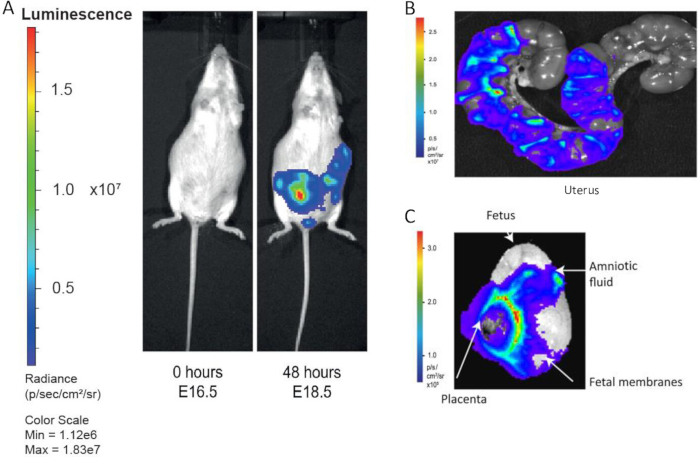
図6: 大腸菌 の拡散を監視するための生物発光イメージング。 (A)生物発光性大 腸菌 は、48時間以内に膣から子宮角に上昇します。(B)解剖された子宮角は、18時間以内に大 腸菌 による感染を示し、(C)胎盤と胎児膜も同様です。この図は、Suff et al.25 および Boyle et al.31 から適応されました。 この図の拡大版を表示するには、ここをクリックしてください。
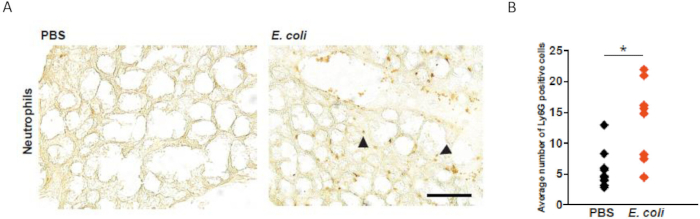
図7:胎児肺の好中球のLy6G染色。(A)PBSおよび大腸菌に曝露された胎児における好中球流入を評価するためのLy6G(陽性:矢じり)の染色。(B)大腸菌の胎児では、Ly6G+細胞の平均数が有意に増加しています。倍率:40倍。スケールバー= 59.5 μm。n = グループあたり5リットルから10。*p < 0.05。略語:Ly6G =リンパ球抗原6複合体遺伝子座G6D。この図は、Boyle et al.31 から適応されました。この図の拡大版を表示するには、ここをクリックしてください。
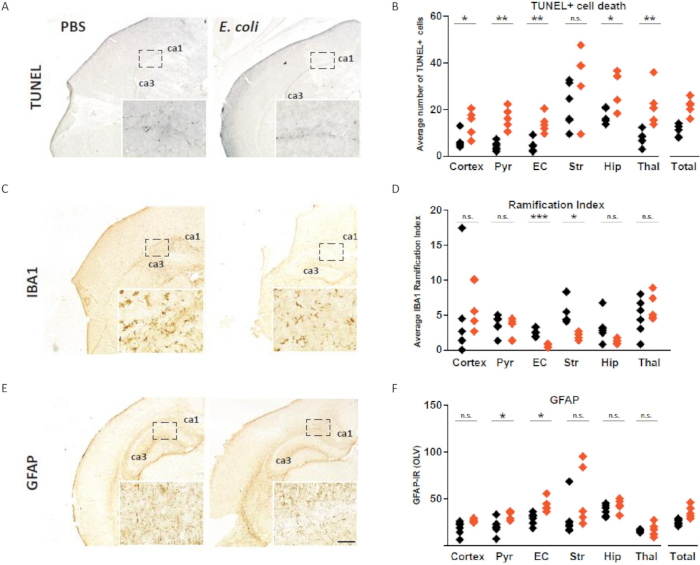
図8:TUNEL、IBA1、およびGFAP染色の例。 (A)PBSまたは 大腸菌に曝露された出生後の子犬脳における細胞死のTUNEL染色。(B)TUNEL+ 細胞の平均数は、皮質、梨状皮質、外嚢、海馬、および視床で増加します。(C)PBSおよび大 腸菌 群におけるミクログリアのIBA1免疫組織化学。(D)ミクログリア活性化の尺度としての分岐指数は、大 腸菌 の子犬の外被膜および線条体で増加します。(E)星状細胞のGFAP染色、(F)梨状皮質と外カプセルで増加する 大 腸菌 の子。スケールバー = 59.5 μm。略語:GFAP =グリア線維性酸性タンパク質;TUNEL = 末端デオキシヌクレオチジルトランスフェラーゼ dUTP ニック末端標識;Pyr = 梨状皮質;EC = 外部カプセル;Str =線条体;股関節=海馬;タール=視床;合計 = すべての地域。CA = コルヌアンモニス;OLV = 光学光度値。免疫組織化学分析:グループあたり5リットルからn = 5〜7。*p < 0.05、**p < 0.01、***p < 0.001、n.s. - 有意ではありません。この図は、Boyle et al.31 から適応されました。 この図の拡大版を表示するには、ここをクリックしてください。
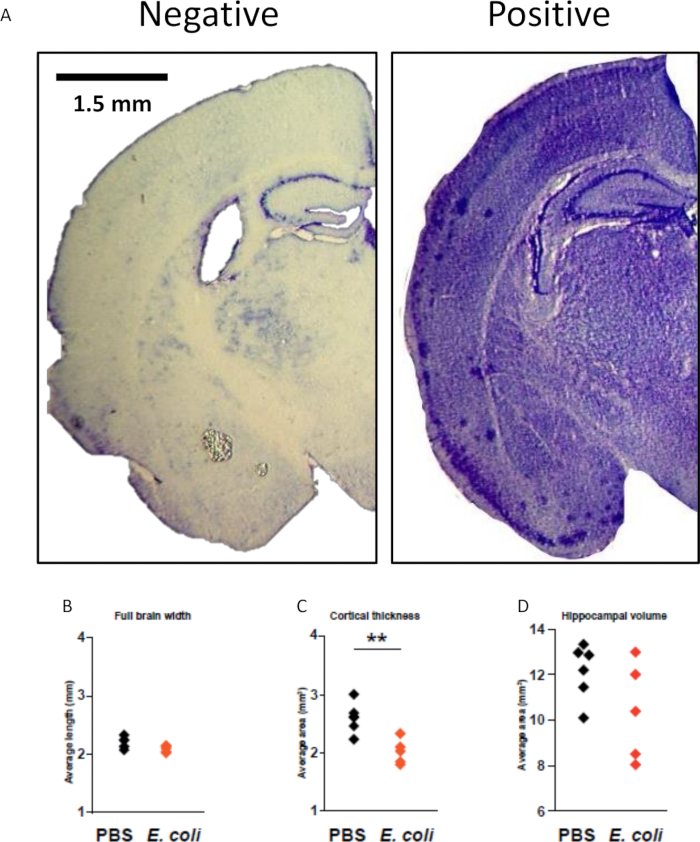
図9:陽性および陰性のニッスル染色および形態評価の例。 (A)組織構造と形態を評価するための出生後の子犬脳のニッスル染色。(B)脳の幅には影響はありませんが、(C)大 腸菌にさらされた子犬では皮質の厚さが減少します。(D)海馬の体積に差はありません。倍率:1倍。スケールバー= 1.5 mm。n = グループあたり5リットルから7-5。**p < 0.01。この図は、Boyle et al.31 から適応されました。 この図の拡大版を表示するには、ここをクリックしてください。
| 一次抗体 | 希釈 | 二次抗体/希釈 | 希釈 |
| ウサギ抗GFAP | 1:6000 | ヤギアンチウサギ | 1:100 |
| ウサギ抗IBA1 | 1:1000 | ヤギ用ネズミ対策 | 1:100 |
| マウスアンチLy6G | 1:1000 | ヤギアンチウサギ | 1:100 |
表1:免疫組織化学用の抗体。
| 歩 | 試薬 | 時間(分) |
| 1 | NISSL染色 | 10 |
| 2 | 新鮮な蒸留水 | 2 |
| 3 | 新鮮な蒸留水 | 2 |
| 4 | 70% エトオ | 2 |
| 5 | 90% エトオ | 2 |
| 6 | 96% エトロオ | 2 |
| 7 | 96%EtOHと3〜5滴の氷酢酸 | 2-5(常時確認) |
| 8 | 100%エトロオ | 2 |
| 9 | イソプロパノール | 2 |
| 10 | キシレン | 2 |
| 11 | キシレン | 2 |
| 12 | キシレン | 2 |
表2:ニッスル手順。
ディスカッション
ここでは、細菌の膣上昇による早産および新生児罹患率の新規マウスモデルの誘導について説明します。大腸菌K1は新生児敗血症や髄膜炎の一般的な原因であり、母親から胎児に垂直に伝染するため、選択しました 38,39,40。このモデルの成功の鍵は、膣からの細菌懸濁液の漏出を防ぎ、感染が確立され、子宮に上昇することを可能にする Pluronic 感熱性ゲルの使用です。このモデルは敗血症分離株に由来する生きた細菌を使用しているため、ダムを綿密に監視することが重要です27。動物が移動や食事を拒否したり、子犬の世話をしなかったりした場合(営巣や餌やりを怠るなど)、直ちに人道的に犠牲にしなければなりません。
ほとんどの場合、感染に関連する症状は分娩後 24 時間以内に消失します。また、 大腸菌 やその他の細菌株の血清型が異なれば、妊娠期間、感染/炎症の程度、新生児の転帰にさまざまな影響を与えることに注意することも重要です。新しい細菌血清型/株を使用する場合は、異なるCFUで予備用量実験を実施して、望ましい表現型に必要な最小濃度を決定し、苦しみを防ぐために厳格な人道的なエンドポイントを設定することをお勧めします。生きた病原体を送達するときは細心の注意を払う必要があります。文献が、上行感染をモデル化する際にこれらの生物の適切な使用を導くことができます。
マウスの免疫系が異なるため、マウスの系統も重要です。たとえば、このモデルで使用されたタイミングとCFUは、C57BL/6マウスで実行した場合、同じ結果が得られません。時間経過実験では、CD-1、BALB/c、およびC57BL / 6と比較して、この株で有意に多くの感染が示されたため、C57BL / 6 Tyrc-2J マウスを使用することを選択しました。さらに、黒い毛皮が生物発光信号を消光する証拠があり、これはこのモデル29における有用な測定可能な結果である。細菌投与に最適な妊娠日は、病原体やマウスの系統によっても異なる場合があります。前臨床 PTB モデルには大きな不均一性があります。したがって、再現性のある結果を開発するには、これらの変数を考慮することが重要です17。
もう一つの考慮事項は、動物が麻酔にさらされる時間の長さです。妊娠中の過度の曝露は子犬の神経毒性と関連しているため、麻酔下で費やす時間を最小限(例えば、最大5分)に抑え、同じ環境にさらされ、ビヒクル物質41、42、43で処理された対照を常に含めることが不可欠です。このモデルに有用な追加の対照群には、未治療の Pluronic ゲルのみの膣内送達、および麻酔のみが含まれます。
免疫組織化学は、さまざまなタンパク質や細胞を同定するための実験ツールとして広く使用されており、脳の構造と接続性を特徴付けるために使用できます。ここでは、神経炎症や神経損傷に関連する中枢神経系の重要な細胞を解析する方法について説明します。また、脳と肺の形態の測定に役立つ細胞アポトーシスと組織学的染色を評価する方法も紹介します。これらのプロトコルを確実に成功させるための重要な考慮事項は、PAP ペンの慎重な使用から始まります。PAPペンが組織に触れると染色は失敗しますが、パラメータが広すぎると、切片が一晩で乾燥する可能性があります。同様に、セクションが乾燥しないように、湿度チャンバーは湿った状態に保つ必要があります。
ニッスル染色を行う場合、氷酢酸ステップが最も重要です。セクションは常にチェックする必要があります。脳の主要構造が見えるようになったら、反応を止めるために断片をすぐにEtOHに移動させる必要があります。皮質の厚さの減少と海馬容積の減少がヒト未熟児および他の動物モデルで報告されているが、他の領域の形態変化について評価できるため、皮質と海馬を評価することを選択しました44、45、46、47。DAB染色の開発にも細心の注意を払う必要があります。これはタイミングを計り、実験間で一貫性を保つ必要があります。
データ分析は、主観的であると考えられることが多い結果の定量化が難しいため、免疫組織化学の最も一般的な制限です。GFAP 分析はコンピューター支援光学光度測定を使用して実行されますが、染色の一貫性がないとこれらの測定値に影響を与える可能性があります。さらに、脳と肺の形態評価には、観察者の判断に依存する手動のフリーハンド測定が含まれます。矛盾を避けるために、これらの評価を短期間に 2 回繰り返します。バイアスをさらに減らすには、評価者が治療グループを知らされていないことが重要です。免疫反応性の低さも制限要因になる可能性があります。シグナルの欠如は、目的の抗原が存在しないか、プロトコルの失敗が原因である可能性があることを示唆している可能性があります。これに対処するために、可能な限りポジティブコントロールとして機能する組織サンプルを含め、シグナルが低いか存在しない場合は染色手順を繰り返して、これが実験エラーの結果ではないことを確認します。
記載されているプロトコルに加えて、母体、胎児、および新生児組織の免疫学的分析は、qPCRおよびELISAによって実行できます。感染に曝露された動物で炎症性mRNAおよびタンパク質レベルの増加が観察されました25,31,48。組織学的に示す新生児の神経病理は、胎児の脳、肺、腸の炎症の結果である可能性があるという仮説を立てています25,31。私たちが実施した他の神経病理学的評価には、髄鞘形成を調査するためのミエリン塩基性タンパク質 (MBP) と、神経核を染色するための NeuNが含まれます 25,31。これに加えて、好中球およびミクログリアについて他のマーカーを評価して、子宮内で感染にさらされた後のこれらの細胞の表現型および挙動をよりよく理解することができる 49,50。さらに、子孫への長期的な影響を判断するために行動テストを実行することもできます。
このモデルには制限がないわけではありません。たとえば、同腹児間および同腹児内の両方で病理にばらつきが見られます。これは、感染の拡大を制御できない生きた細菌を使用した結果である可能性があります。その結果、子宮角への上行感染のパターンと範囲はさまざまであり、しばしば非対称です。もう一つの制限は大腸菌の病原性であり、ダムが子犬の世話をすることができなくなることがあります。マウスはまた、肺胞形成がヒトのように出生前ではなく出生後に起こるため、肺損傷の最良のモデルではありません51。サンプルを採取したときに肺組織を膨らませることができなかったため、結果に影響を与えた可能性があります。ただし、私たちの結果は、新生児BPD動物モデル52,53で観察された変化と一致しています。
このモデルは、細菌感染が膣から子宮に上昇し、早期分娩を刺激するという仮定された人間の状態を要約しています。このモデルの最初の公開に続いて、他のモデルが同様のモデルを複製または作成し、この方法論の再現性と関連性をさらに強調しています19,54。重要なことに、このモデルは、他のモデルでは失敗した未熟児が経験する一般的な罹患率を示しています。これは、新生児敗血症に特に関連する細菌株の使用が原因である可能性があります。動物モデルで早産を誘発するために最も一般的に使用されるLPSは、子犬にとって致死的であるため、新生児の転帰を測定することはできません18。上昇感染の他のモデルも、生き残った子犬を産むこと、または新生児の罹患率を示すことに苦労しています 19,20,21,22,23,24,55,56。私たちが説明するような臨床的に関連する動物モデルは、早産の病態生理学を理解し、新生児の転帰を改善する革新的な介入を開発するための基礎です。
開示事項
著者らには関連する開示はない。
謝辞
大腸菌 K1 A192PP-luxABCDEは、ユニバーシティ・カレッジ・ロンドンのピーター・テイラー教授から寄贈されました。 図 1 と 図 3 は BioRender.com 年に作成されました。この研究は、Wellcome Clinical Research Career Development Fellowship 222970/Z/21/Z (N.S.)、Action Medical Research and Borne grant GN2647 (N.S.、S.N.W.、および DP) によって支援されました。女性の福祉助成金 RG2365 (A.K.B.、N.S.、M.H.、S.N.W.、D.P.)。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 反GFAP、ウサギ | アジレント・テクノロジーズ | Z033429-2 | |
| 抗IBA1、ウサギ | 和子 | 019-19741 | |
| Anti-Ly6G、マウス | バイオレジェンド | 127601 | |
| AVT-Horn 184 3CCDカメラ | ソニー | ||
| ビオチン-16-DUTP | メルク | 11093070910 | |
| ホウケイ酸ガラス長方形カバースリップ | フィッシャーサイエンティフィック | 12363128 | |
| クレシル・バイオレット・アセテート | サーモフィッシャー・サイエンティフィック | 405760100 | |
| クライオスタット CM1900 | ライカ | ||
| ガラスのキュベット | メルク | BR472700 | |
| ジアミノベンジジン(DAB) | ジェネロン | 40480004-3 | |
| 解離用鉗子、ステンレス鋼、10cm、ギザギザ、曲面 | ワールド・プレシジョン・インスツルメンツ社 | 15915 | |
| 解離用の鉗子、ステンレス製、10cm、ギザギザ、直線 | ワールド・プレシジョン・インスツルメンツ社 | 15914 | |
| 解剖用ハサミ、長さ10cm、直線 | ワールド・プレシジョン・インスツルメンツ社 | 14393 | |
| DPX | メルク | 100579 | |
| イオシン | シグマ・オルドリッチ | HT110116 | |
| ホルムアルデヒド溶液4%緩衝 | メルク | 100496 | |
| ヤギ抗ウサギIgG抗体(H+L)、ビオチニル化 | ベクター研究所 | BP-9100-50 | |
| ヤギ抗ラットIgG抗体(H+L)、ビオチニル化 | ベクター研究所 | BA-9400-1.5 | |
| GraphPad プリズム v.8 | GraphPadソフトウェア | ||
| H2O2 | シグマ・オルドリッチ | 7722-84-1 | |
| ヘマトキシリン | シグマ・オルドリッチ | MHS16 | |
| イメージJ | 国立衛生研究所 | ||
| イソフルラン(IsoFlo) | ゾーティス | 50019100 | |
| IVIS Lumina II In vivo イメージングシステム/リビングイメージソフトウェア | パーキン・エルマー/リヴヴィティ | ||
| マイクロスライド | VWR | ISO8037/I | |
| Optimas 6.51 | メディア・サイバネティクス社 | ||
| パラホルムアルデヒド | シグマ・オルドリッチ | 158127 | |
| リン酸緩衝生理食塩水(PBS) | サーモ・フィッシャー・サイエンティフィック(ライフ・テクノロジーズ) | 14190094 | |
| プラロニックF-127 | シグマ・オルドリッチ | P2443 | |
| キニーネ | 科学実験用品 | Q0132 | |
| ReadyProbes 疎水性バリアパップペン | サーモ・フィッシャー・サイエンティフィック | R3777 | |
| 水酸化ナトリウム | ハネウェル | S8045 | |
| リン酸ナトリウム 一塩基無水 | フィッシャーサイエンティフィック | BP329-1 | |
| ショ糖 | メルク | S9378 | |
| 末端トランスフェラーゼ | メルク | 3333574001 | |
| VECTASTAIN ABC-HRP キット、ペルオキシダーゼ | ベクター研究所 | PK-4000 | |
| キシレン(組織学的グレード) | シグマ・オルドリッチ | 534056 |
参考文献
- WHO. WHO: recommended definitions, terminology and format for statistical tables related to the perinatal period and use of a new certificate for cause of perinatal deaths. Modifications recommended by FIGO as amended October 14, 1976. Acta Obstet Gynecol Scand. 56 (3), 247-253 (1977).
- Liu, L., et al. Global, regional, and national causes of under-5 mortality in 2000–15: an updated systematic analysis with implications for the sustainable development goals. Lancet. 388 (10063), 3027-3035 (2016).
- Chawanpaiboon, S., et al. regional, and national estimates of levels of preterm birth in 2014: a systematic review and modelling analysis. Lancet Glob Health. 7 (1), e37-e46 (2019).
- Unicef. Levels and trends in child mortality report 2017. , Unicef. (2017).
- Blencowe, H., et al. National, regional, and worldwide estimates of preterm birth rates in the year 2010 with time trends since 1990 for selected countries: a systematic analysis and implications. Lancet. 379 (9832), 2162-2172 (2012).
- Jung, E., et al. The fetal inflammatory response syndrome: the origins of a concept, pathophysiology, diagnosis, and obstetrical implications. Semin Fetal Neonatal Med. 25 (4), 101146(2020).
- Humberg, A., et al. Preterm birth and sustained inflammation: consequences for the neonate. Semin Immunopathol. 42 (4), 451-468 (2020).
- Boyle, A. K., Rinaldi, S. F., Norman, J. E., Stock, S. J. Preterm birth: inflammation, fetal injury and treatment strategies. J Reprod Immunol. 119, 62-66 (2017).
- Romero, R., Dey, S. K., Fisher, S. J. Preterm labor: one syndrome, many causes. Science. 345 (6198), 760-765 (2014).
- Goldenberg, R. L., Culhane, J. F., Iams, J. D., Romero, R. Epidemiology and causes of preterm birth. Lancet. 371 (9606), 75-84 (2008).
- Jones, H. E., et al. Differing prevalence and diversity of bacterial species in fetal membranes from very preterm and term labor. PLoS One. 4 (12), e8205(2009).
- Cobo, T., et al. Characterization of vaginal microbiota in women with preterm labor with intra-amniotic inflammation. Sci Rep. 9 (1), 18963(2019).
- Romero, R., et al. Microbial invasion of the amniotic cavity in patients with suspected cervical incompetence: prevalence and clinical significance. Am J Obstet Gynecol. 167 (4 Pt 1), 1086-1091 (1992).
- Mendz, G. L., Kaakoush, N. O., Quinlivan, J. A. Bacterial aetiological agents of intra-amniotic infections and preterm birth in pregnant women. Front Cell Infect Microbiol. 3, 58(2013).
- DiGiulio, D. B., et al. Prevalence and diversity of microbes in the amniotic fluid, the fetal inflammatory response, and pregnancy outcome in women with preterm pre-labor rupture of membranes. Am J Reprod Immunol. 64 (1), 38-57 (2010).
- DiGiulio, D. B. Diversity of microbes in amniotic fluid. Semin Fetal Neonatal Med. 17 (1), 2-11 (2012).
- Miller, F. A., Sacco, A., David, A. L., Boyle, A. K. Interventions for infection and inflammation-induced preterm birth: a preclinical systematic review. Reprod Sci. , (2022).
- Migale, R., et al. Specific lipopolysaccharide serotypes induce differential maternal and neonatal inflammatory responses in a murine model of preterm labor. Am J Pathol. 185 (9), 2390-2401 (2015).
- Spencer, N. R., et al. Development of a mouse model of ascending infection and preterm birth. PLoS One. 16 (12), e0260370(2021).
- Pavlidis, I., et al. Cervical epithelial damage promotes Ureaplasma parvum ascending infection, intrauterine inflammation and preterm birth induction in mice. Nat Commun. 11 (1), 199(2020).
- Vornhagen, J., et al. Group B streptococcus exploits vaginal epithelial exfoliation for ascending infection. J Clin Invest. 128 (5), 1985-1999 (2018).
- Bernardini, R., et al. Neonatal protection and preterm birth reduction following maternal group B streptococcus vaccination in a mouse model. J Matern Fetal Neonatal Med. 30 (23), 2844-2850 (2017).
- Tantengco, O. A. G., et al. Modeling ascending Ureaplasma parvum infection through the female reproductive tract using vagina-cervix-decidua-organ-on-a-chip and feto-maternal interface-organ-on-a-chip. Faseb J. 36 (10), e22551(2022).
- Randis, T. M., et al. Group B streptococcus β-hemolysin/cytolysin breaches maternal-fetal barriers to cause preterm birth and intrauterine fetal demise in vivo. J Infect Dis. 210 (2), 265-273 (2014).
- Suff, N., et al. Ascending vaginal infection using bioluminescent bacteria evokes intrauterine inflammation, preterm birth, and neonatal brain injury in pregnant mice. Am J Pathol. 188 (10), 2164-2176 (2018).
- Mushtaq, N., Redpath, M. B., Luzio, J. P., Taylor, P. W. Treatment of experimental Escherichia coli infection with recombinant bacteriophage-derived capsule depolymerase. J Antimicrob Chemother. 56 (1), 160-165 (2005).
- Achtman, M., et al. Six widespread bacterial clones among Escherichia coli K1 isolates. Infect Immun. 39 (1), 315-335 (1983).
- Winson, M. K., et al. Engineering the luxCDABE genes from Photorhabdus luminescens to provide a bioluminescent reporter for constitutive and promoter probe plasmids and mini-Tn5 constructs. FEMS Microbiol Lett. 163 (2), 193-202 (1998).
- Suff, N. The use of cervical gene therapy for the prevention of infection-related preterm birth [Ph. D. Thesis]. , University College London. (2017).
- Boyle, A. K., Rinaldi, S. F., Rossi, A. G., Saunders, P. T. K., Norman, J. E. Repurposing simvastatin as a therapy for preterm labor: evidence from preclinical models. Faseb J. 33 (2), 2743-2758 (2019).
- Boyle, A. K., et al. Ascending vaginal infection in mice induces preterm birth and neonatal morbidity. Am J Pathol. 195 (5), 891-906 (2025).
- Kendall, G. S., Robertson, N. J., Iwata, O., Peebles, D., Raivich, G. N-methyl-isobutyl-amiloride ameliorates brain injury when commenced before hypoxia ischemia in neonatal mice. Pediatr Res. 59 (2), 227-231 (2006).
- Rocha-Ferreira, E., et al. Curcumin: novel treatment in neonatal hypoxic-ischemic brain injury. Front Physiol. 10, 1351(2019).
- Kyrylkova, K., Kyryachenko, S., Leid, M., Kioussi, C. Detection of apoptosis by TUNEL assay. Methods Mol Biol. 887, 41-47 (2012).
- Lier, J., Streit, W. J., Bechmann, I. Beyond activation: characterizing microglial functional phenotypes. Cells. 10 (9), (2021).
- Schmidt-Kastner, R., Wietasch, K., Weigel, H., Eysel, U. T. Immunohistochemical staining for glial fibrillary acidic protein (GFAP) after deafferentation or ischemic infarction in rat visual system: features of reactive and damaged astrocytes. Int J Dev Neurosci. 11 (2), 157-174 (1993).
- Pekny, M., Pekna, M. Astrocyte reactivity and reactive astrogliosis: costs and benefits. Physiol Rev. 94 (4), 1077-1098 (2014).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent imaging reveals novel patterns of colonization and invasion in systemic Escherichia coli K1 experimental infection in the neonatal rat. Infect Immun. 83 (12), 4528-4540 (2015).
- Obata-Yasuoka, M., Ba-Thein, W., Tsukamoto, T., Yoshikawa, H., Hayashi, H. Vaginal Escherichia coli share common virulence factor profiles, serotypes and phylogeny with other extraintestinal E. coli. Microbiology (Reading). 148 (Pt 9), 2745-2752 (2002).
- Bonacorsi, S., Bingen, E. Molecular epidemiology of Escherichia coli causing neonatal meningitis. Int J Med Microbiol. 295 (6-7), 373-381 (2005).
- Hartling, L., Liang, Y., Lacaze-Masmonteil, T. Chorioamnionitis as a risk factor for bronchopulmonary dysplasia: a systematic review and meta-analysis. Arch Dis Child Fetal Neonatal Ed. 97 (1), F8-F17 (2012).
- Liang, G., et al. Isoflurane causes greater neurodegeneration than an equivalent exposure of sevoflurane in the developing brain of neonatal mice. Anesthesiology. 112 (6), 1325-1334 (2010).
- Yang, B., et al. Comparison of neurodegeneration and cognitive impairment in neonatal mice exposed to propofol or isoflurane. PLoS One. 9 (6), e99171(2014).
- Schmitz-Koep, B., et al. Decreased cortical thickness mediates the relationship between premature birth and cognitive performance in adulthood. Hum Brain Mapp. 41 (17), 4952-4963 (2020).
- Nagy, Z., Lagercrantz, H., Hutton, C. Effects of preterm birth on cortical thickness measured in adolescence. Cereb Cortex. 21 (2), 300-306 (2011).
- Dimitrova, R., et al. Preterm birth alters the development of cortical microstructure and morphology at term-equivalent age. Neuroimage. 243, 118488(2021).
- Dada, T., et al. Mouse model of intrauterine inflammation: sex-specific differences in long-term neurologic and immune sequelae. Brain Behav Immun. 38, 142-150 (2014).
- Suff, N., et al. Cervical gene delivery of the antimicrobial peptide, human beta-defensin (HBD)-3, in a mouse model of ascending infection-related preterm birth. Front Immunol. 11, 106(2020).
- McKenna, E., et al. Neutrophils: need for standardized nomenclature. Front Immunol. 12, 602963(2021).
- Jurga, A. M., Paleczna, M., Kuter, K. Z. Overview of general and discriminating markers of differential microglia phenotypes. Front Cell Neurosci. 14, 198(2020).
- Jackson, C. M., et al. Pulmonary consequences of prenatal inflammatory exposures: clinical perspective and review of basic immunological mechanisms. Front Immunol. 11, 1285(2020).
- Durrani-Kolarik, S., et al. miR-29b supplementation decreases expression of matrix proteins and improves alveolarization in mice exposed to maternal inflammation and neonatal hyperoxia. Am J Physiol Lung Cell Mol Physiol. 313 (2), L339-L349 (2017).
- Nguyen, L., et al. Sex-differences in LPS-induced neonatal lung injury. Sci Rep. 9 (1), 8514(2019).
- Zhang, Y., Edwards, S. A., House, M. Cerclage prevents ascending intrauterine infection in pregnant mice. Am J Obstet Gynecol. , (2023).
- Kammala, A. K., et al. Extracellular vesicles-mediated recombinant IL-10 protects against ascending infection-associated preterm birth by reducing fetal inflammatory response. Front Immunol. 14, 1196453(2023).
- Tantengco, O. A. G., et al. Inflammatory response elicited by Ureaplasma parvum colonization in human cervical epithelial, stromal, and immune cells. Reproduction. 163 (1), 1-10 (2021).
再版と許可
タグ
