この研究は、DNase 活性の検出と定量的評価のためのシンプルでユーザーフレンドリーなレシオメトリック FRET アッセイを提示し、弱いヌクレアーゼの分析におけるその応用を実証します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
本プロトコルは、DNase活性の検出および定量的評価のための単純で高感度な比率計量フェルスター共鳴エネルギー伝達(FRET)アッセイを記述する。レシオメトリックFRET測定では、ドナーとアクセプターの放射信号の比率を利用します。このアッセイは、リアルタイムDNA切断センサーとして採用された、ステープル形状のデュアルタグ付き38merFRETオリゴプローブを使用して、一本鎖DNA切断を検出します。記載されているアプローチの主な用途は、pH、温度、緩衝液組成などの反応条件がDNase活性に及ぼす影響を定量的に評価することです。このアッセイは、わずかで遅いDNA切断も検出できるため、長時間の観察を必要とする弱い核分解活性の調査や、DNase活性に対するpHの影響の研究に特に適しています。このレシオメトリックFRETプロトコルのこれらの特定の利点は、白血球エラスターゼ阻害剤(LEI)のDNase活性の検出と分析への応用によって説明されています。
概要
レシオメトリック蛍光アプローチは、単一のシグナルの強度のみに依存するのではなく、蛍光シグナルの比率を使用する分析方法です1,2。この比率を使用する利点は、内部校正を提供し、サンプルとプローブの濃度、機器パラメータなどの変動など、多くのランダムな要因を補正できることです。これにより、蛍光プローブの精度と感度が向上します。
フェルスター共鳴エネルギー移動(FRET)プローブの特定のコンテキストでは、「レシオメトリック」という用語は、測定がFRETドナーとアクセプター蛍光色素のペアからの2つの発光信号の比率に基づいているという事実を指します。標的分析種の活性を定量するために、レシオメトリックFRETプローブは、アクセプター/ドナー放出強度の比率(または、場合によっては逆ドナー/アクセプター比)を使用します。この比率は、FRET効率に直接関係しています。バックグラウンドノイズを最小限に抑え、照明条件とプローブ濃度の変動を考慮した自己正規化メカニズムを提供します3。
レシオメトリック法の最近の興味深い用途には、循環腫瘍DNA(ctDNA)4,5の検出のためのレシオメトリック電気化学バイオセンサーでの使用、アポトーシスの食作用期のFRET検出のためのブラウン運動動力バイオナノマシンでの使用6、およびFRET標識の発現および食作用クリアランスの分析7が含まれます.この研究で説明されているレシオメトリックFRETアプローチは、DNase活性の定量的評価に役立ちます。アッセイ測定は、FRETペア排出量の比率に基づいています。このアッセイは、わずかで遅いDNA切断も検出できるため、より長い観察期間を必要とする弱い核分解活性の調査や、さまざまなpHレベルでの実験に特に適しています。
ここでは、レシオメトリックFRETアッセイのいくつかの特定の利点が、弱いヌクレアーゼ-白血球エラスターゼ阻害剤(LEI)のDNase活性を研究するためのその応用によって説明されています。レポートには、詳細なプロトコルとステップバイステップの手順とレシオメトリック データ分析の説明が含まれています。
レシオメトリックFRETプローブの説明
レシオメトリックFRETプローブは、FAM-TAM(フルオレセイン-テトラメチルローダミン)のドナー-アクセプターFRETペアを保有する自己相補的な38merDNAオリゴです。その配列は5'-AAGGGT(TAM)CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'です。自己ハイブリダイジング38-merは、23ヌクレオチドと15ヌクレオチドの2つの接続されたヘアピンからなるステープル形状のコンフォメーションを想定し、2つの蛍光色素を互いに23.8 Å位置に配置します。これは、このペアのフェルスター半径、R0 = 55 Å8よりも大幅に近いです。このような位置決めは、ドナーからアクセプターへのエネルギー伝達の非常に高い効率に対応する7:EFRET = 0.993477。その結果、FAM励起波長(488nm)で照射すると、FRETプローブはアクセプタTAMの発光波長(580nm)で蛍光を発光するのに対し、FAM発光(525nm)は抑制されます。
図1A は、UNAFoldが予測したプローブの二次構造を示しており、タイトな曲率による立体障害により、両方のヘアピン頂点に小さなループがあります。FRETプローブによるDNA切断検出の概略図を 図1Bに示します。これは、DNaseによるオリゴプローブの破損がFRETペアを分離することを示しています。この分離により、プローブ内の両方の蛍光色素の発光スペクトルに劇的な変化が生じます。 図1C は、切断前後のプローブ発光スペクトルを示し、DNase IIプローブ切断後のFRETペアの分割が525 nm(ID 525 nm)でのドナー発光を増加させ、同時に580 nm(IA 580 nm)でのアクセプター発光を減少させることを示しています。 図1D は、発光スペクトルに対応するPAGEゲル比とFRET比を示しています。DNase IIプローブの切断により、12-16-mer FAM(緑)および20-24-mer TAM(赤)フラグメントに対応する2つの広いバンドが生成され、ヘアピン間の接続領域の近くでT23 の両側に38-merがランダムに切断されていることを示しています。
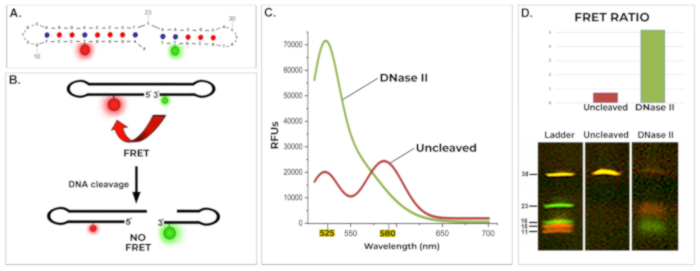
図1:レシオメトリックFRETプローブの構造と動作。 (A)UNAFoldによって生成されたFRETプローブの予測二次構造。(B)動作中のFRETプローブの概略図。レシオメトリックFRETプローブは、FRETドナー(FAM)とアクセプター(TAM)を23.8 Åの有効FRET距離で標識したステープル形状の38merオリゴヌクレオチドで、>99%のFRET効率を保証します。DNaseによるオリゴプローブの切断はFRET対を分離し、FRETを廃止します。(C)DNase IIを介した切断前後のFRETプローブの発光スペクトル。切断前に、FAM放出が抑制され、TAM放出が顕著になります。DNaseを介した切断により、FAMとTAMが分離され、FAM発光(525 nmピーク)が回復し、TAM発光(580 nmドロップ)が廃止されます。λ励起 = 488 nm。(D)DNase II切断前後のFRETプローブのレシオメトリックおよび電気泳動評価。上のパネル:FRET比(RD/ A = ID 525 nm / IA 580 nm)は、プローブ状態の定量的尺度を表します。赤:未切断;緑:DNase II切断。下のパネル:蛍光データに対応する変性PAGEゲル。DNase II切断により、FAM標識フラグメント(12-16 nt、緑)およびTAM標識フラグメント(20-24 nt、赤)が得られ、T23に隣接するヘアピン間の接続付近で切断が見られます。未切断の対照は黄色の蛍光を示します。ラダー:38-merプローブの5'および3'セグメントに対応するFAMおよびTAM標識オリゴヌクレオチドで、元の位置に蛍光標識があります。反応条件:10 mM酢酸ナトリウムバッファー(pH 5.2)、1 pmol/μL FRETプローブ、0.0033 U/μL DNase II、37°Cで24時間。 RD / A = ID 525 nm / IA 580 nm; λ励起 = 488 nm。UNA変更条件:1 μM FRETプローブ、10 mM Na+、0 mM Mg2+、37°C。 この図の拡大版を表示するには、ここをクリックしてください。
個々のテスト発光スペクトルの変化は明らかですが、多数の発光スペクトル間の定量的比較には、よりユーザーフレンドリーでコンパクトな定量パラメータが必要です。この役割は、FRET比によって果たされます。提示された蛍光法は、定量的評価のためにFRETペアメンバーの蛍光放出の直接(2チャネル)比に依存するレシオメトリックアプローチのグループに属します2,9。
このアプローチでは、FRET効率に関係するドナー/アクセプター放射比(RD/ A = I D 525 nm / IA 580 nm)を使用し、38-merの状態(破損または無傷)を定量的に特徴付けます。ID / IA比は、プローブ濃度、励起強度、光退色などの要因の変動を本質的に考慮する自己正規化メカニズムを提供します3。このアプローチは、ドナーとアクセプターが同じプローブ内でリンクされており、それらの比率が既知で一定であるFRETプローブにのみ適しています。このため、このアプローチでは、アクセプターまたはドナークロストーク2の直接励起を考慮する必要はありません。プローブの固定ドナー-アクセプター化学量論により、ドナー/アクセプターの放出比がこれらの変動の影響を受けず、プローブの状態を直接反映します。その結果、ドナー-アクセプター放出の比率は、シグナル正規化2,3を内蔵した定量的DNA切断パラメータを提供します。
この比率はプローブ切断後のFRET停止を表し、したがって切断の増加とともにDNase活性が増加するのと同じ方向に変化するため、アッセイは(反対のIA / ID比ではなく)ID / IA比を採用しています。これは、図1Dで示されており、DNase IIによる切断前後のレシオメトリックプローブとそのPAGE電気泳動のFRET比を示しており、どちらも図1Cのスペクトルに対応しています。レシオメトリックFRETアッセイの利便性、時間の経済性、および使いやすさを実証するために、弱いヌクレアーゼ-白血球エラスターゼ阻害剤(LEI)のDNase活性を明らかにし、研究するために適用されました。
弱いヌクレアーゼLEI
プロテアーゼ阻害剤LEIは、自然に準安定、つまりトポロジー的に不均衡です。この機能は、その抑制メカニズムに不可欠です。標的プロテアーゼがLEI反応部位ループ(RSL)を切断すると、プロテアーゼ阻害剤分子は劇的な立体配座変化を起こし、プロテアーゼを機械的に不活性な形態に伸ばします10,11。驚くべきことに、これはLEI分子自体も破壊および膨張させ、そのネイティブフォールドで覆われている不可解なDNase部位のマスクを解除し、LEIを活性エンドヌクレアーゼL-DNase II(LEI由来DNase II)に変換します11,12。不可解なDNase部位は、硫酸10,13中でのpH 2での一晩のインキュベーションによって引き起こされるLEIの変性と破損によっても露出する可能性があります。LEIを研究するためにこのFRETアッセイを利用したことで、LEIの潜在的な核分解活性を明らかにするために、過酷な化学的変性処理と標的酵素切断が厳密に必要ではないことが実証されました。
提示されたレシオメトリックFRETアプローチのアプリケーションとプロトコルは、通常の非変性LEIに本質的に存在する弱いDNase活性の発見を説明しています。未切断LEIの固有の核分解能力の発見とその分析は、異なる酸性pHレベルでの長時間の観察にアッセイが適しているため可能でした。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
レシオメトリック蛍光共鳴エネルギー移動によるDNase活性の評価
この方法は、可溶性タンパク質の核分解特性の検出と分析に適しています。調査対象のDNaseのpH依存性を調べるために、この手順では、さまざまなpH値にわたるDNase活性を同時に評価します。この技術は、弱くて遅いヌクレアーゼ活性を研究するために使用できます。この研究で使用した試薬と機器の詳細は 、材料表に記載されています。
1. 蛍光分析評価システム用のインキュベーションミックス成分の調製
- 緩衝液を所望のpH範囲で調製します。pH範囲6.8〜8.0の場合は、Tris-HClまたはリン酸緩衝液を使用してください。Tris-HClバッファーは、安定性があり、酵素活性への干渉が最小限に抑えられているため、生理学的pH条件(pH 7.2〜8.0)に使用してください。
注:リン酸緩衝液はこのpH範囲に適していますが、緩衝容量の制限により、より高いpH値(>7.5)にはあまり適していません。
pH範囲が4.2〜7.2の場合は、酢酸またはクエン酸緩衝液を使用してください。アセテート緩衝液は、pH 4.2までの低pH条件に効果的です。
注:クエン酸緩衝液は、わずかに高いpH値(pH 5.6〜7.2)で使用でき、優れた緩衝能力を提供します。これらのバッファーは、酸性から中性の条件下でのDNase活性の研究に適しています。LEIの核分解活性に関する研究では、pHが4.8〜6.5の範囲の10 mM酢酸ナトリウムバッファーを使用しました。 - タンパク質サンプルを各緩衝液で適切な濃度に希釈します。サンプル中の活性が完全に不明な場合は、タンパク質のさまざまな希釈液を調製します。最適な希釈はDNase活性の強さに依存し、いくつかのタンパク質濃度をテストして実験的に決定する必要があります。
注:LEIの超弱核分解活性に関する提示された研究では、1 μMの濃度で使用しました。- 濃縮バッファーのpHは希釈時に変化する可能性があるため、高濃度のバッファーを使用する場合は、必ず最終溶液のpHを確認してください。
- ヌクレアーゼフリーの水中でレシオメトリックFRETプローブ溶液を調製します。1 μM(1 pmol/μL)に近いFRETプローブ濃度を使用してください。非常に高いプローブ濃度の使用は避けてください。
適用前にプローブ溶液を急速に加熱および冷却して、望ましくない塩基対が完全に解離するようにします。
注:LEIの核分解活性に関する本研究では、ヌクレアーゼフリー水中に1 μM(1 pmol/μL)のFRETプローブを使用しました。
2. レシオメトリックFRETプローブを基質として使用したDNase反応の誘導
- テストするpH条件ごとに、96ウェルプレートに3つのウェルを準備します。それぞれポジティブコントロールとネガティブコントロール用に、3つの追加のウェルを含めます。
- pHシリーズの各ウェルで、以下を組み合わせます。
ヌクレアーゼフリー水 70 μL
10 μL の 10X バッファー (お好みのバッファー)
タンパク質を含むサンプル10 μL
10 μLのレシオメトリックプローブ溶液(10 pmol/μLストック濃度)
注:酸性pHにおけるLEIの核分解活性に関する研究では、次の10Xバッファーを使用しました:100 mM酢酸Na pH 5.2 - 各ポジティブコントロールウェルで、以下を組み合わせます。
79 μLのヌクレアーゼフリー水
10 μL の 10X DNase II バッファー(100 mM 酢酸ナガス pH 5.2)
0.33 μL の DNase II (1 U/μL ストック)
10 μLのレシオメトリックプローブ溶液(10 pmol/μLストック濃度)
注:酸性pHでの研究では、DNase IIをポジティブコントロールとして使用してください。pH 7(特にpH 6.5-8)付近のDNase活性を評価する場合は、DNase IIおよび酢酸緩衝液の代わりに、DNase Iおよびそれに関連する緩衝液(例:10 mM Tris-HCl、2.5 mM MgCl2、0.5 mM CaCl2、pH 7.6)に切り替えます。 - 各ネガティブコントロールウェルに、タンパク質サンプルの代わりにヌクレアーゼフリーの水を加えます。
- pHシリーズの各ウェルで、以下を組み合わせます。
- 異なるpH値でDNaseタンパク質を含む反応混合物にプローブ溶液を添加することにより、DNase反応を誘導します。
注:気泡の形成を避けながら、すべてのサンプルを完全に混合します。活性DNaseサンプルの場合は、すべての反応をできるだけ同時に開始します。LEIのような超弱い活動では、厳密なタイミングはそれほど重要ではありません。
注:特に活性ヌクレアーゼを扱う場合、一貫したインキュベーション時間を確保するには、各測定に必要な時間に基づいてサンプルの追加をずらしてください。たとえば、各測定に10秒かかる場合、最初のサンプルの10秒後に2番目のサンプルを追加します。
3. インキュベーション
- 研究したDNaseをレシオメトリックFRETプローブとともに37°Cでウォーターバスまたは温度調節インキュベーターでさまざまな時間インキュベートします。定期的なサンプリング間隔で複数の時点を使用して、酵素の代謝回転率を正確に評価し、アーティファクトを最小限に抑えます。LEIの超弱核分解活性に関する提示された研究では、24時間のインキュベーションを使用して、遅い核分解反応を記録しました。
注:予備実験では、研究対象のDNaseの強度に依存するため、最適なインキュベーション時間を決定します。活性ヌクレアーゼは、プローブ切断を完了するのに非常に短い時間を必要とするため、15〜30分のインキュベーションから始めます。サンプルの濃度が高すぎて反応が速すぎる場合は、タンパク質濃度を下げる必要があります。サンプルタンパク質が弱すぎると、必要に応じてインキュベーション時間が長くなる可能性があります。
4. 同じpH条件への信号正規化
- 100 μLの250 mM Tris-HCL(pH 8.0)を加えて、すべてのインキュベーション反応を停止します。このステップでは、すべてのサンプルのpHも均等化されます。
注:pH均一化ステップは、異なるpH条件下で開始された反応を比較する場合に重要です。この手順により、プローブフラグメントが完全に分離され、FRETベースの信号が最大化されます。さらに、プローブのFAM蛍光色素の放出は酸性pHで減少し、pH 8.0で最適です。この研究で使用したものよりもイオン強度が高いサンプルの場合、効果的なpH調整を達成するには、より濃縮(>250 mM)およびより高いpH(>8.0)均等化溶液が必要になる場合があります。
注:アルカリ性pHは、現在の研究で実証されているように、LEIなどの酸性ヌクレアーゼの活性を効果的に停止します。中性またはアルカリ性ヌクレアーゼの場合、シグナル評価の前に、適切な特定の不活化方法を特定して適用する必要があります。
5. 蛍光信号検出とFRET比の計算
- pH均一化ステップの直後に、蛍光分光計を使用して、ドナーとアクセプターの両方の蛍光色素の発光スペクトルを記録します。ドナー蛍光色素を488 nmで励起し、525 nm(ドナー)と580 nm(FRET由来のアクセプターシグナル)での放出を同時に検出することにより、96ウェルプレートで直接測定を実行します。
- 記録された蛍光強度を使用して、各サンプルのDNase活性を評価します。適切な統計的手法を適用してデータを分析し、有意性を評価します。
注:式を使用してFRET比を計算します:RFRET = 525 nmでのドナー発光/580 nmでのアクセプター発光。このアッセイでは、DNA切断が蛍光色素を分離することによってFRETを破壊し、その結果、ドナー放出が増加し、アクセプター放出が減少します。このシフトにより、DNase 活性の指標として機能する FRET 比 (RFRET) が上昇します。
6. PAGEによる劈開の検証
- 変性ポリアクリルアミドゲル電気泳動(PAGE)14を行ってFRETプローブの開裂を検証します。FRETプローブとその切断産物は蛍光標識されており、追加の染色なしで可視です。
注:代表的な研究では、38-mer FRETプローブのLEIを介した切断は、PAGEを変性させることによって確認されました( 図2を参照)。分析の結果、LEIは6-8merのFAM標識フラグメントと15-16merのTAM標識フラグメントを生成し、両方のヘアピン頂点付近の切断と一致していることが明らかになりました。このパターンは、DNase IIによって生成されたフラグメントプロファイルとは異なりました。- 各サンプル15 μLを20%変性PAGEゲルにロードします。
- ゲルを100Vで1時間実行します。
- 高解像度カラーカメラを搭載したドキュメンテーションシステムを使用してゲル画像を取得します。
注:代表的な研究の画像は、デジタル一眼レフカメラを使用してキャプチャされました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
この代表的な研究は、長時間の観察を必要とする遅い酵素反応を調査するためのレシオメトリックFRETアプローチの特定の利点を強調しています。特に、このアプリケーションは、レシオメトリックFRETシステムを使用して、LEIの固有のDNase活性の検出と分析を実証します。この研究の結果を 図2に示します。
このアプローチを用いて、LEI が弱酸 性条件下で、切断や過酷な化学処理による酵素活性化を必要とせずにDNase活性を示すことを実証しました。この核分解活性はLEIの固有の特性であり、pH≤5.5の溶液中で検出可能であると判断しました。大きさは控えめではありますが、活性は非常に安定しており、pHは4.8〜5.2の間で最適で、DNase IIファミリーメンバーのpHと同様でした15。しかし、DNase IIとは異なり、pH 5.5を超え...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
この研究は、弱いヌクレアーゼである白血球エラスターゼ阻害剤 (LEI) を使用した DNase 活性の検出と評価のためのレシオメトリック FRETの適用を実証しています。このアプローチは、タンパク質と生体分子のDNase特性を評価するための便利で定量的な方法を提供します。そのプロトコルは簡単で、データ分析手順は直接的で簡単です。このアッセイでは、さまざまな酸性pHでの長時間のインキュベーションに耐える38merFRETプローブを使用します。この特性により、この特性により、アッセイは軽微で遅いDNA切断でも検出できます。このような安定性は、長時間のインキュベーションや低pHまたは高pH条件下では安定性が低い分子ビーコン19,20などの他のプローブベースの方法よりも明確な利点を提供します
レシオメトリックFRETアッセイにより、pH、イオン条件、バッファー組成、温度など、DNase活性に影響を与える実験...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは開示するものは何もない。
謝辞
この研究は、NIH の国立総合医学研究所からの助成金 R01 GM148812によって支援されました。NIH 国立がん研究所からの助成金 R21 CA255979による。R21 AG073887 と R21 AG071978 は、NIH の国立老化研究所 (すべて VVID) から助成金を授与します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 96ウェルプレート | 隼 | 353219 | |
| DNA FRETプローブ | IDTのDNA | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3';FAM –フルオレセイン-dT; TAM –テトラメチルローダミン-dT. | |
| DNase II | シグマ・アルドリッチ | D8764 | |
| EVOLTデジタル一眼レフカメラ | オリンポス | E500型 | |
| 電源付きゲル電気泳動装置 | バイオラッド | ||
| レイ | ノボプロテイン | CJ01 | |
| LiCORゲルイメージングシステム | リコル | ||
| ヌクレアーゼフリー水 | インビトロゲン | 10977015 | |
| プレキャストPAGEジェル | インビトロゲン | EC68852 | |
| 酢酸ナトリウム緩衝液 pH 5.2 | シグマ・アルドリッチ | S2899-100MLの | |
| 分光蛍光光度計 | テカン | サファイア2 |
参考文献
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
