ここでは、iDiv Ecotron、地上と地下の環境条件を制御した陸生メソコズムチャンバーで確立された研究を紹介します。これは、植物の多様性勾配に沿った草原コミュニティの生態系機能に対する植物の歴史と土壌の歴史の独立した相互作用の影響を研究しています。
この記事について
サマリー
要約
生物多様性の世界的な損失は、植物種の豊富さを実験的に変化させ、生態系機能への影響を調べる多くの研究の動機となっています。このような実験は、一般に、地上および地下の生物多様性と陸域生態系の機能との間に正の関係があることを示しています。さらに、この関係は、多様な植物群集の機能強化と低多様性植物群集の機能低下として見られ、時間の経過とともに強化される傾向があります。多様性の高い植物群集と低多様性の植物群集における多栄養群集の集合と生物的相互作用の違いは、消費者群集の構造と機能を変化させ、植物群集における植物種の可塑的または微小進化的応答を促進することにより、植物のパフォーマンスに影響を与えると仮定されています。このコミュニティの歴史の複雑な相互作用を解決するために、これらの影響を植物と土壌の歴史に分けました。植物の歴史とは、過去の非生物的および生物的選択圧力に対するすべての植物レベルの反応を指し、土壌の歴史は、変動する植物の多様性の下での植物と土壌の相互作用の遺産として開発されたすべての非生物的および生物的土壌特性に関連しています。私たちは、地上と地下の環境条件を制御できる陸域メソコズム施設であるエコトロンで生物多様性実験を行い、生物多様性と生態系の機能強化の関係が土壌の歴史によるものなのか、植物の歴史によるものなのか、それともその両方の組み合わせによるものなのかを検証しました。1、2、3、および6の草原植物種からなる植物の多様性勾配を確立し、植物種の豊富さの各レベルについて、土壌履歴と植物履歴処理を要因としてネストしました。代表的な結果は、Ecotron実験で標的処理の確立に成功し、植物と土壌の歴史が初期の植物の成長と最終的な植物の成長に及ぼす影響を観察したことを示しています。さらに、個々の応答変数のデータ分析のケーススタディを提供します。私たちは、包括的な仮説に最終的に対処するために必要な実験的治療に対する多機能反応を包括的に評価するための研究目的と方法を概説します。
概要
過去30年間で、生物多様性の損失に対する懸念の高まりにより、植物種の豊富さを実験的に操作することに焦点を当てた広範な研究が推進され、生態系機能への影響を調査するようになりました1,2。実験的研究は、植物の多様性と生態系機能1との間に正の関係があることを示しており、生態系機能は時間とともに増加する傾向がある3,4,5,6,7,8,9。これは、最近設立された若いコミュニティから得られた実験結果が、生物多様性の損失の影響を過小評価している可能性が高い一方で、古くて種が豊富な生態系を保護することの重要性を強調していることを示唆しているため、重要な発見です10。
生物的および非生物的プロセスの経時的な変化は、長期的な実験でしか観察できませんが、生物多様性が生態系機能に及ぼす影響を増幅する1つの可能な説明です。高い植物の多様性は、土壌炭素と栄養素の濃度3,9,11,12,13、最適化された資源相補性3,8,14、植物間のニッチ分化の促進15、すべての栄養レベルでの共生者の蓄積10,16と関連しています、そしてより強力なトップダウンの調節メカニズム17,18,19による病原体や草食動物からの脅威の減少。逆に、植物の多様性が低いことは、植物の防御への投資の増加と資源使用の効率の低下に対する選択圧力と関連しています10,20,21,22。まとめると、多様性の高い植物群集と低多様性の植物群集における多栄養群集の集合と生物的相互作用の違いは、消費者群集の構造と機能を変化させることによって植物の性能に影響を与えると仮定され、植物群集のレベルで植物種の可塑的または微小進化的変化を促進すると仮定されています23,24,25,26.コミュニティの歴史の複雑な相互作用を解決するために、これらの影響は植物の歴史と土壌の歴史という2つの重要な要素に分けられました。植物の歴史とは、それぞれのコミュニティで経験した過去の非生物的および生物的選択圧力に対するすべての植物の応答を指し、一方、土壌の歴史は、植物と土壌の相互作用の結果として発達したすべての非生物的および生物的土壌特性に関連しています23,24,27,28。どちらの要素も、長期的な生物多様性への影響29,30,31の主要な推進力としてますます認識されています。
実験的なフィールド研究は、現実的な環境条件下での大規模な空間スケールでの土壌と植物の歴史の長期的な影響についての貴重な洞察を提供します32,33。しかし、野外実験は、天候の変動、自然の擾乱、他の生物との相互作用など、制御されていないさまざまな外的要因の影響を受けます。対照的に、小規模な小宇宙実験は、自然生態系の複雑さとダイナミクスを捉えることには限界があるが、温度、光、水などの非生物的要因を正確に制御することができる34。この2つのアプローチの利点を組み合わせるために、1990年代には「エコトロン」と呼ばれる新しい実験施設が登場しました(例:英国シルクウッドのエコトロン34;フランス、モンペリエのエコトロン35。ハッセルト、ベルギーのエコトロン36)。Roy et al. (2021)37 は、エコトロンを、生態系サンプルを収容するために設計された複製されたエンクロージャーで構成される実験施設と定義しており、地上および地下の環境条件の現実的なシミュレーションを可能にしながら、生態系プロセスの同時かつ自動化された測定を容易にします。このように、エコトロンは、複雑な生態系のプロセス、多栄養相互作用、生態系機能を統合的に研究することを可能にします。それらは、一連の独立したメソコズムチャンバー内の複数の栄養段階からさまざまな地上および地下の生物を収容することができ、地上および地下システム37,38の環境条件の正確な制御および監視を可能にする。
本研究では、iDiv Ecotron38,39で「JenaTron実験」(図1および図2)と呼ばれる実験を行い、植物種の豊富さが異なるコミュニティにおける生物多様性と生態系の機能(BEF)の関係が、土壌の歴史、共有された植物の歴史、またはその両方の複合効果によって調節されるかどうかをテストしました。iDiv Ecotronは、陸域生態系38,39,40における地上と地下の相互作用の共同調査に焦点を当てた、多栄養生物多様性実験用に特別に設計されています。これは、「EcoUnits」(図2F、G)と呼ばれる24の同一の実験ユニットで構成され、それぞれが隔離されたコンパートメント(図2K)に最大4つの個別の生態系を収容でき、環境変動の影響を最小限に抑えながら、複雑で自然に近い生態系の構築を可能にします。1つの重要な利点は、制御された環境条件下で無傷の土壌モノリス(図2A-C)の複数の複製を確立する能力であり、これにより、小規模な小宇宙実験ではしばしば捕捉が困難な、植物-植物および植物-土壌フィードバック効果を含む複雑な生態系プロセスの測定が可能になります38,39。
ヨーロッパでは、半自然草原は最も生物多様性が高く複雑な陸域生態系の一つであり、重要な生態系サービスを提供しています。しかし、20世紀初頭以降、これらの広範囲に管理された草原は、土地利用の変化による脅威の増大に直面しており、生物多様性の保全と研究の重要な焦点となっています。広範囲に管理された草原で世界で最も長く続いている生物多様性実験の1つは、ドイツのイェーナ(北緯50.951度、東経11.621度、標高139メートル、ウェブサイト:https://the-jena-experiment.de)にあるイエナ実験32,33です。2002年に設立されたこの実験は、草原植物の多様性と生態系機能との関係を調査し、特に栄養素の循環と栄養相互作用に焦点を当てています32,33。iDiv Ecotron内のJenaTron実験の設置には、2010年に開始され、2021年に完了したJena実験の構成要素であるTrait-Based Experiment41(TBE)を利用しました。2022年には、TBEの23のプロットが選択され、iDiv Ecotron内の24を超える植物群集にまたがる1種から6種の範囲の植物多様性勾配が確立されました。これらの群落は、イエナ実験のメイン実験と重なる6つの草原植物種で構成され、3つの草種(Anthoxanthum odoratum L.、Dactylis glomerata L.、Holcus lanatus L.)と3つのforb種(Leucanthemum vulgare agg.、Plantago lanceolata L.、およびRanunculus acris L.)を表していました。植物種の組成と各植物の多様性レベルの複製の詳細については)。これらの種は、半自然のヨーロッパの草原に広く存在し、頻繁に共存しており、さらに時間的資源獲得形質が異なるため、植物フェノロジー41などの時間的資源利用の包括的な研究に理想的です。24の植物組成は、すべてのEcoUnitにランダムに割り当てられ(図1C)、各EcoUnitは、土壌履歴と植物履歴処理の階乗の組み合わせに対応するためにさらに4つのコンパートメントに細分されました。
土壌の歴史(図1A)は、イエナ実験から合計96個の土壌モノリスを発掘することによって確立されました。サイトの土壌は、ローム質の川の堆積物32,33から開発された、Eutric Fluvisolとして分類される栄養豊富な氾濫原の土壌です。イエナ実験の土壌プロファイル内の土壌pH、土壌テクスチャの変化、有機物に関する詳細な情報は、Lange et al. (2023)9に記載されています。96のモノリスのうち、48は、モノカルチャー、2種および3種の混合物を含む22のTBEプロットのそれぞれから2つのモノリスを発掘することによって調達されました。さらに、8種のプロットから4つのモノリスが採取され、JenaTron実験では6種の混合物として機能します。これら48の土壌一枚岩(深さ0.8m、直径0.5m)は、2010年以降、区画固有の居住コミュニティを保有しており、植物コミュニティ固有の土壌史(+SH)を表しています。残りの48のモノリスは、2002年にイエナ実験が開始されて以来、植生がなかった4つの裸地区画から発掘されたため、植物群落固有の土壌履歴(-SH)が欠けています。4つの裸地区画のそれぞれから、12のモノリスが発掘されました。2つの土壌履歴処理(+SH; -SH)は、TBEの植物群集固有の組成を反映した成長済みの植物を等密度で植え、個々の植物を6 cm間隔で植えることにより、2つの植物履歴処理と因数分解的に組み合わせられました。
植物の歴史(図1B)は、イエナ実験の種プールから選択された植物種ごとに2つの異なる種子源を使用して確立されました:最初の情報源は、2010年以降にコミュニティ固有の歴史を経験した植物から収集された種子で構成されていました。これは、土壌モノリスが発掘された正確な形質ベースの実験(TBE)プロット(+PH)に対応しています)。これらの種子は、種の開花フェノロジーに依存して2019年5月から9月にかけて収集され、種とプロットごとに最低5個体がサンプリングされたことを確認しました。収集後、種子を洗浄し、JenaTron実験の開始まで-20°Cで保存しました。2番目の種子源は、地域の起源の種子を生産する商業種子供給業者から入手した種子で構成されていました。これらの種子は、2010年にTBEプロットを確立するために使用され、イエナ実験(-PH)内でコミュニティ固有の選択履歴がない植物を表し、2010年からイエナトロン実験の開始まで-20°Cで保存されました。6つの多年生植物種の両方の歴史は、2022年2月から5月にかけて、ドイツのライプツィヒにあるiDiv研究温室の4つの部屋(北緯51.330度、東経12.393度、標高120 m)で事前に栽培されました。
植物種の豊富さの各レベルでの土壌履歴(SH)と植物履歴(PH)の要因の組み合わせにより、24のEcoUnitsのそれぞれ内で4つの処理が行われました:(1)土壌履歴あり、植物履歴あり(+SH/+PH)、(2)土壌履歴あり、植物履歴なし(+SH/-PH)、(3)土壌履歴なし、植物履歴あり(-SH/+PH)、および(4)土壌履歴なし、 植物履歴なし(-SH/-PH; 図1C)。JenaTron実験の主な目的は、生物多様性と生態系機能の強化関係が、土壌の歴史、植物の歴史、またはその両方の組み合わせによるものかどうかを調査することです。私たちは、植物と土壌のコミュニティ固有の歴史を共有する植物群集が最も強いBEF関係を示す一方で、土壌の歴史、植物の歴史、またはその両方を実験的に除外すると、植物の多様性と生態系機能の正の関係に悪影響を与える可能性があると仮定しています。最終的に、土壌や植物の歴史が植物種の豊かさと生態系機能との関係を変えるとすれば、これは、地域的に保存されたコミュニティと新たに復元されたコミュニティの保全とモニタリングのための重要な考慮事項として役立つでしょう。
プロトコル
注:すべてのプロトコルステップで、適切な個人用保護具(ヘルメット、手袋、チョッキ、安全靴など)が提供されていることを確認してください。
1.土壌:準備、掘削、設置
- 土壌源、区画の選択、および準備(2022年2月)
- イエナ実験フィールドサイトから2つの土壌源を選択します。
- 1、2、3、および6種の植物の多様性勾配をカバーするために、プロット固有のコミュニティを12年間保持した23のTBEプロットを選択します。これらのプロットを「植物群集固有の土壌履歴を持つ」JenaTron実験処理(+SH)として指定します。
- TBEプロットと同じ土壌特性(pH、砂含有量など)を持つ4つの裸地プロットを選択しますが、2002年以降、植生被覆なしで維持されています。これらのプロットを「植物群落固有の履歴なし」(-SH)JenaTron Experiment処理として指定します。
- ミニショベルを使用して、選択したすべての区画から土壌の上部5cmをそっと取り除き、土壌履歴処理全体の条件を均等化します。
- イエナ実験フィールドサイトから2つの土壌源を選択します。
- 土一枚岩の発掘(2022年3月)
- 各プロットにモノリス抽出装置を設置し、空の鋼製シリンダーに切断システムを取り付けて、抽出装置に挿入します(図2A)。
- デバイスのスイッチを入れると、切断システムがシリンダーの外側の壁の周りを回転します。このシステムは、抽出装置が同時にスチールシリンダーを押す土壌にノッチをカットします。並行して、ミニディガーを使用して、スチールシリンダーの側面にピットを掘削します(図2B)。
- スチールシリンダーが土に完全に埋め込まれたら、サイドピットに登り、仮設の底板を取り付けてスチールシリンダーの下端でモノリスをクリップし、モノリス抽出装置を使用して掘削ピットから持ち上げます(図2C)。
- スチールシリンダーから切断システムを分解し、スチールシリンダーに仮設の天板を取り付け、ミニディガーに取り付けられたサスペンションを使用してモノリスを持ち上げ、逆さまにします。
- 水吸引システムの設置(2022年3月)
- 底板を取り外し、こてで約5cmの汚れの層を取り除き、後で使用するために保管します。
- 水吸引プローブのリング(ポリ塩化ビニル[PVC]ホースに接続された8本のキャンドル)を石英粉末に埋め込み、脱塩水(VE)で湿らせ、以前に除去した土壌をスチールシリンダーの底に補充します。
- 水吸引プローブリングのPVCエンドピースを底板に接続し、その後ボルトで固定します。
- ミニショベルのサスペンションが付いたスチールシリンダーを再び直立させ、個別にラベルを付け、シリンダー壁の開口部を粘着テープで密閉し、輸送中の保護のためにシリンダーをプラスチックホイルで包みます。
- ドイツのバート・ラウシュテットにあるヘルムホルツ環境研究センター(UFZ)の実験フィールドステーション(北緯51.392度、東経11.876度、標高116m)にあるiDivエコトロンに、土のモノリスをトラックで運びます。
- 土壌センサーの設置(2022年4月)
- 開梱後、3つの異なる深さ(9.5 cm、21.5 cm、43.5 cm)のシリンダー壁の開口部を使用して、カスタマイズされたスチールブレードを使用して、センサー用のセンサー用の穴を土壌モノリスに水平に正確に取り付けます。
- 土壌センサーを穴に置き、木製の丸太を使用して正しい位置に持ってきて、カスタムメイドのシールプラグで開口部をボルトで固定します。
- エコユニットへの土壌モノリスの設置(2022年4月)
- 各EcoUnitのテクニカル部分と上部を下部から慎重に持ち上げます(図2G)。下部を、土壌センサーを備えた無傷の土壌モノリスを収容する鋼製シリンダーに輸送します。
- 各スチールシリンダーをサスペンションに取り付け、フォークリフトで持ち上げ、底板に接続されたサクションキャンドルリングにコネクターを取り付けます。
- 4つの土壌モノリスを24のEcoUnit(図2F)のそれぞれの下部コンテナに持ち上げ、2つは同じ植物群集固有の土壌履歴(+SH)を持ち、2つは植物群集固有の土壌履歴(-SH)を持ちません。土壌センサーのケーブルをアースコンテナの開口部に通します。
- スチールシリンダーをネジで下部に固定し、続いて各シリンダーの水吸引キャンドルリングを以前に取り付けたコネクタを介してEcoUnitの水吸引システムに接続します。
- フォークリフトを使用して、土のモノリスを装備したコンテナをホール(24 m x 24 m)に輸送します。
- 各EcoUnitのテクニカルパーツと上部パーツ(サブユニット間の内壁[図2K])を下部の上部に慎重に配置します。
- 24個のEcoUnitを3列に並べ、それぞれが4つのEcoUnitからなる2つのグループで構成され、合計6つのブロックを形成します。各列内のブロック間の中心間距離を6 m、行間を8.2 mにしてください。各ブロックで、4つの植物の多様性レベル(1、2、3、6)を4つのEcoUnitにランダムに割り当て、可能な限りすべてのEcoUnitに種が均等に分布するようにします。
2.植物:準備と栽培のインストール
- 種と種子材料の選択
- イエナ実験の種プールから、 Anthoxanthum odoratum L.(イネ科)、 Dactylis glomerata L.(イネ科)、 Holcus lanatus L.(イネ科)、 Leucanthemum vulgare aggの6つの植物種を選択します。(キク科)、Plantago lanceolata L.(Plantaginaceae)、 およびRanunculus acris L.(キンポウゲ科)。
- 各種ごとに、2つの異なる種子源に由来する種子材料を選択します。
- 2010年からイエナ実験のTBEプロットで成長していた植物の種子を使用します(植物の歴史、+ PH)。
- 2010年にTBEを開始するために使用された、地域の種子生産者から供給された元の種子材料を使用します(植物の歴史なし、-PH)。
- 基板調製(2022年2月)
- イエナ実験フィールドサイトで選択した各プロットからプロット固有の土壌を収集します。土を20Lのプラスチック箱に詰め、植物栽培に使用するまで4°Cで保管します。
- 各プロット固有の土壌を4mmメッシュでふるいにかけます。ふるいにかける前に、4つの裸地のプロットから土を混ぜます。
- 不要な生物相を除去するには、石英砂をステンレス製の容器に移し、乾燥オーブンで200°Cで4時間加熱します。
- プロット固有の土壌と石英砂を体積で3:1の比率で混合し、プラスチックシャベルを使用して土壌と砂の混合物をマルチポットプレートに充填します(合計n = 152)。
- 各マルチポットプレートに個別にラベルを付け、16 h / 18 °Cおよび8 h / 12 °Cの昼夜サイクルで温室に置き、60%〜70%の相対湿度(RH)の適度な湿度を維持します。
- 必要に応じてプレートに水をやり、土壌の種子バンクが発芽するのを防ぐために2週間裸に保ちます。不要な苗を取り除くために、すべてのプレートを2回除草します。
- 播種キャンペーン(2022年3月〜4月)
- 次のように、種固有の発芽時間に基づいて播種順序を決定します。
- R.acrisを他のハーブの2週間前に播種する
- P.ランセオラータとL.ブルガレをイネ科のA.odoratum、D.glomerata、H.lanatusより1週間早く蒔きます。
- R. acrisを除くすべての種を、ポットごとに2つまたは3つのシードを備えたマルチポットプレートのプロット固有の土壌砂基質(3:1)に直接播種します。発芽が成功したら、スプリングスチールピンセットを使用してすべての種を単一の苗に間引きします。
- R. acrisの種子をペトリ皿に入れ、ジベレリン酸溶液(1000 mg)で湿らせた濾紙で前処理します。L−1)を使用して休眠状態を解消します(図2D)。種子を24時間インキュベートします。
- R. acrisの種子を脱塩水(VE)で湿らせた濾紙に発芽するまで移します。種子が根の段階に達したら、スプリングスチールピンセットを使用して、準備したマルチポットプレートのプロット固有の土壌砂基質(3:1)に苗を刺します。
- すべての植物個体にオンデマンドで脱イオン水で水をやり、iDiv Ecotronに輸送されるまで温室に保管します(図2E-H)
- 次のように、種固有の発芽時間に基づいて播種順序を決定します。
- 植樹キャンペーン(2022年5月)
- 次の特性を持つすべての土壌モノリスに対して個別の植栽スキームを設計します。
- 植物群集内の種ごとにバランスの取れた個体数を確保します。
- 各植物の個体とその隣人との間に6cmの距離を保ちます。
- EcoUnit 間で植栽パターンをランダム化しますが、サブユニット内では一定に保ちます。
- カスタムメイドの植栽ステンシルを使用して、土壌モノリス上の各植物個体の正確な位置に印を付けます。マーキングには異なる色のプラスチック製のつまようじを使用し、各種に特定の色を割り当てます。マーキング後、ステンシルを取り外します(図2I)。
- 直径4cmの球根プランターを使用して、1週間以内にすべての土壌モノリスに事前に成長した植物を植えます(合計5280人の植物個体; 図 2J)。
- 次の特性を持つすべての土壌モノリスに対して個別の植栽スキームを設計します。
3. 実験の経過
- 3週間の設立フェーズ(2022年5月):
- 最初の植え付けから2週間以内に植え付けキャンペーンを生き残らなかったすべての個体を交換します(n = 124 [2.35%])。
- ライトをオンにし、照明体制を16/8時間の昼夜サイクルに設定します。実験開始時の春の終わりから夏にかけての地域的な日の長さを再現するには、照明を100%から75%の強度に1時間かけて暗くし、次の1時間で0%にすることで夕暮れをシミュレートします(100%の強度:~370μmol/(m²・s))。この減光パターンを反転して夜明けをシミュレートします。
- 土壌水分測定キットを使用して、上部の土壌水分を体積で20%(±3%)に均等化します。
- 各サブユニットについて、初期灌漑を12時間ごとに450mLに設定します。
- 空気センサーと土壌センサーを接続して、実験全体の温度と湿度を監視します。
- 実験段階(2022年6月〜10月)
- 自然の季節性に従って、8月から10月までの2週間ごとに日の長さを1時間短縮して、夏の終わりから秋までの地域の日の長さを考慮します。
- 最初の灌漑を7月は12時間ごとに650 mLに増やし、8月は12時間ごとに750 mLに増やし、植物の水需要に合わせて調整します。
- 子葉の段階では、ピンセットを使用して不要な苗木を常に除草し、土壌構造への乱れを最小限に抑えながら植物の密度を維持します。
- 広範囲に管理された牧草地の標準的な管理に従って、地上バイオマスの収穫を2回行い、ハサミで土壌表面から3cm上の植物を切り取ります。
結果
植物と土壌の歴史が生物多様性と生態系の機能関係に及ぼす独立した相互作用的な影響をテストする際のこのアプローチの有効性についての最初の洞察を提供するために、JenaTron実験の3週間の確立フェーズの後、処理効果がすぐに見えるようになった2つの代表的なEcoUnitの写真を評価しました(図3)。植物群集の高さと色(図3A)の処理固有の違いに加えて、 R. acrisの開花時期における処理固有の違いも認識しました。具体的には、植物の歴史がない種子から育てられた植物は、イエナ実験のコミュニティ固有の植物の歴史を持つ種子から育てられた植物よりも開花が早かったようです(図3B)。
iDiv Ecotronに新たに設立されたコミュニティが元のフィールドコミュニティを正確に反映しているかどうかを評価するために、JenaTron実験プロットとTBEプロットの間の最終的な植物開発の指標として、種固有の栄養植物の高さの比較分析が行われました。JenaTron実験では、2022年7月末の最初の収穫キャンペーンの直前に、24のコミュニティと処理の組み合わせのそれぞれで、植物種ごとに3個体の最高栄養葉の平均値として植物の高さが決定されました。TBEでは、2012年7月に植物種およびプロットごとに3個体の最も高い栄養葉の平均値として、栄養植物の高さが決定されました。iDiv Ecotronによる植物の高さの測定値は、Jena Experimentのフィールドプロットと強い相関関係を示しています(補足図1)。
データ分析のケーススタディをさらに提供するために、iDiv Ecotronの植物の高さをより詳細に調査しました。種レベルおよびコミュニティレベルの解析に着目し、植物の歴史、土壌の歴史、植物の多様性が栄養植物の成長に影響を与えるかどうかを検証しました。このために、線形混合効果モデル(LMM)を使用し、ANOVA(タイプIの平方和;詳細なANOVA結果については補足 表1を参照)を介して結果を要約しました。プロットレベルでは、応答変数は平均植物植物高さと植物高さの変動係数(CV = SD /平均100)でした。固定効果には、植物の多様性(数値)、植物と土壌の履歴処理、およびそれらの相互作用が含まれていました。ランダム効果には、Ecotronホールブロック内にネストされたEcoUnitが含まれていました。種レベルでは、種と植物との相互作用、および歴史処理を固定用語で追加しました。データ変換(植物の高さの対数と高さの平方根(CV))により、モデルの仮定が満たされていることが保証されました。解析は、R(Version4.3.1)42 およびLMMs43用のnlmeパッケージを用いて行った。その結果、草の高さには有意な種差があり、草はフォーブよりも背が高いことが示されました(図4、補足図2)。すべての種において、土壌の歴史は植物の高さにプラスの影響を与えました(F(1,66) = 11.11、P = 0.001)、植物の歴史と多様性は有意な影響を与えませんでした(F(1,66)= 0.22、P = 0.64、F(1,17)= 1.52、P = 0.23)。 図4)。コミュニティレベルでは、植物の多様性は高さに影響を与えませんでした(F(1,17) = 0.01、P = 0.91; 図5A)しかし、コミュニティ内の植物の高さCVは大幅に増加しました(F(1,17) = 14.29、P = 0.002; 図5B)。植物や土壌の履歴による有意な影響は、植物の高さCVに見られませんでした(F(1,68)= 0.55;P = 0.46;F(1,68) = 0.09, P = 0.76; 図 5)。データとRスクリプトをJena Experimentデータベースにアップロードしました(https://doi.org/10.25829/QN9R-J839)。

(A)土壌履歴(SH)は、イエナ実験(JE)から96の無傷の土壌モノリスを発掘することによって確立され、そのうちの半分(n = 48)は、12年間(+SH)区画固有のコミュニティを収容した23の区画から得られ、残りの半分(n = 48)は、2002年のイエナ実験の開始以来、植生のないまま保持された4つの裸地区画(-SH)から得られました。(B)植物史(PH)は、6つの植物種ごとに2つの種子源を使用して確立されました:2010年以降、イエナ実験でモノリスが発掘された同じ区画で栽培された植物から収集された種子(+PH)、および2010年にこれらのコミュニティを野外で播種するために使用された元の種子(-PH)。(C)植物の歴史と土壌の履歴は、異なる植物の多様性レベル(1、2、3、および6)で各組成物について独立して交差し、その結果、iDivエコトロンの各EcoUnitで4つの処理が行われました:(1)+ SH / + PH、(2)+ SH /-PH、(3)-SH / + PH、および(4)-SH /-PH。 この図の拡大版を表示するには、ここをクリックしてください。

図2:ドイツのバート・ラウシュテットにあるヘルムホルツ環境研究センター(UFZ)の研究ステーションにあるiDivエコトロン (A)野外での土壌モノリス掘削装置、(B)野外での土壌モノリス掘削、(C)野外での掘削ピット、(D)温室内のジベレリン酸溶液で湿らせた濾紙上のペトリ皿での ラナンキュラス・アクリス 種子材料の調製、 (E)温室内のマルチポットプレートでのプロット固有の土壌基質を使用した植物の事前栽培、(F)iDiv EcotronホールのEcoUnits、(G)技術機器を備えた1つの実験ユニット(「EcoUnit」)の概略図(Eisenhauer et al.(2019)23 およびSchmidtら(2021)38から適応)、(H)iDiv Ecotronに輸送した後のJenaTron実験で植えられるすべての個体のプレート、 (I)植栽ステンシルで作られた土壌モノリス上のすべての植物個体の植え付け位置の種固有のマーキング、(J)球根プランターを使用した土壌モノリスへの植物個体の植え付け、(K)内壁のあるEcoUnitに4つのライシメータ。 この図の拡大版を表示するには、ここをクリックしてください。

図3:24のEcoUnitの2つの代表者、それぞれが植物と土壌の歴史のすべての処理の組み合わせで1つのコミュニティを保有しています。 (A)コミュニティの植生の高さと色に処理固有の違いがある3種の混合物(A.odoratum、 H.lanatus、 およびP.lanceolata)を使用したEcoUnit。(B) R. acrisの単一栽培によるEcoUnitは、開花時期の植物の歴史依存性の違いを示しています。 この図の拡大版を表示するには、ここをクリックしてください。
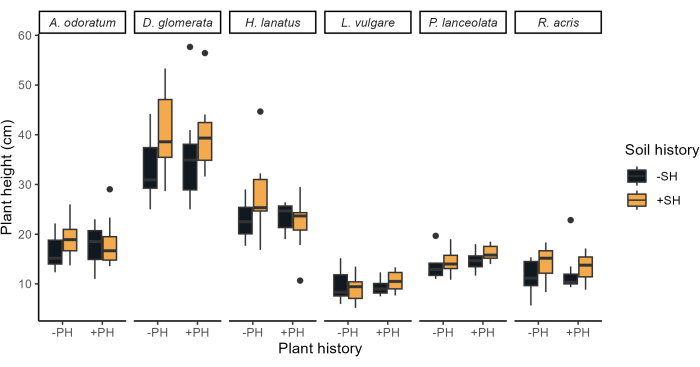
図4:2022年7月の最初の収穫前の6つの草原植物種の栄養植物の高さ(cm)に対する植物と土壌の履歴の影響。 種は、機能グループ(草の後にフォーブが続く)内にアルファベット順にリストされています。植物履歴処理(+PH/-PH)はx軸上にあり、土壌履歴(+SH/-SH)は箱ひげ図で色分けされています(黄色/黒)。 この図の拡大版を表示するには、ここをクリックしてください。
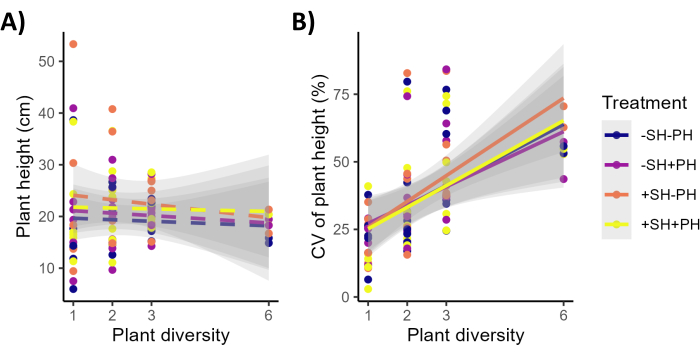
図5:種の豊富さが群集平均と栄養植物の高さの変動に及ぼす影響(A)群集平均。(B)栄養植物の高さの変化。(+PH/-PH)は植物の歴史、(+SH/-SH)は土壌の歴史です。植物の高さの変動(CV)はサブユニットごとに示されています。破線は重要でないものを表し、実線は植物の多様性に対する大きな影響を表します。この図の拡大版を表示するには、ここをクリックしてください。
表1 JenaTron実験における植物群集。 選択されたすべての植物種の単一栽培(n = 6)。2種混合物(n = 9);3種混合物(n = 7)はすべて異なる組成を有する。6種混合物の2つの同一の複製(n = 2)。 この表をダウンロードするには、ここをクリックしてください。
補足図1:種の平均植物の高さ。 (A)JenaTron実験プロット(2022年7月)およびフィールド(B)TBEプロット(2012年7月)における種の平均植物高さ。パネル Aには、植物履歴と土壌履歴を含む処理のデータのみが含まれていました。JenaTron実験の植物の高さとフィールドプロットとの間には有意な相関関係があります(ピアソン相関r(49) = 0.45、p = 0.0008)。 このファイルをダウンロードするには、ここをクリックしてください。
補足図2:植物の多様性(SR)の異なるレベルにある6つの植物種の栄養植物の高さ(cm)に対する植物および土壌履歴処理の影響。 凡例記号の +PH と -PH は、植物の履歴がある場合とない場合の処理を表し、+SH と -SH は、それぞれ土壌履歴がある場合とない場合の処理を表します。 このファイルをダウンロードするには、ここをクリックしてください。
補足表1:ANOVAは、植物多様性(種の豊富さ、SR)、土壌の歴史(SH)、および植物の歴史(PH)が種レベルとプロットレベルの両方で植物の高さに与える影響を評価する線形混合効果モデルからの結果です。 F値とp値は、各項について報告されます。注: numDF と denDF は、各モデル項の分子と分母の自由度を表します。0.05
このファイルをダウンロードするには、ここをクリックしてください。
補足表2:地上および地下の測定、応答変数、および方法。 イエナトロン実験で実施された地上および地下の測定、応答変数、および方法のスペクトルは、植物の歴史と土壌の歴史が生態系全体のBEF関係に対する独立した相互作用の影響を研究します。 このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
JenaTron実験では、Jena Experimentフィールドサイト32,33に補完的な実験アプローチを提供し、BEF関係のメカニズムの理解を深めます。フィールド実験では、土壌の歴史と植物の歴史が現実的な環境条件下で生態系の機能に及ぼす長期的な影響を研究することができ、大規模で邪魔されないプロットにより、長年にわたって繰り返し測定を行うことができます。単一栽培から最大60種までの確立された植物多様性勾配に沿って、大規模な種プールからランダムに選択された植物種の組み合わせは、種固有の影響を可能な限り除外することにより、多様性の影響を特定するのに役立つ32,33。しかし、ここではイエナ実験の一部として「ΔBEF実験」と明示的に言及しているフィールド実験(詳細については、Vogel et al. (2019)29を参照)は、土壌の歴史と植物の歴史を互いに完全に独立し、天候の変動、自然の攪乱、他の生物との相互作用などのさまざまな外部要因の潜在的な影響から調査することには限界があります29.この時点で、エコトロン実験を使用する補完的なアプローチがBEF研究の焦点になります。エコトロン実験は、小規模で短期的な小宇宙実験との間の重要なリンクを表しており、これは少数の種または単一の種のみを研究するため、フィールド実験や現実世界の複雑ささえも軽減します34,38。したがって、エコトロン実験の主な目的は、自然の複雑さを模倣することではなく、単純化されながらも生物学的に意味のある生態系を作り出すことです。これにより、現実世界で発生する多くの、もちろんすべてではない生物学的プロセスと相互作用をよりよく理解することができます34,37。さらに、Ecotronの閉鎖系は、フィールド35で容易に研究できないフラックスとプロセスを研究することを可能にする。
これまでの研究では、実験技術のさまざまな変更が利用されており、iDiv Ecotron施設の大きな適応性が強調されています。例えば、2018年に実施された「昆虫のハルマゲドン」実験44では、地上の内壁を撤去し、鋼鉄製のシリンダーで地下を解剖することで、エコユニットを再構成しました。それどころか、地下のコンテナは全体が土壌と砂の混合物で満たされており、EcoUnitあたり1.5 m2 の土壌表面積で12のヨーロッパの植物種からなる草原コミュニティの確立を促進しました。この実験計画により、地上無脊椎動物の2つの異なる存在レベルの導入が可能になり、研究者は無脊椎動物のバイオマス減少が中央ヨーロッパの草原生態系内の生態系機能とサービスに与える影響を調査することができました。もう1つの実例は、2020年に実施された「EcoLux」実験であり、夜間の光害が植物の多様性とパフォーマンスに及ぼす影響45 、および土壌コミュニティと機能への影響を調査するための光レジームの変更を実証しました46。今後、さらなる変更の可能性は依然として大きいです。2026年に予定されている「ResCUE」実験は、極端な気候下での植物の多様性と生態系の安定性との関係を調べることを目的としています26。この実験では、iDiv Ecotronで確立された草原植物の多様性の勾配全体で降水量の減少と気温の上昇をシミュレートすることにより、自然環境では再現するのが難しい環境条件である標準化された高温干ばつを実装します。この研究は、制御された気候の極端なイベント26に対応して、複数の生態系機能の抵抗と回復を評価することに焦点を当てます。
しかし、エコトロンの施設を使用して野外実験と小規模な小宇宙実験を橋渡しすることは、ほとんどがまだ比較的小さな空間スケール、少ない複製数、より低い生物学的複雑さ、および自然の気候変動の表現の欠如などの制限も伴います37。さらに、iDiv Ecotronの施設は、冬など、あらゆる種類の気候シナリオをシミュレートすることはできないため、数世代にわたる現実的な年間サイクルで個々の植物を研究する能力が制限されています。したがって、前述のように、エコトロン研究を補完的な研究アプローチと見なすことが非常に重要であり、最終的には他の実験的アプローチの結果と組み合わせて考慮する必要があります37。それにもかかわらず、iDiv Ecotron施設は、制御された環境条件下で無傷の土壌モノリスを研究し、異なる植物群集固有の歴史を持つ植物と異なる植物群集固有の歴史を持つ土壌を直交し、植物多様性勾配に沿って生態系機能に及ぼす影響を研究するユニークな機会を提供してくれる。これは、野外条件下では達成が困難である23。35.さらに、この技術により、地上と地下の両方で、制御された環境条件下で植物全体を研究することができますが、これは現場では簡単に達成できません。最後に、JenaTron実験では、植えられた(播種されたのではなく)植物群集が、植物の総密度が等しくなり、各種が等しい割合で表されることを保証するために設立されました。対照的に、播種されたコミュニティでは、種はしばしば異なる速度で確立され、一部の対象種は完全に確立できないか、非常に少ない存在量にとどまる可能性があります。
提示されたプロトコルの再現性を確保するために、実行中にいくつかの重要なステップを細心の注意を払って検討する必要があります: (1) 土壌モノリスの掘削: iDiv Ecotron 施設の主な利点の 1 つは、制御された環境条件下で無傷の土壌モノリスのかなりの数の複製を確立する能力です。土壌モノリスの完全性を確保するためには、土壌モノリス抽出に最適なフィールド条件を維持することが不可欠です。具体的には、土壌水分が多すぎると土壌柱が圧縮される可能性があり、乾燥しすぎたり凍結したりする土壌は亀裂を形成する可能性があります。これらの要因によりモノリスが損なわれた場合、モノリスは廃棄する必要があり、発掘プロセスを繰り返す必要があります。(2)種の選択:記載されているプロトコルは、TBEの6つの草原植物種を使用しており、これらは主要な実験との重複、草とフォーブのバランスの取れた表現、および異なる資源利用戦略(例えば、植物フェノロジー)を研究する可能性に基づいて選択されました41。生物多様性の実験では、6種は種数が少なく、他の形質の組み合わせを持つ他の種の選択は異なる実験結果につながる可能性があり、慎重に検討する必要があります。(3)植物の密度とすべての種の等しい割合:JenaTron実験のセットアップの注目すべき利点は、植物群集が等しい植物密度で確立され、各種が同じ数の個体で表されることです。一貫した植物密度と均等な植栽比率を確保することは、個々の種の異なる確立に関連する交絡効果を防ぐため、実験の再現性にとって非常に重要です。したがって、実験計画を維持し、信頼性の高い結果を確保するためには、植物の密度を正確に制御することが不可欠です。
言及された最も重要なステップを考慮することに特に重点を置いたプロトコルに従ってJenaTron実験を開始した後、植物群集の高さ、色、開花時間に対する識別可能な処理効果が急速に現れました。その後、JenaTronとTBEの種別栄養植物の高さの比較分析により、iDiv Ecotronに設立されたコミュニティが実際にフィールドの元のコミュニティに似ていることが明確に確認されました。データ分析のケーススタディをさらに提供するために、JenaTron実験の栄養植物の高さをより詳細に分析しました。JenaTronの種特異的な栄養植物の高さの分析により、すべての対象種が成功裏に確立され、種と機能グループ間の有意な違いが明らかになりました。イエナ実験47では、草が他の官能基よりも背が高くなることが知られているため、この結果は予想されます。土壌の歴史の有意な正の影響が種間で検出され、以前の土壌条件がエコトロンの植物の成長を形作っていることを示しており、これは、以前に植物群集(多様性レベルとは無関係)を抱いていた土壌からの正のフィードバック効果と、植生のない土壌からの負のフィードバックによって駆動される可能性があることを示しています。土壌の歴史の生物的特性と非生物的特性は異なるようであり、植物群集固有の歴史を持つ土壌の植物は、それぞれの歴史を持たない土壌の植物よりも有利になります。なぜなら、植物の高さは光を奪い合う能力に重要な役割を果たし、したがって炭素獲得の重要な特性であるためです48。対照的に、植物群集固有の植物の歴史が平均栄養高さに及ぼす有意な影響は見られず、エコトロンの環境条件下では、土壌特性が種子源よりも強い影響を与える可能性があることを示唆しています。ただし、この仮説は、JenaTron実験で測定された多数の生態系機能を調査することにより、全体的な方法で検証する必要があります。
種特異的な分析もコミュニティ固有の分析も、種の豊富さが植物の平均高さに影響を与えるという証拠を提供しておらず、フィールド実験からの以前の発見とは対照的であり、植物の高さはより高い種49で増加し、おそらく光の競争が強いためである47,50。より多様なコミュニティにおける種間のより大きな相補性は、より高い植物密度51につながり、潜在的には植物の高さの成長52をさらに強化する可能性がある。したがって、イエナトロン実験で植物の高さに対する植物の多様性の影響が欠如しているのは、植物密度に生物多様性に依存する変動がないためである可能性があり、現実世界での多様性に依存する個々の植物の性能に対するこのメカニズムの潜在的な重要性を示しています52。それにもかかわらず、種の豊富さは植物の高さCVに有意な影響を及ぼし、植物の多様性が植生の構造の複雑さを増大させることを示唆しており、多様性をより複雑な地上のキャノピーに関連付ける研究と一致しています49,50,52,53,54。
まとめると、結果はJenaTron実験の標的治療の成功した確立を確認し、有意な治療効果の迅速な発現を通じて、私たちのアプローチの有効性についての最初の洞察を提供します(図3、 図4、 および図5)。さらに、種別の栄養植物の高さの比較分析により、iDiv Ecotronに新たに設立されたコミュニティは、実際に元の野外観測に似ていることが示されています。植物の高さの詳細な分析は、単一の応答変数のデータ分析と視覚化のケーススタディとして機能します。しかし、このケーススタディでは、生物多様性と生態系の機能との関係が時間の経過とともに強化されるのが、土壌の歴史、植物の歴史、またはその両方の組み合わせによるものであるかどうかという包括的な仮説に総合的に取り組む際に、単一の応答変数に焦点を当てることの限界を強調しています。このことは、植物の歴史と土壌の歴史がBEF関係に及ぼす独立した相互作用的な影響を調査するための、私たちの高度に協力的なアプローチの重要性を強調している23。イエナ実験研究ユニット(FOR 5000)の11のサブプロジェクトがイエナトロン実験で緊密に連携し、微生物学、化学生態学、フェノロジー、近位センシング、遺伝学、エピジェネティクス、土壌生態学、食物網モデリングなど、さまざまな研究分野で幅広い応答変数を測定しました。この統合的な取り組みは、(1)複数の栄養レベルと生態系機能に対する植物史の影響を土壌史の影響から分離すること、(2)植物種の豊富さのすべてのレベルで植物種特異的および相互作用特異的な影響を調査し、(3)BEF関係の根本的なメカニズムを調査することを目的としています23(補足表249、 50、55、56、57、58、59、60、61、62、63、64、65、66、67、68、69、70、71、72、
73,74,75,76,77,78,79,80,81,82,83,84)。
開示事項
著者は何も開示していません。
謝辞
L.Boockmann、T.Meier、N.Naderi、L.-M.に多大な感謝を捧げます。ウォルターは、ジェナトロン実験の全期間中、研究助手としてのサポートに感謝します。Umwelt-Geräte-Technik GmbH(UGT)の全従業員に対し、イエナ実験の土壌モノリス掘削における専門的かつ温かい協力に感謝します。また、C. Lauterwasser, H.-C. にも感謝いたします。Schulz、およびR. Widuwilsは、土壌モノリス掘削でUGTをサポートしました。イエナ実験の技術スタッフであるS.アイスマン、F.フレーター、G.クラッチュ、U.ケーバー、K.クンツェ、H.シェフラーの現場でのサポートと、iDivエコトロンでの植樹キャンペーン中の熱心な支援に感謝します。I.メルバッハとバート・ラウヒシュテットにあるヘルムホルツ環境研究センター(UFZ)の技術スタッフ、特にO.ベドノルツとK.キルシュの多大な支援に感謝します。A.Q.バースとR.アルトマンのiDiv温室での素晴らしい協力に感謝します。S. Haenzel、A. Lochner、A. Zeunerには、管理、組織、および実験室での作業に不可欠な支援に感謝します。メルカトル・フェローのJ・キャベンダー・バレス、F・イズベル、L・モマー、K・ミューラー、そして緊密な協力者であるB・シュミット、主任研究者のU・ブローズ、H・シールツェス、N・ヴァン・ダム、W・W・ワイサー、C・ワース、J・ウルフの各フェローに対し、イエナトロン実験の構想、設計、実現に重要な貢献をしていただいたことに感謝します。最後に、財政支援を提供してくださったドイツ研究財団(DFG)(FOR 5000)と、ドイツ統合生物多様性研究センター(iDiv、ドイツ研究財団が資金提供)[DFG-FZT 118, 202548816])、ライプツィヒ大学、フリードリヒ・シラー大学イェーナ、マックスプランク生物地球化学研究所(イェーナ)に財政的および後方支援に感謝します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 球根プランター (直径4cm) | ケント&ストウ | 金物店 | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883&gad_ source=1&gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE |
| コネクター吸引キャンドル | Umwelt Geräte Technik (UGT) | 1871000 | |
| https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ 栽培トレー (排水なし) | 盆栽-ショッピング | 59000 / 5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| 脱塩水(VE) | アルフィルトラ | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| ダクトテープ | T-レックス | 金物店 | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930&gad_source=1&gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| プラスチックボックス (20 L) | Auer Packaging | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1&gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| ろ紙 (直径 150 mm) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| フォークリフト | HIRSCH | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB |
| ジベレリック酸 (90%) | ロチクロム | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| ジャグの測定 (3000 mL) | Hüナースドルフ | 金物店 | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ |
| ジャグの測定 (5000 mL) | Hüナースドルフ | 金物店 | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ |
| 金属ふるい(4mmメッシュサイズ) | ブラウ・メタル | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| ミニディガー | ツェッペリン キャット | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| モルタル浴槽 (90 L) | Gripline金 | 物店 | https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ |
| マルチポットプレート(QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| シャーレ(直径150 mm) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| 植栽ステンシル(特注) | UFZ | n.a. | ドイツのライプツィヒにあるヘルムホルツ環境研究センター(UFZ)のワークショップで製造された、iDiv Ecotron金属シリンダーの植栽に特化した植栽ステンシル。 |
| プラスチック箔 | カーゴポイント | 金物店 | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ 。 |
| プラスチックショベルH | üナースドルフ | 金物店 | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ |
| 圧力噴霧器(1500 mL) | Bü | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 9223162 | |
| 石英粉末 | Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/>StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| 石英砂 HQS (0.3 - 0.8 mm サイズ) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| シールは | Umwelt Geräを差し込みます。te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 種子材料 | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| 土壌水分測定キット (ML3 ThetaKit) | Delta-T Devices | ML3 ThetaKit | |
| https://delta-t.co.uk/product/ml3/ 土壌モノリス抽出デバイス | Umwelt Geräte Technik (UGT) | 1871000 | |
| https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ 土壌センサー (SMT-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| ばね鋼ピンセット(105 mm) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| ステンレス鋼の刃(カスタムメイド) | UFZ | n.a. | ヘルムホルツ環境研究センター(UFZ)、バートLauchstäのワークショップで製造されたステンレス鋼の刃。dt、ドイツ、特にiDiv Ecotron金属シリンダーに土壌センサーを挿入するためのものです。 |
| ステンレス製シリンダー | Umwelt Geräte Technik (UGT) | 1871000 | |
| https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ スティックラベル (12 cm x 2 cm) | マ | イヤー160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| サスペンション | 環世界ゲル。te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| 仮設上部/下部プレート | Umwelt Geräte Technik (UGT) | 1871000 | |
| https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ つまようじ | Büroshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096a8AA&storeType=B2C&lkz= 1131602&obt=20&kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8&gad_source=1&gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Iwo-CRoCfWsQAvD_BwE |
| こて | Kaufmann | 金物店 | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.&wt _cc1=868482949&wt_cc2=798386 88391&wt_cc3=377419910580&wt _cc4=&wt_cc6=7940328&wt_cc7= 566&gad_source=1&gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| Truck | Europcar | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc&utm_campaign&utm_term& gad_source=1&gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB&gclsrc=aw.ds&vehicle タイプ=TR&pickupLocation=ZJSC04 &ドロップオフロケーション=ZJSC04&pickupYe ar=2024&pickupMonth=12&pickup Day=11&ドロップオフ年=2024&ドロップオフ 月=12&ドロップオフ日=18&pickup 時間=10&pickupMinute=00&ドロップオフ 時間=18&ドロップオフ分=00&driver 年齢=26歳&countryOfResidence=DE |
| ピンセット | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| 水吸引プローブ | Umwelt Geräte Technik (UGT) | 1211000 | |
| https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ センサーログ | Konsta | 物店 | 用木材 https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
参考文献
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
再版と許可
タグ
