この研究では、催奇形性化学物質を同定するための in vitro 細胞アッセイを提示します。ヒト人工多能性幹細胞(iPS)レポーター細胞において線維芽細胞増殖因子(FGF)/血清応答因子(SRF)シグナル伝達の動態を測定し、このシグナル伝達経路の化学的破壊を定量化することにより催奇形性のリスクを評価した。
この記事について
サマリー
要約
発生毒性 (Devtox) は通常、動物モデルで評価されます。しかし、種間の違いによる偽陰性や動物福祉に関する倫理的懸念など、正確性を確保するには課題があります。したがって、人間のDevtoxを評価し、これらの問題に対処するための新しいテストシステムが必要です。催奇形性物質は、分子標的に関係なく、形態形成に不可欠なDevtox関連シグナル伝達経路を破壊するという仮説を立てました。この仮説を検証するために、ヒト人工多能性幹細胞(iPS)を用いた線維芽細胞増殖因子(FGF)レポーターシステムを開発しました。このシステムは、化学物質によって引き起こされるシグナル破壊の定量化を可能にし、既知の催奇形性および非催奇形性化合物に対して83%の精度を達成します。Devtoxのシグナル伝達活動は時間の経過とともに変化するため、単一のエンドポイントで測定するのではなく、そのダイナミクスを継続的に捉えることが重要です。リアルタイム発光測定システムの使用はオプションですが、より少ない労力で時間分解能が向上します。培養プレートへの細胞播種から発光データの取得まで、テスト全体を1週間以内に完了できます。
概要
一部の化学物質は、成長遅延、奇形、機能障害、死亡などの発生毒性 (Devtox) を引き起こします1。Devtox の評価は、医薬品と農薬の安全性を確保するために不可欠です2.現在のDevtoxアッセイは、通常、複数の動物モデルに依存しています。ただし、種間の違いにより、動物モデルには、結果を人間に外挿する際に固有の制限があります3。よく知られた発達毒性物質であるサリドマイドは、つわりを和らげるために 1950 年代後半に妊婦に初めて処方されました。げっ歯類では催奇形性は観察されませんでしたが、ヒト新生児の重度の四肢奇形は世界中で報告されています。この悲劇は動物ベースの安全性試験の限界を浮き彫りにし、Devtox 試験ガイドラインの導入と改訂に向けた国際的な取り組みを促しました4.さらに、動物福祉に関する懸念や、動物実験に多額の時間とコストがかかることも懸念されています。したがって、ヒトDevtoxを正確に予測できる代替のin vitroアッセイが必要です5。
ここでは、胚発生に重要なシグナル伝達経路の破壊に基づいて発生毒物を評価するためのin vitroアッセイを提案します6,7,8。このアッセイは、血清応答要素(SRE)の制御下で、発光レポーター遺伝子であるNanoLucルシフェラーゼ(Nluc)を発現するように遺伝子操作されたヒト人工多能性幹細胞(iPSC)を使用して実行されます。SRE は、線維芽細胞増殖因子 (FGF) シグナル伝達経路の転写因子である血清応答因子 (SRF) の結合部位です。SRFは、複数のリガンドからのシグナルを統合し、胚発生を含む多様な生物学的プロセスで重要な役割を果たす200以上の遺伝子の発現を調節します9。
このアッセイでは、レポーター細胞を試験化学物質にさらし、FGFで刺激してシグナル伝達を活性化し、化学物質による干渉を増幅しました。このアッセイの重要な特徴は、発光強度の変化に伴うシグナル伝達活動のダイナミクスを捉えることです。シグナル伝達活動は時間とともに変化するため、単一の時点でのエンドポイント測定は不正確になる可能性があります10。実際、24時間にわたる7つの時点での測定では、曲線下面積(AUC)値が0.837で、予測精度が向上したことが示されました。
試験薬品は、細胞毒性と溶解度に応じて、0.01 ng/mL から 1000 μg/mL までの幅広い濃度で適用できます。1つの96ウェルプレートを播種するには、約1.4×10⁴ 細胞が必要です。このアッセイの限界は、催奇形性化学物質が未分化ヒトiPS細胞で発現していない標的を介して作用する場合、検出できない可能性があることです。さらに、このアッセイは催奇形性代謝産物を捕捉できない可能性があります。さらに、催奇形性毒性の根底にある詳細なメカニズムやその特定の結果に関する情報は提供されていません。
リアルタイム発光モニタリングシステムを使用することで、時間分解能がさらに向上し、連続測定に必要な労力が削減され、培養プレートの繰り返し取り扱いによるアーティファクトが最小限に抑えられます。ここでは、シグナル破壊ベースのDevtoxアッセイの詳細なプロトコルを提示します。1週間以内に全手続きが完了します。このアプローチは自動化できるため、化学スクリーニングに適しており、動物実験の削減に貢献します。
プロトコル
この研究では、ヒトiPS細胞(201B7)を使用し、CRISPR-Cas9システムを使用してアデノ随伴ウイルス統合部位1(AAVS1)遺伝子座にノックされた血清応答要素(SRE)の制御下にあるNluc遺伝子を使用しました(図1A)。レポーター細胞(SRE-NlucノックインヒトiPS細胞)の遺伝子編集の詳細は、他に類を見据えています6。このプロトコルは主に 3 つのステップに分かれています: 1) 化学物質の最大暴露濃度を決定するための細胞毒性アッセイ、2) シグナル破壊試験、および 3) データ分析。
培地蒸発の影響を最小限に抑えるために、96ウェルプレートの中央60ウェルを使用してすべての細胞培養実験を実行し、最も外側のウェルとウェル間スペースに水を追加します。インキュベーション中は、蒸発をさらに減らすために、ガス透過性のシールフィルムでプレートを覆います。
1. 細胞調製
- 冷凍ストックを解凍した後、少なくとも2週間レポーター細胞を培養します。細胞を7日間の繰り返しスケジュールで維持し、アッセイには7日目の細胞を使用します。播種密度を継代日に~80%の合流点に最適化します。
- 10 μM ROCK阻害剤を添加した2 mLの新鮮な維持培地を含むECMコーティングされた6ウェルプレートに、2.0×10⁵ 細胞/ウェルで単一細胞を播種します。
- 24時間後、培地を2 mL/ウェルの新鮮な維持培地と交換します。
- 72時間で、酵素ベースの解離試薬を使用して細胞を収集し、単一細胞懸濁液を得る。10 μM ROCK阻害剤を添加した2 mLの新鮮な維持培地を含むECMコーティングされた6ウェルプレートで105 細胞/ウェルを1.0×10で播種します。
- 24時間後、培地を4 mL/ウェルの新鮮な維持培地と交換します。
- 96時間後、酵素ベースの解離試薬を使用して、単一細胞懸濁液として細胞を収集します。これらの細胞をレポーターアッセイに使用します。
2. 細胞毒性アッセイ
- 予備テスト
- 10 μM ROCK阻害剤を添加した200 μLの新鮮な維持培地を含むECMコーティングされた96ウェルプレートで、10 μL ×10 4 細胞/ウェルで単一細胞を播種します。プレートをガス透過性フィルムで密封します。
- 24時間で、培地を200 μL/ウェルの新鮮なメンテナンス培地と交換し、ガス透過性フィルムでプレートを再密封します。
- 72時間で、培地を100 μL /ウェルのアッセイ培地と交換し、プレートをガス透過性フィルムで再密封します。
- 96時間で、培地を100 μL/ウェルのアッセイ培地と交換します。
注:100%コンフルエンスが達成されない場合は、アッセイを中止してください。増殖速度は細胞株によって異なる場合があるため、播種密度を最適化して、アッセイ当日に完全なコンフルエンスを確保します。 - 試験化学物質をアッセイ培地に最大溶解度まで溶解します。
注:ジメチルスルホキシド(DMSO)を溶媒として使用する場合、最終的なDMSO濃度は0.1%を超えてはなりません。 - ステップ2.1.5の溶液を使用して、アッセイ培地中で試験化学物質の5点、5倍の連続希釈液を調製します。
- ステップ2.1.6の薬液を11 μL/ウェル加えます。ビヒクルコントロールには、同じDMSO濃度を含むアッセイ培地を11 μL/ウェル添加します。
- 48時間後、プレートを25°Cで30分間インキュベートします。
- 25°Cで111 μL/ウェルの事前平衡化されたATPベースの発光細胞生存率アッセイ試薬を加えます。 ブランクの場合は、111 μLのアッセイ培地と111 μLの試薬を含むウェルを調製します。
- マイクロプレートシェーカーを使用して、プレートを300rpmで2分間振とうします。
- 200 μLの混合物を黒いプレートに移して、発光測定を行います。プレートを25°Cで10分間インキュベートします。
- 発光強度を測定して、細胞数を推定します。
- 次の式を使用して細胞生存率を計算します。
細胞生存率(%)=(RLU_sample−RLU_blank)/(RLU_vehicle−RLU_blank)×100
注:細胞生存率に基づいて後続のステップを決定します。試験したすべての濃度で生存率が>50%の場合は、最大溶解度濃度でステップ2.2に進みます。生存率が試験範囲内で50%を超える場合は、生存率>50%の最高濃度を使用して測定試験に進みます。すべての濃度で生存率が<50%の場合は、より低い濃度から予備試験を繰り返します。
- 決定試験
- 10 μM ROCK阻害剤を添加した200 μLの新鮮な維持培地を含むECMコーティングされた96ウェルプレートで、10 μL ×10 4 細胞/ウェルで単一細胞を播種します。プレートをガス透過性フィルムで密封します。
- 24時間で、培地を200 μL/ウェルの新鮮なメンテナンス培地と交換し、ガス透過性フィルムでプレートを再密封します。
- 72時間で、培地を100 μL /ウェルのアッセイ培地と交換し、プレートをガス透過性フィルムで再密封します。
- 96時間で、培地を100 μL/ウェルのアッセイ培地と交換します。
注:100%コンフルエンスが達成されない場合は、アッセイを中止してください。播種密度を最適化して、4日目に完全に合流するようにします。 - 予備試験の結果に従って、試験薬品をアッセイ培地に溶解します(ステップ2.1)。
- ステップ2.2.5の溶液を使用して、アッセイ培地中の試験化学物質の9ポイント、2倍の連続希釈液を調製します。
- ステップ2.2.6の薬液を11 μL/ウェル加えます。ビヒクルコントロールには、同じDMSO濃度を含むアッセイ培地を11 μL/ウェル添加します。
- 48時間後、プレートを25°Cで30分間インキュベートします。
- 25°Cで111 μL/ウェルの事前平衡化されたATPベースの発光細胞生存率アッセイ試薬を加えます。 ブランクの場合は、111 μLのアッセイ培地と111 μLの試薬を含むウェルを調製します。
- マイクロプレートシェーカーを使用して、プレートを300rpmで2分間振とうします。
- 200 μLの混合物を黒いプレートに移して、発光測定を行います。プレートを25°Cで10分間インキュベートします。
- 発光強度を測定して、細胞数を推定します。
- 次の式を使用して細胞生存率を計算します。
細胞生存率(%)=(RLU_sample−RLU_blank)/(RLU_vehicle−RLU_blank)×100 - 9 つの濃度のデータを使用して用量反応曲線を生成し、曲線から IC50 を計算します。
3. リアルタイムレポーターアッセイ(図1B)
- 10 μM ROCK阻害剤を添加した200 μLの新鮮な維持培地を含むECMコーティングされた96ウェルプレートに、2.0×10⁴細胞/ウェルで単一細胞を播種します。プレートをガス透過性フィルムで密封します。
- 24時間で、培地を200 μL/ウェルの新鮮なメンテナンス培地と交換し、ガス透過性フィルムでプレートを再密封します。
- 72時間で、培地を100 μL /ウェルのアッセイ培地と交換し、プレートをガス透過性フィルムで再密封します。
- 96時間で、培地を1%発光基質を含む100 μL/ウェルのアッセイ培地と交換します。
注:100%コンフルエンスが達成されない場合は、アッセイを中止してください。増殖速度は細胞株によって異なる場合があるため、播種密度を最適化して、4日目に完全なコンフルエンスを確保します。 - セクション2で決定された濃度で試験化学物質をアッセイ媒体に溶解します。
- ステップ3.5で調製した溶液から始めて、アッセイ培地中で試験化学物質の8点、2倍の連続希釈液を調製します。
- ステップ3.4の培地交換の2時間後、ステップ3.6の薬液を11 μL/ウェル加えます。ビヒクルコントロールには、同じDMSO濃度を含むアッセイ培地を11 μL/ウェル添加します。
- 化学物質曝露の開始から1時間後(ステップ3.7)、bFGFを含むアッセイ培地を12 μL/ウェルを最終濃度2 ng/mLまで添加します。
- リアルタイム発光測定システムを使用して、加湿雰囲気、37°Cで5%CO2 下で48時間連続発光を測定します。
注:FGF添加点で時間0を設定します( 図1Bを参照)。
4. データ分析(図1C)
- テストグループをビヒクルコントロールに正規化することにより、発光強度のlog2倍変化(LogFC)を計算します。
LogFC = ログ2(Luc_sample / Luc_vehicle) - 48時間の時系列にわたってLogFCを積分して、テストグループとビヒクルコントロールグループの曲線間の面積(ABC)を推定します。
- 試験化学物質によって引き起こされる信号の中断の全体的な程度を定量化するための、すべての濃度にわたるABC値の合計。
- 受信者動作特性 (ROC) 曲線分析を実行して、Devtox 分類のしきい値を決定します。
結果
私たちの経験では、細胞形態は、アッセイが正しく実行されたかどうかを判断するのに役立ちます。 図2A は、化学物質曝露の直前と直後の細胞の典型的な共焦点顕微鏡画像を示しています。アッセイの最後に、ウェルのほぼ表面全体が細胞で覆われます。 図2B は、生細胞/死細胞染色の画像を示しています。ヨウ化プロピジウム(PI)で染色された死細胞の数は、化学物質への曝露後に増加します。ただし、細胞生存率は少なくとも50%であり、ほとんどすべての細胞がカルセイン-AMで染色されています。
表1は、以前の研究7,8で使用された試験化学物質を示しています。これらの研究は、ヒトiPS細胞におけるFGFシグナルの破壊に基づいて、Devtox化学物質をより正確に区別できることを示しています。重要な発見は、シグナリング活動は時間の経過とともに動的に変化するため、シグナリング活動の継続的な監視が重要であるということです。リアルタイム発光測定システムを使用することで、測定の手間を抑えながら、かなり高い時間分解能が得られます。ここでは、リアルタイム監視システムを使用するプロトコルについて説明します。
図3A は、試験化学物質を使用せずに同じ条件下で6つの繰り返しウェルで48時間にわたる発光強度の変化を示しています。6つの曲線はほぼ整列しており、ウェル間の再現性が良好であることを示しています。以前の研究では、24時間の手動測定では明確に特定されていませんが、48時間のリアルタイム測定では、FGFリガンド添加直後の最初のピークと約24時間の2番目のピークの2つの異なるピークが現れます。 図3B は、よく知られた発生毒性物質であるバルプロ酸(VPA)への曝露時の発光強度の変化を示しています。VPAは、神経管、心臓、四肢に欠陥を引き起こすヒストン脱アセチル化酵素阻害剤です¹¹。VPAは、濃度依存的にFGFシグナル伝達を破壊します。自動リアルタイム測定システムは、手動測定よりも正確に信号ダイナミクスをキャプチャしました。
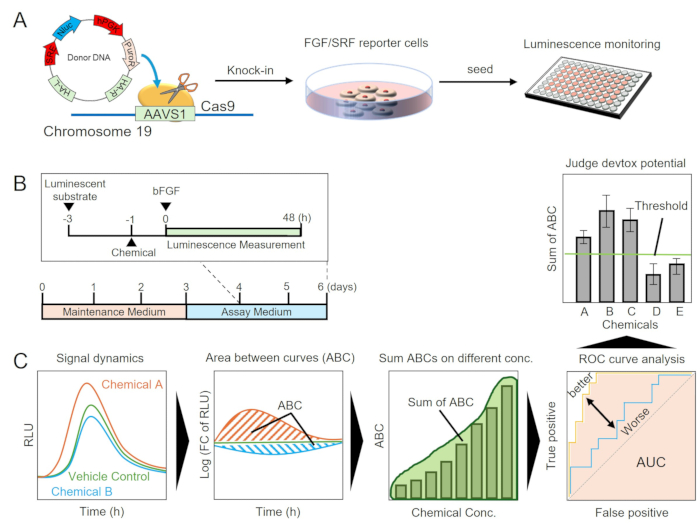
図1:FGF/SRFシグナルディスラプションアッセイ。(A) ヒトiPS細胞の遺伝子操作によるFGF/SRFシグナルレポーター細胞の生成血清応答要素の下流にNluc、標的ノックイン用の相同アーム、およびヒトホスホグリセリン酸キナーゼプロモーターの制御下にあるピューロマイシン耐性遺伝子を含むプラスミドを構築しました。ピューロマイシンの選択に続いて、SRE-Nlucレポーター細胞が確立されました。 (B) アッセイのタイムスケジュール。レポーター細胞を96ウェルプレートに播種し、表面全体を覆うように4日間増殖させました。発光基質と試験薬品を、それぞれ測定開始の3時間前と1時間前に添加した。FGFリガンド付加時間を0時間とし、その後48時間にわたって連続して発光強度を測定した。 (C) データ分析。信号ダイナミクスは、試験化学物質に曝露されたセルと曝露されていないセルで記録され、ビークルコントロールに正規化されて、化学物質によって引き起こされる信号の破壊の尺度として曲線間の面積を推定しました。異なる濃度で各化学物質のABC値を取得し、それらの合計を計算しました。しきい値を決定するためにテストされたすべての既知の発生毒性物質を使用して、受信者の動作特性曲線分析を実行しました。略語:iPS=人工多能性幹細胞;RLU = 相対光単位;AUC = 曲線下の面積。FGF = 線維芽細胞増殖因子;SRF = 血清応答因子;SRE = 血清応答要素;HA = 相同アーム;L =左;R =右;PuroR = ピューロマイシン耐性遺伝子;hPGK = ヒトホスホグリセリン酸キナーゼ;Nluc = NanoLucルシフェラーゼ;ROC = 受信機の動作特性。ABC = 曲線間の面積。 この図の拡大版を表示するには、ここをクリックしてください。
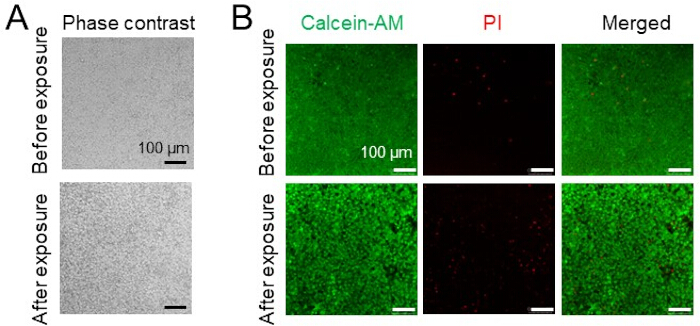
図2:細胞形態と生細胞/死細胞染色。(A) 試験化学物質への曝露前(4日目)および曝露後(6日目)の細胞の共焦点顕微鏡画像。テスト後にウェルのほぼ表面全体を覆う残りのセルは、テスト実行が成功したことを示す指標です。アッセイの終了時にほぼ完全なウェルカバレッジは、実行が成功したことを示します。 (B) 試験化学物質への曝露前後の生細胞/死細胞染色。生細胞はカルセイン-AMで緑色に染色し、死細胞はヨウ化プロピジウム(PI)で赤色に染色しました。カルセイン-AM(緑)で染色し、死細胞をヨウ化プロピジウム(PI、赤)で染色しました。死んだ細胞の割合は、全細胞の50%<よりも少ないようにする必要があります。スケールバー = 100 μm。 この図の拡大版を表示するには、ここをクリックしてください。
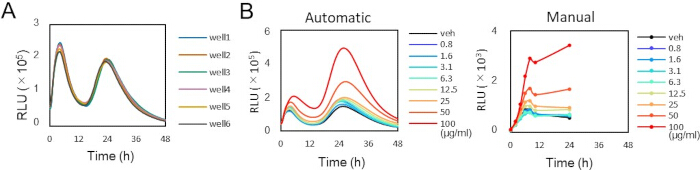
図3:発光強度ダイナミクスの典型的な例。(A)時間経過ルミネッセンスは、リアルタイム発光測定システムを用いて測定したFGFリガンド刺激後の発光の時間経過を変化させます。発光強度は、22分ごとに48時間監視されました。6 本の色付きの線は、異なる井戸からの信号を表します。 (B)バルプロ酸による手動およびリアルタイムの発光測定の比較。どちらの測定方法でも信号の中断が観察されましたが、リアルタイムモニタリングでは、2番目のピークで強化された信号をより明確にキャプチャしました。略語:RLU =相対光単位;VPA =バルプロ酸;FGF = 線維芽細胞増殖因子。この図の拡大版を表示するには、ここをクリックしてください。この表をダウンロードするには、ここをクリックしてください。
| 試験薬品 | 略称 | キャス番号。 | 動物実験 (先行研究) | インビトロ研究 (本研究) | ABC 値の合計 | 最大濃度 (μg/mL) |
| オールトランスレチノイン酸 | アトラ | 302-79-4 | P | P | 65.9 | 0.0100 |
| ヒドロキシウレア | 胡 | 127-07-1 | P | P | 63.3 | 149 |
| メトキシ酢酸 | MAAさん | 625-45-6 | P | P | 225 | 683 |
| 塩化メチル水銀 | メHg | 115-09-3 | P | P | 77.7 | 1.20 |
| メトトレキサート水和物 | MTXの | 133073-73-1 | P | P | 80.5 | 5.00 |
| サリチル酸ナトリウム | SAの | 54-21-7 | P | P | 38.7 | 666 |
| バルプロ酸 | VPAの | 99-66-1 | P | P | 63.3 | 100 |
| 6-アミノニコチンアミド | 6-AN | 329-89-5 | P | N | 24.9 | 1.00 |
| ホウ酸 | 文学士 | 10043-35-3 | P | N | 24.2 | 250 |
| 5-ブロモ-2'-デオキシウリジン | BrdU | 59-14-3 | P | P | 83.9 | 50.0 |
| 5,5-ジメチル-2,4-オキサゾリジンジオン | DMO | 695-53-4 | P | P | 50.3 | 840 |
| クロライドリチウム | LiCl | 7447-41-8 | P | N | 29.8 | 250 |
| 5-フルオロウラシル | 5-FU | 51-21-8 | P | P | 92.4 | 2.65 |
| シクロホスファミド一水和物 | 公認会計士 | 6055-19-2 | P | N | 19.1 | 400 |
| メシル酸イマチニブ | アイマ | 220127-57-1 | P | P | 42.4 | 12.5 |
| レナリドマイド | レン | 191732-72-6 | P | P | 94.7 | 35.0 |
| ポマリドマイド | POMの | 19171-19-8 | P | P | 50.9 | 2.50 |
| サリドマイド | 股関節 | 50-35-1 | P | P | 53.3 | 12.0 |
| アクリルアミド | AcA | 79-06-01 | N | N | 37.1 | 454 |
| D-樟脳 | カム | 464-49-3 | N | N | 27.5 | 50.0 |
| ジフェンヒドラミン塩酸塩 | DHMの | 147-24-0 | N | P | 68.2 | 262 |
| フタル酸ジメチル | DMPの | 131-11-3 | N | N | 24.4 | 100 |
| ペニシリンGナトリウム塩 | 鵬 | 69-57-8 | N | N | 22.1 | 1000 |
| サッカリンナトリウム | 嚢 | 82385-42-0 | N | N | 34.0 | 1000 |
| アセトアミノフェン | APAPの | 103-90-2 | N | N | 22.3 | 20.0 |
| アモキシシリン三水和物 | AMXの | 61336-70-7 | N | N | 28.4 | 25.0 |
| シメチジン | センチメートル | 51481-61-9 | N | N | 25.3 | 30.0 |
| エリスロマイシン | エリー | 114-07-8 | N | N | 20.0 | 15.0 |
| ヒドロクロロチアジド | HCTZの | 58-93-5 | N | N | 21.9 | 20.0 |
| スルファサラジン | SSZの | 599-79-1 | N | N | 30.8 | 100 |
| ケミカル | AUCの | 閾 | 感度 | 特異 性 | 精度 | |
| 30物質 | 0.819 | 37.9 | 0.778 | 0.917 | 0.833 |
表1:動物実験内で分類されたDevtoxおよび非Devtox化学物質、およびFGFシグナル破壊の有無にかかわらず推定された結果。 略語:P =ポジティブ(Devtox);N = 陰性 (非 Devtox)。
ディスカッション
胚胎児の発育は、シグナル伝達ネットワークによって厳密に規制されています12。これらのネットワーク内のフィードバックは内部および外部のノイズに対する堅牢性を提供しますが、Devtox化学物質はそのようなバッファリングを超える効果を発揮できるという仮説を立てました。ここでは、FGF/SRFシグナル伝達の過度の破壊に基づいてDevtox化学物質を推定するためのプロトコルを提示します。このアプローチは、化学物質の標的タンパク質など、Devtoxに関与する分子メカニズムに関する情報を提供せず、FGF / SRFシグナル伝達のみに焦点を当てています。それにもかかわらず、Devtox 化学物質を 83% の精度と 0.819 の AUC で効率的に分類することが可能でした (表 1)。これはおそらく、各シグナル伝達経路が他のシグナル伝達経路と密接に関連しており、高密度のシグナル伝達ネットワークを形成しており、これらのネットワーク内の破壊がFGF/SRF信号の破壊をもたらすためと考えられます。
レポーター細胞を生成する際には、いくつかの技術的課題に対処する必要があります。Nlucは、ホタルまたはレニラに由来する従来のルシフェラーゼの約100倍の明るさであり、信号変化の継続的な長期モニタリングを可能にします13。PEST配列を含むNlucを使用して、シグナル伝達活動のダイナミクスをより正確に捉えました。PEST配列はタンパク質分解を促進します。Nlucタンパク質は半減期が6時間以上で安定していますが、PESTタグはユビキチン-プロテアソーム経路を介して分解を促進し、半減期を10〜30分に短縮します。さらに、レポーター遺伝子はゲノムの「セーフハーバー」であるAAVS1遺伝子座にノックされ、発現が沈黙せず、必須遺伝子が偶発的に破壊されないようにしました14。
試験方法の評価では、Devtox と非 Devtox の参照化学物質を選択することが重要です。ECVAM国際バリデーション試験、ICH S5ガイドライン(サリドマイドを含む)、および動物実験のリストから参照化学物質を選択しました7。Devtox および非 Devtox 化学物質を 30 種類リストしましたが、信頼できる供給源からの化学物質をさらに追加してテストする必要があります。したがって、ここで報告されたROC閾値(合計ABC = 37.9)は暫定的なものと見なす必要があり、統計的堅牢性を確保するために、より大規模で独立した化合物セットによる検証が必要になります。シクロホスファミド(CPA)は、偽陰性の結果が出た3つの化学物質のうちの1つでした。CPAは肝臓でヒドロキシル化されて4-ヒドロペルオキシシクロホスファミドになり、CPAとその分解生成物は催奇形性です15。私たちのアプローチを含む in vitro アッセイでは、通常、代謝を考慮しておらず、代謝を介して Devtox を誘導する化学物質を検出できません。これは、提案されたアプローチの制限です。代謝依存性偽陰性(CPAなど)に加えて、塩酸ジフェンヒドラミン(DHM)でも偽陽性が観察されました。疫学的証拠は、DHM と先天性奇形との因果関係を強く支持していませんが、いくつかの in vitro 研究では DHM を発生毒性物質として分類しています。これは、私たちのアッセイでの誤分類に寄与した可能性があります。逆に、6-アミノニコチンアミド(6-AN)はFGF/SRFシグナル伝達を阻害しなかったため誤分類され、発生毒性のメカニズムがこのレポーターによって捕捉されていない経路を介して進行する可能性があることが示唆されました。これらの例を組み合わせることで、偽陽性と偽陰性の両方を減らすための追加の発生シグナル伝達経路を含むようにアッセイパネルを拡張することをサポートします。
いくつかの要因がこのアッセイに大きな影響を与えます。そのような要因の1つは、アッセイ前の細胞調製です。これを最小限に抑えるために、アッセイで使用される細胞が同じ増殖条件下で収集されるように、細胞は7日間の繰り返しスケジュールで維持されました。細胞は月曜日に播種され、木曜日に継代され、一部がアッセイに使用され、次の継代のために播種されます。もう一つの要因は、試験化学物質への曝露時の細胞密度です。アッセイは、化学物質曝露の日に細胞が100%コンフルエンスに達した場合にのみ実行されました。96ウェルプレートのエッジ効果はよく知られています。このアッセイでは、エッジ効果を回避するために、96ウェルプレートの内側の60ウェルのみを使用しました。一般的な考慮事項に加えて、アッセイ中に技術的なばらつきが発生する可能性があります。共通の問題は、ビヒクルコントロール群のウェル間で発光強度が一貫していないことでしたが、これは細胞播種の不均一または細胞品質が最適ではないことが原因である可能性があります。この変動を最小限に抑えるために細胞を約80%のコンフルエンスに維持し、播種の翌日にウェル全体で均一な増殖を確認することをお勧めします。iPS細胞播種密度を調整することで、アッセイの再現性を高めることもできます。さらに、過剰な細胞死は、実験シグナルとは無関係な非特異的な発光変動を引き起こす可能性があります。したがって、アッセイの最後に細胞の形態を評価して、測定中に細胞が適切な状態にあることを確認します。手動アッセイでは、各時点でインキュベーターからプレートを取り出すと、細胞は温度とCO2レベルの短い変化にさらされます。これらの環境変動を制限するには、測定を迅速かつ一貫して実行する必要があります。
このアッセイは、手動またはリアルタイム測定システムを使用して実行できます。手動アプローチでは特殊な機器は必要ありませんが、リアルタイム測定システムにより信号ダイナミクスをより正確に検出できます。手動測定では特定されていませんが、リアルタイム測定システムは発光信号の2つのピークを明確に捉えました。手動測定では、夜間にデータ収集に12時間のギャップが発生し、2番目のピークが過小評価または損失された可能性があります。これらの2つのピークは、FGFシグナル伝達からの負のフィードバックと熱的に安定したFGFリガンドの存在によって引き起こされる可能性があります。特に、化学物質によるFGFシグナルの破壊は、最初のピークよりも2番目のピークの方が大きく見えることがありました(図3B)。
このプロトコルは、FGFシグナルの破壊を定量的に評価するために、ヒトiPS細胞ベースのレポーターアッセイを使用したDevtox化学スクリーニングの有望なアプローチを表しています。マウス胚性幹細胞試験(mEST)16、Hand1ベースの胚性幹細胞試験(Hand1-EST)17、およびReProGlo18など、発生毒性のいくつかの代替in vitroアッセイが過去数十年にわたって開発されてきました。これらの従来のアッセイと比較して、この方法は優れた予測精度を示しました。近年、非動物実験システムを確立するための国際的な取り組みの一環として、ヒト胚性幹細胞やゼブラフィッシュ胚を使用するなどの代替戦略が導入されています。これらのアプローチは、発生毒性評価の高い予測精度も報告しています。このアッセイの性能をさらに向上させるには、胚発生に関与する追加のシグナル伝達経路を組み込むことが有益である可能性があります。発生形態形成には、Wnt/β-カテニン、BMP/SMAD、ヘッジホッグ/GLIシグナル伝達など、他にもいくつかの主要なシグナル伝達経路があります19。これらのシグナル伝達経路を評価するために使用されるレポーター細胞のさまざまな組み合わせは、さまざまな化学物質のより包括的な評価を提供する可能性があります。iPS細胞の分化段階、例えば3つの胚葉が形成される最も早い段階が、本アッセイの検出感度に及ぼす影響は、今後の研究課題となります。将来の研究では、げっ歯類またはウサギの幹細胞システムを使用して、それらの種のin vivoデータセットとの直接比較を可能にする種間検証を検討する可能性もありますが、ヒトとの関連性を最大化するためにヒトiPS細胞に引き続き焦点を当てています。
開示事項
著者には開示すべき利益相反はありません。
謝辞
この研究は、日本学術振興会の支援を受けました[科研費助成番号23K25021および25K03278]。厚生労働省、日本 [プログラム助成金番号 23KD1003 および 24KD1003];KISTEC、日本;AMED、日本[グラント番号JP23mk0101252および25mk0121314]。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1.5 mL マイクロ遠心分離機チューブ | ファストジーン | FG-MCT015C | 試験化学的製剤 |
| 15mL遠心分離機チューブ | ヴィオラモ | 1-3500-21 | 細胞培養 |
| 8ストリップPCRチューブ | ワトソン | 137-333C | 試験化学的製剤 |
| 96年ウェルホワイト/クリアボトムプレート、TCサーフェス | サーモフィッシャー・サイエンティフィック | 165306 | 細胞培養および発光測定 |
| ブラックマイクロプレートフラットボトム 96ウェル | アソネ | 3-3321-04 | 細胞毒性アッセイにおける発光測定のために |
| 息を楽にして | 東邦 | BERM-2000 | ガス透過性シーリングフィルム |
| セルタイター-グロ発光細胞生存能力アッセイ | プロメガ | G7572 | 細胞毒性アッセイ |
| 遠心分離機 5702 R | エッペンドルフ | 遠心分離 | |
| ClipTip 300、フィルター付き、滅菌済み、ラック | サーモフィッシャー・サイエンティフィック | 94420513 | |
| クリップチップ50、ろ過済み、滅菌、ラック式 | サーモフィッシャー・サイエンティフィック | 94420253 | |
| Countess 3 FL 自動セルカウンター | インビトロジェン | 細胞計数 | |
| カウンテスセル計数室スライド | インビトロジェン | C10312 | 細胞計数 |
| カルチャー・シュア DMSO | 富士フイルム 和光 | 031-24051 | 化学薬品用の溶剤 |
| カルチャーシュア Y-27632 | 富士フイルム 和光 | 036-24023 | iPSCシーディング用のROCK阻害剤 |
| DMEM/F12 HEPES、フェノールレッドなし | サーモフィッシャー・サイエンティフィック | 11039-021 | iPS細胞培養用コーティング |
| F1-クリップチップマルチチャンネルピペット、30〜300およびマイクロ;L | サーモフィッシャー・サイエンティフィック | 4661180N | |
| F1-クリップチップマルチチャンネルピペット、5から50およびマイクロ;L | サーモフィッシャー・サイエンティフィック | 4661160N | |
| フィルターチップ | ワトソン | ||
| Geltrex LDEVフリー低減成長因子ベースメント膜マトリックス | サーモフィッシャー・サイエンティフィック | A1413202 | iPS細胞培養用コーティング |
| ヒエナイマット01R | コスモバイオ | HMAT01R | 細胞培養中のプレート温度安定維持のために |
| ヒエナイチューブウォーマー GX01 | コスモバイオ | TWGX013 | 実験的な取り扱い中に中を温かく保つために |
| ヒト熱安定bFGF組換えタンパク質 | サーモフィッシャー・サイエンティフィック | PHG0367 | レポーターアッセイのためのFGF刺激 |
| ヒト誘導多能性幹細胞(iPS) | 201B7(RCB Cat# HPS0063、RRID: CVCL_A324) | 理研BRCセルバンク | |
| マイクロプレートシェーカー | タイテック | 0089532-000 | 細胞抑制率検査のためのプレートシェイキング |
| マルチプレートリーダー | パーキンエルマー | ARVO X4 | 発光測定 |
| ナノグロー・エンデュラジン生細胞基質 | プロメガ | N2571 | ルミネセンス基質 |
| PBS(-) | 富士フイルム 和光 | 166-23555 | 細胞文化 |
| パラフィリム | AS One | 65-1681-93 | コーティングプレート用に保管 |
| ピペット | エッペンドルフ | ||
| WSL-1563 クロノスHT | ATTO | 3510140 | リアルタイム発光測定システムおよびnbsp; |
| 貯水池 | BMBio | BM-0850-1 | |
| STEMdif APEL2 Medium | STEMCELL テクノロジーズ | ST-05275 | アッセイ培地 |
| StemFlex メディウム | サーモフィッシャー・サイエンティフィック | A3349401 | メンテナンス媒体 |
| 無菌水、エンドトキシンフリー | 富士フイルム 和光 | 196-15645 | iPS細胞培養のための湿度制御 |
| 組織培養プレートVTC-P6 | ヴィオラモ | 2-8588-01 | 細胞構造 |
| TrypLセレクト酵素(1X)、フェノールレッドなし | サーモフィッシャー・サイエンティフィック | 12563011 | 細胞培養 |
| バルプロ酸 | 富士フイルム 和光 | 227-01071 | 試験化学物質 |
参考文献
- Gilbert-Barness, E. Teratogenic causes of malformations. Ann Clin Lab Sci. 40 (2), 99-114 (2010).
- DeSesso, J. M. Future of developmental toxicity testing. Curr Opin Toxicol. 3, 1-5 (2017).
- Teixidó, E., Krupp, E., Amberg, A., Czich, A., Scholz, S. Species-specific developmental toxicity in rats and rabbits: Generation of a reference compound list for development of alternative testing approaches. Reprod Toxicol. 76, 93-102 (2018).
- Vargesson, N. Thalidomide-induced teratogenesis: History and mechanisms. Birth Defects Res C Embryo Today. 105 (2), 140-156 (2015).
- van der Laan, J. W., Chapin, R. E., Haenen, B., Jacobs, A. C., Piersma, A. Testing strategies for embryo-fetal toxicity of human pharmaceuticals. Animal models vs. in vitro approaches: A workshop report. Regul Toxicol Pharmacol. 63 (1), 115-123 (2012).
- Kanno, S., et al. Luciferase assay system to monitor fibroblast growth factor signal disruption in human iPSCs. STAR Protoc. 3 (2), 101439(2022).
- Kanno, S., Okubo, Y., Kageyama, T., Yan, L., Fukuda, J. Integrated fibroblast growth factor signal disruptions in human iPS cells for prediction of teratogenic toxicity of chemicals. J Biosci Bioeng. 133 (3), 291-299 (2022).
- Kanno, S., et al. Establishment of a developmental toxicity assay based on human iPSC reporter to detect FGF signal disruption. iScience. 25 (2), 103770(2022).
- Miano, J. M. Role of serum response factor in the pathogenesis of disease. Lab Invest. 90 (9), 1274-1284 (2010).
- Purvis, J. E., Lahav, G. Encoding and decoding cellular information through signaling dynamics. Cell. 152 (5), 945-956 (2013).
- Paradis, F. -H., Hales, B. F. Exposure to valproic acid inhibits chondrogenesis and osteogenesis in mid-organogenesis mouse limbs. Toxicol Sci. 131 (1), 234-241 (2013).
- Bosman, S. L., Sonnen, K. F. Signaling oscillations in embryonic development. Curr Top Dev Biol. 149, 341-372 (2022).
- Hall, M. P., et al. Engineered luciferase reporter from a deep sea shrimp utilizing a novel imidazopyrazinone substrate. ACS Chem Biol. 7 (11), 1848-1857 (2012).
- DeKelver, R. C., et al. Functional genomics, proteomics, and regulatory DNA analysis in isogenic settings using zinc finger nuclease-driven transgenesis into a safe harbor locus in the human genome. Genome Res. 20 (8), 1133-1142 (2010).
- Hales, B. F. Comparison of the mutagenicity and teratogenicity of cyclophosphamide and its active metabolites, 4-hydroxycyclophosphamide, phosphoramide mustard, and acrolein. Cancer Res. 42 (8), 3016-3021 (1982).
- Genschow, E., et al. The ECVAM international validation study on in vitro embryotoxicity tests: Results of the definitive phase and evaluation of prediction models. Altern Lab Anim. 30 (2), 151-176 (2002).
- Suzuki, N., Ando, S., Yamashita, N., Horie, N., Saito, K. Evaluation of novel high-throughput embryonic stem cell tests with new molecular markers for screening embryotoxic chemicals in vitro. Toxicol Sci. 124 (2), 460-471 (2011).
- Uibel, F., et al. ReProGlo: A new stem cell-based reporter assay aimed to predict embryotoxic potential of drugs and chemicals. Reprod Toxicol. 30 (1), 103-112 (2010).
- Sanz-Ezquerro, J. J., Münsterberg, A. E., Stricker, S. Editorial: Signaling pathways in embryonic development. Front Cell Dev Biol. 5, 76(2017).
再版と許可
