本プロトコルでは、蚊 Aedes aegypti の行動を理解するためのオプトジェネティクス(光遺伝学)の使用について記述します。宿主動物への誘引および吸血時の神経機能を評価するための、飼育、調製、アッセイ、および解析の手法を提示します。これらの基礎的な手法により、人類に疾患をもたらすこの重要な媒介動物の神経回路および行動研究が可能になります。
方法論記事
蚊Aedes aegyptiにおける行動の光遺伝学的解析
* These authors contributed equally
この記事について
サマリー
要約
蚊のAedes aegyptiは、ウイルス性病原体の重要な媒介者であり、他の媒介種の研究モデルとしても用いられています。病原体は蚊が宿主動物を吸血する際に伝播しますが、探索および吸血行動を制御する神経回路は依然として不明です。本論文では、神経回路と行動の因果関係を明らかにするための鍵となる技術である光遺伝学を用いて、蚊の神経活動を操作する方法を詳述します。これらの手法には、光遺伝学のための蚊の飼育、および覚醒、誘引、口器の刺入、宿主血液の吸血という一連の段階における異なるステップを測定するために設計された3つのアッセイが含まれます。これらの行動は、異なる空間スケールで、また異なる感覚刺激に応じて発生します。各行動アッセイには、光遺伝学的活性化のための赤色(約625 nm)LEDが装備されています。嗅覚刺激に応答した覚醒を検出するために、飛行と歩行を定量化します。誘引または着地をアッセイするために、大きなアリーナ内で加熱された血液食を蚊に提示します。口器の刺入と吸血は、より高解像度のビデオでアッセイし、付属肢と腹部サイズの測定を可能にします。本プロトコルでは、行動の高解像度な時間的定量化と、摂食のエンドポイント測定を可能にするマシンビジョンモデルについて説明します。これらの手法は、遺伝学的にアクセス可能なあらゆる神経細胞集団が蚊の吸血行動に果たす役割を検証するために使用でき、さらに他の行動にも拡張可能です。
概要
蚊は世界で最も危険な動物の一種ですが、それは凶暴さや力の強さではなく、病原体の媒介者としての効率の高さによるものです。Anopheles(ハマダラカ属)が媒介するマラリア原虫は、毎年数十万人の死を招いており、一方でAedes aegypti(ネッタイシマカ)やAedes albopictus(ヒトスジシマカ)は、黄熱、デング熱、チクングニア熱、ジカ熱、およびその他の多くの生命を脅かす疾患の蔓延の原因となっています1。蚊は南極大陸を除くすべての大陸に生息しており、公衆衛生上の重大な懸念事項となっています2。吸血行動は病原体を直接的に伝播させますが、脊椎動物の血液摂取は産卵に不可欠であるため、蚊の ライフサイクルにおいても極めて重要な段階です。したがって、蚊媒介性疾患の蔓延を抑制するには、彼らの宿主探索メカニズムを理解することが不可欠です。
雌の蚊が、宿主を特定するために長距離および短距離の手がかりを利用することは十分に立証されている。3,4二酸化炭素 (CO2)2)は、ヒトの呼気に含まれる非常に揮発性の高いガスであり、多くの場合、蚊が最初に感知する手がかりとなります。これは、以下の場所で検出されます。 ネッタイシマカ Gr1、Gr2、およびGr3タンパク質によって嗅覚感覚ニューロンが、これらはCOを形成し2 受容体5COへの曝露2 離陸および飛行行動を誘発し、これは活性化とも呼ばれる。6,7、これはさらなる刺激がない場合でも、最大10〜15分間持続することがあります。8. CO2 皮膚臭と相乗的に作用し、活性化と誘引を高める5,9COに続き2 また、皮膚臭の検知を経て、蚊は熱、視覚的コントラスト、湿度といった、より近接したホストの追加的な手がかりを感知できるようになり、これにより生存可能な吸血対象へと誘導されます。5,10,11,12,13複数の感覚的手がかりを統合することで、蚊は宿主を効果的に追跡し、見つけることができる。
雌の蚊が潜在的な宿主に降り立つと、皮膚の一領域が見つかるまで口吻を突き刺します。このプロセスはプロービング(探索行動)として知られています14,15. プロービングに続き、刺針が皮膚を貫通して血管を特定し、唾液を注入しながら同時に血液を摂取することで、蚊は数分で体重を2倍に増やすことができます16。血液は中腸へと運ばれ、そこでタンパク質が消化され、卵の生産に利用されます。興味深いことに、プロービングのみで疾患を伝播できるため、病原体の拡散に宿主からの吸血(飽食)は必ずしも必要ではありません16,17。したがって、吸血行動の各段階を理解することは、雌の蚊の宿主探索および吸血を妨害する戦略の開発を可能にし、最終的には蚊媒介性疾患の拡散を制御することにつながります。
ニューロン活性を操作するために、モデル生物において数多くのツールが開発されてきました。初期のツールは、構成的に、あるいは熱活性化によって機能していました18,19,20,21。これらは有用である一方、これらの遺伝学的試薬にはいくつかの欠点があります。構成的なツールは発生に影響を及ぼす可能性があり、ニューロンの回路機能のみに起因しない表現型が誘導されることがあります。また、蚊は宿主となる脊椎動物を特定するために体温を利用するため、熱活性化チャネルは蚊の行動研究には特に不向きです22,23。行動研究におけるオプトジェネティクス(光遺伝学)とは、特定の波長の光に反応する遺伝学的ツールを用いて、標的となるニューロンの活性化を制御することを指します 。この技術は、マウスにおける喉の渇きの情動価の検証から、Drosophilaの求愛行動の研究、さらにはヒトを対象とした網膜色素変性症による視力喪失の回復まで、すでに複数の系で使用されています24,25,26。オプトジェネティックチャネルは、光子を吸収して特定の種類のイオンを細胞膜に通過させることで、ニューロンを活性化または抑制します。光感受性タンパク質をコードする導入遺伝子を生物に導入することにより、この技術を用いて、通常では操作不可能な特定のニューロンを活性化または抑制することが可能です。オプトジェネティクスは、時間的および空間的な制御における利点を提供し、実験的な推論を可能にする一連のコントロールを可能にします。
著者らは最近、蚊の行動を研究するための光遺伝学ツールの初の利用について報告した8。これらのツールは、赤色光活性化カチオンチャネルであり、赤色シフトしたチャネルロドプシンであるCsChrimsonに基づいている27。CsChrimsonを含む微生物オプシンが光子を吸収するには、化学的コファクターであるall-transレチナールが必要である28。CsChrimsonはtdTomato蛍光レポーターに融合されており、QF2/QUASバイナリー発現系の制御下にあるため、さまざまなドライバーラインと柔軟に組み合わせることが可能である29。CO2 感覚ニューロンを標的にするため、CO2 受容体のGr3サブユニットを発現するニューロンでQF2転写因子を発現するドライバーラインが使用された30。蚊は赤色光のみへの曝露後には最小限の行動反応しか示さなかった8。さらに、赤色光は生体組織への透過性が最も高いため、赤色光活性化オプシンは光遺伝学に最適である25。
本論文では、光遺伝学的刺激を組み合わせた宿主探索および吸血行動の異なる側面を測定するための3つのアッセイプロトコルについて述べる(Figure 1A)。まず、光遺伝学的蚊系統の飼育プロトコルを提示する。第2節では、蚊が温度および光刺激にさらされた際の覚醒およびプローブ行動を追跡するために使用できる、改造したPCRサーモサイクラーであるopto-thermocyclerについて説明する。opto-thermocyclerアッセイは、ドライバー系統を用いて光遺伝学的に神経活動を制御し、これらの探索行動を長時間にわたって測定するように設計されている。第3節ではblood blanketアッセイについて説明する。このアッセイでは、改造サーモサイクラーの底部にある薄い人工血液食に蚊が常に接触できる状態にしており、さまざまな光および温度条件下での飛行、プローブ、および吸血による膨満度の追跡を可能にする。opto-thermocyclerをベースに構築されたblood blanketアッセイは、人工血液食への吸血量を定量化する手段を提供し、正確なタイミングで制御された光遺伝学的刺激および熱刺激を用いて蚊の 摂食行動を研究することを可能にする。最後の節では、キャニスター内で温かい血液食を提示し、光刺激への曝露下で血液源への誘引と吸血による膨満度の両方を追跡できるopto-membrane feederについて説明する。opto-membrane feederアッセイは、自由飛行システムにおける宿主探索および吸血の全行動シーケンスを調査するために使用される。各アッセイの期待される出力に加えて、アッセイ中の蚊の身体部位を追跡し、行動を特定するためのマシンビジョンモデルについても説明する。opto-thermocycler、blood blanket、およびopto-membrane feederアッセイにより、光で神経活動を操作しながら、蚊の吸血行動の異なる段階を測定することが可能になる。これらの革新的な手法により、公衆衛生に脅威をもたらす行動を蚊の神経回路がどのように制御しているかを研究することができる。
プロトコル
本プロトコルで使用される蚊はトランスジェニックであり、米国農務省(USDA)の規制に基づき、節足動物封じ込めレベルII(Arthropod Containment Level II)施設で飼育する必要があります32。蚊の脱走を防ぐために封じ込めを行い、バイオハザード廃棄物として廃棄します。バイオセーフティおよび節足動物の封じ込めプロトコルは、イェール大学環境健康安全局(Yale Environmental Health & Safety)によって審査および承認されました。本研究では、ヒトまたは動物の被験者は使用していません。蚊のジェノタイプは、蛍光マーカー(Gr3-QF2には3xP3-dsRed、QUAS-CsChrimsonには3xP3-CFP)または挿入されたコンストラクトに対するPCRによって確認できます8。本研究で使用したすべての材料は、材料表に記載されています。
1. オプトジェネティクスを用いた飼育
- 実験中の光遺伝学系統の反応を最大化するため、以下の例外事項を適用した標準プロトコル31に従って蚊を飼育する。
- ホモ接合型のGr3-QF2、QUAS-CsChrimson、および野生型リバプール系統を用いて交配を行い、ヘテロ接合型の実験系統であるGr3-QF2/+、QUAS-CsChrimson/+、およびGr3>CsChrimsonを作成する。
- 28 °C、湿度80%に設定された遮光インキュベーター内で、14時間の青色光(450 nm)と10時間の暗期サイクルで蚊を育成する(Figure 1B)。
注:青色光を使用することで、CsChrimsonなどの赤色光活性化チャネルの活性化を最小限に抑えることができる。インキュベーター外で行うすべての飼育ステップは、低照度条件下で実施する必要がある。 - 成虫を用いた実験は、羽化後最短でも1週間後から開始する。
注:行動実験に理想的な年齢は2〜3週間後であるが、羽化後4週間までの蚊を使用することも可能である。対照群と実験群の遺伝子型は同じ年齢である必要があり、羽化後の日数として記録する。個体の年齢を標準化するため、すべての卵を同日に孵化させる必要がある。 - 実験の2日前、交配済みで吸血していない雌の蚊をケージから緩やかに吸引し、4 °Cで麻酔にかける。羽根または吸引機を用いて、使用するアッセイに応じた実験容器に注意深く移す。
- ジメチルスルホキシド(DMSO)に溶解した0.2 Mのall-transレチナール(ATR)分注液を調製し、-20 °Cで保存する。容器のメッシュに浸した綿芯を介して、10%ショ糖と400 µM ATRを供給する。個体は暗所内でこの餌を1〜3日間摂取させる。
注:青色光下ではなく暗所で給餌することで、ATRの退色を防ぐ(Figure 1B)。また、プロトコルのすべてのステップにおいて、蚊は動かなくなるまで4 °Cに5〜10分間さらして麻酔をかけた。各実験の終了後、蚊は-20 °Cに24時間さらして安楽死させた。
注意:all-trans-レチナールは、皮膚や目に触れると強い刺激を引き起こす可能性がある。取り扱う際は、白衣、手袋、保護眼鏡などの適切な個人用保護具(PPE)を着用すること。ジメチルスルホキシドは可燃性液体であり、接触すると皮膚から吸収されるため、適切なPPEと保護眼鏡を着用し、乾燥した環境で取り扱う必要がある。また、DMSOは耐火性の化学薬品保管容器に保存しなければならない。 - 実験の1日前(20〜24時間前)に、ショ糖フィーダーを蒸留水と400 µM ATRを含む新しいフィーダーに交換する。個体は実験まで暗所に保持する(Figure 1B)。その後、セクション2、3、または4へ進む。
注:反応率を最大化するため、実験は蚊の昼間の光周期中に実施する必要がある。
2. オプトサーモサイクラー
- アッセイ構成要素の組み立て
- 蚊を収容するためのアクリルプレートを作成します(図2)。参照してください。 図2A 図解用として、 図2B 電子部品用として、 および 図2C 〜の画像について アクリルプレート テンプレートについては、(https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0)にあるファイルを参照してください。
- 壁面を作成するため、3 mm厚のアクリルシートを、10 cm × 1 cmの長方形4枚と7 cm × 1 cmの長方形6枚にレーザーカットします。これらの長方形をアクリル接着剤で5×3のマトリックス状に接合し、各ユニットが17 mm × 17 mm × 10 mmのチャンバーとなるように構成します。これらの部品のテンプレートは、ファイル「14_動物_厚層_v3.ai”.
注意:アクリル系接着剤は可燃性であり、呼吸器および眼への刺激を引き起こす可能性があります。アクリル系接着剤を取り扱う際は、手袋、白衣、ゴーグルなどの適切な個人用保護具(PPE)を着用し、本溶剤は火気のない換気の良い場所で使用してください。 - チャンバーの底面として、厚さ1.5 mmのアクリルシートを6.985 cm × 10.16 cmに切り出し、右下のウェル部分を除去します。蓋として、厚さ1.5 mmのアクリルシートを6.985 cm × 10.16 cmの長方形に切り出します。これらの部品のテンプレートは「14_動物_薄切_v3.ai”.
- 壁面を作成するため、3 mm厚のアクリルシートを、10 cm × 1 cmの長方形4枚と7 cm × 1 cmの長方形6枚にレーザーカットします。これらの長方形をアクリル接着剤で5×3のマトリックス状に接合し、各ユニットが17 mm × 17 mm × 10 mmのチャンバーとなるように構成します。これらの部品のテンプレートは、ファイル「14_動物_厚層_v3.ai”.
- UV耐性のある黒色のメッシュシートを、底面のアクリル板と同じサイズに切り出します(図2C)。メッシュをプレートの壁面と底面パーツの間に挟み、アクリル接着剤で固定します。右下のウェルからメッシュを取り除き、穴を塞がないようにしてください。
- 蚊を収容するためのアクリルプレートを作成します(図2)。参照してください。 図2A 図解用として、 図2B 電子部品用として、 および 図2C 〜の画像について アクリルプレート テンプレートについては、(https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0)にあるファイルを参照してください。
- カメラとLEDを保持するためのフレームを構築します(図 2A).
- 60.96 cm、25 mm角の光学用コンストラクションレールを用い、サーモサイクラーの四隅に4本の支柱を立ててフレームを構築します。22.86 cm、25 mmのコンストラクションレール2本を使用して、ベンチから30 cm離れた位置で、右前方の支柱と右後方の支柱、および左前方の支柱と左後方の支柱をそれぞれ接続します。
- 前面の右側と左側の支柱を、ベンチから24 cm上に設置した30.48 cm、25 mmの構成レールで接続し、背面をベンチから42 cm上に設置した30.48 cm、25 mmの構成レールで接続します。
- フレームの左右にある構成レールに、1フィート長の光学ポストを取り付ける。サーモサイクラーのPCRブロックから24cm上の位置に、直列に接続した6個の627 nm(赤色)LEDを、各ポストに固定する。
注:CsChrimsonの活性が最大となる光の波長は約590 nmですが、遺伝的コントロール群における光への行動反応を避けつつCsChrimsonを活性化させる必要があるため、約625 nm付近の波長が用いられています。27各LEDにヒートシンクとレンズをテープで固定し、光がサーモサイクラーのブロックに向かうように調整します。 - 30.48 cmの光学ポストを、前方の2本の構成レール支柱の上部に固定します。光学ポストの中ほどに直角クランプを使用し、サーモサイクラーブロック上の内側を向くように15.24 cmの光学ポストを取り付けます。その末端に赤外線ロングパスフィルターを装着したカメラを、ブロックから40 cm上の高さで下方を向くように固定します。
- 光学ポストを用いて、構築レールからPCRブロックを囲むように長方形のフレームを作成し、表面の直上の高さに配置します。赤外線LEDストリップをPCRブロックに向けて固定し、カメラに対して直角に蚊を照らすようにします。
注:ビデオ撮影に使用される赤外線照明によるアリーナの温度上昇は、サーモサイクラーの表面温度が24℃に維持されているため、測定可能なレベルではありません。 °実験を通じてCを維持する。 - 周囲光による干渉を防ぐため、構造物の上に遮光カーテンを掛けます。
- PCRブロックの表面と側面を遮光テープで1層に覆い、背景が暗く、平坦で均一な表面を作成します。
- 熱電対センサーをPCRブロックの右下隅に配置し、遮光テープで固定します。パワーメーターを用いて、PCRブロック全体に光が均一に分布していることを確認します。電源の電圧または電流を調整し、12で光を照射するようにします。 µW/mm2.
- PCRブロックの端に赤外線LEDを配置し、ビデオを刺激提示出力と同期させます(図 2C)。カメラに反射光が入らないようにして光を検出できるよう、表面を黒いテープで覆います。
- 図に従って、熱電対、同期用LED、および赤色LEDを配線します。 図2B必要なソフトウェア(SpinView (version 1.27.0.48)、CoolTerm (version 2.0.1)、Arduino IDE (version 1.8.12))をダウンロードします。GitHubリポジトリからArduinoコードとサーモサイクラープログラムをダウンロードします。
注:Arduinoコードは、赤色光、体温相当の熱、およびこれら2つの刺激の組み合わせを提示するようにプログラムされています。リソースとして提供されている7つの刺激プログラムでは、刺激の提示順序がランダム化されています。これらは、異なる刺激を提示するように変更することが可能です。1回の実験につき、熱のみが3回、光のみが3回、および熱と光の同時提示が3回の、計9回の刺激が行われます。刺激の提示は、Arduinoが熱電対を介してPCRブロックの表面温度の変化を検出し、指定された時間に光刺激を提示することで制御されます。詳細については、刺激プログラム内のコメントを参照してください。
- 試験準備
- 光遺伝学的飼育プロトコルに従って蚊を飼育してください。セクション1および 図1B.
- 実験の2日前、アスピレーターを用いて雌の蚊14匹を別の容器に移す。手順1.6に従って、蚊にATRを投与する。複数の遺伝子型を比較する場合は、実験者に判別できないよう盲検化する。
注:蚊にATRを投与した後は、暗所で取り扱う必要があります。 - 実験の1日前(20~24時間前)に、アクリルプレート1枚につき雌の蚊を14匹吸引して入れ、4℃で麻酔をかける。 °C. 羽毛または吸引器を用いて、蚊を1匹ずつ慎重に各ウェルに導入する。
- アクリルプレートの側面にセロハンテープを貼り、蓋を固定します。カメラの視界を遮ることになるため、テープをアクリルプレートの上端や下端に折り返して貼らないでください。
- 400μLの溶液を染み込ませた3本の綿ひごの上に、アクリルプレートを配置します。 µ蒸留水(ステップ1.6参照)に入れたM ATRを、並行に配置する。3つの各々を揃える。 すべての蚊が水-ATR溶液にアクセスできるよう、各列をウィックに接続します。アクリルプレートを暗所インキュベーターに入れ、一晩静置します。
- 試験の実施
- カメラ、LED、およびArduinoをコンピュータに接続します。電源を入れます。オプトサーモサイクラーの表面を70%エタノールで拭き、乾燥させます。
注意:エタノールは可燃性であり、目に強い刺激を引き起こす可能性があります。エタノールを扱う際は、適切な個人用保護具(PPE)を着用してください。また、裸火を避けてください。 - 遮光容器を用いて、蚊を載せたアクリルプレートをPCRブロックの中央に移動させる。オプトサーモサイクラーを遮光カーテンで覆う。
- コンピューターでSpinViewを開きます。カメラ名をクリックしてカメラビューを開いてください。赤外線ライトを接続し、PCRブロックとアクリルプレートがカメラビューに映っていることを確認します。
- 必要に応じてアクリルプレートを調整し、位置を合わせ、中央に配置し、アクリルプレートの右下隅に熱電対が見えるようにしてください。同期ライトがフレーム内に収まっていることを確認してください(図2C).
- カメラおよびSpinViewの設定を調整し、アクリルプレートが鮮明にクロップされて表示されるビデオ映像を確保します。 画像フォーマット タブを調整し、 幅, 身長, オフセットX、および Yオフセット アクリルプレートと同期光が視認できることを確認するためのオプション。 設定 タブ, セット キャプチャフレームレート 有効にする 〜へ 正しい および 取得フレームレート 〜へ 30 fps
- 回転させる 露出オート および オートゲイン オフにします。~を調整します。 露光時間 および ゲイン 黒い背景と蚊との間に明確なコントラストを作るための値を設定します。右上の赤い録画ボタンをクリックし、ビデオファイルを保存するための別ウィンドウを開きます。
- ポップアップウィンドウで、上部のファイルパスを設定します。[クリック] 閲覧、実験フォルダに移動し、クリックします。 新規フォルダ、そして試行名を付けてラベルを貼ります。記録するフレーム数を、実験に適した数(例:43,500)に設定するか、手動で記録を停止させる場合は0に設定します。
- 「ビデオ」タブで、以下のフィールドを設定します。ビデオ録画形式:MJPG、ビデオファイル分割サイズ: 1000 MB, JPEG圧縮品質: 65. 「光熱療法のランダム化試験サーモサイクラーでプログラムを設定し、開始します。サーモサイクラーは25℃のホールドステップから開始する必要があります。 °C.
- マッチングプログラム「TC_optothermo_lightheat_random1.inoArduino IDEで書き込みを行い、ボードにアップロードします。シリアルモニタを開き、温度がおよそ25度であることを確認してください。 °C.
- Arduino IDEのシリアルモニタを閉じます。CoolTermを開き、Arduinoのシリアルモニタ出力の取得を開始します。シリアルポートとチャネルがArduino IDEの設定と一致していることを確認してください。CoolTermのウィンドウに出力が表示され始めます。
- Arduinoの出力をテキスト/バイナリファイルに記録し始めます。Spinviewでビデオ録画を開始します。クリックします。 履歴書 サーモサイクラーのホールドを終了させます。CoolTermでArduinoの出力を監視し、温度が18まで低下するかを確認してください。 °Cとなり、刺激回数カウンタが1に増加してトライアルが開始される。トライアルが完了するまでアッセイを継続させる。
- カメラ、LED、およびArduinoをコンピュータに接続します。電源を入れます。オプトサーモサイクラーの表面を70%エタノールで拭き、乾燥させます。
- 洗浄
- ビデオ録画とCoolTermの出力取得を停止します。両方のプログラムを終了してください。サーモサイクラーのプログラムを停止させます。蚊を載せたアクリルプレートをサーモサイクラーから取り出し、-20℃の冷凍庫に保存します。 °蚊を安楽死させるため、一晩冷凍庫で保存する。
注意:遺伝子組換え蚊を安楽死させる際は、-20℃に保持されるようにしてください。 °死滅を確実にするため、バイオハザード廃棄容器に廃棄する前に、少なくとも24時間はC環境に置いてください。 - 別の試行を開始する場合は、セクション2.3を繰り返します。カメラとArduinoのケーブルを抜いてください。電源を切ります。赤外線LEDを外してください。スコッチテープを取り除き、死んだ蚊を廃棄して、アクリルプレートを洗浄します。
- 蓋とアクリルプレートに70%エタノールをスプレーし、ウェルのすべての側面とメッシュを、手袋を着用した指で丁寧に拭きます。脱イオン水で十分にすすいだ後、アクリルプレートを重ねて保管し、傷がつかないよう蓋の間にはペーパータオルを挟みます。
- ビデオ録画とCoolTermの出力取得を停止します。両方のプログラムを終了してください。サーモサイクラーのプログラムを停止させます。蚊を載せたアクリルプレートをサーモサイクラーから取り出し、-20℃の冷凍庫に保存します。 °蚊を安楽死させるため、一晩冷凍庫で保存する。
3. ブロードブランケットアッセイ
- アッセイコンポーネントの組み立て(図3)
- セクション2.1に従って、オプトサーモサイクラーアッセイを構築する。アッセイ(図3A)、熱刺激(図3B)、およびアルミニウムプレート(図3C)の図を参照すること。
- 図3Cに示すようなアルミニウム製吸血プレートを構築する。
- レーザーカッターまたはウォータージェットカッターを用いて、プレートの上面と底面を作成する。底面は、厚さ0.8 mmのアルミニウムシートを90 mm × 134 mmに切断して作成する。上面は、厚さ1.6 mmのアルミニウムシートを90 mm × 134 mmに切断して作成する。上面プレートに、15個の長方形の穴(17.2 mm × 18.6 mm)を開ける。テンプレートファイルは、blood blanketのGitHubリポジトリ(https://github.com/sorrellslab/bloodblanket)の「Aluminum plate templates」から入手できる。
- 漏れを防ぐため、アルミニウム部品の間に薄いシリコンガスケット(厚さ0.5 mm)を挟む。アルミニウム上面の形状に合わせてレーザーカッターで切断する。
- 8本の0.47625 cm、ドームヘッド六角4–40標準ボルトで各層を固定する。フォーミングタップを使用して、金属片にボルト用のネジ山を作成する。サーモサイクラーブロックの上に配置した際の安定性を高めるため、プレート底面で丸 washersおよび「W」washersを介して接続する。
- GitHubリポジトリ(https://github.com/sorrellslab/bloodblanket)から、blood blanketアッセイ用のArduinoコードとサーモサイクラープログラムをダウンロードする。
- 25 mM NaHCO3に溶解させた20 mM ATPの分注液を調製し、使用まで-20 ˚Cで保存する。
注:ATP溶液は6ヶ月ごとに新しく調製すること。凍結融解の繰り返しを避ける。1 M NaHCO3および5 M NaClを調製し、(それぞれ室温で保存する)。NaHCO3の溶液としての安定性は7日間である。
- 実験準備
- セクション1および2.2に記載されている方法で蚊を飼育し、アクリルプレートに移す。異なる遺伝子型間で比較を行う場合は、実験者にブラインドにする。
- 実験当日に、脱イオン水8.83 mLに、20 mM ATPを750 µL、5 M NaClを220 µL、1 M NaHCO3のストック溶液を200 µL加えて、10 mLの最小人工血液食(110 mM NaCl、20 mM NaHCO3、1.5 mM ATP)を調製する。転倒混和して十分に混ぜる。
注:人工血液食は、各実験の直前に新しく調製すること。 - ステップ2.3.4から2.3.8に従って、SpinViewレコーディングをセットアップする。
- 実験に使用する「Red-light-Only__BB_.ino」Arduinoファイル(または目的の刺激ファイル)を開く。
- 試験の実施
- プレートの各ウェルに最小人工血液食を650 µLずつピペットで分注し、溢れないようにウェル全体を満たすようにする。
- 10.2 cm × 10.2 cmの正方形のパラフィルムを、直径20.3 cmのリングの上で伸ばす。パラフィルムをプレートの上に置き、端を押し付けて密着させる。メスを用いて、プレートの周囲に1.3 cm幅の縁を残してトリミングし、余分なパラフィルムを下に折り込んで血液食を密封する。
- 最大の熱伝達を可能にするため、プレートをPCRブロックの直上に配置する(図3A)。
注:オプトサーモサイクラーではPCRブロックの表面に遮光テープを使用するが、blood blanketでは使用しない。 - アルミニウムプレートの右下隅のパラフィルム表面に熱電対を配置する。カメラ、LED、およびArduinoをコンピュータに接続する。電源を入れる。サーモサイクラーで「BB_thermocycler_program.x50prog」プログラムを開始する。
注:温度変化の速度は、蚊が吸血のために宿主に着地した状態を最適に模倣するために選択された、サーモサイクラーの最大ランプ速度である。 - 光への露出を最小限に抑えるため、暗い容器と薄暗い室内照明を用い、蚊が入ったアクリルプレートをアルミニウムプレートの上に移動させ、各ウェルが蚊と一致するように配置する。人工血液食の温度を測定するため、熱電 coppiaがプレートの右下隅にあり、パラフィルムに接触していることを確認する。
- Arduino IDEで「Red-light-Only__BB_.ino」プログラムを再アップロードしてプログラムを開始する。シリアルモニターを閉じる。CoolTermでConnectを押し、現在の温度を確認する。この開始温度に基づき、Arduinoスクリプトのトリガー温度をその約0.6 °C低い値に調整する。
- CoolTermウィンドウで、Capture to Text/Binary Fileを選択し、データ収集を開始する。SpinViewのレコードウィンドウでビデオ録画を開始する。Resumeをクリックしてサーモサイクラーのホールドを終了させる。CoolTermのArduino出力を監視し、温度低下が検出され、試験が開始されたことを確認する。
- 試験時間が経過した後、Stop Recordingをクリックする。CoolTermのCapture to Text/Binary Fileタブで、シリアル出力の書き込みをStopにする。
- 蚊のプレートをblood blanketプレートから取り外し、冷室へ移動させて麻酔をかける。人工血液食を含んで腹部が膨らんだ蚊を、部分的に吸血したものも含めて、飽食個体として数える。
- 試験間には、70%エタノールで湿らせたキムワイプでPCRブロックの表面を拭いて清掃する。パラフィルムを取り除き、アルミニウムプレートを脱イオン水で洗浄する。以降の試験についてはセクション3.3を繰り返す。概日リズムによる活動サイクルの影響を最小限にするため、日ごとの試験順序を回転させる。
- 片付け
- すべてのプログラムの記録を停止して終了する。カメラ、Arduino、および赤外線ライトのUSBコードを抜く。コンピュータをシャットダウンする。サーモサイクラーで実行中の「thermocycler_program.x50prog」プログラムを停止する。
- 蚊のプレートを-20 °Cの冷凍庫に一晩置いて蚊を殺す。アルミニウムプレートを脱イオン水で洗う。アクリルプレートに70%エタノールを注ぎ、その後脱イオン水で洗浄し、さらに蚊を導入する前に一晩乾燥させる。
注:水分が残っていないことを確認するため、洗浄後プレートを一晩乾燥させるべきである。水分が残っていると、蓋に結露が生じ、ビデオ撮影の妨げとなる。
4. オプトメンブレンフィーダーアッセイ
- アッセイコンポーネントの組み立て(図4)
- 光学機械部品と30.48 cm × 30.48 cmの黒色、厚さ0.635 cmのアクリル製プラットフォーム。レーザーカッターを用いて、アクリルの中央に直径11.43 cmの穴を開ける。各コーナーから2.54 cmの位置に穴を開け、ベースから約23.495 cm上のフレームサポートにアクリルが載るようにする。
- 中央に、内径19.05 cm、外径20.32 cmの黒色アクリル製リングを取り付けます(図4A). 全てのアクリル製部品のテンプレートは、Arduinoプログラムと共にopto-membrane feederのGitHubリポジトリ(https://github.com/sorrellslab/opto-membranefeeder/releases/tag/v1.0.0)にあります。全体のセットアップについては図を参照してください(図 4A)、刺激(図4B)、回路図(図4C)、およびビデオ静止画(図4D).
注:本プラットフォームの構築に使用する具体的な材料は重要ではないため、より費用対効果の高い選択肢が利用可能である場合があります。 - 赤外線ロングパスフィルターを装着したカメラをセンターホールの下に設置し、蚊用キャニスターに向けて上向きに配置する。絞りを全開に調整し、キャニスター上部のメッシュに選択的に焦点を合わせる(図4A).
- キャニスターを作成するには、直径11.43 cmの透明なポリカーボネート管を12.7 cmの円筒状のセグメントに切断します。
- 厚さ0.3175 cmのアクリル板から直径11.43 cmの円をレーザーカットし、キャニスターの底面を作成する。円の縁は、チューブに嵌め込めるようにレーザーエッチングで加工する。その後、プラスチック用エポキシ樹脂を用いてチューブに接着する。
- 0.635 cmおよび0.3175 cmの黒色アクリルと、UV耐性のある黒色メッシュを用いてインセットリッドを作成します。内側のリングの直径を10.795 cm、外側のリングの直径を12.065 cmとし、小さい方のリングに黒色メッシュを張り合わせます。メッシュは、レーザーカットされた穴にワックス付きの糸を通して縫い付けます。
注:ビデオ録画に使用するアクリル製の底面を傷つけないよう、キャニスターは必ずペーパータオルの上に置いてください。
- 血液給餌用アクリル容器の作製(図4A).
- 厚さ0.15875 cmの透明アクリル板から、内径5.08 cm、外径6.6 cmのリングを切り出します。これを、内径5.842 cm、外径6.604 cmの別の透明リングにアクリル接着剤を用いて貼り付けます。
- 高さ13.97 cm、直径19.05 cmの金属メッシュシリンダーを、プラットフォーム中央にある黒色アクリルリングの中に設置する。
- 金属メッシュの内側に、キャニスターの外壁から3.81 cmの間隔を空けてRGB LEDライトのコイルを取り付け、黒色アクリルプラットフォーム上に設置したArduino Unoボードで制御します(図4C).
- パワーメーターを用いてシリンダー内部全体の光強度を測定し、アリーナの照度が3.5~6の間になるように照明の位置を調整します。 µW/mm2金属メッシュの外側に、850 nmの赤外線LEDリングを結束バンドでフレームに取り付け、内側に向けて配置します。
- USBケーブルをArduino Unoボードに差し込み、コンピューターに接続します。カメラからコンピューターにUSBケーブルを接続します。インターネット接続を切断します。
- 光メモラン構造を、26℃の暗所インキュベーターまたは環境制御室に設置してください。 °実験期間中、温度はC、相対湿度は80%に維持した。
- 蚊キャニスターの準備
- 実験の前に、蚊用キャニスターに70%エタノールをスプレーし、柔らかいスポンジで軽く拭いて洗浄する。その後、キャニスターを脱イオン水ですすぎ、一晩自然乾燥させる。
- 実験の2日前、低温麻酔下で蚊の雌雄を分けた後、各キャニスターに雌20匹ずつを入れる。ステップ1.6に従って、ATRへのアクセスを可能にする。
- この時点で、実験者はジェノタイプを盲検化しておく必要があります。実験のタイミングによる行動結果の差を最小限に抑えるため、試行の順序は日ごとに交代させる必要があります。
- 試験の実施
- 血液食を調製するには、119 mLの水ボトルを45 °Cの恒温槽を各試行に1台ずつ用意する。この容量と温度により、実験の間、吸血餌を体温に近い状態に維持できる。
- 脱フィブリン化羊血を5 mLずつ分注する。4℃で保存する。 °使用前にCで混ぜ、分離を防ぐために反転させる。血液食は各実験の直前に新鮮な状態で調製すること。
注意:病原体への曝露を最小限に抑えるため、適切な個人用保護具(PPE)を着用して脱フィブリノゲン羊血を扱ってください。血液に接触した再利用可能な器具は、10%漂白剤に浸した後、脱イオン水で洗浄してください。漂白剤は皮膚や目に激しい刺激を引き起こす可能性があるため、取り扱い中は常に適切なPPEを着用してください。 - 最初の一回分の血液分注量を45に配置してください。 °試験の前に、少なくとも20分間Cの恒温槽で加温する。ATPを氷上で解凍する。5.08 cm × アクリル製の蓋の、より大きく平らな円がある側に5.08 cm四方のパラフィルムを貼り、吸血のためのウェルを作成する(図4A).
- ヒトの臭いを除去するため、コンピューターを70%エタノールで拭きます。コンピューターを外付けハードドライブに接続します。カメラとArduinoを接続します。RGBライトおよび赤外線ライトを電源に接続します。
- SpinViewソフトウェアと、該当する刺激用のArduinoファイルを開きます。外部ハードドライブに、実験データを保存するためのフォルダを作成します。「blue_only.ioアリーナにRGB LEDから471 nmの淡い青色光を照射するためのArduinoファイル(以下に続く) 図4B).
- 蚊を過剰な二酸化炭素にさらすことなく2 呼吸を整えた後、試験に使用するキャニスターを点検し、実験開始前に死亡している個体がいれば記録する。キャニスターを中央に配置し、刺激にさらす前に、薄暗い青色光の下で10〜20分間順化させる。
注:完全な暗闇では蚊の飛行が抑制されるため、順化ステップおよび実験は暗い青色光の下で実施します。 - ビデオキャプチャを有効にする
- SpinViewプログラムで、カメラを選択します。 設定 タブで、明るい色の昆虫と暗い背景との間で高いコントラストを維持するように、必要に応じて露光量とゲインを調整します(図4D).
- 上部バーにある赤い録画ボタンをクリックして、ビデオキャプチャ設定を調整します。以下をクリックしてファイルパスを設定してください。 閲覧その後、外付けハードドライブに移動します。各試験について、内容がわかる名前で新しいフォルダを作成してください。フォルダ名にスペースを含めないでください。
- ~において 保存オプション タブ、選択 0フレームをキャプチャするこれにより、手動で停止させるまでビデオ録画を継続できるようになります。 録画モード、選択 緩衝された「ビデオ」タブで、以下の項目を設定します。 ビデオ録画形式:MJPG、ビデオファイル分割サイズ: 1000 MB、およびJPEG圧縮品質: 65.
- 刺激への曝露直前に、500をピペットで分注し µ準備した5 mLの血液分注分に、最終濃度が2 mM ATPとなるように20 mM ATPを(指定量)L加え、チューブを数回反転させて混ぜ合わせる。
- ATP血液溶液を血液飼育容器に注ぎます。血液飼育物の上に、45mLの液体で満たした119mLボトルを逆さまに配置します。 °実験を通じて血液の温度を人体に近い温度に維持するため、C水を使用します。
- SpinViewソフトウェアで[Start Recording]を選択します。蚊に呼気をあてて刺激を与えない状態で、蚊がメッシュ越しにパラフィルム膜を貫通して吸血できるよう、キャニスターのメッシュ蓋の上に血液食(blood meal)を配置します。
- アップロード the Arduino プログラム 〜のために / 〜用 1sON_10sOFF.io (図4B)、または目的の刺激を与えます。これにより、10秒ごとに1秒間、624 nmの赤色光が照射されます。「blue_only.ioファイルを手動でアップロードします。624 nmの波長で、CsChrimsonを光遺伝学的に活性化させるのに十分です。
- 血液分注量を恒温槽に入れ、次の試験を開始します。15分間経過後、選択してください。 録画を停止「をアップロードします。blue_only.io赤色光刺激を停止させるためのファイル。
- 血液餌保持器と水ボトルを取り除きます。キャニスターを取り出し、蚊を4℃で麻酔します。 °C. 追加試験を行う場合は、セクション 4.3 に戻る。麻酔した蚊を視覚的に観察し、腹部が血液で満たされているかを確認することで、吸血した個体数を決定し記録する。
- クリーンアップ
- すべてのプログラムを終了します。外付けハードドライブを取り出し、コンピュータから取り外します。コンピュータの電源を切ります。
- ステップ4.2.1で述べた方法で、蚊のキャニスターを洗浄する。アクリル製の血液給餌ホルダーを洗浄する。ハーフサイズのポリカーボネート製パンに水を2/3まで満たし、そこに漂白剤100 mLを加える。
- アクリル製の吸血保持具とプラスチックボトルをパンに入れます。蓋をして10分間浸漬させます。漂白剤をすすぎ、パラフィルムを取り除きます。軽くこすり洗いし、血液の残渣がないようすすぎます。
5. 行動解析
- ffmpeg(バージョン8.0.1)を用いてビデオを.mp4ファイルに圧縮し、解析の準備をします。ビデオファイルが分割されている場合は、任意のビデオ編集ソフトウェアを使用して1つのビデオに統合してください。トレーニングビデオをグレースケールでSLEAP(バージョン1.4.1)で開きます。
注:ビデオ録画設定が適切であれば、すべてがフレーム内に収まり、移動している蚊がぼやけることはないはずである。他の身体部位トラッキングソフトウェアを使用することも可能である。本論文で使用したSLEAPのバージョンは1.4.1である。最新のプロトコルについては、SLEAPのドキュメントを参照されたい。 - 評価対象となる行動に基づいて、動物の ilgili 部位にラベルを付けた骨格を作成する(図2D, 図3Dおよび 図4E).
- 「ランダムフレーム「」オプションの 推奨フレーム タブを選択し、ランダムに10フレームを抽出して、それぞれの蚊をインスタンスとしてラベル付けします。蚊の特定部位が遮蔽されている場合(例:プローブ中に口器の先端がメッシュに挿入されている場合など)は、その部位の概算位置をラベル付けしてください。これらの設定を用いて、ラベル付きフレームでモデルを学習させます。
- トップダウン方式のマルチアニマルモデル(オプトサーモサイクラーおよび血液ブランケットモデルに使用)の場合: トレーニングパイプライン タブ, セット 最大インスタンス数 へ 14「Centroid Model Configuration」タブで、以下のように設定します。 クロップサイズ 〜へ 自動、および設定 プラトー最小値. デルタ ~へ 1e-04, セット プラトーにおける忍耐 へ 10, セット ストライド ~へ 8、およびその アンカーパーツ as 胸部.
- ボトムアップ方式の多個体動物モデル(Opto-membraneフィーダー用): トレーニングパイプライン タブ, セット 最大インスタンス数 〜へ 最大値なし「ボトムアップモデル構成」タブで、次のように設定します。 クロップサイズ 〜へ オート、および設定します。 プラトー最小値. デルタ ~へ 1e-04, セット プラトー・ペイシェンス 〜へ 10、そして設定する ストライド ~へ 16.
- 以下の設定で、指定したフレーム数に対して予測を行います。 「Inference Pipeline(推論パイプライン)」タブで、opto-thermocycler(光熱サイクル装置)とblood blanket(血液ブランケット)について、以下のように設定します。 最大インスタンス数 ~へ 14, トラッカー ~へ 簡便な, 最大トラック数 〜へ 14、および 単一トラック断裂の接続 ~へ 正.
- オプトメンブレンフィーダーの設定は、以下の通りに行います。 最大値なし ~のために(または、~用) 最大インスタンス数 および 最大トラック数, トラッカー ~へ 簡単、および 単一鎖断裂の連結 〜へ 真予測フレームを修正し、再学習を行います。トレーニングデータセットを用いて、予測、ラベリング、学習のサイクルを繰り返します。
注:バリデーションは、ラベル付けされたフレームをランダムにスポットチェックし、一貫したエラー(例:蚊の誤検出、重複した予測、不正確な向き、または身体部位の誤割当)を特定することで行い、これらのエッジケースを含むフレームに重点を置いた。エラーの頻度に応じて、最大150枚のラベル付け済みフレームが必要になる場合がある。また、SLEAPは、さらなるモデルバリデーションのためのGUIベースの評価指標を提供している。視覚的検査によって十分な正確性と精度が確認されたら、モデルを実験動画に適用し、行動分析のために結果を.csvまたは.h5形式でエクスポートする。その後、前述の方法に従い、ポーズ推定の出力を利用して行動分類器を学習させることができる。8行動は次のように定義する。歩行(walking):脚の動きを伴う身体の並進運動。飛行(flying):翼を広げた状態での急速な並進運動。グルーミング(grooming):身体部位(触覚、口吻、翼、または脚)に対する反復的な脚の動き。探索(probing):容器底部のメッシュへの口吻の挿入。行動分類器は、以下の条件を達成する必要がある。 >人間によるアノテーションと比較して90%の精度。 - データが通常正規分布していないため、非パラメトリック検定を選択して統計解析を行う。多重比較補正を伴う適切なポストホック検定を実施する。吸血量データにおける実験的な反復は蚊の群として扱い、行動データにおける反復は個々の蚊として扱う。
結果
図1Aに示すように、蚊の宿主探索行動および吸血行動を観察するために、3種類の行動アッセイを用いた。概日リズムを同調させ、覚醒期に実験を行えるようにするため、蚊は青色光の明暗サイクル(14:10 LD; 図1B)の下で飼育した。実験の2日前、蚊を完全暗黒下に移し、オプシン補因子であるATRを投与した。蚊の同調が不十分な場合やATRが投与されていない場合、行動アッセイにおいて活動性が低くなる。各アッセイに使用した遺伝子型は、Gr3>CsChrimsonおよび、2つの遺伝的コントロールであるドライバーラインのGr3-QF2とエフェクターラインのQUAS-CsChrimsonとした。
オプトサーモサイクラーアッセイ(セクション2)では、熱および光刺激に応答して、長期間にわたる蚊の覚醒およびプロービング行動を評価することができます。熱の供給は蚊が温血動物のホストに接近することを模倣し、5秒間の光照射は長い呼気を模倣しています33。サーモサイクラーを使用することで、熱電対とマイクロコントローラを介して、光遺伝学的活性化と同期した迅速な表面の加熱および冷却が可能になります(Figure 2A, B)。3種類の蚊の遺伝子型を、底面がメッシュ状になった独立したウェルを持つアクリルプレートに配置し、そこで歩行、飛行、およびプロービング行動を観察させました(Figure 2C)。蚊の身体部位の位置は、SLEAP34やDeepLabCUT35などのポーズトラッキングアルゴリズムを用いて検出されました(Figure 2D, E)。行動分類アルゴリズムは、ポーズトラッキング(例:SimBA36, A-SOiD37)またはビデオ(例:FERAL38)の入力を起点として使用できます。Figure 2Eは、ホスト探索および吸血に不可欠な行動である、飛行、歩行、およびプロービング中のSLEAPラベルを示しています。これらの行動は、胸部の速度および口器の基部と先端の距離によって分類できます。ここでは、APTおよびJAABAを用いた行動トラッキングの結果を示しています39。蚊を温度上昇、光刺激、または熱と光の両方の同時刺激にさらし、その後、次の刺激まで20 minの休憩時間を設けました8(Figure 2F)。熱にさらされると、3つの遺伝子型すべてが短期間のプロービングを示しました(Figure 2G)。重要な点として、5秒間の光刺激にさらされると、Gr3>CsChrimson蚊は覚醒または「活性化」し、最大10–15 min持続する歩行および飛行行動の増加を示しました。また、蚊はプロービング行動も示しましたが、これはプレートのメッシュ底面に口器を繰り返し挿入することと定義されます。データは、個々の蚊の行動(Figure 2G)および時間経過に伴い各行動を示した全蚊の割合(Figure 2H)としてプロットされました。オプトサーモサイクラーは、複数の個体に対して反復的かつ精密な光遺伝学的刺激および熱刺激を行うことを可能にし、覚醒およびプロービング行動を研究するための有用なツールとなります。
血液ブランケットアッセイ(セクション3)はオプトサーモサイクラーアッセイに基づいて構築されていますが、蚊の吸血量を定量化できるように、嗜好性の高い人工最小血食を提供します(図3A)。CO2感覚ニューロンを光遺伝学的に活性化させるために、赤色光(~627 nm)を5秒間パルス照射し、人工血食の薄い層を25 °Cから~35 °Cまで加熱しました(熱電対を用いて表面で測定;図3B)。3つの遺伝子型に対し、それぞれアルミニウム製給餌プレートを用いて人工血食を提示しました(図3C)。Gr3-QF2、QUAS-CsChrimson、およびGr3>CsChrimsonの蚊(各遺伝子群につきn = 10試行、各14匹の蚊)に、それぞれアルミニウム製給餌プレートで人工血食を提示しました(図3C)。実験を通じて蚊の吸血量の経時的変化を測定するために、SLEAPを用いて蚊の体上の点を追跡しました。これは、蚊の腹部に5つのノードを含むスケルトンを作成することによって行われました(図3D)。各試行の終了時に、吸血した蚊の数を手動でカウントしました。対照群であるGr3-QF2およびQUAS-CsChrimsonの蚊の系統では、平均吸血量は同程度でした(図3E, p = 0.401)。対照的に、Gr3>CsChrimson系統では吸血率が有意に高く、平均吸血率は53%でした(図3E, Gr3-QF2に対してp = 0.00078、QUAS-CsChrimsonに対してp = 0.00097)。データはバイオリンプロットおよびボックスプロット(中央値、四分位範囲、および範囲)としてプロットし、有意水準 p < 0.05にてKruskal-Wallis検定およびHolm補正を用いたDunn検定を用いて解析しました。個体ごとの吸血量の経時的変化は、5つのノードで囲まれた腹部面積の変化として特定しました(図3F)。これらの結果は、血液ブランケットアッセイを用いて、CO2応答性ニューロン集団の光遺伝学的活性化が、人工血食に対する蚊の吸血行動に及ぼす影響を評価できることを示しています。
オプトメンブレンフィーダーアッセイ(セクション4)では、円筒形のアリーナ内で蚊に温かい血液食へのアクセスを提供し、血液源に対する蚊の誘引と吸血(飽食)を研究することができます。CO2 感覚ニューロンの光遺伝学的活性化が、血液源への誘引および吸血を誘発するのに十分であるかどうかを判断するため、Gr3>CsChrimsonおよび対照群の蚊(各遺伝型についてn = 10。ここでnは試行回数を指し、1回の試行につき1つのキャニスターに20匹の蚊を入れる)を用い、10秒ごとに1秒間の強赤色光パルスを15分間照射した状態で、オプトメンブレンフィーダーを介して温かい血液食へのアクセスを提供しました(図4B)。メンブレンフィーダーへの誘引を測定するために、3つのポイントを持つSLEAPモデルを用いて、着地した蚊の頭部、胸部、腹部を追跡し、関心領域(ROI)内にいる個体数をカウントしました(図4D、図4E)。Gr3>CsChrimsonの蚊は、Gr3-QF2対照群と比較して、時間の経過とともに血液食領域への誘引が増加しました(図4F、p = 0.027)。Gr3>CsChrimsonの蚊は、QUAS-CsChrimsonよりも統計的に有意に高い誘引を示しませんでした(図4F、p = 0.310)。有意差グループはKruskal-Wallis検定により決定し、続いてHolm補正を用いたDunn検定を行いました。有意水準はp < 0.05に設定しました。データは血液食に誘引された蚊の平均割合としてプロットし、網掛け領域で標準誤差を示しました。対照遺伝型のGr3-QF2およびQUAS-CsChrimsonは、それぞれ26%および29%という同様の吸血率を示し、これは記載の方法で手動的にスコアリングされました(図4G、p = 0.351)。対照的に、Gr3>CsChrimsonの蚊は、いずれの対照群よりも有意に高い吸血率を示し、平均で61%に達しました(図4G、Gr3-QF2に対してp < 0.001、QUAS-CsChrimsonに対してp = 0.002)。データはバイオリンプロットおよびボックスプロット(中央値、四分位範囲、および範囲)としてプロットし、有意水準p < 0.05でKruskal-Wallis検定およびHolm補正を用いたDunn検定を用いて解析しました。これらの結果は、オプトメンブレンフィーダーアッセイが、CO2 ニューロンの光遺伝学的活性化が蚊の誘引および血液食への吸血に及ぼす影響を評価するための有効な手段であることを示しています。
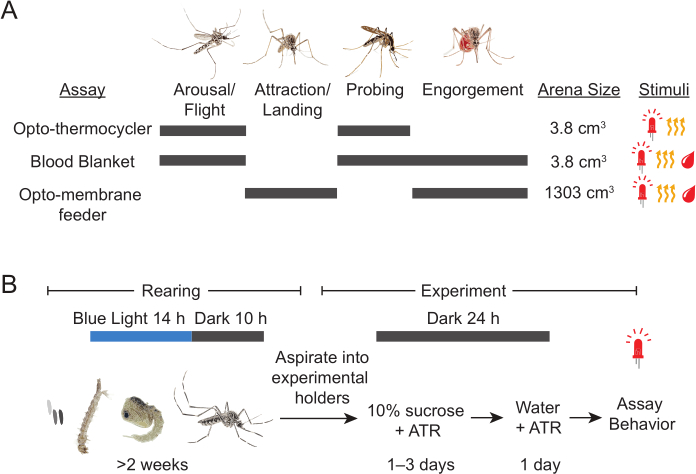
図1: 蚊における光遺伝学のためのアッセイおよび飼育。 (A) 蚊の宿主探索行動の模式図と、提示された行動アッセイの特徴。各行動アッセイで測定される宿主探索のステップがグレーのバーで示されている。 (B) 光遺伝学実験のための蚊の飼育タイムライン。図1は、著者が本出版物のためにAdobe Illustratorを使用して作成したものであり、その使用にライセンスは不要である。 ここをクリックして、この図の拡大版を表示してください。
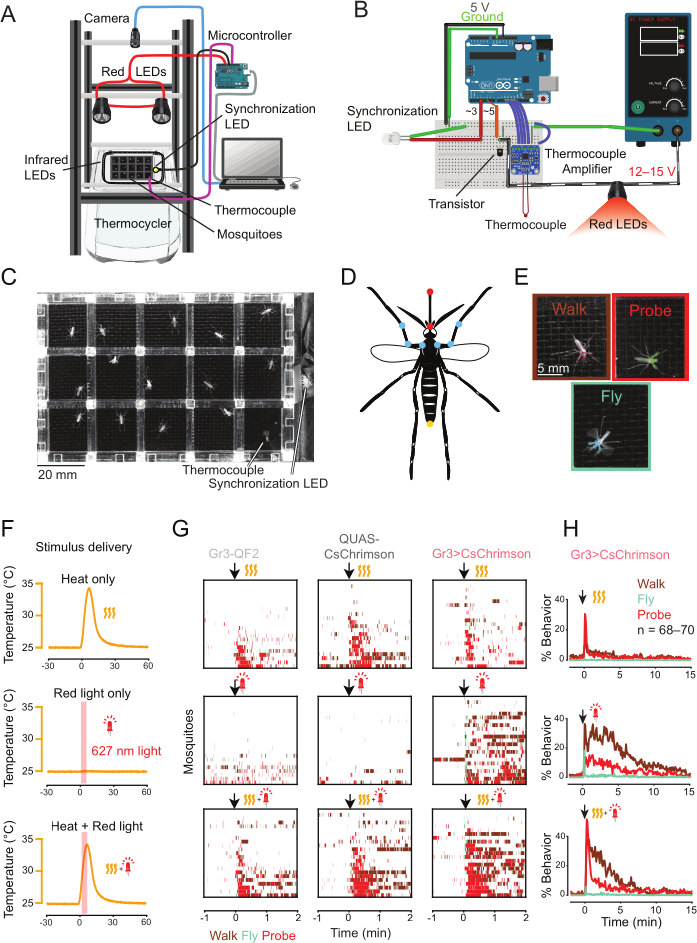
図 2: オプトサーモサイクラーにより、光遺伝学的活性化中の覚醒および探索行動を定量化する。 (A) PCRサーモサイクラーのブロック上に配置した蚊のプレート、上部のLED、およびカメラで構成されるオプトサーモサイクラー・アッセイの概略図。 (B) サーモサイクラーの温度を検出し、LEDを制御するマイクロコントローラーの回路図。回路図はFritzingを用い、CC-BY-SA 3.0ライセンス (https://github.com/fritzing/fritzing-app/blob/develop/README.md) 下で作成された。このライセンスは、適切なクレジットを記載することを条件に、画像の完全な再利用を許可している。 (C) 最大14匹の蚊を保持するアクリルプレートを示すアッセイの静止画。熱電対は右下のウェルにある。 (D) ポーズ推定に使用したSLEAPモデルの蚊のスケルトン。体上にラベル付けされた点には、刺入行動の検出に使用する口吻の先端と基部(赤色)、前脚の胸部接続点、大腿節と脛節の接点、および脛節と跗節の接点(青色)、ならびに腹部先端(黄色)が含まれる。俯瞰マルチアニマルモデルが使用された。ポーズ推定器と行動分類器を用いて、蚊の覚醒および刺入行動を定量化した。 (E) 蚊の歩行、飛行、および刺入の例。SLEAPによる予測が重ねて表示されている。歩行と飛行は覚醒の行動指標として使用される。 (F) 刺激提示の出力。黄色の波線は体温熱刺激を、赤色LEDは赤色光刺激を示す。 (G) 刺激提示後における Gr3-QF2、QUAS-CsChrimson、およびGr3>CsChrimsonの蚊(各遺伝子型につきn = 22–23匹)による歩行、飛行、および刺入行動のエソグラム。 (H) Gr3>CsChrimsonの蚊(n = 68–70匹)における、光遺伝学的活性化後の持続的な行動。図パネルA–Eは、著者が本出版のためにAdobe Illustratorを使用して作成したものであり、使用に著作権ライセンスは不要である。(F–H)のデータは、CC BY 4.0ライセンス8に基づき、Sorrells et al, 2022から転載した。 この図の拡大版を表示するには、ここをクリックしてください。
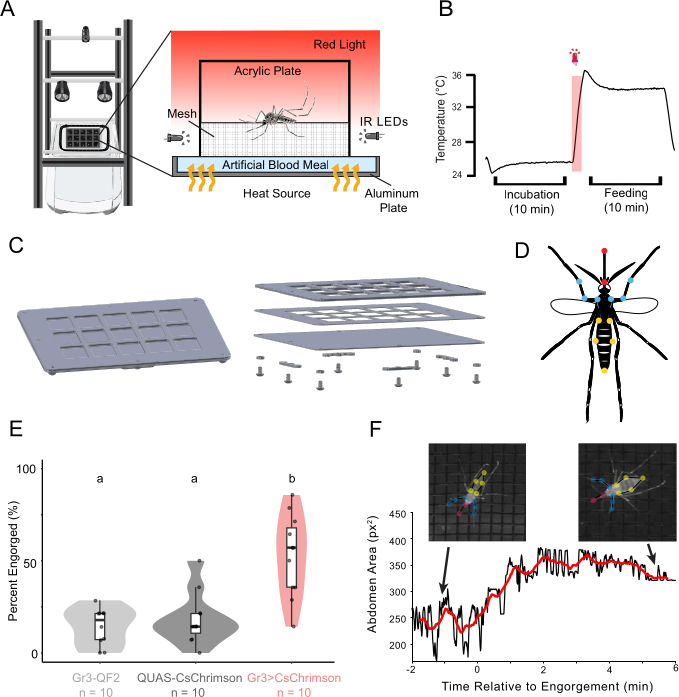
図 3: ブッドブランケットアッセイにより、光遺伝学的活性化に対する吸血量(飽食度)を定量化する。 (A) ブッドブランケットアッセイの概略図。蚊をアクリルケージに閉じ込め、メッシュスクリーン下にアクセス可能な人工血液を提示する。 (B) アッセイにおける温度および赤色光刺激の読み出し。 (C) アルミニウム製ブッドブランケット給餌プレートアセンブリの概略図。 (D) ポーズ推定に使用したSLEAPスケルトンには、図 2Dで説明した点に加え、腹部と胸部の接合部の側面に沿った4点と、腹部の最も太い部分の端点が含まれている。吸血量は、トップダウン方式のマルチアニマルモデルによる予測を用いて、腹部周囲の5点に囲まれた面積として測定した。 (E) 遺伝子型ごとの人工血液食に対する平均吸血率(%)を示すバイオリンプロット(n = 各遺伝子型につき、1回14匹の蚊を用いた10回の試行)。有意性はKruskal-Wallis検定で決定し、続いてHolm補正を用いたDunn検定を行った。異なる文字はグループ間に p < 0.05 の有意差があることを示し、同じ文字を持つグループ間には有意な差がない。 (F) Gr3>CsChrimson個体における、腹部面積で測定した時間経過に伴う吸血量。赤色のトレンドラインは、試行中の8分間における30秒のスライディングウィンドウを表示しており、x = 0は吸血が開始した時点を示す。図 3のすべての概略図は、著者が本論文のためにAdobe Illustratorを使用して作成したものであり、使用に著作権ライセンスは不要であった。 この図の拡大版を表示するには、ここをクリックしてください。
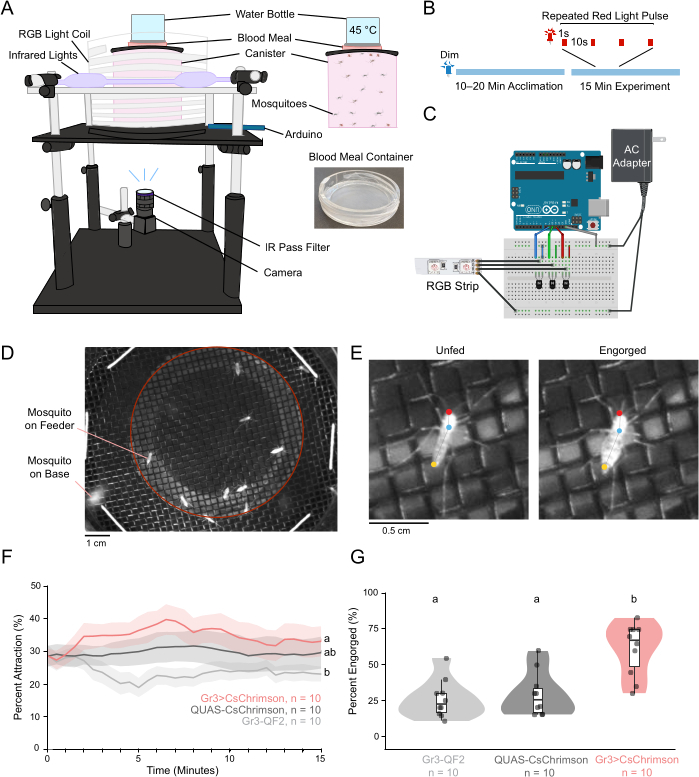
図 4: オプトメンブレンフィーダーアッセイによる誘引および吸血の測定。 (A) 各構成部品を含むオプトメンブレンフィーダーの概略図。 (B) 実験試行のタイムライン。青線は順化期間および実験全体を通して照射される弱い青色光を示す。実験刺激の一部分が示されており、10 s 間隔の 1-second の赤色光パルスを表している。 (C) オプトメンブレンフィーダーの配線図。回路図は著者らによって CC-BY ライセンスの下 Fritzing を用いて作成された。 (D) オプトメンブレンフィーダービデオのフレーム例。誘引率を決定するために、赤色の円内の蚊をカウントする。 (E) 未吸血の蚊と飽血した蚊の例。オプトメンブレンフィーダー用の SLEAP トラッキングモデルによって、頭部、胸部、および腹部がラベル付けされている。血餌が配置された関心領域への誘引を測定するために、ボトムアップ方式のマルチアニマル SLEAP モデルが使用された。 (F) 遺伝子型別の血餌領域における平均占有率(着地の行動指標として使用)の経時的変化を示す折れ線グラフ(n = 各遺伝子型につき 20 匹の蚊を用いた 10 回の試行)。30 s ごとに平均値をプロットしている。網掛け領域は標準誤差を示す。有意性は Kruskal-Wallis 検定の後、Holm 補正を用いた Dunn 検定によって決定された。異なる文字は有意なグループを表し、閾値は p < 0.05 と定義された。 (G) 遺伝子型別の血餌による平均飽血率を示すバイオリンプロット。 (F, G) において、有意性は Kruskal-Wallis 検定の後、Holm 補正を用いた Dunn 検定によって決定された。同じ文字で表記された遺伝子型間には有意な差はない。有意性の閾値は p < 0.05 と定義されている。図 4 は Adobe Illustrator を使用して作成され、そのデータは本出版のために著者らによって収集されており、使用にあたって著作権ライセンスは不要であった。 この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
本論文では、宿主への誘引および吸血における各段階を駆動させるための神経細胞型の十分性を評価するための詳細なプロトコルについて記述します。吸血行動は、長距離での検知から短距離での誘引、皮膚の穿刺、そして飽食に至る一連の行動ステップで構成されています。原理的に、神経細胞型は特定の動作やステップを制御したり、行動を特定のシーケンスへと方向付けたり、行動全体の持続時間を延長させたりするなど、多くの役割を担っている可能性があります。したがって、このプロセスにおける神経細胞の機能を解剖するためには、提示された複数のアッセイが必要となります。
これらのアッセイにおいて、蚊の反応が不十分となる一般的な原因がいくつかあります。活動性の低下や摂食不足を防ぐには、インキュベーションチャンバーの明暗サイクルの移行時間付近など、蚊の活動がピークに達する時間帯に実験を行ってください。血液ブランケットおよびオプトメンブレンフィーダーにおける摂食率の低下は、人工血液の品質不良または不適切な温度が原因である可能性があります。すべての試薬(NaHCO3、ATP、脱フィブリン羊血)の有効期限が切れていないこと、および適切に保存されていることを確認してください。最大限の鮮度を確保するため、すべての溶液は実験当日に調製することが推奨されます。血液ブランケットプレートがPCRサーモサイクラーブロックの表面に直接接触していることを確認してください。オプトサーモサイクラーと血液ブランケットのプレートは、残留水分がある場合に結露が生じることがあります。実験前にプレートをペーパータオルの上に置き、水分を吸収させてください。光遺伝学的反応が不十分な場合は、蚊が少なくとも1週間以上の成虫であること、およびATRを摂食する十分な時間が確保されていることを確認してください。ATRはCsChrimsonチャネルにとって不可欠な化学的コファクターです。
可視光スペクトル全体をカバーする、青色(~450 nm)から赤色(~650 nm)までの波長に感応するオプトジェネティクス(光遺伝学)ツールが開発されています。昆虫は通常、これらの波長に対する感度や行動反応が低いため、赤色光は特に有用です40。興味深いことに、蚊は飛行中に、人間の肌の色に含まれる長波長の視覚刺激がある領域に惹きつけられることが示されています41。したがって、赤色光の使用は、蚊の宿主誘引アッセイにおけるオプトジェネティクス活性化の解釈を妨げる制限要因となる可能性があります。しかし、遺伝的 コントロール 蚊は、強い強度で広範囲に赤色光を照射しても、最小限の反応しか示しませんでした(Figures 2–4)。行動への影響を正確に解釈するためには、ドライバーまたはエフェクター構築物のいずれか(または両方)を欠く遺伝的コントロールおよび非照射コントロールの使用が推奨されます。他種のオプトジェネティクス実験では、ロドプシンの補因子であるATRを欠くコントロールがよく用いられますが、蚊の幼虫の餌に使用される魚用飼料にはATRの前駆体であるビタミンAが含まれているため、このシステムではあまり効果的なコントロールではありません。
ここで提示する光遺伝学的刺激は、光強度を調整可能な連続刺激に限定されています。自然な神経活動パターンを忠実に再現した光遺伝学的刺激が、目的の行動を誘発させる可能性が最も高いと考えられます。したがって、神経記録が利用可能な場合は、観察された強度および時間的ダイナミクスに一致するように刺激を設計できます。これが不明な場合は、異なる刺激や行動コンテキストを用いてニューロンの機能をスクリーニングできますが、その結果が自然な行動におけるニューロンの機能を反映していない可能性があることに留意する必要があります。それでも、電極法(エレクトロフィジオロジー)を用いて細胞特性を調査できるのと同様に、ニューロンの活動を自然な範囲外まで駆動させることで、回路や行動特性を独自の方法で調査することが可能です。現在、光遺伝学的ツールは蚊の感覚ニューロンにのみ適用されており、この手法は自然な刺激の提示よりもいくつかの利点があります。蚊のホスト探索を測定する従来の戦略は、実際の CO2 ガスの提示に依存しています。実際の CO2 を使用するには、ろ過および加湿された気流が必要であり、短時間の間隔で正確に提示および除去するために複雑な実験装置が必要となります9,10,42,43。気流と湿度の両方が蚊の誘引とナビゲーションの手がかりとなるため、光遺伝学的なアプローチは、これらの刺激とは別に嗅覚刺激の影響を研究するための手法として魅力的です。また、光遺伝学的ツールは、性別や生理的状態が行動に及ぼす影響を研究するためにも以前に使用されており8、蚊の生物学におけるこれらの重要な課題に洞察を与えています。
オプトジェネティクス以外に、これらのプロトコルでは蚊の行動評価に用いられてきた標準的なアッセイを利用していますが、いくつかの制限があります。クリーニングを容易にするため、blood blanketでは、蚊が吸血するために必要な味物質のみを含む人工的に調製した餌を使用しています。この制限は、血液(opto-membrane feederのように)や、宿主組織の特性を再現したバイオミメティック材料を使用することで克服できる可能性があります。opto-thermocyclerおよびblood blanketにおける熱は、飛行中の蚊ではなく、歩行中または静止中の蚊に供給されるため、またPCRサーモサイクラーの昇温速度による制限を受けます。したがって、これらのアッセイではプロービング行動や吸血行動を検出することはできますが、誘引行動を検出することはできません。ラボベースのアッセイのもう一つの制限は、特定の刺激による行動への影響を理解するために、蚊が利用する他の刺激が排除されている点です。蚊が宿主から吸血する自然環境のさらなる側面を研究するためには、より複雑なラボアッセイやセミフィールドアッセイを構築することが考えられます。
蚊における光遺伝学のもう一つの限界は、感覚ニューロン以外のドライバー系統がほとんど作られていないことです。したがって、他のアプローチでは直接刺激できない介在ニューロンで発現するドライバーと組み合わせることで、その真の可能性が実現するでしょう。Aedes aegypti Mosquito Cell Atlasのような新たに登場したリソースは、蚊の神経遺伝学の進展に 道を開きます44。蚊の神経回路を調査するためのこのようなドライバーを開発するには、今後の研究が必要です。同様に、あるニューロン型が特定の行動に必要であるかどうかを判断するためには、抑制のためのさらなる光遺伝学ツールが必要です。本論文で提示したアッセイは、宿主への誘引と吸血を測定するように設計されていますが、これらのアプローチは、宿主探索の追加ステップや、交尾、産卵、吸蜜などの行動の研究に拡張できる可能性があります。光遺伝学の研究は、蚊の行動が神経回路レベルでどのように制御されているかについて新たな知見を提供し、蚊媒介感染症の拡大を防ぐための新しいアプローチにつながる可能性があります。
開示事項
著者らに開示すべき事項はありません。
謝辞
原稿へのコメントをいただいたKim Lezon-Geyda、Fernanda Medeiros Contini、およびYaoyu Jiaoに感謝いたします。本研究はNIHグラントDP2AI177891の助成を受けて行われました。また、技術的な助言をいただいたYale Kavli Institute for Neuroscience助成のNeurotechnology Coreに感謝いたします。T.S.はHHMI Freeman Hrabowski Scholarです。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1⁄8インチ ブラックアクリル | McMaster-Carr | 8650K32 | 光操作膜フィード構造 |
| 1⁄8インチ 透明アクリル | McMaster-Carr | 8536K134 | オプトメンブレンフィーダーキャニスター |
| ¼ 1インチ ブラックアクリル | McMaster-Carr | 8560K259 | オプトメンブレンフィーダー構造 |
| ACアダプター | Jameco ReliaPro | 2197581 | 光操作膜フィーダー構造 |
| アクリル系接着剤 | United States Plastic Corp | 97562 | オプトメンブレンフィーダーキャニスター、血液ブランケットケージ |
| アデノシン 5′-三リン酸二ナトリウム塩水和物 | Sigma Aldrich | A6419-1G | 人工血液餌 |
| オールトランスレチナール | Spectrum Chemical | R3041-1GM | オプトジェネティック・リアリング(光遺伝学的飼育) |
| アルミニウム製ブレッドボード | Thorlabs | MB12 | 光操作膜フィーダー構造 |
| アルミニウムシート 0.03125 in | McMaster-Carr | 89015K11 | 血液ブランケット給餌プレート |
| アルミシート 0.0625 インチ | McMaster-Carr | 89015K37 | 血液ブランケット給餌プレート |
| 動物部位トラッカー (APT) | HHMIジャネリアファームのBranson研究室 | 該当事項なし | バージョン 3.0、光熱サイクル装置再現データ(図 2)、2020年7月9日ダウンロード |
| Arduino IDE | Arduino | 該当なし | バージョン1.8.12。オプトサーモサイクラーおよび血液ブランケットの刺激制御に使用。 & オプトメンブレンフィーダー |
| Arduino Uno Rev3 マイクロコントローラボード | Arduino | A000066 | 光操作メンブレンフィーダーのプログラミング |
| 黒色グラスファイバー製ウィンドウスクリーン | ブレイクスルー・プレミアムプロダクツ | IHLRS3684BL | 血液ブランケットケージ |
| 黒色テープ | Thorlabs | T137-2.0 | 光熱サイクル装置 |
| 黒色の結束バンド | ケーブルタイおよびその他の備品 | ct242 | オプトメンブレンフィーダー構造 |
| 遮光ドレープ | セットショップ | 6520SF | オプトサーモサイクラーおよび血液ブランケット |
| 青色LEDライト | 21LEDUSA | RB5730BLWP | 蚊の飼育 |
| ボトル | SKSボトル &梱包および包装 | 0604-07 | オプトメンブレンフィーダー血液加温器 |
| 底層魚用ペレット | アプリケーションプログラミングインターフェース(API) | 5352983 | 幼虫への給餌 |
| カメラ | アブ | U3-13S2M-CS, FLI | アッセイ用ビデオの録画 |
| クリックカウンター | ULine | H-7350 | 幼虫の間引き |
| コンピューター | Asus | X1407Q | アッセイの実施 |
| 濃縮漂白剤(8.25% 次亜塩素酸ナトリウム) | VWR | 89501-620 | オプトメンブレンフィーダーの洗浄 |
| CoolTerm | Roger Meierのフリーウェア | 該当事項なし | バージョン2.0.1。オプトサーモサイクラーおよび血液ブランケットのシリアルポート記録に使用。 &増幅および光膜フィーダー |
| 脱フィブリン羊血 | Hemostat Laboratories | DSB100 | オプトメンブレンフィーダー用吸血飯 |
| ドームヘッド六角4-40ボルト | McMaster-Carr | 申し訳ございませんが、翻訳対象となるソーステキストが提供されておりません。翻訳するテキストをご提示ください。 | 血液被覆給餌プレート |
| エポキシ | Loctite | 1363118 | オプトサーモサイクラー・アクリルプレート、オプトメンブレンフィーダー構造 |
| エタノール | Decon Labs | 2716 | 除菌 |
| 外付けハードドライブ | LaCie | LAC9000298 | ビデオストレージ |
| ffmpeg | FFmpeg | 翻訳対象のテキストが提供されておりません。翻訳するソーステキストをご提示ください。 | バージョン 8.0.1、ビデオ前処理 |
| 4インチ綿芯 | リッチモンド・デンタル | 201226 | 成虫蚊への給餌 |
| GitHub | GitHub, Inc. | 該当なし | opto-thermocycler(v1.0.0, https://github.com/sorrellslab/opto-thermocycler/releases/tag/v1.0.0)、blood blanket(v1.0.0, https://github.com/sorrellslab/bloodblanket/releases/tag/v1.0.0)、およびopto-membrane feeder(v1.0.0, https://github.com/sorrellslab/opto-membranefeeder/releases/tag/v1.0.0)のコード、パーツファイル、およびSLEAPモデルのリポジトリ |
| Gr3>CsChrimson | 該当なし | 提供されたテキストがありません。翻訳が必要な原文をご提示ください。 | ステップ1.2で説明されている、本研究のために作成したもの |
| Gr3-QF2蚊 | 翻訳対象のテキストが提供されていません。翻訳する原文を入力してください。 | 翻訳対象のテキストを提供してください。 | 遺伝子試薬, DOI: 10.1016/j.cell.2013.12.044 |
| 不透明ドア付きインキュベーター | Caron | 7340-25 | 蚊の飼育 |
| 赤外線LEDライト | Adafruit | 387 | 光熱サイクル装置および血液ブランケット |
| 赤外線LEDストリップ | 波形照明 | 7031.85 | 光熱サイクル装置、血液ブランケット、および光膜構造 |
| 赤外通過フィルター | Edmund Optics | 65-796 | アッセイ用ビデオの録画 |
| 昆虫飼育ケージ | Bugdorm | DP1000 | 成蚊用飼育ケージ |
| Janelia自動動物行動アノテーター (JAABA) | HHMIジャネリアファームのBranson研究室 | 翻訳対象のテキストを提供してください。 | Opto-thermocycler再現データ(図2);バージョン0.5.0 |
| 大型スープカップ | WebstaurantStore | 50016SOUPPLA | 蚊の飼育 |
| LEDヒートシンク | Luxeon Star | N25-15B | オプトサーモサイクラーおよび血液ブランケット |
| LEDレンズ | Luxeon Star | 10209 | オプトサーモサイクラーおよび血液ブランケット |
| LEDレンズホルダー | Luxeon Star | 10235 | オプトサーモサイクラーおよび血液ブランケット |
| LEDレンズテープ | Luxeon Star | LT-01 | 光熱サイクラーおよび血液ブランケット |
| LEDライト | Luxeon Star | SP-01-D9 | Opto-thermocyclerおよび血液ブランケット用赤色光刺激 |
| LED熱伝導テープ | Luxeon Star | LXT-S-12 | 光サーモサイクラーおよび血液ブランケット |
| 光学構築用レール | Thorlabs | XE25L12, XE25L24, XE25L09, XE25T4, RA90, TRA6, TR12 | 光熱サイクル装置および血液ブランケットの構造 |
| 光学ポスト | Thorlabs | TR12 | 光操作膜フィーダー構造 |
| ペーパータオル | パシフィックブルー | 27385 | キャニスターの洗浄 |
| パラフィルム | Amcor | PM-996 | 血液ブランケット膜、光膜型飼料容器 |
| PCRサーマルサイクラー | Eppendorf | 2231001196 | オプトサーモサイクラーおよび血液ブランケット |
| プラスチック製ポーションカップ | 選択 | 999P2C | 成蚊への給餌 |
| プラスチック製ポーションカップ用蓋 | 選択 | 999PL2 | 成蚊への給餌 |
| ポリカーボネートパン | Cambro | 21410CWCHCL | 幼虫の飼育 |
| ポリカーボネート製ハーフサイズパン | Cambro | 24CW135 | オプトメンブレンによる膜洗浄 |
| ポリカーボネート製ハーフサイズパン用蓋 | Cambro | 20CWCH135 | オプトメンブレンによる膜洗浄 |
| ポリカーボネート製パン蓋 | Cambro | 10CWCH135 | 幼虫の飼育 |
| ポリカーボネート製チューブ | McMaster-Carr | 8585K56 | 光操作膜フィードカニスター |
| パワーメーター | コヒーレント | 1299161 | すべてのアッセイ |
| QUAS-CsChrimson蚊 | 該当なし | 翻訳対象のテキストが提供されていません。翻訳する英文をご提示ください。 | 遺伝子試薬、DOI: 10.7554/eLife.76663 |
| RGBライト | DigiKey | 289-1189-ND | 光膜フィーダーによる刺激提示 |
| 直角クランプ | Thorlabs | RA90 | 光操作膜フィーダー構造 |
| Scotch マジックテープ | 3M | 104 | 光熱サイクル装置および血液ブランケット用アクリル製蓋 |
| シリコーンガスケット、0.5 mm | McMaster-Carr | 1460N22 | 血液ブランケット給餌プレート |
| SLEAP | Talmo研究室 | 該当なし | バージョン1.4.1a2、各アッセイにおける蚊のポーズトラッキング |
| 重炭酸ナトリウム 1M緩衝液、pH 8.0 | Thermo Scientific | J62495.AP | 人工血液餌 |
| 塩化ナトリウム溶液 | Sigma-Aldrich | S5150-1L 100 3532552 | 人工血液食事 |
| SpinView | Teledyne Vision Solutions | 該当なし | バージョン1.27.0.48、全3種のアッセイに使用したビデオ録画ソフトウェア |
| スプレーボトル | Uline | S-11686 | サニタイゼーション |
| スクロース | Sigma Aldrich | S0389-500G | 成虫蚊への給餌 |
| 熱電対(T型) | Harold G Schaevitz Industries LLC | CPTC-120-X-N | 光熱サイクル装置および血液ブランケット |
| 熱電対アンプ | Adafruit | MAX31856 | 光熱サイクル装置および血液ブランケット |
| タイマー | EnduraLight | RAC-MT | 蚊の飼育における明暗サイクルの制御 |
| TRANSFERピペット | Thermo Scientific | SAM-225 | 幼虫の間引き |
| ゴミ袋 | Uline | S-23040 | 昆虫の輸送 |
| 耐UVメッシュ | McMaster-Carr | 87655K13 | 光操作膜フィーダーキャニスター |
| 水 | Sigma Aldrich | W4502-1L | 血液ブランケット用人工血液食事 |
| ワックス付き糸 | McMaster-Carr | 6356K91 | オプトメンブレン・キャニスター蓋 |
| ワイヤーメッシュ | McMaster-Carr | 9322T65 | オプトメンブレンフィーダー構造 |
参考文献
- UNICEF, UNDP, World Bank, WHO Special Program for Research and Training in Tropical Diseases. Global vector control response 2017-2030. Geneva: World Health Organization; 2017.
- Knight KL, Stone A. A catalog of the mosquitoes of the world (Diptera: Culicidae). Lanham (MD): Entomological Society of America; 1959.
- Raji JI, DeGennaro M. Genetic analysis of mosquito detection of humans. Curr Opin Insect Sci. 2017;20:34-38.
- Coutinho-Abreu IV, Riffell JA, Akbari OS. Human attractive cues and mosquito host-seeking behavior. Trends Parasitol. 2022;38(3):246-264.
- McMeniman CJ, Corfas RA, Matthews BJ, Ritchie SA, Vosshall LB. Multimodal integration of carbon dioxide and other sensory cues drives mosquito attraction to humans. Cell. 2014;156(5):1060-1071.
- Gillies MT. The role of carbon dioxide in host-finding by mosquitoes (Diptera: Culicidae): a review. Bull Entomol Res. 1980;70(4):525-532.
- Geier M, Bosch O, Boeckh J. Influence of odor plume structure on upwind flight of mosquitoes towards hosts. J Exp Biol. 1999;202(Pt 12):1639-1648.
- Sorrells TR, Pandey A, Rosas-Villegas A, Vosshall LB. A persistent behavioral state enables sustained predation of humans by mosquitoes. eLife. 2022;11:e76663.
- Dekker T, Geier M, Cardé RT. Carbon dioxide instantly sensitizes female yellow fever mosquitoes to human skin odors. J Exp Biol. 2005;208(15):2963-2972.
- van Breugel F, Riffell J, Fairhall A, Dickinson MH. Mosquitoes use vision to associate odor plumes with thermal targets. Curr Biol. 2015;25(16):2123-2129.
- Liu MZ, Vosshall LB. General visual and contingent thermal cues interact to elicit attraction in female Aedes aegypti. mosquitoes. Curr Biol. 2019;29(13):2250-2257.e4.
- Chandel A, DeBeaubien NA, Ganguly A, et al. Thermal infrared directs host-seeking behavior in Aedes aegypti. mosquitoes. Nature. 2024;633(8030):615-623.
- Tang R, Busby R, Laursen WJ, Keane GT, Garrity PA. Functional dissection of mosquito humidity sensing reveals distinct Dry and Moist Cell contributions to blood feeding and oviposition. Proc Natl Acad Sci U S A. 2024;121(35):e2407394121.
- Burgess L. Probing behavior of Aedes aegypti. (L.) in response to heat and moisture. Nature. 1959;184(4703):1968-1969.
- Hol FJ, Lambrechts L, Prakash M. BiteOscope, an open platform to study mosquito biting behavior. eLife. 2020;9:e56829.
- Martin-Martin I, Williams AE, Calvo E. Determination of mosquito probing and feeding time to evaluate mosquito blood feeding. Cold Spring Harb Protoc. 2023;2023(6):pdb.top107659.
- Boyd MF, Stratman-Thomas WK. Studies on benign tertian malaria. VII. Some observations on inoculation and onset. Am J Epidemiol. 1934;20(2):488-495.
- Swanson MM, Poodry CA. The shibire(ts) mutant of Drosophila: a probe for the study of embryonic development. Dev Biol. 1981;84(2):465-470.
- Sweeney ST, Broadie K, Keane J, Niemann H, O'Kane CJ. Targeted expression of tetanus toxin light chain in Drosophila specifically eliminates synaptic transmission and causes behavioral defects. Neuron. 1995;14(2):341-351.
- Baines RA, Uhler JP, Thompson A, Sweeney ST, Bate M. Altered electrical properties in Drosophila neurons developing without synaptic transmission. J Neurosci. 2001;21(5):1523-1531.
- Hamada FN, Rosenzweig M, Kang K, et al. An internal thermal sensor controlling temperature preference in Drosophila. Nature. 2008;454(7201):217-220.
- Corfas RA, Vosshall LB. The cation channel TRPA1 tunes mosquito thermotaxis to host temperatures. eLife. 2015;4:e11750.
- Greppi C, Laursen WJ, Budelli G, et al. Mosquito heat-seeking is driven by an ancestral cooling receptor. Science. 2020;367(6478):681-684.
- Allen WE, DeNardo LA, Chen MZ, et al. Thirst-associated preoptic neurons encode an aversive motivational drive. Science. 2017;357(6356):1149-1155.
- Inagaki HK, Jung Y, Hoopfer ED, et al. Optogenetic control of Drosophila courtship using a red-shifted channelrhodopsin reveals experience-dependent influences. Nat Methods. 2014;11(3):325-332.
- Sahel JA, Boulanger-Scemama E, Pagot C, et al. Partial recovery of visual function in a blind patient after optogenetic therapy. Nat Med. 2021;27(7):1223-1229.
- Klapoetke NC, Murata Y, Kim SS, et al. Independent optical excitation of distinct neural populations. Nat Methods. 2014;11(3):338-346.
- Deisseroth K. Optogenetics. Nat Methods. 2011;8(1):26-29.
- Potter CJ, Tasic B, Russler EV, Liang L, Luo L. The Q system: a repressible binary system for transgene expression, lineage tracing, and mosaic analysis. Cell. 2010;141(3):536-548.
- Herre M, Goldman OV, Lu TC, et al. Non-canonical odor coding in the mosquito. Cell. 2022;185(17):3104-3123.e28.
- Wohl MP, McMeniman CJ. Batch rearing Aedes aegypti. Cold Spring Harb Protoc. 2023;2023(3):pdb.prot108017.
- American Committee of Medical Entomology, American Society of Tropical Medicine and Hygiene. Arthropod containment guidelines, version 3.2. Vector Borne Zoonotic Dis. 2019;19(3):152-173.
- Pleil JD, Wallace MAG, Davis MD, Matty CM. The physics of human breathing: flow, timing, volume, and pressure parameters for normal, on-demand, and ventilator respiration. J Breath Res. 2021;15(4):042002.
- Pereira TD, Tabris N, Matsliah A, et al. SLEAP: a deep learning system for multi-animal pose tracking. Nat Methods. 2022;19(4):486-495.
- Mathis A, Mamidanna P, Cury KM, et al. DeepLabCut: markerless pose estimation of user-defined body parts with deep learning. Nat Neurosci. 2018;21(9):1281-1289.
- Goodwin NL, Choong JJ, Hwang S, et al. Simple Behavioral Analysis (SimBA) as a platform for explainable machine learning in behavioral neuroscience. Nat Neurosci. 2024;27(7):1411-1424.
- Tillmann JF, Hsu AI, Schwarz MK, Yttri EA. A-SOiD, an active-learning platform for expert-guided, data-efficient discovery of behavior. Nat Methods. 2024;21(4):703-711.
- Skovorodnikov P, Zhao J, Buck F, et al. FERAL: a video-understanding system for direct video-to-behavior mapping. bioRxiv. 2025. doi:10.1101/2025.11.16.688666.
- Kabra M, Robie AA, Rivera-Alba M, Branson S, Branson K. JAABA: interactive machine learning for automatic annotation of animal behavior. Nat Methods. 2013;10(1):64-67.
- Autrum H, Bennett MF, Diehn B, et al. Comparative physiology and evolution of vision in invertebrates. A: Invertebrate photoreceptors. Berlin: Springer; 1979.
- Alberto DAS, Rusch C, Zhan Y, Straw AD, Montell C, Riffell JA. The olfactory gating of visual preferences to human skin and visible spectra in mosquitoes. Nat Commun. 2022;13(1):555.
- Dekker T, Cardé RT. Moment-to-moment flight maneuvers of the female yellow fever mosquito (Aedes aegypti. L.) in response to plumes of carbon dioxide and human skin odor. J Exp Biol. 2011;214(Pt 20):3480-3494.
- Demir M, Kadakia N, Anderson HD, Clark DA, Emonet T. Walking Drosophila navigate complex plumes using stochastic decisions biased by the timing of odor encounters. eLife. 2020;9:e57524.
- Goldman OV, DeFoe AE, Qi Y, et al. A single-nucleus transcriptomic atlas of the adult Aedes aegypti. mosquito. Cell. 2025;188(25):7267-7290.e26.
再版と許可
