本プロトコルは、汎がんバイオインフォマティクス解析と大腸がんにおける免疫組織化学的検証を組み合わせ、公開されたマルチオミクスデータベースおよび臨床組織サンプルを用いて、膜貫通Emp24タンパク質輸送ドメイン3の発現、予後的重要性、免疫関連および関連する生物学的経路を評価します。
研究記事
腫瘍バイオインフォマティクス解析と大腸がん実験的検証を組み合わせた:診断および予後バイオマーカーとしてのTMED3の研究
* These authors contributed equally
この記事について
サマリー
要約
p24タンパク質ファミリーの一員である膜貫通Emp24タンパク質輸送ドメイン3(TMED3)は、腫瘍の増殖、侵襲、移動に関与していることが示されています。本研究は、汎がんバイオインフォマティクス解析と免疫組織化学的検証を組み合わせて、複数のがんタイプにおけるTMED3の発現パターン、予後意義、免疫関連、潜在的な生物学的機能を評価することを目的としました。The Cancer Genome Atlas、Genotype-Tissue Expression、UALCAN、Human Protein Atlas、cBioPortal データベースからのマルチオミクスデータセットを解析し、汎がんにおけるTMED3発現および遺伝的変異を調査しました。大腸がん組織におけるTMED3タンパク質発現を評価するために免疫組織化学が実施されました。TMED3の予後評価を評価するために、Kaplan–Meier生存分析およびCox回帰分析を用いました。スピアマン相関解析を用いて、TMED3と腫瘍変異負荷、マイクロサテライト不安定性(MSI)、免疫細胞浸潤、免疫チェックポイントとの関連性を評価しました。遺伝子セット豊か解析は、大腸がんにおけるTMED3に関連する生物学的経路の可能性を調査するために実施されました。TMED3の発現はほとんどの腫瘍型で上昇し、副腎皮質がん、大腸腺癌、ブド膜メラノーマにおいて、全体的な生存率および疾患特異的生存率が悪化したと関連していました。TMED3遺伝子変異の最も頻繁なのは中皮腫であり、増幅が主要な変異タイプでした。さらに、TMED3の発現は腎腎透明細胞癌、胃腺癌、子宮内膜癌における腫瘍変異負荷および微小衛星不安定性と有意な相関を示しました。TMED3の発現は、複数の腫瘍における免疫浸潤および免疫チェックポイント発現とも関連しています。IHC解析により、大腸がん組織におけるTMED3発現が正常な大腸組織と比べて増加し、Tステージとの関連が示されました。機能豊か解析により、リボソーム、抗原処理および提示、酸化的リン酸化、ペントースリン酸に関連する経路が特定されました。これらの発見は、TMED3が大腸がんおよび他の腫瘍タイプの診断および予後評価において有望なバイオマーカーとなり得ることを示しています。
概要
膜貫通EMP24ドメイン(TMED)タンパク質ファミリーは、α、β、γ、δの4つのサブファミリーで構成されており、真核細胞において単量体、二量体、またはオリゴメリック複合体として一般的に存在します。TMEDファミリーのメンバーは細胞内小胞輸送に関与しており、がん、免疫関連疾患、糖尿病、神経変性疾患、非アルコール性脂肪肝疾患、拡張性心筋症、ムシン1腎疾患(MKD)、シェーグレン症候群(SS)など、さまざまな人間の疾患に関与していることが示されています。膜貫通emp24ドメイン含有タンパク質3(TMED3)は、p24ファミリーの一員であり、ヒトの染色体15q25.1にコードされる高度に保存されたシングルパスI型膜貫通タンパク質です。蓄積される証拠により、TMED3は複数の悪性腫瘍で異常に発現し、腫瘍の開始、増殖、浸潤、転移、進行に関与していることが示されています。TMED3発現の上昇は、骨肉腫4、扁平上皮がん5、乳がん6、子宮内膜癌7、大腸がん8で報告されています。実験的研究により、TMED3発現の抑制は腫瘍細胞の増殖、転移能力、抗アポトーシス活性を抑制し、腫瘍の進行を抑制することが示されています。膠質腫では、TMED3の過剰発現が腫瘍グレードの上昇や予後悪化と関連しており、TMED3はZBTB7A9の調節を通じて膠芽腫の進行を促進すると報告されています。これまでの研究では特定の腫瘍タイプにおけるTMED3の生物学的役割が探られてきましたが、その発現パターン、予後的重要性、汎がんにおける分子機能はまだ体系的に特徴づけられていません。
マルチオミクスデータベースやバイオインフォマティクス解析の最近の進展により、異なる腫瘍タイプにおける遺伝子発現、予後、免疫特性、分子変異の体系的な評価が可能になりました。単一コホート研究と比較して、公開されているデータベースを用いた統合的な汎がん分析は、がん全体にわたる潜在的なバイオマーカーや治療標的を特定するより広範なアプローチを提供します。本研究では、がんゲノムアトラス(TCGA)、ゲノタイプ組織発現(GTEx)、UALCAN、ヒトプロテインアトラス、cBioPortalなどの公開されているマルチオミクスデータベースを用いて、TMED3の役割を複数のがんタイプにまたがる包括的なバイオインフォマティクス解析を実施しました。本研究では、TMED3の発現パターン、臨床病理学的特徴、予後的重要性、免疫関連の関連性、および汎がんにおける潜在的な生物学的機能を体系的に評価しました。さらに、大腸がん組織において免疫組織化学(IHC)解析を行い、TMED3タンパク質の発現と臨床病理学的特徴との関連を検証しました。私たちの汎がん分析は、候補バイオマーカーを特定するためのスクリーニング戦略として機能します。次に、大腸がん(CRC)に特異的に実験的検証を行いました。結果は、TMED3がCRCにおける有望な予後バイオマーカーであることを示していますが、他のがんタイプへの関連性についてはさらなる調査が必要です。
プロトコル
ヒト組織を対象としたすべての処置は、機関のバイオセーフティおよび倫理ガイドラインに従い、認証された生物学的安全キャビネット内で実施されました。この研究プロトコルは、唐山中央病院の研究倫理委員会(No.TZYL/K/2023-16)、サンプル採取前に全参加者から書面によるインフォームドコンセントが取得されました。
データ収集
異なる腫瘍および未ペアの正常組織からのTMED3発現プロファイルデータは、TCGAおよびGTExデータベース10,11(TCGA: https://portal.gdc.cancer.gov/;GTEx:https://gtexportal.org/;2025年7月1日アクセス)。ウィルコクソンランク-サム検定は、腫瘍と非対の正常組織間のTMED3発現の差異を解析するために実施されました。UCSC Xenaからダウンロードしたトランスクリプト/百万(TPM)正規化RNAシーケンシング発現マトリックスを解析に用いました。表現値は統計解析前にlog2(TPM + 1)変換を用いて調和されました。その後、33種類の腫瘍型および適合した正常組織のTMED3発現データをTCGAデータベースからダウンロードしました。Wilcoxon署名ランク検定を用いて腫瘍間および正常組織間のTMED3発現の差異性を評価しました。腫瘍と正常組織間のTMED3タンパク質発現の違いは、UALCANデータベース12(http://ualcan.path.uab.edu;2025年7月1日アクセス)から取得されました。プロテオミクス解析モジュールにアクセスし、「汎がんビュー」オプションを選択して分析を行いました。タンパク質発現解析は、UALCAN「Pan-cancer View」モジュールで利用可能なCPTACデータセットを用いて、デフォルトのプラットフォーム設定で追加のサンプルフィルタリングなしで実施されました。
臨床病理学的特徴の分析
TCGAデータベース内の33種類の腫瘍から臨床病理学的情報を収集し、TMED3の発現と病態段階の関係を調査しました。腫瘍の病期は初期段階(ステージI〜II)と進行期(ステージIII〜IV)グループに分類されました。複数のがんタイプ間で、ステージグループ間のTMED3発現の差をWilcoxonランク-sum検定を用いて評価しました。
予後分析
予後解析のために33種類の腫瘍タイプから生存期間および生存状況データが取得されました。正常な症例および臨床情報のない症例は除外しました。欠損値は各変数の欠損度に応じて処理されました。TMED3の発現は中央値発現値に応じて高発現群と低発現群に分けられました。R統計解析ソフトウェア(バージョン4.2.1)の生存パッケージ(バージョン3.2-7)は、Cox比例ハザード回帰分析に使用されました。結果はsurvminerとggplot2パッケージを用いて可視化されました。全生存期間(OS)は、診断から死亡までの間隔として定義され、疾患特異的生存期間(DSS)は特定のがんに起因する診断から死亡までの間隔とされ、悪性腫瘍とは無関係な死亡は検閲された事象として扱われました。その後、カプラン–マイヤー生存解析を実施し、TMED3発現と大腸腺癌(COAD)におけるOSおよびDSSの関係を評価しました。
突然変異解析
cBioPortalデータベース(www.cbioportal.org 年、2025年7月5日アクセス)は、33種類のがんタイプ13におけるTMED3遺伝子変異の頻度を解析するために使用されました。cBioPortalのウェブサイトにアクセスし、「TMED3」とクイック検索バーに入力して、複数のがんタイプにわたるTMED3の変異プロファイルを分析しました。TMED3の遺伝的変異には主に変異、増幅、深層欠失、多重変異が含まれます。cBioPortalで利用可能なデフォルトの汎がん研究およびクエリ設定を用いて、追加のフィルタリングなしに変異解析を行いました。
DNAメチル化の相関解析
UALCANデータベース(https://ualcan.path.uab.edu/ 年、2025年7月5日アクセス)を用いて、腫瘍および正常組織におけるTMED3のプロモーターメチル化状態を評価するためにDNAメチル化解析が実施されました。TMED3プロモーター領域のDNAメチル化状態は、TCGAのIllumina Infinium HumanMethylation450Kプラットフォームから生成されたレベル3メチル化データを用いて解析されました。メチル化レベルは β 値として表され、 β = メチル化プローブ強度 / (メチル化プローブ強度 + 非メチル化プローブ強度)と計算され、値は0(非メチル化)から1(完全メチル化)までの範囲で表されました。転写開始部位(TSS)の上流1500塩基点以内に位置するCpGプローブ(TSS200およびUALCANで定義されたTSS200およびTSS1500領域を含む)を解析し、プロモーターのメチル化状態を評価しました。UALCANは追加のフィルタリングなしで、標的遺伝子のプロモーター領域内の利用可能なすべてのCpGプローブを自動的に抽出しました。汎がん組織および正常組織からメチル化 β 値を得て、グループ間の違いを比較するために非ペアの2標本t検定を実施しました。有意の閾値は α = 0.05で、 P <0.05は統計的に有意とされました。
TMED3、腫瘍変異負荷、マイクロサテライト不安定性の相互関係の分析
腫瘍変異負荷(TMB)およびマイクロサテライト不安定性(MSI)を解析し、複数のがんタイプにおけるTMED3発現との関連を調査しました。均一に処理された汎がんデータセットはUCSC Xenaデータベース(https://xenabrowser.net/ 年、2025年7月5日アクセス)からダウンロードされ、TMED3発現プロファイルを抽出して後続解析を行いました。MuTect2を用いて生成されたTCGAサンプルのレベル4単純ヌクレオチド変異データは、ゲノミックデータコモンズ(GDC)データベース(https://portal.gdc.cancer.gov/)14から取得されました。TMED3の発現データはTMBデータセットと統合され、発現値は統計解析前にlog2(x + 1)変換で正規化されました。個々の腫瘍タイプのMSIスコアは、既に発表された15件の研究から収集され、その後同じ正規化手順でTMED3発現データと統合されました。汎がんデータセットにおけるSpearman相関解析を用いてTMED3発現とTMB/MSIの関連を評価しました16,17。
TMED3の免疫特性の解析
ESTIMATEアルゴリズムを用いて、複数の腫瘍タイプに対して間質スコア、免疫スコア、ESTIMATEスコアを算出しました。汎がんデータセットにおける間質および免疫浸潤スコアは、統計解析ソフトウェアの推定パッケージ(バージョン1.0.13)を用いて生成されました。高TMED3発現群と低TMED3発現群間の間質スコア、免疫スコア、ESTIMATEスコアの違いをWilcoxonランク-総和検定を用いて評価しました。さらに、TMED3発現とプログラム細胞死タンパク質1(PD-1)、プログラム死リガンド1(PD-L1)、細胞毒性Tリンパ球関連タンパク質4(CTLA4)を含む免疫チェックポイント分子との関係を、異なるがんタイプで調査する免疫チェックポイント関連解析も実施されました。COADのSTARカウント発現データおよび対応する臨床情報をTCGAデータベースからダウンロードしました。TPM形式の式行列を抽出し、log2(TPM + 1)変換を用いて正規化しました。その後、COADサンプルから免疫チェックポイント関連遺伝子8つの発現プロファイルを取得し、TMED3発現と免疫チェックポイントマーカーの相関をスピアマン相関解析で解析しました。
薬物感受性分析
GSCALiteプラットフォームを用いて薬剤感受性解析を行い、TMED3発現と抗がん薬の応答性の関係を様々ながんタイプで調査しました18。COADサンプルのレベル3RNAシーケンシングデータおよび対応する臨床情報をTCGAデータセットから取得しました。各サンプルの化学療法反応の予測値は、がんにおける薬剤感受性ゲノム(GDSC)データベース(https://www.cancerrxgene.org/)のデータを用いて算出されました。薬物反応の予測は、統計解析ソフトウェア内のpRRopheticパッケージを用いて実施されました。推定半最大阻害濃度(IC50)値は、デフォルト設定のリッジ回帰を用いて計算し、戦闘アルゴリズムによるバッチ効果補正や組織特異的調整解析を含む。複製された遺伝子発現測定値は、下流解析前に平均化されました。
大腸がんにおけるTMED3の発現と予後
大腸腺癌のTMED3発現プロファイルおよび対応する臨床病理学的データはTCGAデータベースから取得されました。結腸がん組織と非一致の正常組織間のTMED3発現の差異はウィルコクソンランク和検定を用いて評価し、TMED3発現と臨床病理学的特徴との関連はカイ二乗検定で解析した。患者は中央値TMED3発現レベルに応じて高発現群と低発現群に階層分けされました。その後、カプラン・マイヤー生存分析を実施し、両群間の予後差を比較しました。大腸がんにおけるTMED3発現の予後有意性を評価するために、単変量および多変量Cox比例ハザード回帰分析が実施されました。さらに、時間依存的な受信者動作特性(ROC)曲線解析を行い、1年、3年、5年OSにおけるTMED3発現の予測性能を評価しました。ROC解析は統計解析ソフトウェア内のtimeROCパッケージを用いて行われ、グラフィカルビジュアライゼーションはggplot2パッケージで生成されました。
免疫組織化学解析
唐山中央病院から合計60点の大腸がん組織サンプルと20点の非がん組織が無作為に選抜されました。この研究は地元の機関審査委員会(No.TZYL/K/2023-16)、および手術前にすべての患者から書面によるインフォームドコンセントを取得しました。すべての組織サンプルは、事前化学療法や免疫療法なしで外科的切除を受けた患者から採取されました。コホートには20歳から87歳までの男性39名と女性21名が含まれていました。デューク大学の病期診断基準によれば、33名の患者がステージI+IIに分類され、27名がステージIII+IVと分類されました。コホートのステージ分布は、進行した疾患段階への選択バイアスをもたらす可能性があります。したがって、生存に関する所見は慎重に解釈されるべきです。
パラフィン埋め込み組織標本を4μmのスライスに分割し、その後脱硫分解と再水化を行いました。内因性ペルオキシダーゼ活性は4% H2O2で消滅され、非特異的結合はその後ヤギ血清で阻害されました。切片は1:100の希釈でTMED3一次抗体を1:100希釈したまま4°Cで一晩インキュベートしました。翌日、羊用抗ウサギIgGポリマー(PV-6000)を室温で30分間塗布しました。免疫反応性はジアミノベンジジン染色を用いて可視化され、切片は中性樹脂で埋め込まれた。組織学的染色は高倍率光学顕微鏡で検査されました。免疫染色強度は0(陰性)、1(弱)、2(中等度)、3(強)と評価され、陽性腫瘍細胞の割合は1(1%–25%)、2(26%–50%)、3(51%–75%)、または4(76%–100%)と評価されました。最終的な免疫組織化学スコアは、染色強度に陽性腫瘍細胞の割合スコアを掛けて算出しました。TMED3の発現レベルは陰性/低発現(スコア≤6)または過剰発現(スコア>6)に分類されました19。
大腸がんにおけるTMED3の遺伝子豊富解析
遺伝子豊富解析は、大腸がんにおけるTMED3発現に関連する生物学的機能およびシグナル伝達経路を評価するために実施されました。高発現群と低TMED3発現群間の差異発現遺伝子は、統計解析ソフトウェア内のDESeq2パッケージを用いてスクリーニングされました。TCGAから得られた生カウントデータは、DESeq2で実装された中央値比率正規化法を用いて正規化されました。サンプルの50%以上で<10個数の低発現遺伝子は分析前に除外しました。差異発現遺伝子は、|log2 (FC)|≥ 1 と、ベンジャミニ–ホッホベルク(BH)の多重検定修正後の P < 0.05 に調整しました。すべての解析パラメータは再現性を確保するために固定されました。
その後、分子シグネチャデータベース(MSigDB)から取得した京都遺伝子・ゲノム百科事典(KEGG)遺伝子セット(バージョン7.5.1)に基づくclusterProfilerパッケージを用いて、RのclusterProfilerパッケージを用いて遺伝子セット強化解析(GSEA)を実施しました。高TMED3発現群と低TMED3発現群間のlog2フォールド変化値に基づいて、事前にランク付けされた遺伝子リストが作成されました。濃縮解析は1000の表現型順列を用いて行われ、15〜500個の遺伝子を含む遺伝子セットも分析に含まれました。正規化濃縮スコア(NES)絶対値が>1、調整P<0.05、偽発見率(FDR)<0.25の経路は有意に濃縮されたとみなされました。パーキンソン病経路の濃縮は、この経路がミトコンドリア機能障害および酸化的リン酸化に関連する生物学的プロセスと密接に関連しており、これらは腫瘍の代謝再プログラミングやがん進行にも関与しているため維持されました。
統計解析
すべての統計解析は統計解析ソフトウェアを使用して実施されました。グループ間の差異発現は、ペアリングされていないサンプルに対して両側ウィルコクソンランク和検定、ペアサンプルに対してウィルコクソン符号付きランク検定を用いて評価しました。TMED3発現と臨床病理学的変数との関連はカイ二乗検定を用いて評価した。生存解析は生存パッケージ(バージョン3.3-1)を用いて行われ、Kaplan–Meier生存曲線はsurvminerパッケージで生成されました。グループ間の生存アウトカムの差はログランク検定を用いて比較しました。Cox比例ハザード回帰モデルを用いてOSに関連する予後因子を特定しました。患者は中央値TMED3発現レベルに応じて高発現群と低発現群に分類されました。timedependent ROC解析はtimeROCパッケージを使用して行われ、図はggplot2パッケージで生成されました。特に明記がない限り、統計的有意性は両側の P 値<0.05と定義されています。
スピアマン相関解析を用いて、TMED3発現と免疫特性、TMB、MSIの相関関係を評価しました。対応する公開データベースから得られた正規化された定量表現データをすべての相関解析に使用しました。TCGA RNAシーケンシングデータでは、TPM形式の発現値は解析前にlog2(TPM + 1)正規化で変換されました。臨床または分子データが欠損しているサンプルは統計解析前に除外しました。スピアマン相関解析は二側の非パラメトリック検定として実施されました。生のP値は、ウィルコクソン検定、スピアマン相関解析、生存分析など限定的な比較を含む解析に用いられました。大規模高スループットバイオインフォマティクス解析、差異遺伝子発現解析、KEGG濃縮解析、GSEA解析では、BH FDR法を用いた多重検定補正が行われました。修正FDR値は統計的に有意なもの<0.05とみなされました。
結果
汎がんにおけるTMED3の発現解析
TCGAおよびGTExデータセットの解析により、TMED3メッセンジャーリボ核酸(mRNA)の発現が、副腎皮質がん(ACC)、膀胱尿路上皮癌(BLCA)、乳浸潤性がん(BRCA)、頸部扁平上皮癌および子宮頸内腺癌(CESC)、胆管癌(CHOL)、大腸腺癌(COAD)、びまん性大B細胞リンパ腫(DLBC)など、対応する正常組織と比較して有意に上昇していることが示されました。 食道癌(ESCA)、多形膠芽腫(GBM)、腎腎透明細胞癌(KIRC)、腎腎乳頭細胞癌(KIRP)、脳下位神経膠腫(LGG)、肝細胞癌(LIHC)、肺腺癌(LUAD)、肺扁平上皮癌(LUSC)、卵巣漿液性嚢腺癌(OV)、膵腺癌(PAAD)、褐色細胞腫および副神経節腫(PCPG)、前立腺腺癌(PRAD)、直腸腺癌(READ)、皮膚皮膚メラノーマ(SKCM) 胃腺癌(STAD)、精巣生殖細胞腫瘍(TGCT)、甲状腺癌(THCA)、胸腺腫(THYM)、子宮小体子宮内膜癌(UCEC)、子宮癌(UCS)であり、頭頸部扁平上皮癌(HNSC)および急性骨髄性白血病(LAML)では発現の低下が観察されました(図1A)。相合した隣接する正常組織がペア発現解析の対照群として機能しました。TCGAペア解析により、BLCA、BRCA、CHOL、COAD、腎臓嫌色症(KICH)、KIRP、KIRC、LIHC、LUAD、LUSC、PRAD、STAD、UCEC組織において、正常組織と比べてTMED3発現が有意に増加していることが確認されました(図1B)。さらに、UALCAN/臨床プロテオム腫瘍解析コンソーシアム(CPTAC)データベースを用いたタンパク質発現解析では、BRCA、COAD、GBM、KIRC、LIHC、LUAD、LUSC、OV、UCEC腫瘍組織においてTMED3タンパク質レベルが増加した一方で、PAADでは正常組織と比較してタンパク質発現が低下することが観察されました(図1C)。しかし、PAADではTMED3タンパク質の発現が正常組織よりも低かった。このmRNAとタンパク質発現パターンの不一致は、転写後または翻訳後の調節機構を反映している可能性があります。これらの発見は、TMED3が複数のがんで異常に上行調節されており、複数のがんにわたる診断的および予後特性と関連している可能性を示唆しています。
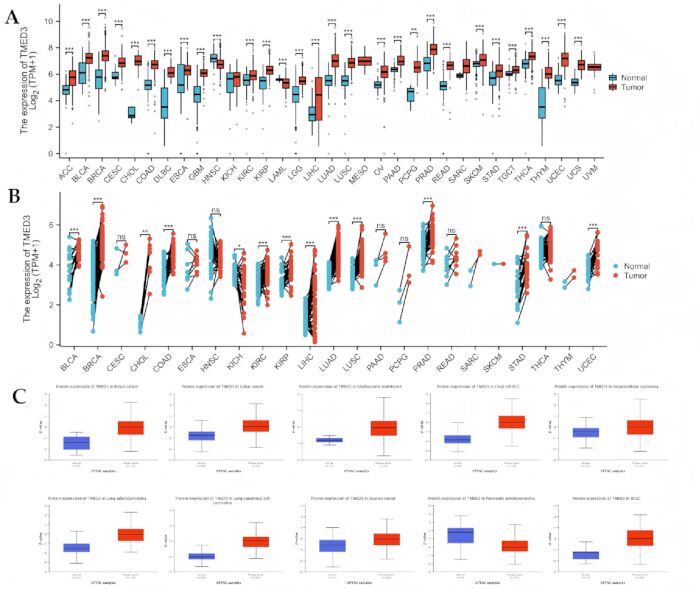
図1。ヒトがんにおけるTMED3発現プロファイル。 (A) TCGAおよびGTExデータセットに基づく複数のがんタイプにおける腫瘍と正常組織間のTMED3 mRNA発現の違い。発現レベルはlog2(TPM + 1)で表されます。(B) TCGAデータセットからの腫瘍組織と隣接する正常組織間のTMED3 mRNA発現のペア解析。(C) CPTAC/UALCANデータセットにおける正常組織と原発腫瘍間のTMED3タンパク質発現の違い。これには乳浸潤性がん(BRCA)、大腸腺癌(COAD)、多形性膠芽腫(GBM)、腎腎透明細胞癌(KIRC)、肝細胞癌(LIHC)、肺腺癌(LUAD)、肺扁平上皮癌(LUSC)、卵巣漿液性嚢腺癌(OV)、膵腺腺癌(PAAD)、子宮内膜癌(UCEC)が含まれます。データは箱絵として提示されます。統計的有意性は、適宜ウィルコクソン順位和またはウィルコクソン署名順位検定を用いて分析されました。*P < 0.05、**P < 0.01、***P < 0.001;特に重要ではありません。 この図の拡大版はこちらをクリックしてご覧ください。
臨床病理学的特徴解析
臨床ステージ解析では、ACC、KIRC、KIRP、LUADにおいて、進行期腫瘍(ステージIII–IV)においてTMED3の発現が早期腫瘍(ステージI–II)と比べて有意に高いことが示されました(図2)。対照的に、TMED3の発現は進行期のUCEC組織で有意に減少しました。これらの発見は、TMED3発現の上昇がいくつかのがんタイプにおける腫瘍進行と関連している可能性を示唆しています。
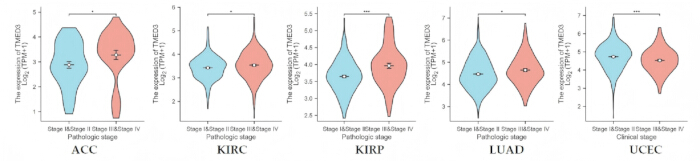
図2。複数のがんにおけるTMED3発現と病理学的ステージの関連。 副腎皮質がん(ACC)、腎腎透明細胞癌(KIRC)、腎腎乳頭細胞癌(KIRP)、肺腺腺癌(LUAD)、子宮内膜がん(UCEC)における初期腫瘍(ステージI–II)および進行期腫瘍におけるTMED3 mRNA発現レベルを示すバイオリンプロット。発現レベルはlog2(TPM + 1)で表されます。統計的有意性はウィルコクソンランク和検定を用いて評価されました。*P < 0.05、***P < 0.001。 この図の拡大版はこちらをクリックしてご覧ください。
予後分析
Cox回帰分析および生存分析により、高いTMED3発現はACC、COAD、LUAD、UVMにおけるOSの低下と関連していることが示されました(図3A)。さらにDSS解析により、TMED3発現の上昇がACC、COAD、GBM、KIRP、UVMにおける不利なDSSと有意に関連していることが明らかになりました(図3B)。特に、ACC、COAD、UVMはTMED3発現が高い患者において、OSおよびDSSの両方で一貫して予後が悪かったことが示されました。また、LUAD、KIRC、LGGなどの選択的な腫瘍タイプでも傾向レベルの予後関連が観察されました。これらの発見は、TMED3の発現が複数の悪性腫瘍において予後的な関連性を持つ可能性を示唆しています。
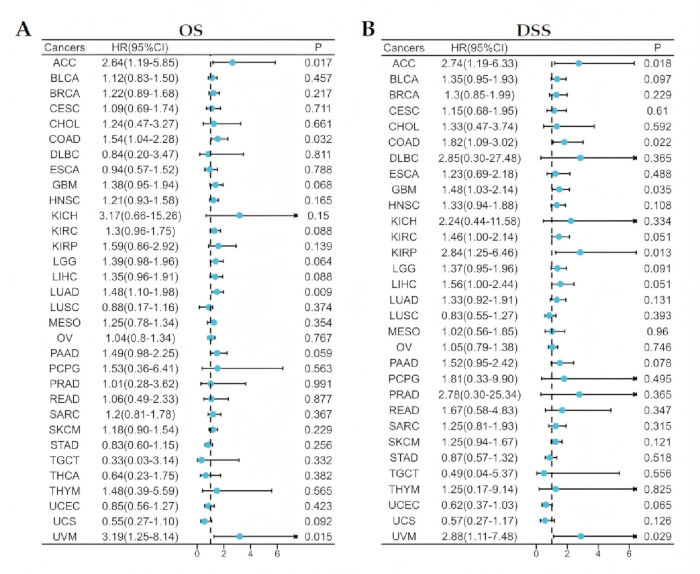
図3。汎がん解析におけるTMED3発現の予後的有意性。 (A) 複数のがんタイプにおけるTMED3発現と総生存率(OS)の関連を示すフォレストプロット。(B) 複数のがんタイプにおけるTMED3発現と疾患特異的生存率(DSS)の関連を示すフォレストプロット。ハザード比(HR)および95%信頼区間(95% CI)は、Cox比例ハザード回帰分析を用いて算出されました。心拍数>1はTMED3発現の高さに関連して予後が悪いことを示します。 この図の拡大版はこちらをクリックしてご覧ください。
突然変異解析
cBioPortalデータベースを用いた遺伝子変異解析により、がんにおけるTMED3変異は主に変異、増幅、深層消失、多重変異で構成されていることが示されました(図4)。TMED3変異の最も高い頻度は中皮腫(MESO)で観察され、主に遺伝子増幅によって引き起こされました(2.3%)。ESCAでは変異(0.55%)、増幅(1.1%)、深層欠失(0.55%)を含む混合変異が認められました。対照的に、LIHC、KICH、THCA、PCPG、CHOL、UVM、LAML、UCS、DLBC、KIRC、TGCT、GBMの各データセットでは検出可能なTMED3遺伝的変異は認められませんでした。これらの発見は、TMED3のゲノム変異が腫瘍特異的に起こり、がんの異質性に寄与する可能性があることを示しています。
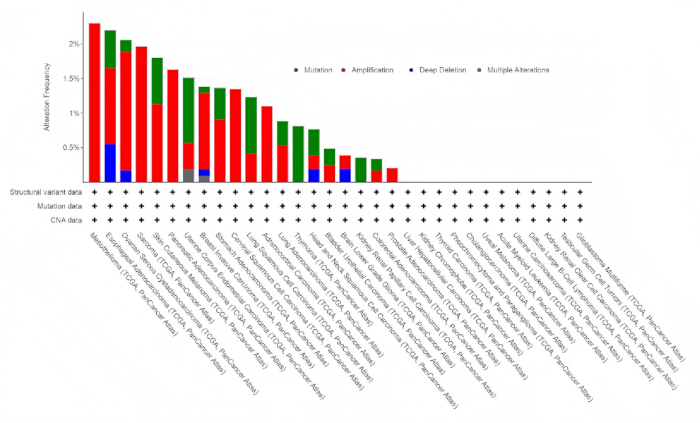
図4。がんにおけるTMED3の遺伝的変異の風景。 cBioPortalデータベースから取得した汎がんデータセットにおけるTMED3遺伝子変異の頻度と種類。変異のカテゴリーには、突然変異、増幅、深層欠失、多重変異が含まれていました。y軸はがんの種類ごとの変質頻度(%)を示します。 この図の拡大版はこちらをクリックしてご覧ください。
DNAメチル化解析
UALCANデータベースの解析により、BRCA、COAD、ESCA、HNSC、KIRC、KIRP、LIHC、LUAD、PAAD、PRADの腫瘍組織において、TMED3プロモーターメチル化レベルが正常組織と比較して有意に増加していることが示されました(図5)。対照的に、BLCA、TGCT、UCEC組織では、正常対照群と比較してTMED3プロモーターのメチル化レベルが低下しました。これらの発見は、TMED3プロモーターの異常なメチル化が腫瘍特異的なTMED3発現調節に寄与する可能性を示唆しています。
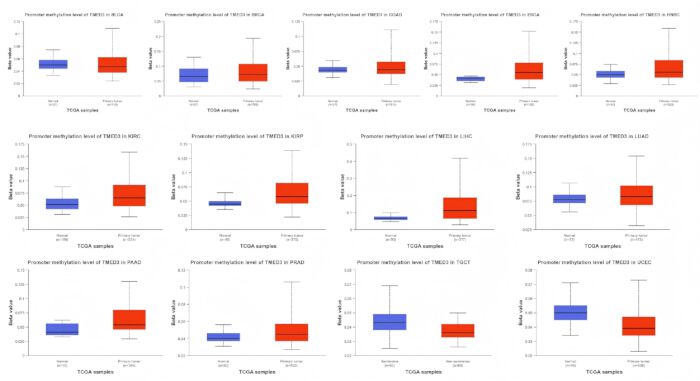
図5。がんにおけるTMED3のプロモーターメチル化レベル。 膀胱尿路上皮癌(BLCA)、乳浸潤性がん(BRCA)、大腸腺癌(COAD)、食道癌(ESCA)、頭頸部扁平上皮癌(HNSC)、腎腎透明細胞癌(KIRC)、腎臓乳頭細胞癌(KIRP)、肝細胞癌(LIHC)、肺腺癌(LUAD)、膵腺腺癌(PAAD)における腫瘍組織と正常組織間のTMED3プロモーターメチル化レベルの比較 UALCANから得られた前立腺腺癌(PRAD)、精巣胚細胞腫瘍(TGCT)、子宮小体子宮内膜癌(UCEC)データセット。データはボックスプロットのβ値として提示されます。 この図の拡大版はこちらをクリックしてご覧ください。
TMED3、TMB、MSIの相関分析
スピアマン相関解析により、ACC、ESCA、KIRC、LGG、PAAD、STAD、THYM、UCECではTMED3発現がTMBと正の相関を示し、一方でCESC、LUAD、TGCTでは負の相関が観察されました(図6A)。さらに、TMED3発現はDLBC、KIRC、SKCM、STAD、UCECにおいてMSIと正の関連を示しました(図6B)。特に、TMED3発現はKIRC、STAD、UCECにおいてTMBおよびMSIと正の相関を示し、これらのがんにおける腫瘍免疫原性と潜在的な関連性を示している可能性があります。
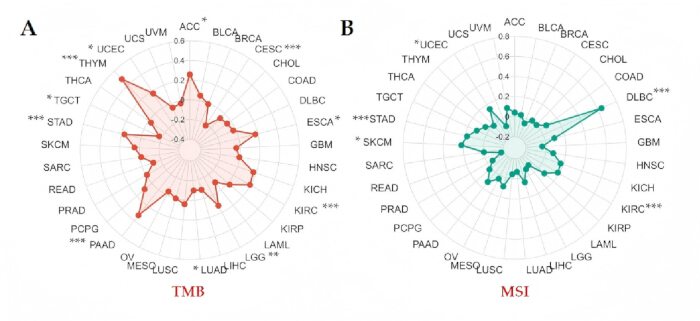
図6。腫瘍変異負荷およびマイクロサテライト不安定性におけるTMED3発現の相関 。(A) がん間でのTMED3発現と腫瘍変異負荷(TMB)との相関を示すレーダープロット。(B) がんにおけるTMED3発現とマイクロサテライト不安定性(MSI)との相関を示すレーダープロット。相関係係数はスピアマン相関解析を用いて算出されました。*P < 0.05、**P < 0.01、***P < 0.001. この図の拡大版はこちらをクリックしてご覧ください。
免疫特性解析
ESTIMATE解析により、TMED3の発現はBCLA、ESCA、LAML、LUAD、LUSC、PAAD、PRAD、SKCM、STAD、THCA、UCECにおける間質スコア、免疫スコア、ESTIMATEスコアと負の相関を示しました(図7A)。対照的に、TMED3発現とこれらの免疫関連スコアとの間には、LGG、LIHC、PCPGで正の相関が観察されました。ACC、CHOL、DLBC、GBM、KICH、KIRC、KIRP、OV、UCSでは有意な相関は認められませんでした。これらの発見は、TMED3ががんの種類に依存的に腫瘍微小環境および免疫細胞浸潤に影響を与える可能性を示唆しています。免疫チェックポイント相関解析により、TMED3発現はBLCA、BRCA、CESC、ESCA、HNSC、LUAD、LUSC、PRAD、SKCM、THCAにおける免疫チェックポイント関連遺伝子CD274(PD-L1)、PDCD1(PD-1)、CTLA4と負の関連を示しました(図7B)。TMED3発現と免疫チェックポイント遺伝子の間に正の相関はLIHCおよびUVMで確認されたが、GBM、KICH、LAML、MESO、OV、PCPG、READ、TGCTでは有意な関連は認められなかった。これらの結果は、TMED3が選択がんにおける腫瘍免疫調節および免疫チェックポイントシグナル伝達に関連している可能性を示しています。
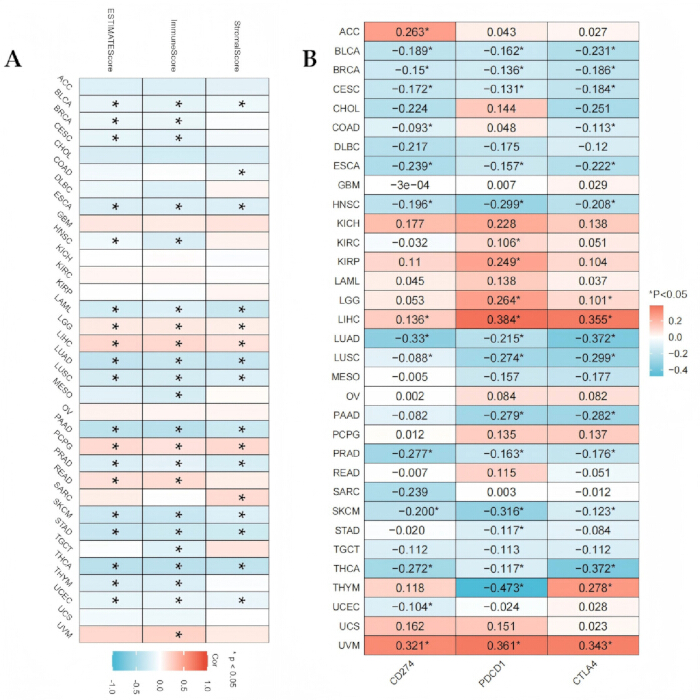
図7。TMED3発現と腫瘍免疫特性との関連。 (A) TMED3発現と間質スコア、免疫スコア、ESTIMATEスコアの相関を示すヒートマップ(ESTIMATEアルゴリズムを用いて計算)。(B) TMED3発現と免疫チェックポイント関連遺伝子(CD274(PD-L1)、PDCD1(PD-1)、CTLA4を含むとの相関を示すヒートマップ。相関係数はスピアマン相関解析を用いて算出されました。色のスケールは相関度を示します。*P < 0.05。 この図の拡大版はこちらをクリックしてご覧ください。
薬物感受性分析
GDSCデータセットに基づくGSCALiteプラットフォームを用いた薬物感受性解析では、TMED3発現が17-AAG、ラパチニブ、PD-0325901、RDEA119、トラメチニブの半最大阻害濃度(IC50)値と負の相関を示しました(図8)。これらの結果は、TMED3発現が上昇した腫瘍はこれらの抗がん剤に対する感受性が高まる可能性を示唆しており、TMED3発現と治療感受性との間に潜在的な関連がある可能性を示唆しています。
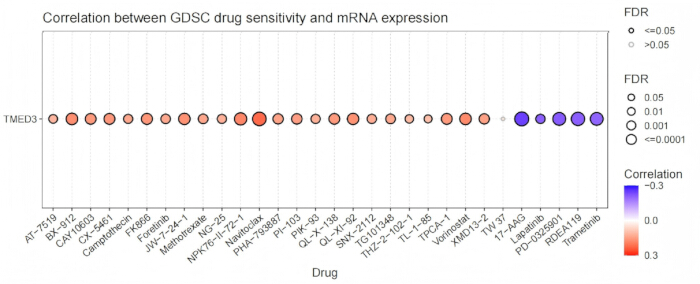
図8。TMED3発現と抗がん薬感受性との相関。 GSCALiteプラットフォームを通じて得られたがん薬感受性ゲノム(GDSC)データセットから得られたTMED3 mRNA発現と抗がん薬に対する感度の相関を示すバブルプロット。バブルサイズは偽発見率(FDR)に基づく統計的有意性を示し、色は相関係数の値を示します。負の相関は高いTMED3発現に関連する薬物感受性の増加を示しました。 この図の拡大版はこちらをクリックしてご覧ください。
大腸がんにおけるTMED3の発現と予後
TMED3発現解析により、TCGAデータセットにおける大腸がん組織のTMED3 mRNAレベルが正常な大腸組織と比較して有意に増加していることが示されました(図9A)。隣接する正常組織を比較対象としたペア分析では、大腸がん組織におけるTMED3発現の上昇がさらに確認されました(図9B)。トランスクリプトミクスの発見と一致して、UALCAN/CPTACデータセットを用いたタンパク質発現解析および免疫組織化学染色により、大腸がん組織におけるTMED3タンパク質発現が正常な大腸組織と比較して増加することが示されました(図9C–9E)。ROC曲線解析では曲線下面積(AUC)が0.869となり、TMED3が大腸がん組織と正常組織を区別する上で良好な診断性能を示しました(図9F)。臨床病理学的解析では、TMED3の発現がT期と有意に関連している一方、年齢、性別、N期、TNM期では有意な関連は認められなかったことが示されました(表1)。これらの発見は、大腸がんにおけるTMED3の診断的意義の可能性を支持しています。
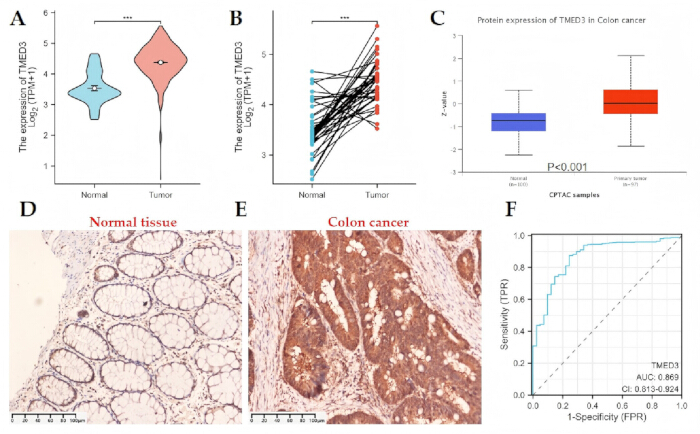
図9。大腸がんにおけるTMED3の発現、診断価値、および免疫組織化学的検証。(A) TCGAデータセットに基づく大腸がん組織と正常大腸組織間のTMED3 mRNA発現の違い。(B) 大腸がん組織および隣接する正常組織におけるTMED3 mRNA発現のペア解析。(C) CPTAC/UALCANデータセットから得られた大腸がんおよび正常組織におけるTMED3タンパク質発現。(D) 正常結腸組織におけるTMED3の代表的な免疫組織化学的染色。(E) 大腸がん組織におけるTMED3の免疫組織化学的染色で、TMED3の発現増加を示す代表的な結果。(F) 大腸がんにおけるTMED3の診断価値を評価するレシーバー操作特性(ROC)曲線。スケールバー=100μm。曲線下面積(AUC)は0.869で、95%信頼区間(CI)は0.813–0.924でした。統計的有意性は、適宜ウィルコクソン順位和またはウィルコクソン署名順位検定を用いて分析されました。P < 0.001.この図の拡大版はこちらをクリックしてご覧ください。
| 種類 | TMED3 | P 値 | χ2 | ||
| 低い表情 | 高い表情 | ||||
| 年代 | |||||
| ≤55年 | 25 | 15 | 10 | 0.13 | 2.34 |
| >55年 | 35 | 14 | 21 | ||
| 性別 | |||||
| 女性 | 21 | 10 | 11 | 0.94 | 0.007 |
| 男性 | 39 | 19 | 20 | ||
| Tステージ | |||||
| T1+T2 | 23 | 15 | 8 | 0.04 | 4.26 |
| T3+T4 | 37 | 14 | 23 | ||
| Nステージ | |||||
| N0 | 30 | 12 | 18 | 0.2 | 1.67 |
| N1+N2 | 30 | 17 | 13 | ||
| TNMステージ | |||||
| I+II | 33 | 13 | 20 | 0.13 | 2.35 |
| III+IV | 27 | 16 | 11 | ||
表1:大腸がんにおけるTMED3発現と臨床病理的特徴との関連。 大腸がん患者の臨床病理学的特徴は、TMED3発現が低い群と高発現群で比較されました。TMED3発現と臨床病理学的変数(年齢、性別、Tステージ、Nステージ、TNMステージ)との関連を、カイ二乗(χ2)検定を用いて解析しました。データは各サブグループに属する患者数として提示されます。統計的有意性はP < 0.05と定義されました。
KM生存分析では、TMED3発現が高い患者は、低TMED3発現の患者に比べてOS(P = 0.031)およびDSS(P = 0.020)が有意に低下していることが示されました(図10A および 10B)。時間依存的なROC解析により、1年、3年、5年でTMED3発現の予測性能がそれぞれ0.620、0.564、0.575のAUC値を得たことが示されました(図10C)。さらに、単変量および多変量Cox回帰分析により、Tステージ、Mステージ、病理学的ステージ、TMED3発現が大腸がんの全生存に関連した予後因子として特定されました(表2)。これらの結果は、TMED3の発現上昇が大腸がんにおける予後不良と関連していることを示唆していますが、時間依存的なROC解析では予測効果は控えめにとどまりました。
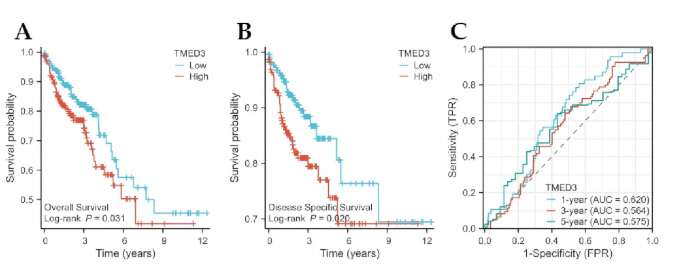
図10。大腸がんにおけるTMED3発現の予後的意義。 (A) 大腸がんにおける高TMED3発現と低発現の患者を比較したKaplan–Meier(KM)総生存率(OS)曲線。(B) 高発現および低TMED3発現患者を比較したKaplan–Meier病特異的生存率(DSS)曲線。(C) 1年、3年、5年OSにおけるTMED3発現の予測性能を評価する時間依存的な受信者動作特性(ROC)曲線。生存差はログランク検定を用いて分析した。 この図の拡大版はこちらをクリックしてご覧ください。
| 特徴 | 単変量解析 | 多変量解析 | ||
| ハザード比 (95% CI) | P値 | ハザード比 (95% CI) | P値 | |
| 性別 | 1.101(0.746–1.625) | 0.627 | ||
| Tステージ | 3.072(1.423–6.631) | 0.004 | 3.817(1.174–12.407) | 0.026 |
| Nステージ | 2.592(1.743–3.855) | <0.001 | 0.587(0.223–1.584) | 0.28 |
| Mステージ | 4.193(2.683–6.554) | <0.001 | 2.272(1.314–3.930) | 0.003 |
| 病態段階 | 2.947(1.942–4.471) | <0.001 | 3.115(1.032–9.401) | 0.044 |
| TMED3 | 1.537(1.037–2.277) | 0.032 | 1.599(1.039–2.462) | 0.033 |
表2:大腸がんの全生存に関連する予後因子の単変量および多変量Cox比例ハザード回帰分析。 大腸がん患者における臨床病理学的特徴およびTMED3発現の予後有意性を評価するために、単変量および多変量Cox比例ハザード回帰解析が実施されました。ハザード比(HR)は95%信頼区間(95%CI)で提示されます。変数には性別、T期、N期、M期、病態期、TMED3発現が含まれていました。統計的有意性はP < 0.05と定義されました。
薬剤感受性解析の結果、TMED3発現群の患者は、5-フルオウラシル、ラパチニブ、トラメチニブの推定IC50 値が低TMED3発現群に比べて低いことが示されました(図11)。これらの発見は、TMED3発現が上昇した大腸がん患者がこれらの化学療法および標的治療薬に対する感受性が高まる可能性を示唆しており、TMED3発現と治療反応の間に潜在的な関連がある可能性を示唆しています。
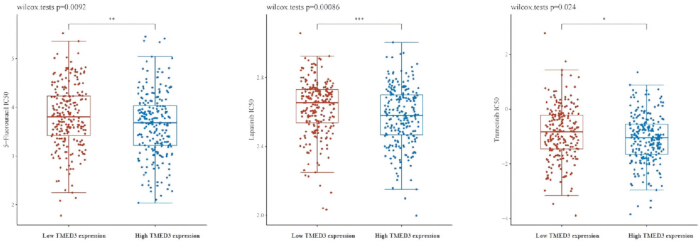
図11。大腸がんにおけるTMED3発現と化学療法薬剤感受性との相関。 5-フルオウラシル、ラパチニブ、トラメチニブの推定半最大阻害濃度(IC50)値を、低TMED3発現(G1)群と高TMED3発現(G2)群のボックスプロット。IC50 値が低いほど薬剤感受性が高いことを示します。統計的有意性はウィルコクソンランク総和検定を用いて分析されました。*P < 0.05、**P < 0.01、***P < 0.001. この図の拡大版はこちらをクリックしてご覧ください。
遺伝子豊化解析
MSigDBデータベースのKEGGデータセットを用いたGSEAでは、大腸がんにおけるTMED3関連遺伝子がリボソーム、抗原処理および提示、酸化リン酸化、ペントースリン酸経路に関連する経路で有意に豊かであることを示しました(図12)。これらの発見は、TMED3が大腸がんにおける上記の経路を通じて腫瘍進行に関与している可能性を示唆しています。
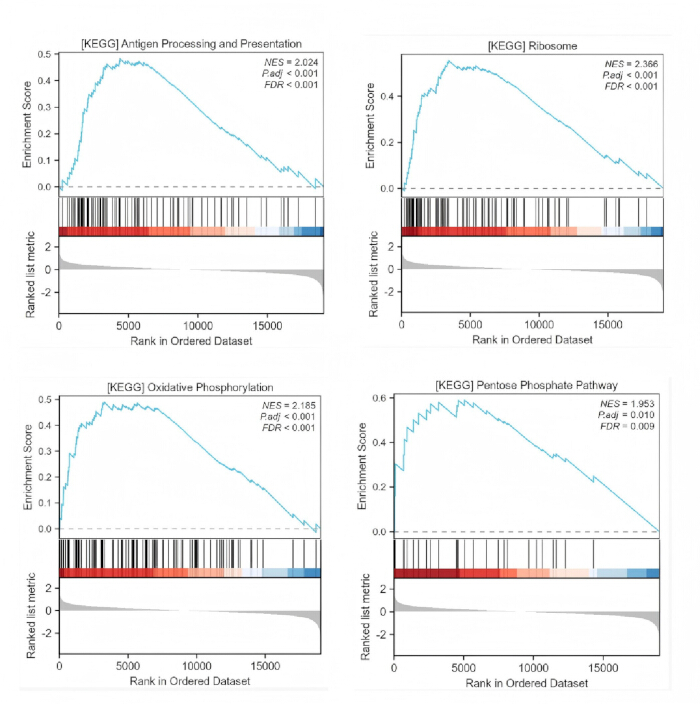
図12。大腸がんにおけるTMED3関連遺伝子の遺伝子セット豊富解析(GSEA)。GSEA は、抗原処理および提示に関連する経路におけるTMED3関連遺伝子の濃縮、リボソーム、酸化リン酸化、大腸がんにおける五糖リン酸経路の濃縮を示している。各パネルには正規化濃縮スコア(NES)、名目P値、偽発見率(FDR)値が示されています。 この図の拡大版はこちらをクリックしてご覧ください。
本研究はTMED3が複数のがんに異常に発現し、腫瘍進行、予後、免疫特性、TMB、MSI、薬剤感受性と関連していることを示しました。大腸がんでは、TMED3の過剰発現が良好な生存アウトカムおよび診断価値の向上と関連していました。機能豊か解析はさらに、TMED3ががん関連の代謝およびシグナル伝達経路に関与している可能性を示唆しました。これらの発見は、特に大腸がんにおける診断および予後バイオマーカーとしてTMED3をさらに研究することを支持しています。
データの利用可能性:
本研究で分析されたデータセットは、The Cancer Genome Atlas(TCGA;https://portal.gdc.cancer.gov/projects/ 年;2025年7月1日アクセス)、UALCAN(http://ualcan.path.uab.edu/;2025年7月1日アクセス)、cBioPortal(https://www.cbioportal.org/;2025年7月5日アクセス)、およびGSCAを通じたがん感受性ゲノム学(GDSC)プラットフォーム(https://guolab.wchscu.cn/GSCA/#/drug;2025年7月5日アクセス)など、公開されているデータベースから取得されました。本研究で生成されたすべての処理データは記事に含まれています。
ディスカッション
TMEDタンパク質はemp24ドメインを含む高度に保存されたタンパク質で、真核細胞内にモノマーまたは二量体として存在します20。TMEDファミリーのメンバーは、小胞媒介によるタンパク質輸送および細胞内輸送に関与するタイプI膜貫通タンパク質です。p24タンパク質ファミリーはTMED3を含む10のTMEDメンバーで構成されています。増え続ける証拠により、TMED3は子宮内膜がん、骨肉腫、透明細胞癌、肝細胞がん、前立腺がん、乳がんなど複数の悪性腫瘍で異常発現していることが示されています(4,6,21,22,23)。TMED3発現の上昇は、複数の腫瘍タイプ3,5,17,18,19においても悪化した予後と関連しています。肺扁平上皮がんでは、TMED3はエズリンの調節を通じて腫瘍の進行を促進することが示され、TMED3のサイレンシングは細胞増殖、コロニー形成、移動、アポトーシス関連タンパク質調節障害を抑制しました。これらの研究を総合すると、TMED3はがんの発生と進行に密接に関与していることが示されています。しかし、その生物学的機能や汎がんにおける分子メカニズムは、まだ完全に解明されていません。
本研究では、複数の公開データベースを統合し、がんにおけるTMED3の発現パターン、予後意義、免疫特性および潜在的な生物学的機能を包括的に評価しました。TMED3の発現は26種類の腫瘍で有意に増加し、これらの結果は複数のがんにおける腫瘍と隣接する正常組織のペア解析を用いてさらに確認されました。一貫して、CPTACのデータではBRCA、COAD、GBM、KIRC、LIHC、LUAD、LUSC、OV、UCECにおけるTMED3タンパク質発現の上昇が示されました。興味深いことに、PAAD組織ではTMED3 mRNA発現が上昇したものの、UALCANデータベースではタンパク質発現が低下しており、転写後の調節、タンパク質分解、翻訳後の修飾がこの不一致に寄与している可能性を示唆しています。これまでの研究では、乳がん細胞におけるTMED3の過剰発現がMCF-7細胞の細胞質および核におけるβ C-カテニンおよびAxin-2の蓄積を促進し、C-myc、MMP7、TCF4を含むWnt/β-カテニン下流標的の発現を促進し、腫瘍細胞の増殖、移動、浸潤を促進することが示されています24.同様に、TMED3は非小細胞肺がんでもアップレギュレーションされることが報告されており、TMED3のサイレンシングは腫瘍細胞の増殖と侵襲能力を抑制します25。本研究では、臨床病理学的解析により、TMED3の発現は進行期ACC、KIRC、KIRP、LUADで上昇し、進行期UCECでは発現が低下していることが示され、がん進行過程におけるTMED3の腫瘍特異的生物学的役割の可能性を示しました。生存分析では、ACC、COAD、UVMにおけるTMED3発現の高発現と悪影響のOSおよびDSSとの有意な関連が示され、複数の悪性腫瘍におけるTMED3の予後価値を支持しました。さらに、プロモーターメチル化解析により、BRCA、COAD、ESCA、HNSC、KIRC、KIRP、LIHC、LUAD、PAAD、PRADでTMED3メチル化レベルが上昇し、BLCA、TGCT、UCECではメチル化レベルが低下していることが確認されました。これらの発見は、異常なプロモーターメチル化が腫瘍依存的にTMED3発現の調節不全に寄与し、がんの発生に関与する可能性を示しています。
MSIは、これらの腫瘍が変異負荷の上昇とPD-L1発現の増加を示すため、免疫療法への応答性の向上としばしば関連している明確な分子サブタイプを代表します(26,27)。TMBが高い腫瘍は体細胞変異由来の多数の新抗原を産生し、T細胞介在の抗腫瘍免疫活性を高め、免疫チェックポイント阻害に対する感受性を高める可能性があります28,29。本研究では、TMED3の発現がKIRC、STAD、UCECにおけるTMBおよびMSIと正の相関を示し、TMED3がこれらのがんタイプにおける腫瘍免疫原性および免疫治療反応性と関連している可能性を示しています。腫瘍微小環境、特に免疫および間質成分が、がんの進行、治療反応、再発、患者の予後において重要な役割を果たすことが増えています。ESTIMATEアルゴリズムは、免疫関連の遺伝子発現パターンに基づいてストロマル、免疫、ESTIMATEスコアを計算し、これまでの研究ではこれらのスコアと前立腺がん、膠芽腫、大腸がんの臨床アウトカムとの間に有意な関係が報告されています30,31,32。我々の解析では、TMED3の発現が間質スコア、免疫スコア、ESTIMATEスコアと異なる腫瘍タイプで変動的に関連していることが示され、TMED3が腫瘍微小環境の調節を通じて腫瘍進行に寄与している可能性が示唆されました。さらに、TMED3の発現はCD274(PD-L1)、PDCD1(PD-1)、CTLA4など複数の免疫チェックポイント関連遺伝子と相関していましたが、これらの関連の方向や大きさは腫瘍タイプによって異なります。ACC、KIRP、LGG、LIHC、THYM、UVMにおいてTMED3と免疫チェックポイントマーカーの間に有意な正相関が認められ、これらのがんでTMED3発現が上昇する腫瘍は免疫療法に対する感受性が高まる可能性を示唆しています。薬剤感受性解析では、TMED3発現と17-AAG、ラパチニブ、PD-0325901、RDEA119、トラメチニブへの反応性と関連が示され、TMED3発現と治療効果との潜在的な関連が示されました。
大腸がんは免疫組織化学的検証のために選定され、結果は大腸がん組織においてTMED3の発現が正常な大腸組織と比べて著しく上昇していることを確認し、前述の結果と一致しました7。臨床病理学的解析により、大腸がんにおけるTMED3発現とTステージの間に有意な関連があることが明らかになりました。さらに、TMED3は診断価値の可能性を示し、TMED3の発現増加は患者の予後悪化と関連していました。しかし、時間依存ROC解析では、1年、3年、5年のOS予測におけるAUC値は0.5をわずかに上回る程度であり、統計的有意性にもかかわらず予測精度は限定的であることを示しました。これらの発見は、TMED3が通常の臨床応用における堅牢な予測因子というよりも、探索的予後バイオマーカーとしての価値の方が高いことを示唆しています。単変量および多変量Cox回帰解析により、Tステージ、Mステージ、病理学的ステージ、TMED3発現が大腸がんにおけるOSに関連する独立した予後因子であることがさらに特定されました。薬剤感受性分析では、TMED3発現が上昇した患者は、5-フルオウラシル、ラパチニブ、トラメチニブなど、一般的に使用される治療薬に対してより反応が強いことが示されました。さらに、機能豊か解析により、大腸がんにおけるTMED3関連遺伝子は主にリボソーム、抗原処理および提示、酸化リン酸化、ペントースリン酸経路に関連する経路で富集していることが明らかになりました。
本研究は複数のがんタイプにおけるTMED3の発現プロファイル、予後値、免疫関連特性を体系的に評価しました。しかしながら、いくつかの制限を考慮する必要があります。ほとんどの発見は公開データセットに基づくバイオインフォマティクスおよびマルチオミクス解析から導き出され、実験的検証は大腸がん組織における免疫組織化学的解析に限定されました。さらに、TMED3が腫瘍進行に果たす正確な分子メカニズムを調査するための機能的実験は行われていません。したがって、TMED3の生物学的機能と異なる悪性腫瘍における治療的意義をさらに明らかにするために、追加のin vitroおよびin vivo研究が必要です。
開示事項
利益相反:
著者たちは競合する利害関係を一切認めていない。
謝辞
この研究は河北省医学科学研究プロジェクト(第20231832号)の支援を受けました。著者らはTCGA、GTEx、UALCAN、cBioPortalの各データベースの貢献を心より感謝します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.5% Ammonia Solution | 天津フユ精密化学株式会社 | CAS:1336-21-6 | N/A |
| 1% Acid Alcohol | 寧波チウェルバイオテクノロジー株式会社 | CWGQ-HE-1001 | N/A |
| 10% 中性緩衝ホルマリン | 武漢ハンツバイオテクノロジー株式会社 | H-H8060 | N/A |
| 100% エタノール | 天津フユ精密化学株式会社 | CAS:64-17-5 | N/A |
| 70% エタノール | 天津フユ精密化学株式会社 | CAS:64-17-5 | N/A |
| 80% エタノール | 天津フユ精密化学株式会社 | CAS:64-17-5 | N/A |
| 95% エタノール | 山東李潤医療技術株式会社 | CAS:64-17-5 | N/A |
| アルシアンブルー染色 | バス診断株式会社、珠海 | BA4121 | N/A |
| cBioPortal | メモリアル・スローン・ケタリング癌センター | N/A | SCR_014555 |
| クエン酸ベースの抗原再現バッファ | ライカ・バイオシステムズ・ニューキャッスル株式会社 | AR9640-CN | N/A |
| clusterProfiler パッケージ | Bioconductor | N/A | SCR_016884 |
| DESeq2 パッケージ | Bioconductor | N/A | SCR_015687 |
| ジアミノベンジジンテトラ塩化物水和物 | ライカ・バイオシステムズ・ニューキャッスル株式会社 | DS9800-CN | N/A |
| ESTIMATE パッケージ | R パッケージ | バージョン 1.0.13 | N/A |
| GSCALite プラットフォーム | GSCALite | N/A | N/A |
| GTEx データベース | GTEx コンソーシアム | N/A | SCR_013042 |
| ヘマトキシン | 寧波チウェルバイオテクノロジー株式会社 | CWGQ-HE-1001 | N/A |
| 過酸化水素 | オリジンテクノロジーズ株式会社 | PV-6000D | N/A |
| カプラン・マイアー生存分析 | サバイバル R パッケージ | バージョン 3.2-7 | SCR_021137 |
| KEGG 遺伝子セット | MSigDB | バージョン 7.5.1 | SCR_016863 |
| 光学顕微鏡 | ツァイス・テクノロジー(蘇州)株式会社 | N/A | N/A |
| パラフィン包埋媒体 | YL 株式会社病理試薬部門 | CAS:8002-74-2 | N/A |
| ポリマーベースの検出システム | ライカ・バイオシステムズ・ニューキャッスル株式会社 | PV-6000 | N/A |
| R 統計分析ソフトウェア | R 統計計算財団 | バージョン 4.2.1 | SCR_001905 |
| ウサギ抗マウス IgG 二次抗体 | ライカ・バイオシステムズ・ニューキャッスル株式会社 | DS9800-CN | N/A |
| TCGA データベース | 国立がん研究所 | N/A | SCR_003193 |
| TMED3 一次抗体 | クサバイオテクノロジー、ヒューストン、米国 | CSB-PA897107LA01HU | N/A |
| Tris 緩衝リン酸食塩 (TBS) | ライカ・バイオシステムズ・ニューキャッスル株式会社 | AR9590-CN | N/A |
| UALCAN データベース | UALCAN | N/A | SCR_015827 |
| ウィルコクソン統計分析 | 統計 R パッケージ | N/A | SCR_003005 |
| キシレン | 天津フユ精密化学株式会社 | CAS:1330-20-7 | N/A |